本研究では、非小細胞肺癌の組織および細胞株において、miR-21-5pの発現、細胞接着分子1との関連、ならびに遊走、増殖、炎症マーカーの発現および生存率との関係を評価します。
研究記事
非小細胞肺癌の進展および予後におけるmiR-21-5p-細胞接着分子1軸
28 回視聴
⸱
2026年9月11日
* These authors contributed equally
この記事について
サマリー
要約
miR-21-5pが非小細胞肺癌(NSCLC)における重要な分子調節因子であることが示唆されています。細胞接着分子1(CADM1)は潜在的な腫瘍抑制因子ですが、NSCLCの進行におけるmiR-21-5pとCADM1の調節関係は依然として不明です。定量逆転写PCR(qRT-PCR)を用いて、NSCLC組織および細胞におけるmiR-21-5pとCADM1の発現を検出しました。miR-21-5pとCADM1の標的結合は、デュアルルシフェラーゼレポーター遺伝子アッセイによって検証しました。細胞遊走能はTranswellアッセイで検出しました。また、臨床病理学的データと生存分析を組み合わせて、miR-21-5pの臨床的意義を検討し、miR-21-5p標的遺伝子の機能エンリッチメントをバイオインフォマティクスを用いて解析しました。NSCLC組織におけるmiR-21-5pの発現は、隣接する正常組織よりも有意に高く、miR-21-5pの発現が高い患者では全生存期間が短いことが分かりました。miR-21-5pの高発現は、NSCLC患者の生存における独立したリスク因子です。miR-21-5pの過剰発現は、NSCLC細胞の細胞遊走を促進し、炎症因子の発現を上昇させました。デュアルルシフェラーゼレポーター遺伝子アッセイにより、miR-21-5pがCADM1を直接的に標的とすることが確認されました。一方、CADM1の過剰発現はNSCLC細胞の細胞遊走を抑制し、炎症因子の発現を低下させました。バイオインフォマティクス解析の結果、miR-21-5pの標的遺伝子は、腫瘍の発生および進展に関連する複数のシグナル伝達経路に濃縮されていました。以上の結果から、miR-21-5pはCADM1を標的として抑制することでNSCLCの進行を促進しており、予後バイオマーカーおよび治療標的となる可能性があります。
概要
世界的に、肺がんはがん関連死亡の主要な原因となっており、その罹患率は着実に上昇しています1,2。東アジアの人々における肺がんの罹患率および死亡率は、男性では10万人あたり222.1人と155.5人、女性では10万人あたり158.1人と87.3人に達しています。非小細胞肺がん(NSCLC)はすべての肺悪性腫瘍の約80%を占め、3つの主要な組織学的サブタイプに分類されます3。非常に侵襲性の高い小細胞肺がん(SCLC)と比較して、NSCLCの進行と転移は緩やかですが、初期の臨床症状が漠然としているため、患者の75%以上が中間段階または進行段階で診断され、結果として5年生存率は依然として低いままとなっています4。肺の腫瘍形成は、がん遺伝子の活性化とがん抑制遺伝子のサイレンシングによって引き起こされるため5、新規治療法を開発するにはNSCLCの分子基盤を解明することが急務となっています6。
マイクロRNA(miRNA、長さ18–25ヌクレオチド)は、標的mRNAの3′非翻訳領域(3′-UTR)に結合することで、翻訳抑制またはmRNA分解を誘導し、転写後遺伝子抑制を媒介します7。miRNAの生合成は、RNAポリメラーゼIIによる転写でプライマリmiRNA転写産物が生成されることから始まり、その後、RNase III酵素によって切断されてヘアピン構造の前駆体miRNA(pre-miRNA)が形成されます8。ほとんどのmiRNAは、mRNAの3′-UTRに対する部分的または完全な配列相補性を介して遺伝子発現を抑制しますが、特定の細胞周期の状況下では、一部のmiRNAがmRNA翻訳を促進することがあります9。現在まで、細胞増殖、分化、アポトーシスなどの主要な生物学的プロセスを制御する数百種類のヒトmiRNAが同定されています10。以前は、異常発現しているmiRNAの検出は技術的に困難でしたが、ハイスループットシーケンシングの登場により、疾患組織におけるmiRNAの発現異常を迅速かつ網羅的にプロファイリングすることが可能となりました11。ここでは、RNAポリメラーゼIIによって転写されるmiRNAの中で最も古くに特性解析が行われたものの一つであり、その腫瘍形成的な調節機能が精力的に研究されているmiR-21-5pに焦点を当てます12
miR-21-5pはTMEM49遺伝子のイントロン内にコードされており、食道癌、大腸癌、肺癌を含む複数のヒト悪性腫瘍において一貫して過剰発現しています13。既存の非小細胞肺癌(NSCLC)における前臨床データは、その腫瘍形成活性を裏付けており、miR-21-5pの高発現は、PTENやPDCD4などの抗腫瘍ターゲットをサイレンシングすることで、腫瘍の増殖、上皮間葉転換(EMT)、および遠隔転移を加速させます14。しかしながら、従来の研究は主にmiR-21が駆動するアポトーシスおよび増殖シグナルに焦点を当てており、NSCLCにおけるmiR-21-5p/CADM1調節軸を体系的に検証した報告はほとんどありません15。細胞接着分子1(CADM1)は、上皮系癌における確立された腫瘍抑制因子であり16、細胞間接着を維持することで腫瘍細胞の脱離と転移性播種を阻止します。また、NSCLC患者コホートにおいて、その発現低下は腫瘍ステージの進行および生存率の悪化と相関しています。メカニズムとしては、CADM1は腫瘍促進的な核内因子κB(NF-κB)炎症シグナルも抑制しており、このシグナルは炎症性サイトカインの分泌を誘導し腫瘍微小環境を再構築することで転移を促進します17。miR-21-5pの腫瘍形成性とCADM1の腫瘍抑制効果は個別に文書化されていますが、NSCLCにおけるmiR-21-5p/CADM1軸には、依然として3つの重要な知見の空白が存在します。第一に、miR-21-5pによるCADM1への直接的な結合および抑制が、肺癌細胞において実験的に検証されていないこと。第二に、この軸が下流の炎症経路を介して悪性表現型を駆動するかどうかが不明であること。第三に、miR-21-5p/CADM1の複合発現シグネチャーによる予後予測能が、NSCLCの臨床検体で評価されていないことです。
これらの未解決な疑問に基づき、我々は中心的なメカニズム仮説を提案します。すなわち、NSCLCにおいて発現上昇したmiR-21-5pがCADM1の3′-UTRに直接結合してCADM1の発現を抑制し、それによってCADM1により抑制されていた転移性炎症シグナルを脱抑制させ、結果としてNSCLCの遊走を促進し、臨床的な予後を悪化させるというものです。本研究では、あらかじめ設定した3つの研究目的を追求します。(1) miR-21-5pによるCADM1への直接的な分子標的化を検証し、A549およびH1299のNSCLC細胞株における遊走能を評価する。(2) miR-21-5p/CADM1カスケードが炎症シグナル伝達を通じて転移能を調節するかを解明する。(3) miR-21-5p/CADM1の発現シグネチャーの臨床的予後価値を評価し、転移性NSCLCの新たな診断バイオマーカーおよび治療候補を同定する。
プロトコル
このレトロスペクティブ研究は、衢州中医院(承認番号:202402208)の倫理委員会の審査および承認を受けた。サンプルの採取前に、登録されたすべての患者またはその法的保護者から書面によるインフォームドコンセントを得た。
検体の採取
登録患者から原発性NSCLC腫瘍組織を外科的に採取し、対応する隣接正常肺組織を国立臨床生検工学研究センター(中国浙江省衢州市)から後方視的に収集した。2019年1月から2024年12月の間に連続的に登録された計157例のNSCLC患者検体を本コホート研究に含めた。157組のペア検体というサンプルサイズは、既報のNSCLC miRNA予後研究に基づき統計的に正当化されている。中程度の効果量を0.5、α = 0.05、統計的パワーを80%と想定した場合、必要最小サンプルサイズは122例と算出された。検体の消失、重度の組織壊死、および追跡不能となった患者の可能性を考慮し、十分な統計的パワーを確保するため、2019年1月から2024年12月までに適合した157例の患者を連続的に登録した。すべての腫瘍組織および対応する隣接正常肺組織は、外科的切除時に同一患者から採取され、その後の比較分析のためのペアサンプルとした。
組み入れ基準は以下の通りとした:(1) 術後生検により原発性NSCLCと病理学的に確定診断された患者であること、(2) 完全な臨床ベースライン、組織病理学的ステージング、および長期フォローアップ生存データがあること、(3) 組織採取前に放射線療法、化学療法、または標的療法を受けていないこと、(4) 対応する腫瘍組織および傍癌組織の標本が完全に揃っていること。
除外基準は以下の通りとした:(1) 他臓器に二次性悪性腫瘍を合併している場合、(2) 手術後3か月以内に追跡不能となった患者、(3) 重度の壊死があるか、またはその後の分子検出に不十分な組織量である検体。
すべての新鮮組織サンプルは、外科的切除後15分以内に液体窒素に投入し、超低温冷凍庫に移して−80 °Cで保存し、RNAおよびタンパク質の抽出に使用した。臨床フォローアップを定期的に行い、全生存期間を病理診断から死亡または最終フォローアップのカットオフまでの月数で測定した。
miR-21-5p発現レベルの層別化
全157名の患者におけるmiR-21-5pの相対発現値を昇順に並べ、発現量の中央値をカットオフ値としてコホートを層別化した。中央値付近に複数の同値が存在したため、中央値を下回る発現量の患者を低発現群(n = 61)に割り当て、中央値以上の発現量(中央値と同値の全症例を含む)の患者を高発現群(n = 96)に分類した。この同値の割り当てルールは、中央値の重複を解消するためにグループ分けの前にあらかじめ規定されており、グループ分けの結果は生のqRT-PCR定量データと照らし合わせて相互検証した。
細胞培養
ヒト非小細胞肺がん(NSCLC)細胞株A549およびH1299を商用サプライヤーから入手した(材料表を参照)。A549細胞はRPMI-1640培地で、H1299細胞はDMEMで培養した。どちらの細胞培養培地にも、10% 熱不活化胎児牛血清(FBS)、ペニシリン(100 U/mL)、およびストレプトマイシン(100 µg/mL)を添加した。細胞は、5% CO₂を供給した加湿インキュベーター内、37 °Cの標準条件下で培養した。
すべての機能実験に先立ち、A549およびH1299細胞株の同一性を確認するために、ショートタンデムリピート(STR)プロファイリングを実施した。マイコプラズマ汚染検査は、市販のPCRベースのマイコプラズマ検出キットを用いて毎月行い、マイコプラズマ陰性であることが確認された細胞のみを以降のアッセイに使用した。
形態が維持された対数増殖期の細胞を回収し、一過性トランスフェクションに用いた。脂質ベースのトランスフェクション試薬(参照 材料一覧表)を製造元の指示に従って使用した。後続の細胞アッセイは、トランスフェクションの50時間後に実施した。
細胞のトランスフェクション
トランスフェクションのため、形態が正常で対数増殖期にある細胞を、コンフルエンシーが60%~70%に達するように24時間前に培養プレートに播種した。トランスフェクションは、製造者の指示に従い、脂質ベースのトランスフェクション試薬(材料表を参照)を用いて行った。実験群として、mimicネガティブコントロール(mimic-NC)、miR-21-5p mimic、inhibitorネガティブコントロール(inhibitor-NC)、およびmiR-21-5p inhibitorの4群を用いた。ヌクレオチド配列は補足ファイル1に記載されている。
トランスフェクションの50時間後に全RNAを抽出し、定量逆転写PCR(qRT-PCR)を行い、miR-21-5pの相対的な発現量の測定およびトランスフェクション効率の検証を行った。細胞遊走アッセイは、トランスフェクションの50時間後に実施した。一過性トランスフェクションでは、miR-21-5p mimicまたはmimicネガティブコントロール(mimic-NC)を最終濃度50 nMで処理し、miR-21-5p inhibitorおよびinhibitorネガティブコントロール(inhibitor-NC)は100 nMで導入した。核酸導入量の差による混同効果を避けるため、トランスフェクションした核酸の総量は4つの処理群すべてで同一に維持した。
細胞増殖は、Cell Counting Kit-8 (CCK-8) アッセイを用いて評価した。安定的に形質転換された細胞を96ウェルプレートに3 × 10³ cells/wellで播種し、各群について6つのテクニカルレプリケートを作成した。播種から24、48、72時間後に、各ウェルに10 µLのCCK-8試薬を添加し、37 °Cで2時間インキュベートした。マイクロプレートリーダーを用いて450 nmにおける吸光度を測定し、細胞増殖を定量化した。
すべての transient transfection、CCK-8 および遊走実験は、3回以上の独立した生物学的反復(biological replicates)で行われ、各生物学的反復には上述の通り 3~6 回の技術的反復(technical replicates)が含まれていた。
定量逆転写PCR
NSCLC細胞、およびペアとなる臨床腫瘍組織および隣接正常組織から、フェノール/グアニジンベースのRNA抽出試薬を用いて全RNAを単離した(材料表を参照)。紫外分光光度計を用いてRNAの純度および濃度を測定し、吸光度(OD)260/280およびOD 260/230の比が1.8–2.1のサンプルのみを逆転写に用いた。プライマー配列は補足ファイル1に記載している。逆転写反応系は、全RNA 500 ng、逆転写バッファー 2 µL、dNTP混合液 1 µL、逆転写酵素 0.5 µL、miRNA用の特異的ステムループプライマーまたはmRNA用のoligo(dT)プライマー 1 µL、およびRNaseフリー水を加え、総量 20 µLとした。qRT-PCR増幅系(総量 20 µL)は、SYBR Green qPCRマスターミックス 10 µL、フォワードプライマー(10 µM)0.4 µL、リバースプライマー(10 µM)0.4 µL、希釈したcDNAテンプレート 2 µL、およびRNaseフリー水 7.2 µLで構成した。
CADM1およびGAPDHのメッセンジャーRNAは逆転写キットを用いて逆転写し、一方でmiR-21-5pはステムループプライマーを用いて逆転写し、外来性のcel-miR-39をスパイクインコントロールとして使用した。外来性cel-miR-39スパイクインは、全RNA抽出の直後かつ逆転写の前に、各RNAサンプルに添加した。cel-miR-39は、ヒトの転写産物に相同配列を持たない合成C. elegansマイクロRNAであり、異なる臨床組織サンプル間でのRNA抽出効率の差、RNA分解による損失、および逆転写効率の変動によって生じる偏差を補正できるため、miRNA定量における外来性のユニバーサルな標準化コントロールとして機能する。qRT-PCRは、リアルタイムPCRシステムを用い、蛍光DNA結合色素ベースのマスターミックスを使用して実施した(Table of Materialsを参照):95 °Cで3分間、続いて95 °Cで10秒、60 °Cで30秒、72 °Cで20秒を40サイクル繰り返し、融解曲線分析により特異的増幅を確認した。各サンプルについて3つの生物学的反復を行い、それぞれについて3つの技術的反復を実施し、相対的発現量は2⁻ΔΔCt法を用いて算出した。CRP、TNF-α、およびIL-6 mRNA増幅用の完全なプライマー配列は、CADM1、GAPDH、およびmiR-21-5pのプライマー配列とともに、Supplemental File 1に記載されている。
レンチウイルス介在性miR-21-5p安定発現系の構築
市販のレンチウイルスベクターLV-miR-21-5pおよび空ベクターコントロールであるLV-NCを293T細胞でパッケージングした。miR-21-5pの前駆体配列を、ピューロマイシン耐性遺伝子およびGFPレポーター遺伝子を保持するレンチウイルスバックボーンに挿入した。トランスフェクション後48時間および72時間にレンチウイルス上清を回収し、濃縮および精製して細胞感染に用いた。
A549細胞およびH1299細胞を、コンフルエンスが50–60%になるよう、感染の24時間前に播種した。細胞の導入効率を向上させるため、5 µg/mLのpolybreneを加え、MOI = 10(A549)およびMOI = 15(H1299)で感染させた。感染から24時間後に培地を交換し、ピューロマイシンによるスクリーニングまでさらに48時間培養した。
5 µg/mL のピューロマイシンを用いて10日間連続で安定細胞の選別を行いました。非導入細胞が7日以内に完全に排除されたことを確認するため、感染させていないブランク細胞を用いました。単一のGFP陽性クローンを単離・拡大し、安定的なモノクローナル細胞株 LV-21 および LV-NC を作製しました。
CADM1レスキューアッセイのため、市販のLV-CADM1過剰発現およびsh-CADM1ノックダウンレンチウイルスを調製した。LV-NC、LV-miR-21-5p、LV-CADM1、およびLV-miR-21-5p + LV-CADM1レスキュー群の4つの実験群を設定した。CADM1レンチウイルスは、miR-21-5pベクターと同じMOIおよびピューロマイシン選別条件下で感染させた。すべてのレスキュー増殖および遊走実験は、3回の独立した生物学的反復で実施した。
miR-21-5pの安定的な過剰発現の検証
回収したLV-21およびLV-NC安定細胞クローンから全RNAを抽出した。cel-miR-39を外来リファレンスとして用い、qRT-PCRを実施してhsa-miR-21-5pの相対的な発現レベルを検出した。LV-NC群と比較してmiR-21-5pが8倍以上にアップレギュレートされた細胞クローンを、その後のすべての機能解析に用いた。これにより、miR-21-5pを安定的に過剰発現する細胞株の構築が成功したことを確認した。
デュアルルシフェラーゼレポーターアッセイ
予測されるmiR-21-5p結合配列を含む野生型CADM1 3'-UTRレポータープラスミド(WT-CADM1)および、結合シード領域に変異を導入した変異型CADM1 3'-UTRレポータープラスミド(MUT-CADM1)を作製した。A549細胞を、トランスフェクションの24時間前に24ウェルプレートに播種し、コンフルエンスが60%~70%になるまで培養した。各ウェルに、WTまたはMUTレポータープラスミド 500 ng、50 nMのmiR-21-5p mimicまたはmimic-NC、およびRenillaルシフェラーゼ内部標準プラスミドを固定された質量比で共導入した。トランスフェクション後48時間のインキュベーション後、細胞を完全に溶解し、デュアルルシフェラーゼ検出キットを用いてホタルルシフェラーゼおよびRenillaルシフェラーゼの発光信号を順次検出した。相対的ルシフェラーゼ活性は、ホタルルシフェラーゼ発光値とRenillaルシフェラーゼ発光値の比として算出した。各実験群は3つの独立した生物学的繰り返し(biological replicates)で構成され、各生物学的繰り返しにつき3つのテクニカル繰り返し(technical replicates)を行った。mimic-NC群とmiR-21-5p mimic群の間の相対的ルシフェラーゼ活性の統計的比較には、2群の独立サンプルt検定を用いた。
Transwell遊走アッセイ
Transwell遊走アッセイでは、安定的にトランスフェクションした細胞を無血清培地に懸濁し、上部インサートに1ウェルあたり4 × 10⁴ cellsの密度で播種した。化学走性を誘導するため、下部チャンバーには10% FBSを添加した完全培地を満たした。37 °C、5% CO₂含有加湿条件下で48時間インキュベートした後、メンブレン上面に残っている細胞を慎重に除去した。メンブレン裏面に遊走した細胞をメタノールで固定し、クリスタルバイオレットで染色した。遊走能は、インサートあたりランダムに選択した5つの顕微鏡視野内の細胞数をカウントすることで定量化した。各実験は、3つの独立した生物学的レプリケートを用いて行い、各生物学的レプリケートに対して3つのテクニカルレプリケートを含めた。
統計解析
すべて in vitro 実験は、少なくとも3回の独立した生物学的反復を用いて行われ、それぞれに対応する技術的反復を伴った。統計解析の指針とするため、まずShapiro-Wilk正規性検定を用いてデータの分布を評価した。腫瘍組織と隣接する正常組織とのペア比較では、データの分布に応じて、対応のあるt検定または対応のあるWilcoxon符号付き順位検定を適用した。2つの独立した群間の比較は、独立t検定またはMann-Whitney U検定を用いて解析した。レスキュー実験を含む多群間の差は、一元配置分散分析(ANOVA)およびそれに続くBonferroniのポストホック補正により評価し、CCK-8増殖アッセイや創傷治癒アッセイなどの経時的なデータセットの解析には反復測定ANOVAを用いた。カテゴリー的な臨床変数の関連性は、以下の方法で検討した。 χ2 試験、およびmiR-21-5pと~との関係 CADM1 発現量はピアソン相関分析によって評価した。患者の生存率はカプラン・マイヤー曲線を用いて解析し、ログランク検定により比較を行った。独立した予後因子は、単変量および多変量Cox比例ハザード回帰分析を通じて同定した。統計的有意性はPで定義した。 < 0.05。年齢、性別、組織学的型、miR-21-5pレベル、およびリンパ節転移状況で調整した多変量Cox回帰(リファレンス:年齢≦60歳、女性、扁平上皮癌、miR-21-5p低値、リンパ節陰性)。Schoenfeld残差により比例ハザード仮定を確認し、単変量解析でP値が < Enter selectionを介して0.10が組み込まれた。
結果
NSCLC患者におけるmiR-21-5p発現と臨床病理学的特徴との相関
合計157例のNSCLC腫瘍サンプルを、miR-21-5pレベルの中央値に基づいてmiR-21-5p低発現群(n = 61)と高発現群(n = 96)に層別化した。カイ二乗分析の結果、miR-21-5p発現と患者の年齢(χ2 = 1.36, P = 0.2435)、性別(χ2 = 1.06, P = 0.3032)、組織学的型(χ2 = 1.09, P = 0.2965)、または腫瘍サイズ(χ2 = 5.623, P = 0.0601)との間に有意な相関は認められなかった。一方で、miR-21-5pの高発現は、進行した腫瘍グレード(χ2 = 16.25, P = 0.00006)、リンパ節転移陽性(χ2 = 12.17, P = 0.00049)、およびより高いTステージ(χ2 = 4.30, P = 0.117)と有意に関連しており、miR-21-5pがNSCLCの進行を促進する腫瘍形成能を有することが示唆された(表1)。
NSCLCの独立した予後因子のための多変数Cox比例ハザード回帰分析
年齢、性別、組織型、miR-21-5p発現、およびリンパ節転移を組み込んだ多変数Cox回帰分析により、miR-21-5pの高発現(ハザード比 [HR] = 3.066; 95%信頼区間 [CI]: 1.412–6.659; P = 0.005)およびリンパ節転移陽性(HR = 22.295; 95% CI: 3.039–163.588; P = 0.002)が、NSCLC患者の全生存期間の不良に関する独立した不利な予後リスク因子であることが明らかになった一方で、患者の年齢、性別、および組織学的サブタイプは、有意な独立した予後影響を及ぼさなかった(すべて P > 0.05)(表2)。
miR-21-5pの臨床的発現特性およびその相関関係 CADM1 および炎症性因子
ペアを成す非小細胞肺癌(NSCLC)腫瘍組織および隣接正常組織のqRT-PCR検出により、正常対照群と比較して癌組織においてmiR-21-5pの相対レベルが有意に上昇していることが示された(図1A, P < 0.001)。カプラン・マイヤー生存曲線により、miR-21-5pの高発現患者は、miR-21-5pの低発現患者よりも全生存期間が有意に短いことが示された(図1B, P = 0.0027)。炎症性メディエーターであるC-反応性蛋白 (CRP)、腫瘍壊死因子アルファ (TNF-α)、およびインターロイキン-6 (IL-6) のmRNA発現量は、NSCLC検体においてすべて著しく上昇していた(図1C, P < 0.01, P値 < 0.001)。ピアソン相関分析により、miR-21-5pとの間には極めて有意な負の相関があることが明らかになった。 CADM1 臨床検体におけるmRNA発現 (r = -0.7773, 95% CI: -0.8325 ~ -0.7076, P < 0.0001, 図1D).
NSCLC細胞におけるmiR-21-5pの細胞機能検証
qRT-PCRにより、A549細胞およびH1299細胞におけるmiR-21-5p mimicの導入効率が良好であることが確認された(図2A)。Transwellアッセイの結果、miR-21-5pの過剰発現により、両細胞株において相対的な遊走能および細胞遊走数が有意に増加した(図2B,C)。炎症性サイトカインのqRT-PCR検出では、miR-21-5p mimicの導入後に CRP、TNF-α、およびIL-6のmRNAレベルが著しく上昇したが、miR-21-5p inhibitorによる処理はこの上昇を抑制した(図2D)。レスキュー実験により、miR-21-5p mimicがCADM1の転写を劇的に抑制すること、およびLV-CADM1の共導入によってA549細胞およびH1299細胞におけるCADM1 mRNAの発現が完全に回復することが検証された(図2E,F)。以上の細胞データから、miR-21-5pはCADM1を抑制することで、NSCLC細胞の遊走および炎症反応を促進することが示された。
miR-21-5pがNSCLC細胞の増殖に及ぼす影響
24 h、48 h、および72 hにおけるCCK-8増殖曲線において、miR-21-5p mimicの導入はA549およびH1299細胞の両方で450 nmにおけるOD値を著しく上昇させた一方で、miR-21-5p inhibitorは細胞生存能を有意に抑制し、72 hにおいて統計的に有意な差が認められた(Figure 3A,B; P < 0.001)。これらのデータは、miR-21-5pがNSCLC細胞に対して増殖促進効果を及ぼすことを示している。
バイオインフォマティクス予測およびデュアルルシフェラーゼレポーターアッセイによるmiR-21-5pの直接的な標的としてのCADM1の検証
3つのオンラインmiRNA標的予測データベース(miRWalk、StarBase、TargetScan)を掛け合わせてmiR-21-5pの下流候補遺伝子をスクリーニングし、95個の重複する標的遺伝子を得た(Figure 4A)。遺伝子オントロジー(GO)濃縮解析により、これらの候補遺伝子は主に細胞代謝、ストレス応答、および転写調節に関連する生物学的プロセス、細胞成分、および分子機能に濃縮されていることが示された(Figure 4B)。京都遺伝子・ゲノム百科事典(KEGG)パスウェイ濃縮解析では、ミトゲン活性化プロテインキナーゼ(MAPK)およびRasパスウェイを含む腫瘍関連のシグナル伝達カスケードに顕著な濃縮があることがさらに明らかになった(Figure 4C)。デュアルルシフェラーゼレポーターアッセイの結果、miR-21-5p mimicは野生型CADM1 3'-UTRレポーターの相対的ルシフェラーゼ活性を有意に抑制したが、変異型CADM1 3'-UTR群では抑制効果は見られず(Figure 4D, P < 0.01, ns: 有意差なし)、miR-21-5pとCADM1が直接結合することが確認された。
レスキュー実験におけるCADM1抑制によるNSCLC悪性表現型の促進
qRT-PCRにより、A549細胞およびH1299細胞におけるmiR-21-5pミミックおよびインヒビターの導入効率を確認した(Figure 5A)。CADM1の過剰発現(LV-CADM1)は、炎症性因子CRP、TNF-α、およびIL-6のmRNAレベルを低下させた一方、小干渉RNAを用いたCADM1のノックダウン(si-CADM1)は、これらの発現を著しく上昇させた(Figure 5B)。トランスウェル遊走能試験の結果、LV-CADM1の導入は、両方のNSCLC細胞株の遊走能を有意に抑制した(Figure 5C,D)。CCK-8増殖能検出により、LV-21による増殖促進効果はLV-CADM1の共導入によって完全に相殺され、si-CADM1によって誘発された細胞増殖の加速はmiR-21-5pインヒビターによってレスキューされることがさらに示された(Figure 5E,F)。以上のレスキューデータにより、CADM1がNSCLCにおけるmiR-21-5p誘発性の増殖、遊走、および炎症活性化を担う機能的な下流メディエーターとして作用することが検証された。
データの利用可能性:
本研究の結果を裏付けるソースデータはSupplemental File 2に提供されており、出版された論文と共に利用可能です。
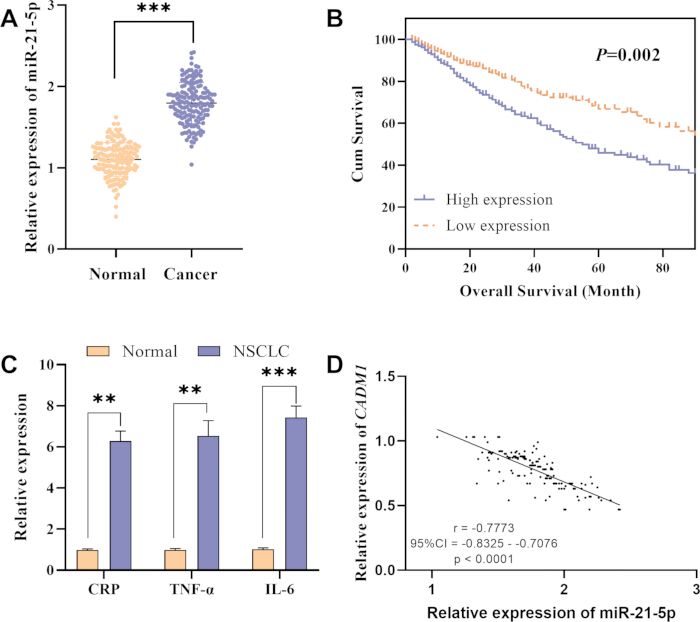
図1miR-21-5pおよび炎症因子の発現プロファイルと、それらの相関について CADM1 臨床的な非小細胞肺がん(NSCLC)検体における。 (A) 正常肺組織および非小細胞肺癌(NSCLC)腫瘍組織におけるmiR-21-5pの相対的発現量。 (B) miR-21-5pの発現レベルで層別化した非小細胞肺癌(NSCLC)患者のカプラン・マイヤー全生存期間曲線(C) 炎症因子の相対的mRNA発現量 C反応性蛋白(CRP), TNF-α、および IL-6 正常組織および非小細胞肺癌(NSCLC)組織において。D) miR-21-5pと[対象物]との間の負の線形相関を示すピアソン相関散布図 CADM1 mRNA発現。**P < 0.01, ***P < 0.001. パネル用 CCRP、TNF-α、およびIL-6について、それぞれ対になる腫瘍組織と隣接する正常組織の間で統計的比較を行った。P < 0.01, ***P < p < 0.001は、対応する正常肺組織に対する有意差を示す。すべてのパネルには3つ以上の独立した生物学的レプリケートが含まれている。qRT-PCRデータは平均値 ± 標準偏差で示している。ペアで t群間比較にはt検定を用い、散布図による相関分析にはピアソン検定を用いた。略語: CADM1 CAM = 細胞接着分子1; CI = 信頼区間; CRP = C反応性蛋白; IL-6 = インターロイキン-6; NSCLC = 非小細胞肺がん; TNF-α = 腫瘍壊死因子アルファ この図の拡大表示をご覧になるには、ここをクリックしてください。
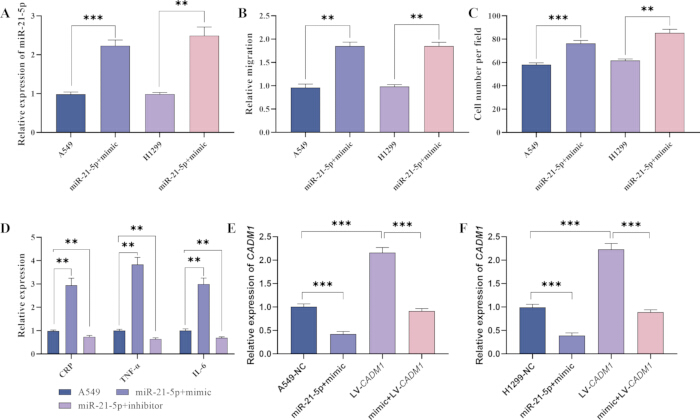
図2細胞表現型および CADM1 A549およびH1299非小細胞肺がん細胞におけるmiR-21-5pにより調節される発現。 (A) ミミック導入後のmiR-21-5p発現のqRT-PCR検出 (B) Transwellアッセイによる細胞相対遊走能の統計的定量化。 (C) 顕微鏡視野あたりの遊走細胞数の定量。 (D) の相対的mRNA発現量 C反応性蛋白, TNF-α、および IL-6 miR-21-5pの過剰発現または抑制下において。E相対的 CADM1 A549レスキュー群(NC、miR-21-5p mimic、LV-)におけるmRNA発現CADM1, mimic+LV-CADM1). (F相対的 CADM1 H1299レスキュー群におけるmRNA発現。**P < 0.01, ***P < 0.001。すべての細胞アッセイは、3つの独立した生物学的反復(それぞれ3つの技術的反復を含む)で行った。エラーバーは平均値 ± 標準偏差(SD)を示す。群間比較には、Bonferroni補正を用いた一元配置分散分析(one-way ANOVA)を採用した。群ラベルは、「方法」に記載されているトランスフェクション群と厳密に一致させている。略語: CADM1 CAM = 細胞接着分子1; CRP = C反応性蛋白; IL-6 = インターロイキン-6; LV = レンチウイルスベクター; NC = 陰性対照; NSCLC = 非小細胞肺癌; qRT-PCR = 定量逆転写PCR; TNF-α = 腫瘍壊死因子α こちらの図の拡大版を表示するには、ここをクリックしてください。
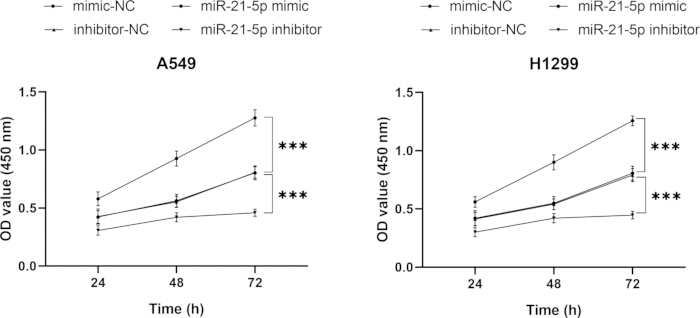
図3miR-21-5pの過剰発現またはノックダウン後の細胞生存率を示すCCK-8増殖曲線。 (A) mimic-NC、miR-21-5p mimic、inhibitor-NC、またはmiR-21-5p inhibitorをトランスフェクションしたA549細胞における、時間依存的なOD₄₅₀吸光度曲線。 (B) 4つのトランスフェクション群におけるH1299細胞のOD₄₅₀吸光度の時間依存的曲線。***P < 0.001. CCK-8アッセイでは、3回の生物学的反復において、1グループあたり6つのテクニカルレプリケートを用いました。データは平均値 ± 標準偏差(SD)で示しています。時点間の比較には、反復測定分散分析(repeated-measures ANOVA)を使用しました。略語:CCK-8 = Cell Counting Kit-8、NC = 陰性対照、OD = 光学的密度。 この図の拡大版を表示するには、ここをクリックしてください。
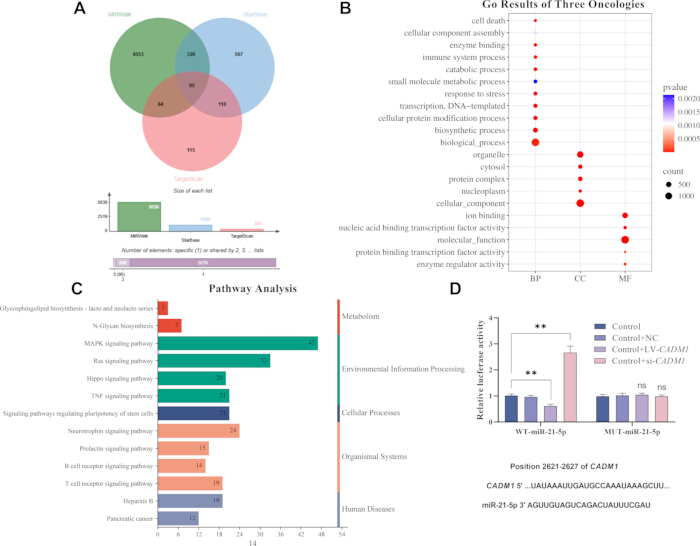
図 4: miR-21-5p標的遺伝子 CADM1に関するバイオインフォマティクススクリーニングおよびデュアルルシフェラーゼアッセイ。 (A) miRWalk、StarBase、TargetScanの予測データベースによって特定されたmiR-21-5pの共通標的遺伝子を示すベン図。 (B) 交差した標的遺伝子のGO機能濃縮解析のバブルプロット。 (C) 上位に濃縮されたKEGGシグナリングパスウェイの棒グラフ。 (D) miR-21-5p過剰発現後の野生型および変異型CADM1 3'-UTRのデュアルルシフェラーゼレポーター活性。 **P < 0.01; ns: 有意差なし。パネル D では、デュアルルシフェラーゼ検出のためにmiR-21-5p mimic/mimic-NCを共導入したWT-CADM1 3'-UTRおよびMUT-CADM1 3'-UTRのみを採用しています。元のプロット案に示されていたControl/overexpression/interferenceのラベルは、最終的な図では標準的なWT/MUTグループに調整されました。標的予測解析には3つのオンラインデータベースを使用し、濃縮P値はBenjamini-Hochberg FDR補正により調整されました。デュアルルシフェラーゼ実験は3つの生物学的反復(それぞれ3つのテクニカル反復)で行われました。エラーバーは平均値 ± SDを表し、統計的比較には2群t-検定を用いました。略語: CADM1 = cell adhesion molecule 1; GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes; MUT = 変異型; NC = ネガティブコントロール; ns = 有意差なし; UTR = 非翻訳領域; WT = 野生型。 こちらのリンクをクリックして、この図の拡大版を表示してください。
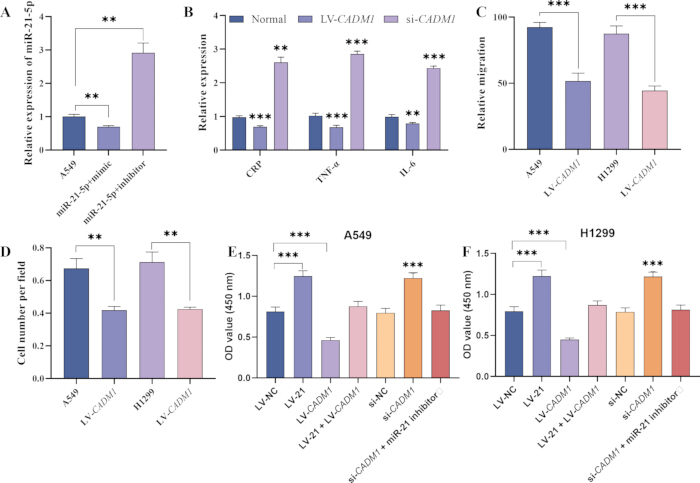
図 5: A549細胞およびH1299細胞におけるmiR-21-5p/CADM1調節軸を検証する機能回復実験。 (A) mimicまたはinhibitor導入後のmiR-21-5pの相対発現量。 (B) LV-CADM1群およびsi-CADM1群におけるCRP、TNF-α、およびIL-6の相対的なmRNA発現量。 (C) CADM1過剰発現下における相対的遊走能の統計的定量化。 (D) LV-CADM1群における顕微鏡視野あたりの遊走細胞数の定量化。 (E) A549回復群(LV-NC、LV-21、LV-CADM1、LV-21+LV-CADM1、si-NC、si-CADM1、si-CADM1+miR-21 inhibitor)のCCK-8 OD₄₅₀値。 (F) 同様の導入処理を行ったH1299回復群のCCK-8 OD₄₅₀値。 **P < 0.01, ***P < 0.001。 すべての回復アッセイは3回の独立した生物学的反復行い、エラーバーは平均 ± SDを示し、多群比較にはBonferroni事後検定を用いた一元配置分散分析(one-way ANOVA)を使用した。 略称: CADM1 = cell adhesion molecule 1; CRP = C-reactive protein; IL-6 = インターロイキン-6; LV = レンチウイルスベクター; NC = ネガティブコントロール; OD = 光学的密度; qRT-PCR = 定量的逆転写PCR; si = 小分子干渉RNA; TNF-α = 腫瘍壊死因子アルファ。 こちらをクリックして、この図の拡大版を表示してください。
| miR-21-5p 発現量 | 合計 | x2 | P値 | |||
| 低発現 | 高発現 | |||||
| 年齢 (歳) | ≤60 | 24 | 29 | 53 | 1.357 | 0.244 |
| ˃60 | 37 | 67 | 104 | |||
| 合計 | 61 | 96 | 157 | |||
| 性別 | 男性 | 42 | 73 | 115 | 1.06 | 0.3032 |
| 女性 | 19 | 23 | 42 | |||
| 合計 | 61 | 96 | 157 | |||
| 組織型 | 扁平上皮癌 | 31 | 41 | 72 | 1.09 | 0.2965 |
| 腺癌 | 30 | 55 | 85 | |||
| 合計 | 61 | 96 | 157 | |||
| 腫瘍グレード | Ⅰ-Ⅱ | 55 | 58 | 113 | 16.25 | 0.00006 |
| Ⅲ | 6 | 38 | 44 | |||
| 合計 | 61 | 96 | 157 | |||
| リンパ節転移 | 陰性 | 41 | 37 | 78 | 12.17 | 0.00049 |
| 陽性 | 20 | 59 | 79 | |||
| 合計 | 61 | 96 | 157 | |||
| 腫瘍径 (cm) | ≤3 | 20 | 23 | 43 | 5.623 | 0.0601 |
| 3-7 | 40 | 62 | 102 | |||
| ˃7 | 1 | 11 | 12 | |||
| 合計 | 61 | 96 | 157 | |||
| Tステージ | T1 | 15 | 17 | 32 | 4.295 | 0.117 |
| T2 | 36 | 52 | 88 | |||
| T3 | 10 | 27 | 37 | |||
| 合計 | 61 | 96 | 157 | |||
表 1:非小細胞肺癌患者におけるmiR-21-5p発現と臨床病理学的特徴との関連。数値は患者数を示す。関連性はχ2検定により評価した。略語:NSCLC = 非小細胞肺癌。各χ2検定はカテゴリー別の臨床病理学的変数に対して実施され、すべての解析において全157例の患者サンプルを用いた。
| n | P値 | 相対リスク | 95%信頼区間 | |||
| 下限 | 上限 | |||||
| 年齢 (years) | ≤60 | 53 | 0.503 | 1.282 | 0.62 | 2.652 |
| ˃60 | 104 | |||||
| 性別 | 男性 | 115 | 0.339 | 1.418 | 0.693 | 2.901 |
| 女性 | 42 | |||||
| 組織型 | 扁平上皮癌 | 72 | 0.515 | 1.261 | 0.627 | 2.537 |
| 腺癌 | 85 | |||||
| miR-21-5p 発現 | 高発現 | 96 | 0.005 | 3.066 | 1.412 | 6.659 |
| 低発現 | 61 | |||||
| リンパ節転移 | 陰性 | 78 | 0.002 | 22.295 | 3.039 | 163.588 |
| 陽性 | 79 | |||||
表2:非小細胞肺がん患者における全生存期間の多変数Cox比例ハザード解析。数値は95%信頼区間を伴うハザード比である。略語:CI = 信頼区間、NSCLC = 非小細胞肺がん。完全な臨床コホートデータを用いて多変数Cox回帰を行い、独立した予後スクリーニングのためにHRおよび95% CIを算出した。
補足ファイル 1:トランスフェクションおよび定量逆転写PCRに使用したオリゴヌクレオチドおよびプライマー配列。 このファイルには、miR-21-5p mimicおよびinhibitor、それぞれのネガティブコントロール、ならびにCADM1、GAPDH、hsa-miR-21-5p、およびcel-miR-39のプライマーが記載されています。すべての配列は5′–3′方向に示されています。略語:CADM1 = cell adhesion molecule 1;cel = Caenorhabditis elegans;GAPDH = glyceraldehyde-3-phosphate dehydrogenase;hsa = Homo sapiens;miR = microRNA;PCR = polymerase chain reaction。こちらをクリックしてファイルをダウンロードしてください。
補足ファイル2. 図表を裏付けるソースデータ。 このファイルには、臨床的特徴、発現解析、生存データ、および関連する統計結果など、原稿に提示された図表の作成に使用された基礎データセットおよび統計解析が含まれています。これらのソースデータは、本文で報告された知見を裏付けるものです。こちらのリンクをクリックしてファイルをダウンロードしてください。
ディスカッション
本研究では、NSCLCの臨床組織においてmiR-21-5pの発現が上昇していることを体系的に確認し、それが炎症因子の転写促進、ならびに細胞の遊走能および増殖能の向上と相関していることを明らかにしました。また、デュアルルシフェラーゼアッセイ、qRT-PCRおよびレスキュー実験により、CADM1がmiR-21-5pの直接的な機能的標的であることが特定されました。さらに、バイオインフォマティクスによる予測から、miR-21-5pの下流標的がMAPKおよびRasの癌遺伝子カスケードに集積していることが示され、miR-21-5p/CADM1軸が腫瘍の悪性進展に関連するシグナル伝達経路に関与している可能性という予備的な証拠が得られました。
臨床コホート解析により、miR-21-5pの高発現が、進行した腫瘍グレード、リンパ節転移、および全生存期間の短縮と密接に関連していることが明らかになりました。多変量Cox回帰分析により、miR-21-5pが独立した不良予後因子であることが確認され、miR-21-5pが非小細胞肺癌(NSCLC)患者の進行リスクおよび生存転帰を評価するための潜在的なバイオマーカーとして機能することが示唆されました。
in vitro 機能的アッセイにより、miR-21-5pの過剰発現がNSCLC細胞の増殖、遊走、および炎症反応を促進することが示された一方で、 CADM1 上方制御によりこれらの腫瘍形成能表現型はすべて消失しました。miR-21-5pと〜との間には負の発現相関が認められました。 CADM1 患者サンプルおよびレスキュー細胞のデータとともに、miR-21-5pが~を直接的に抑制することで非小細胞肺癌(NSCLC)の悪性挙動を促進するという調節メカニズムを完全に解明した。 CADM1.
肺癌におけるmiR-21-5pの腫瘍形成的な役割を報告した先行研究と一致して、本研究では、その腫瘍促進機能を確固たるものにするため、完全な臨床相関データおよび完全なレスキュー検証を追加して補完しています。単一の転移表現型のみに焦点を当てた既存の研究とは異なり、本研究では、CADM1ターゲットを介してmiR-21-5pを細胞増殖および腫瘍炎症微小環境に同時に結びつけ、NSCLCにおけるmiR-21-5pの調節ネットワークを拡張しています。
以上の予備的根拠に基づき、組織におけるmiR-21-5p発現の検出は、NSCLCのリスク層別化および予後評価において補助的な価値を持つ可能性があり、miR-21-5p/CADM1軸は、NSCLCの進行抑制介入戦略を開発するための新たな候補分子標的となる可能性があるが、その臨床的治療 efficacy については依然として検証が必要である。
本研究にはいくつかの限界がある。まず、in vitro細胞アッセイおよび単一のレトロスペクティブな臨床コホートを用いており、in vivoゼノグラフトや独立した外部コホートによる検証が行われていない。また、さらなる増殖アッセイ(例:EdUおよびコロニー形成アッセイ)、浸潤、アポトーシス、および細胞周期アッセイは実施されなかった。低侵襲的な診断能を評価するための末梢血検査、CADM1のタンパク質レベルでの検証、完全な重複ターゲット遺伝子リスト、および系統的なタンパク質相互作用(PPI)ネットワーク解析も得られていない。今後の研究では、これらの限界に対処し、miR-21-5pの上流レギュレーターおよび下流のCADM1シグナリングをさらに検証する必要がある。
総合的に、本研究はmiR-21-5pがCADM1を直接標的にすることで、非小細胞肺癌(NSCLC)の増殖、遊走、および炎症を促進するオンコジェニックなマイクロRNAとして機能すること、ならびにその高発現が患者の生存率の低下を予測することを予備的に示しています。
開示事項
著者らに開示すべき関連する金銭的または非金銭的な利益相反はありません。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 10% 中性緩衝ホルマリン | Fisher Scientific (Fisherbrand)™) | SF100-4(標準) | 組織固定液。組織を〜に切片化する。 &厚さ5 mm未満、室温で14〜26時間固定 |
| 24ウェル細胞培養プレート | Corning | 3526 | トランスフェクションした細胞の播種および創傷治癒(スクラッチ)アッセイに用いるプレート |
| A549細胞株 | ATCC(または上海リソースセンター) | CCL-185 | ヒト非小細胞肺がん(NSCLC)細胞株(腺がん) |
| CCK-8アッセイキット | 同仁化学研究所 | CK04 | 増殖検出 |
| 細胞培養培地(未指定) | Gibco (Thermo Fisher Scientific) | 各種(例:RPMI-1640:11875093、F-12K:21127022) | NSCLC細胞株用基礎培地。正確な組成は使用する細胞株によって異なる。 |
| cel-miR-39(外来性スパイクインコントロール) | GenePharma(中国、上海) | カスタム(例:B010302) | RNA抽出時に添加するmiRNA発現標準化のための外部参照物質 |
| CO2 インキュベーター(加湿器付き) | Thermo Fisher Scientific (Heracell) | Heracell 150i (50116047) | 提供します 37°C, 5% CO22、および細胞培養用の飽和湿度 |
| CRP/TNF-αα/IL-6 プライマーペア | Sangon Biotech | カスタム合成 | 完全配列は補足ファイル1に記載 |
| クリスタルバイオレット染色液 | Solarbio | G1062 | 遊走細胞の染色 |
| DMEM培地 | Gibco | 11965092 | H1299/293T培養用 |
| デュアルルシフェラーゼレポーターアッセイキット | Promega | E1910 | WT/MUT CADM1 3'UTR検出 |
| 外来性cel-miR-39 | Qiagen | カスタムスパイクイン | 正規化のためにRNA抽出後に追加した |
| ウシ胎児血清(FBS) | Gibco (Thermo Fisher Scientific) | 10437028 | 細胞増殖をサポートするため、最終濃度10%で培地に添加されるサプリメント |
| 微細ピペットチップ(例: 10 µL ヒント) | Axygen (Corning) | T-300 | 単層細胞を物理的に掻き取り、〜を作成するために使用する "創傷" ギャップ |
| GAPDH(内在性コントロール) | 複数のベンダー(例:Sangon Biotech、RiboBio、カスタムプライマー) | カスタム | qRT-PCRに使用されるmRNA標準化用参照遺伝子 |
| GO/KEGG(clusterProfilerアノテーション) | Bioconductor | 2026年版 | |
| GraphPad Prism | GraphPadソフトウェア | v9.5.1 | プロット作成 & in vitro統計学 |
| H1299細胞株 | ATCC(または上海リソースセンター) | CRL-5803 | リンパ節転移由来のヒト非小細胞肺がん(NSCLC)細胞株 |
| 熱不活化FBS | Gibco | 10099141 | 10% 最終濃度 |
| HEK-293T細胞株 | ATCC | CRL-3216 | RRID:CVCL_0063。STR解析を月次で実施し、マイコプラズマ検出は陰性。 |
| レンチウイルスパッケージングミックス | Genecopoeia (またはタカラバイオ) | HPK-LvT-100 (Genecopoeia) | レンチウイルス作製用のパッケージングプラスミド(gag/pol、rev、vsv-g)を提供します。 |
| レンチウイルス-21ベクター (LV-21) | GeneChem (中国、上海) または Genecopoeia | カスタム | 安定発現細胞株作製のためのmiR-21-5p含有レンチウイルスベクター |
| レンチウイルス陰性対照ベクター (LV-NC) | GeneChem (中国、上海) または Genecopoeia | カスタム | miR-21-5pインサートを含まない陰性コントロールレンチウイルスベクター |
| 脂質トランスフェクション試薬 | Thermo Fisher | L3000015 | 一過性トランスフェクション用 |
| Lipofectamine 3000 トランスフェクション試薬 | Invitrogen (Thermo Fisher Scientific) | L3000015 または L3000008 | 脂質ベースのトランスフェクション試薬。後続の実験はトランスフェクションから50時間後に実施。 |
| メタノール | Sinopharm | 67-56-1 | 細胞固定 |
| メタノール(固定液/染色希釈液) | Sigma-Aldrich | 34860 | クリスタルバイオレット染色の固定液または希釈液として使用 |
| miR-21-5p 抑制剤/抑制剤ネガティブコントロール | GenePharma | カスタム合成 | 補足ファイル1の配列 |
| miR-21-5p mimic/mimic-NC | GenePharma | カスタム合成 | 補足ファイル1の配列 |
| miRDB | ワシントン大学 | v6.0 | |
| miRWalk | ハイデルベルク大学 | v3.0 | |
| 国立生検工学センター | 国家生検エンジニアリングセンター(中国) | 翻訳するソーステキストが提供されていません。翻訳対象となるテキストをご入力ください。 | 臨床データおよび組織病理学的診断が記録された肺がん組織検体の機関提供者 |
| NSCLC組織(初代培養用) | Shanghai Rui Bao He Biotechnology Co. | カスタムオーダー | 組織源;10% FBS培地にて、以下で培養 37°C対数増殖期にあり、形態的に良好な細胞をトランスフェクション用に選択する |
| PCR装置 | Applied Biosystems (Thermo Fisher Scientific) | 7500 Fast (4406984) | qRT-PCR用増幅産物の取得 |
| ペニシリン・ストレプトマイシン | Solarbio | P1400 | 100 U/mL ペニシリン、 100 μg/mL ストレプトマイシン |
| ピペット(シングルチャンネル) & マルチチャネル) | Eppendorf | Research Plus シリーズ | すべての実験における精密な液体ハンドリングのために |
| ポリブレン | Sigma-Aldrich | H9268 | 最終 5 μg/mL レンチウイルス感染用 |
| ピューロマイシン | InvivoGen | アリの行動の記録と分析 | 5 μg/mL 安定細胞スクリーニング用 |
| ピューロマイシン二塩酸塩 | Thermo Fisher Scientific (InvivoGen) | ant-pr-1 (InvivoGen); P7255 (Sigma-Aldrich) | 選択抗生物質、使用濃度 5 μg/mL 安定的にトランスフェクトされた細胞株の樹立 |
| R | R Foundation | v4.2.1 | パッケージ:clusterProfiler, ggplot2 |
| 逆転写キット | タカラバイオ | RR047 | miRNA用ステムループRT、mRNA用oligo(dT) |
| RNaseフリーEPチューブ | Axygen (Corning) | MCT-150-C | RNAの保存および処理用1.5 mL RNaseフリーチューブ |
| RPMI-1640培地 | Gibco | 11875093 | A549培養用 |
| si-CADM1 | GenePharma | カスタム合成 | 補足ファイル1の配列 |
| si-NC | GenePharma | カスタム合成 | 補足ファイル1の配列 |
| SPSS | IBM | v26.0 | 臨床的/Cox回帰分析 |
| SYBR Green qPCRマスターミックス | Roche | 4913914001 | qRT-PCR増幅 |
| TargetScan | マサチューセッツ工科大学 | v8.2 | |
| 全RNA抽出試薬 | タカラバイオ | 9109 | フェノール/グアニジンを用いたライシス |
| トランスウェルチャンバー | Corning (Costar) | 3422 (24ウェル、 8.0 µm) | 室温の培地中での細胞トランスフェクション用。化学プライマーを添加し、48時間インキュベートした。 |
| Transwell移行チャンバー | Corning | 3422 | 8 μm 細孔径 |
| TRIzol試薬 | Invitrogen (Thermo Fisher Scientific) | 15596026 | 組織サンプルからの全RNA抽出;OD260/280およびOD260/230比によるRNA品質評価 |
| トリプシン-EDTA (0.25%) | Gibco (Thermo Fisher Scientific) | 25200072 | 24ウェルプレートに播種する前に、培養容器から細胞を剥離させるため |
参考文献
- Bautista-Sánchez D, et al. The promising role of miR-21 as a cancer biomarker and its importance in RNA-based therapeutics. Mol Ther Nucleic Acids. 2020;20:409-20.
- Zhou J, et al. Global burden of lung cancer in 2022 and projections to 2050: incidence and mortality estimates from GLOBOCAN. Cancer Epidemiol. 2024;93:102693.
- Nicholson AG, et al. The 2021 WHO classification of lung tumors: impact of advances since 2015. J Thorac Oncol. 2022;17(3):362-87.
- The Lancet Regional Health – Europe. NSCLC: bridging the gap between clinical progress and real-world application. Lancet Reg Health Eur. 2024;38:100878.
- Reyes J, et al. Oncogenic and tumor-suppressive forces converge on a progenitor niche at the benign-to-malignant transition. Cell. 2026;189(10):2875-97.e53.
- Yu L, Yang R, Long Z, Tao Q, Liu B. Targeted therapy of non-small cell lung cancer: mechanisms and clinical trials. Front Oncol. 2024;14:1451230.
- O'Brien J, Hayder H, Zayed Y, Peng C. Overview of microRNA biogenesis, mechanisms of actions, and circulation. Front Endocrinol (Lausanne). 2018;9:402.
- Treiber T, Treiber N, Meister G. Regulation of microRNA biogenesis and its crosstalk with other cellular pathways. Nat Rev Mol Cell Biol. 2019;20(1):5-20.
- Ohno S, Kuroda M. Exosome-mediated targeted delivery of miRNAs. Methods Mol Biol. 2016;1448:261-70.
- Ell B, Kang Y. MicroRNAs as regulators of bone homeostasis and bone metastasis. Bonekey Rep. 2014;3:549.
- Dedeoğlu BG. High-throughput approaches for microRNA expression analysis. Methods Mol Biol. 2014;1107:91-103.
- Qu K, et al. Circulating miRNA-21-5p as a diagnostic biomarker for pancreatic cancer: evidence from comprehensive miRNA expression profiling analysis and clinical validation. Sci Rep. 2017;7(1):1692.
- Xu H, et al. Engineered exosomes transporting the lncRNA, SVIL-AS1, inhibit the progression of lung cancer via targeting miR-21-5p. Am J Cancer Res. 2024;14(7):3335-47.
- Chawra HS, et al. MicroRNA-21's role in PTEN suppression and PI3K/AKT activation: implications for cancer biology. Pathol Res Pract. 2024;254:155091.
- Huang Y, Feng G. MiR-423-5p aggravates lung adenocarcinoma via targeting CADM1. Thorac Cancer. 2021;12(2):210-7.
- Hartsough EJ, et al. CADM1 is a TWIST1-regulated suppressor of invasion and survival. Cell Death Dis. 2019;10(4):281.
- Li H, Gao J, Zhang S. Functional and clinical characteristics of cell adhesion molecule CADM1 in cancer. Front Cell Dev Biol. 2021;9:714298.