공동 정화 nucleases와 프로 테아제에 의해 전통적인 방법으로 정화 진핵세포 리보솜의 준비 오염 부정 스트림 생화학 및 구조 분석에 영향을 미칩니다. 신속하고 간단한 색층 정화 방법은 모델 시스템으로 효모 변이를 사용하여이 문제를 해결하는 데 사용됩니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
이 논문에서
요약
초록
진핵세포 리보솜 따라서 연구자에게 상당한 도전을 초래할 훨씬 더 불안 정한 자신의 eubacterial 및 archael 대응에 비해 같습니다. 특히 성가신 세포의 용해는 프로 테아제와 리보솜을 저하시킬 수 nucleases 다수 출시는 사실입니다. 따라서, 가능한 빨리 이러한 효소의 변이를 분리하는 것이 중요합니다. 불행하게도, 기존의 차동 ultracentrifugation 방법은 그들의 구조적 무결성과 기능에 영향을 미치는 시간의 unacceptably 오랜 기간 동안 이러한 효소에 노출 변이를 떠납니다. 이 문제를 해결하기 위해, 우리는 Sulfolink 수지 부과 시스테인을 사용하여 색층 방법을 활용합니다. 이 간단하고 빠른 응용 프로그램이 크게 손상, 높은 화학적 활성 효모 변이의 높은 수율을 생산 공동 정화 proteolytic와 nucleolytic 활동을 줄여줍니다. 우리는이 방법은 또한 포유류의 변이에 적용되어야하는 것이 좋습니다. 의 단순화방법, 그리고 chromatographically 정화 ribosome의 향상된 순도와 활동은 진핵세포 리보솜의 연구를위한 중요한 기술적 진보를 나타냅니다.
프로토콜
1. 시스테인의 준비 Sulfolink 수지 부과
- 상온에서 Sulfolink 수지 (피어스)를 준비합니다.
- 각 유리병에 배포 5 ML과 같은 2 인용 10 ML 플라스틱 튜브의 제조 업체에서 제공하는 Sulfolink 커플링 젤의 50 % 슬러리 10 ML 총 놓으십시오.
- 간단히 850 XG에 튜브를 원심 조심스럽게 supernatants를 제거합니다.
- 5 ML에 비즈를 resuspending XG 850에서 간략하게 centrifuging 및 피펫으로 뜨는을 제거하여 (50 MM 트리스, 산도 8.5, 5 밀리미터 EDTA (에틸렌 다이아 민 테트라 초산)) 커플링 버퍼에 젤 세 번 씻으십시오.
- 각각의 튜브에 연결 버퍼에 L - 시스테인의 50 MM 솔루션 다섯 ML 추가 및 25에서 1 시간 동안 슬러리를 혼합 ° C.
- 위의 단계 1.4에서 설명한대로 세탁에 의해 L - 시스테인 잔류를 제거합니다.
- 바인딩 버퍼 10 ML에서 젤 Resuspend [20 MM의 HEPES, pH를 7.6, 5 MM MG (OAc) 2, 60 MM NH 4 망할 CIA 2 MM DTT], 그리고 바인딩 버퍼 10 ML에서 세탁하여 수지를 평형3 번 단계는 1.4에서 설명했다. 10 ML의 원심 분리기 열, 모자 및 4에 저장된 ° C.에 가만히 따르다 수지 RNA 바인딩에 대한 수지 용량 ~ 20 ML 당 260 단위이다.
2. 시스테인을 사용하여 리보솜의 색층 정화는 Sulfolink 수지 부과
참고 : 단백 분해 효소의 활동이 문제가 될 증명 변형율과 함께 일하고있다면, 프로 테아제 억제 칵테일은 이후의 모든 버퍼에서 사용할 수 있습니다.
- 얼음에 모든 구성 요소를 유지하고 RNase없는 물을 살균 여과를 사용하는 모든 솔루션을 준비합니다.
- 적절한 미디어 - 중반 로그 단계 (1.2 OD 595 = 0.6)에 숙박 효모 세포를 성장. 펠렛의 원심 분리에 의해 세포, 그리고 4 5 분 3,700 XG에 구속력이 버퍼와 원심 분리기에 1g의 세포를 씻어 ° C.
- 바인딩 버퍼 1 ML 2 ML의 대략적인 총 볼륨에, 그리고 4 차게 0.5 mm 유리 구슬 같은 볼륨을 사용하여 방해 Resuspend 전지 ° C UBiospec 미니 구슬 때리는 (Bartlesville, OK)을 노래. 필요에 따라 샘플은 여러 튜브로 분할 수 있습니다.
- 베크 만 - 보습 바로 앞에 달린 풀베는 날 Optima 최대 전자 초원 심 분리기 (풀러턴, CA)에서 30 분 동안 30,000 XG에서 원심 분리에 의해 손상되지 않은 세포 organelles와 세포 파편을 제거합니다.
- 즉시 사용하기 전에, 펠렛 1,000 1 분에 대한 수지의 스토리지 솔루션을 제거하는 XG. 수지의 두 ML은 세포의 모든 일g에 사용됩니다.
- 직접 청구 Sulfolink 슬러리에 맨이나 세포 파편 튜브의 아래쪽에있는 지질 분획 중의 오염, 그리고 장소를 최소화하기 위해 간병, 30,000 XG 회전 (S30)에서 세포 lysate의 supernatants를 제거합니다. 지질 층은 중 제거 또는 팁이 뜨는 넘어들어왔잖소 후 pipet에서 밖으로 밀어내는 의해 피할 수 있습니다.
- 15 분 동안 혼합하지 않고 얼음 S30/Sulfolink 혼합물을 품어.
- 15 ML 원뿔 튜브에 열을 놓고 1,000 XG에 원심 분리기R 만요.
- 열, 손으로 믹스, 얼음에 추가 15 분 동안 품어로 다시 flowthrough의 분수를 놓습니다.
- 15 ML 원뿔 튜브에 열을 놓고 일분 1,000 XG에 원심 분리기. flowthrough 폐기하십시오.
- 캡 열에하고 구속력이 버퍼의 5 ML를 추가합니다. resuspended, 뚜껑을 제거하고, 일분 1,000 XG에서 열 원심을 원심 분리기 때까지 손으로 컬럼을 섞는다. 이 세척 프로토콜을 두 번 더 반복합니다.
- 각 컬럼에 대한 용출 버퍼의 1.5 ML (20 MM HEPES - 코이, 산도 7.6, 10 MM MG (OAc) 2, 500 MM KCl, 2mM DTT, 0.5 MG / ML 헤파린)를 추가합니다. 손으로 slurries를 섞어, 2 분 동안 얼음에 품어
- 일분 1,000 XG에 새로 15 ML 원뿔 튜브와 원심 분리기로 장소 열. eluate를 수집합니다. 한 번 더 그래서 최종 결합된 샘플 볼륨 ~ 3 ML되는 용출 단계를 반복합니다. 사용 수지는 헤파린없이 용출 버퍼로 세탁하고 구속력이 buffe와 평균 이어 수R, 다시 사용하기 위해 4 구속력이 버퍼의 10 ML 권 ° C에 저장됩니다.
3. Puromycin 처리
참고 : tRNA의 종 오염 제거하는 다른 방법은 ribosome 결선을 촉진하기 위해 포도당 고갈 미디어에 풍부한 포도당에서 전환하는 것입니다. 그러나 이것은 ribosome 기능과 농도에 영향을 미칠 수있는 효모 세포의 대사 상태를 변경 않습니다.
내생 peptidyl - tRNA, puromycin이 수행되는있는 치료에서 변이를 스트립하기 위해서.
- 상온에서 1M 코이 dropwise을 추가하여 pH를 7.5 100 MM의 puromycin 솔루션으로 중화.
- eluate에 ~ 1mM 최종 농도 무력화 puromycin 솔루션을 추가합니다.
- 1 ㎜의 최종 농도 100 MM GTP를 추가합니다.
- 30 30 분 품어 ° C.
4. 글리세롤의 쿠션을 통해 침강에 의해 리보솜의 정화
- 놓으 ML4 ML 볼륨 폴리 카보 네이트 초원 심 분리기 튜브에 쿠션 버퍼 (20 MM의 HEPES, pH를 7.6, 10 MM MG (OAc) 2, 500 MM KCl, 2 MM DTT, 25 % 글리세롤)의.
- 부드럽게 계층 puromycin은 4 하룻밤 XG 쿠션 위에 용출 분수, 그리고 원심 분리기 샘플 100,000 ° C. 치료
- 원심 회전 날개에서 튜브를 제거하고, supernatants을 기음.
- 쿠션 버퍼 1 ML로 두 번 정화 변이를 포함하는 알약을 씻으십시오.
- 유리 막대를 사용하여 부드러운 마비로 쿠션 버퍼의 100 μl의 변이를 Resuspend.
- 중단 후 parafilm와 튜브를 커버 한 시간 동안 감기에 방 와동에서 중간 속도로 흔들.
- microcentrifuge 튜브, 4 최대 속도로 5 분간 원심 ° C로 내용을 전송 신선한 튜브에 supernatants를 제거합니다.
- 단계를 반복 4.1-4.7 스토리지 버퍼의 100 μl (50 MM HEPES - 코이 산도 7.6, 50 MM NH 4 망할 CIA, 5 밀리미터 MG를 제외하고이 쿠션 버퍼의 ML하고,를 사용하여(OAc) 2, 1 ㎜ DTT, 25 % 글리세롤)이 대신 쿠션 버퍼의 단계 4.4 및 4.5에서 사용됩니다.
- 계량 정화 리보솜 spectrophotometrically (1 260 = 20 효모 변이의 pmoles) 및 -80 ° C.에 저장 효모의 1g의 전형적인 결과는 리보솜의 300-400 pmoles 있습니다.
5. 대표 결과 :
프로토콜의 3 대 각 단계에서 추출한 RNA 종의 예제는 그림 2에 표시됩니다. rRNAs가 있지만 주요 종 총 세포 lysates에있는 (T)이 다른 RNA 종의 다수도 포함되어 있습니다. Sulfolink 칼럼 (SL)에서 정화 리보솜은 또한뿐만 아니라이 종족에 대한 열 침대의 높은 친화력으로 인해 tRNAs 많은 양의가 포함되어 있습니다. peptidyl - tRNAs에서 펩티드의 가수 분해에 puromycin 결과와 함께이 분수 치료하고 리보솜에서 이러한 수종의 분리를 추진하고 있습니다. puromycin이 대접 샘플 (PM) 부족으로 공동 purifyin따라서 g tRNA의 종, 그리고 완전히 순수한 변이를 나타냅니다. 이전 8보고로서, 이러한 변이들을 상세 기능 및 구조 분석에 이상적인 기판을 만드는 고도의 손상과 화학적으로 활성화됩니다.
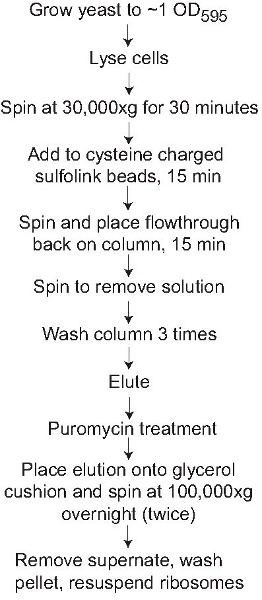
그림 1. 방법 흐름도가. sulfolink 수지 링크된 시스테인을 사용하여 리보솜의 색층 정화가 그려져 있습니다.
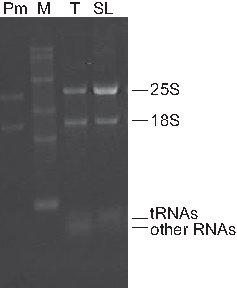
그림 2. ribosome 준비 대표 분석. 총 RNA의 종류는 이후에 puromycin 대우 총 세포 lysates (T), Sulfolink 정화의 리보솜 (SL)와 Sulfolink 정화가 리보솜에서 추출한과 글리세롤 쿠션 (PM)를 통해 sedimented되었습니다. 레인 M은 RNA 크기 마커를 나타냅니다. 초와 18S rRNAs뿐만 아니라 tRNAs와 다른 RNA 수종을 나타내는 밴드가 표시됩니다. 모든차선은 RNA 2 μg 탑재했다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
Ribosome 정화 프로토콜은 기본적으로 저속 회전에서 cytosolic 분수를 수확, lysing 세포를 포함하고 고속 원심 분리 1 변이를 pelleting. 몇 가지 새로운 방법이 박테리아 리보솜을 정화에 사용되고있는 반면, 동일 eukaryotes 2-4 사실이 아니했다. 추가 단계 년, 예를 들어 소금 세척 및 글리세롤 방석 (예 : 5 참조) 함께 추가되었습니다 있지만, 효모 변이의 생화 학적 및 구조 연구는 대부분의 정화 과정에서 내생 굴욕 효소에 의해 저하되기 위해 자신의 성향에 의해 방해되었습니다 리보솜은 효소 6 이러한 클래스에 노출되는 동안 ultracentrifugation 단계 동안 시간의 긴 기간으로 인해.
전통적인 프로토콜과 관련된 주요 문제는 변이와 프로 테아제와 nucleases의 공동 정제이다. 그들의 열화이 결과 중에화학적으로 활성 변이의 낮은 수율로 인해 정화 ...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
관심 없음 충돌 선언하지 않습니다.
감사의 글
우리는 애쉬튼 Belew, 카렌, 잭 Sharmishtha Musalga, 세르게이 Sulima, Shivani Reddy, 그들의 도움이 프로젝트에 대한 입력을위한 마이클 Rhodin 포함 Dinman 연구소의 구성원 모두 감사하고 싶습니다. 이 작품은 미국 심장 협회 (AHA 0630163N)에서 오전과 국립 보건원 (5R01 GM058859 - 12)에서 JDD에 보조금에 의해 지원되었다. JAL은 부모 부여 2,009 보완의 미국의 재투자 및 복구 법 (3R01GM058859 - 11S1)에 의해 지원되었다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 시약의 이름 | 회사 | 카탈로그 번호 | |
| Sulfolink 커플링 수지 | 찌르다 | 20,402 | |
| 미니 비드 - 때리는 16 | Biospec | 607 | |
| Optima 최대 전자 초원 심 분리기 | 베크 만 보습 바로 앞에 달린 풀베는 날 | ||
| 전설 RT | Sorvall | ||
| 0.5 mm 유리 비즈 | Biospec | 11079105 | |
| 트리스 | 시그마 - 올드 리치 | 252,859 | |
| EDTA (에틸렌 다이아 민 테트라 초산) | 시그마 - 올드 리치 | E9884 | |
| DTT | 시그마 - 올드 리치 | 43,815 | |
| HEPES | 시그마 - 올드 리치 | 54,459 | |
| NH 4 망할 CIA | 시그마 - 올드 리치 | A9434 | |
| KCl | 시그마 - 올드 리치 | 60,128 | |
| MG (OAc) 2 | 시그마 - 올드 리치 | M5661 | |
| 코이 | 시그마 - 올드 리치 | 221,473 | |
| 글리세린 | 시그마 - 올드 리치 | G5516 | |
| Puromycin | 시그마 - 올드 리치 | P7255 | |
| GTP | Fermentas | R0461 |
참고문헌
- Palade, G. E., Siekevitz, P. Liver microsomes; an integrated morphological and biochemical study. J. Biophys. Biochem. Cytol. 2, 171-200 (1956).
- Fabry, M., Kalvoda, L., Rychlik, I. Hydrophobic interactions of Escherichia coli ribosomes. Biochim. Biophys. Acta. 652, 139-150 (1981).
- Jelenc, P. C. Rapid purification of highly active ribosomes from Escherichia coli. Anal. Biochem. 105, 369-374 (1980).
- Le goffic, F., Moreau, N., Chevelot, L., Langrene, S., Siegrist, S. Purification of bacterial ribosomes using chloramphenicol and erythromycin columns. Biochimie. 62, 69-77 (1980).
- Meskauskas, A., Petrov, A. N., Dinman, J. D. Identification of functionally important amino acids of ribosomal protein L3 by saturation mutagenesis. Mol. Cell Biol. 25, 10863-10874 (2005).
- Algire, M. A. Development and characterization of a reconstituted yeast translation initiation system. RNA. 8, 382-397 (2002).
- Maguire, B. A., Wondrack, L. M., Contillo, L. G., Xu, Z. A novel chromatography system to isolate active ribosomes from pathogenic bacteria. RNA. 14, 188-195 (2008).
- Leshin, J. A., Rakauskaite, R., Dinman, J. D., Meskauskas, A. Enhanced purity, activity and structural integrity of yeast ribosomes purified using a general chromatographic method. RNA. Biol. 7, 354-360 (2010).
- Triana, F., Nierhaus, K. H., Chakraburtty, K. Transfer RNA binding to 80S ribosomes from yeast: evidence for three sites. Biochem. Mol. Biol. Int. 33, 909-915 (1994).
- Azzam, M. E., Algranati, I. D. Mechanism of puromycin action: fate of ribosomes after release of nascent protein chains from polysomes. Proc. Natl. Acad. Sci. U. S. A. 70, 3866-3869 (1973).
- Nathans, D. Puromuycin inhibition of protein synthesis: incorporation of puromycin into peptide chains. Proc. Natl. Acad. Sci. U. S. A. 51, 585-592 (1964).
- Rabinovitz, M., Fisher, J. M. A dissociative effect of puromycin on the pathway of protein synthesis by Ehrlich ascites tumor cells. J. Biol. Chem. 237, 477-481 (1962).
- Allen, D. W., Zamecnik, P. C. The effect of puromycin on rabbit reticulocyte ribosomes. Biochim. Biophys. Acta. 55, 865-874 (1962).
- Yarmolinsky, M. B., Haba, G. L. Inhibition by puromycin of amino acid incorporation into protein. Proc. Natl. Acad. Sci. U. S. A. 45, 1721-1729 (1959).
- Becker-Ursic, D., Davies, J. In vivo and in vitro phosphorylation of ribosomal proteins by protein kinases from Saccharomyces cerevisiae. Biochemistry. 15, 2289-2296 (1976).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
