막 이동은 원형질막에서 세포 내부로 단백질을 운반한 다음(즉, 세포내이입), 분해를 위해 리소좀으로 또는 재활용을 위해 원형질막으로 이동하는 것을 포함합니다. 이 기사에 설명된 방법은 원형질막 단백질의 세포내이입 및 재활용을 연구하기 위해 고안되었습니다.
이 논문에서
요약
초록
막 이동은 원형질막에서 세포 내부로 단백질을 운반한 다음(즉, 세포내이입), 분해를 위해 리소좀으로 또는 재활용을 위해 원형질막으로 이동하는 것을 포함합니다. 세포 기반 L-글루타티온 보호 분석법은 세포 표면에 국한된 단백질 수용체, 채널, 수송체 및 접착 분자의 세포내이입 및 재활용을 연구하는 데 사용할 수 있습니다. 내포세포 분석법은 세포막 불투과성 비오틴으로 세포 표면 단백질을 라벨링하고 이황화 결합을 포함하는 N-하이드록시숙신이미드(NHS) 에스테르를 4ºC(멤브레인 이동이 발생하지 않는 온도)에서 라벨링해야 합니다. 비오틴화된 원형질막 단백질의 세포내이입은 37ºC에서 배양에 의해 유도됩니다. 다음으로, 온도를 다시 4ºC로 낮추어 세포내 이동을 멈추고 원형질막에 남아 있는 단백질에 공유 결합으로 부착된 비오틴의 이황화 결합을 L-글루타티온으로 감소시킵니다. 이 시점에서는 세포내이입된 단백질만 L-글루타티온으로부터 보호되어 비오틴화된 상태로 남습니다. 세포 용해 후, 비오틴화된 단백질은 아가로스에서 용출된 스트렙타비딘 아가로스로 분리하고, 관심 비오틴화된 단백질은 웨스턴 블로팅(western blotting)에 의해 검출됩니다. 재활용 분석 중, 비오틴화 세포를 37°C에서 배양하여 내포성 소포에 비오틴화된 단백질을 적재하고 원형질막에 남아 있는 단백질에 공유 결합된 비오틴의 이황화 결합을 내포세포 분석에서와 같이 4ºC에서 L-글루타티온으로 환원합니다. 다음으로, 세포를 37°C에서 다시 배양하여 세포내포의 비오틴화된 단백질이 원형질막으로 재활용될 수 있도록 합니다. 그런 다음 세포를 4ºC에서 배양하고 원형질막으로 재활용된 단백질에 부착된 비오틴의 이황화 결합을 L-글루타티온으로 줄입니다. L-글루타티온으로부터 보호되는 비오틴화 단백질은 원형질막으로 재활용되지 않은 단백질입니다.
서론
모든 살아있는 세포는 원형질막에서 세포내포(endocytic vesicle)로 가는 세포외 리간드, 미생물, 영양소, 막관통 단백질 및 지질과 같은 화물을 이동시켜 정보를 처리합니다(즉, 세포내이입). 재활용(recycleing)이라고 하는 상호 과정은 세포내이입(endocytosis)의 균형을 이루고 내부화된 막과 화물의 대부분을 세포 표면으로 되돌려 보냅니다.세포내이입(endocytosis)과 재활용(recycling )의 균형은 원형질막(plasma membrane)의 구성을 조절하고 세포에 시간과 공간에서 해결된 정보를 제공합니다. 세포내이입(Endocytosis) 및 재활용(Recycling)은 영양소 흡수 및 대사, 발달, 증식, 분화 및 극성, 재프로그래밍(reprogramming), 이동(migration), 세포 부착 및 이동, 사이토키네시스(cytokinesis), 신경전달(neurotransmission) 등 다양한 세포 기능을 조절하는 마스터 조절자입니다1-3. 내포세포 및 재활용 경로는 매우 역동적이고 고도로 조정되어 있어 세포가 시간당 1-5회 전체 원형질막에 해당하는 양을 뒤집을 수 있습니다.
세포 기반 L-글루타히온 보호 분석법은 상피 및 비상피 세포4-8에서 수용체, 채널, 수송체 및 접착 분자를 포함한 막관통 단백질의 세포내이입 및 재활용을 연구하는 데 유용합니다. 우리는 이전에 인간 기도 상피 세포와 HEK293 세포9-15에서 낭포성 섬유증 막관통 전도 조절자(CFTR)의 세포내이입 및 재활용을 연구했습니다. 원고에 기술된 비오틴닐화(biotinylation) 기반 분석법은 반투과성 성장 지지체의 편광 조건에서 배양된 상피 세포의 세포내이입 및 재활용을 검사하는 데 최적화되어 있습니다. 이러한 프로토콜은 플라스틱 조직 배양 접시 또는 비상피 세포에서 배양된 상피 세포에서 단백질의 세포내이입 및 재활용을 연구하기 위해 수정할 수 있습니다. 그림 1과 2는 상피 및 비상피 세포에서 내포성 및 재활용 분석의 예를 포함합니다.
Endocytic assay는 앞서 설명한 바와 같이9-15. 세포는 콜라겐으로 코팅 된 반투과성 성장 지원11,14에서 배양됩니다. 대안적으로, 세포는 콜라겐으로 코팅된 플라스틱 조직 배양 접시에서 배양될 수 있습니다10,15. 세포는 세포막 이동을 막기 위해 4ºC로 급격히 냉각되고 원형질막 단백질은 세포막 불투과성 비오틴으로 4°C에서 표지됩니다. 비오틴은 라이신 잔기와 이황화 결합의 >ε-아민은 티올 절단이 가능합니다. 비오틴화 후 세포를 37°C에서 배양하여 단백질 이동을 유도하고 2.5분, 5.0분, 7.5분 또는 10분 동안 내포성 소포를 로드합니다. 그 후, 세포를 4°C로 냉각하고 원형질막 단백질에 공유 결합된 비오틴의 이황화 결합을 L-글루타티온(GSH)으로 감소시킵니다. 프로토콜의 이 시점에서는 원형질막에서 세포내이입된 단백질만 GSH로부터 보호되므로 비오틴화된 상태로 유지됩니다. 37 ºC 또는 GSH 처리에서 배양하지 않고 4 °C에 남아있는 세포는 시간 0에서 biotinylated CFTR의 양을 결정하는 데 도움이 될 것입니다. 37ºC에서 배양하지 않고 GSH 처리한 후 비오틴화 후 4°C로 유지되는 세포는 이황화 결합 감소의 효율성을 결정하는 데 도움이 됩니다. 상술한 처리에 따라, 세포를 용해시키고, 비오틴화된 단백질을 스트렙타비딘 아가로스로 분리하고, SDS 시료 완충액으로 용출시키고, SDS-PAGE로 분리한다. 관심 단백질은 웨스턴 블로팅(western blotting)에 의해 비오틴화된 샘플에서 검출됩니다. 시간 0(37ºC 가난이 없는 경우)에서 4ºC에서 비오틴화된 단백질의 양은 100%로 간주됩니다. 4ºC에서 GSH 처리 후 비오틴화되어 남아 있는 단백질의 양은 배경으로 간주되며 다른 시점에서 37ºC로 가온한 후 비오틴화되어 남아 있는 단백질의 양에서 뺍니다. 단백질 세포내이입은 배경을 뺀 후 계산되며, 37ºC로 가온한 후 각 시점의 비오틴화된 단백질의 비율과 시간 0에 존재하는 비오틴화된 단백질의 양으로 표시됩니다.
재활용 분석은 앞서 설명한 바와 같이 수행됩니다11,16. 세포는 콜라겐으로 코팅된 반투과성 성장 지지대에서 배양됩니다11. 대안적으로, 세포는 콜라겐으로 코팅된 플라스틱 조직 배양 접시에서 배양될 수 있습니다13. 세포를 비오틴화(biotinylation) 후 37°C로 가열하여 내포세포(endocytic vesicle)에 비오틴화된 단백질을 로드합니다. 37ºC에서 첫 번째 배양 시간은 관심 단백질의 세포내이입이 내포세포 신호의 선형 증가 동안 최대에 도달하는 시간에 의해 결정됩니다. 시간은 단백질에 따라 다르며 세포 유형 및 세포 배양 조건에 따라 달라질 수 있습니다. 우리의 경험에서 CFTR 세포내이입은 5.0 또는 7.5 분13,14 (그림 1 및 2)에서 최대에 도달했다. 그 후, 세포는 즉시 4°C로 냉각되고 원형질막 단백질에 부착된 비오틴의 이황화 결합은 GSH로 감소됩니다. 다음으로, 세포를 용해시켜 관심 세포내이입 단백질의 양을 측정하거나 관심 세포내이입된 비오틴화 단백질이 원형질막으로 재활용될 수 있도록 다른 기간 동안 37°C로 다시 가온합니다. 그런 다음 세포를 다시 4°C로 냉각하고 원형질막으로 재활용된 단백질에 부착된 비오틴의 이황화 결합을 GSH로 감소시킵니다. 관심 단백질의 재활용은 첫 번째 및 두 번째 GSH 처리 후 비오틴화된 단백질의 양 간의 차이에서 결정됩니다.
내포세포 및 재활용 분석의 실현 가능성은 몇 가지 요인에 따라 달라집니다. 첫째, 세포 단층의 형성이 전제 조건이며 단층을 형성하지 않거나 다층으로 성장하지 않는 세포는 이 원고에 설명된 분석에 적합하지 않습니다. 둘째, 세포 표면에 관심 단백질이 풍부하고 웨스턴 블로팅(western blotting)으로 단백질을 검출할 수 있는 항체의 존재가 중요합니다. 단백질의 정상 상태 존재량은 먼저 전장세포 용해물(WCL)에서 측정할 것을 권장합니다. 셋째, 특정 세포 표면 단백질을 비오틴화하는 능력을 테스트해야 합니다. 비오틴은 라이신 잔류물에 부착합니다. 따라서 비오틴화의 효율은 단백질의 세포 외 도메인에 있는 라이신 잔기의 수에 부분적으로 좌우됩니다. 따라서, 라이신 잔기가 세포 외 도메인에 존재하는지 여부를 결정하기 위해 단백질 염기서열을 스크리닝하는 것이 좋습니다. 모든 세포 외 도메인 라이신 잔기가 단백질 접힘으로 인해 비오틴에 동일하게 접근할 수 있는 것은 아닙니다. 따라서 정상 상태의 단백질 비오티닐화(biotinylation) 후 웨스턴 블로팅(western blotting)을 수행하여 세포 표면에서 단백질의 정상 상태 존재량을 측정할 뿐만 아니라 관심 단백질에 대한 비오틴닐화 기반 분석의 타당성을 조사해야 합니다.
이 프로토콜은 세포내이입 및 인간기도 상피 세포 CFBE41o에서 야생형 CFTR의 재활용을 검사하는 데 최적화되어 있습니다.- 공기-액체 인터페이스9,10,13-15에서 24mm 반투과성 성장 지원에 배양. CFTR은 정점 막 도메인으로 분극합니다. 따라서 프로토콜은 정점 막 도메인의 비오틴화(biotinylation)를 설명합니다. 기저외막(basolateral membrane) 도메인의 비오틴화(Biotinylation)는 기저외막(basolateral membrane)으로 분극하는 단백질의 세포내이입(endocytosis) 및 재활용을 연구하는 데 필요합니다. 이 원고에 기술된 내포세포 분석 프로토콜에는 6가지 조건이 있습니다: 비오틴화만(BT = 시간 제로, 샘플 a); GSH 제어(GSH, 샘플 b); 및 2.5분, 5.0분, 7.5분 또는 10분 내포세포 시점(샘플 C; 표 1). 프로토콜에서 내포성 시점의 수 및/또는 길이는 필요에 따라 수정할 수 있습니다.
재활용 분석은 내포세포 신호의 선형 증가 동안 관심 단백질의 세포내이입이 최대에 도달하는 시점을 결정한 후 수행됩니다. 이 시점은 재활용을 유도하기 전에 관심 단백질을 세포내 소포체에 로드하는 데 사용됩니다. 시간은 단백질에 따라 다르며 세포 유형과 배양 조건에 따라 다를 수 있습니다15. 우리는 이전에 CFTR 세포내이입이 인간의기도 상피 세포 CFBE41o에서 7.5 분 시점에 고원에 도달했음을 확인했습니다 - 안정적으로 CFTR15를 발현. 대조적으로, CFTR 세포내이입은 CFTR13을 안정적으로 발현하는 HEK293 세포에서 5.0분 시점에 고원에 도달했습니다. 이 원고에 기술된 재활용 분석 프로토콜에는 5가지 조건이 있습니다: 비오틴화만(BT = 시간 제로, 샘플 a); GSH 제어(GSH, 샘플 b); 5.0분 세포내이입(Endo; 샘플 c), 5.0분 세포내이입 후 2.5분 또는 5.0분 재활용 시점(Rec; 샘플 d; 표 2). 프로토콜에서 재활용 시점의 수 및/또는 길이는 필요에 따라 수정할 수 있습니다.
프로토콜
1. 셀 시딩
- 24mm 필터를 10% 콜라겐 I으로 전처리합니다(MEM(Minimal Essential Medium)에 10% 콜라겐 I을 준비하고, 콜라겐 용액으로 필터 전체 표면을 덮고, 실온에서 자외선 아래에서 30분 동안 배양하고, 37ºC의 세포 배양 인큐베이터에서 1시간 동안 배양 후 과도한 콜라겐을 흡입합니다).
- 세포 배양 배지 준비(20분 동안 CO2로 가스화된 MEM, 10% 소 태아 혈청(FBS), 50 U/ml 페니실린, 50 U/ml 스트렙토마이신, 2 mM L-글루타민, 0.5 μg/ml 푸로마이신)
- 세포내이입 및 재활용을 위해 각각 1 x 10⁶/필터에서 6개의 24mm 필터에 CFBE41o- 세포를 파종합니다.
- 파종 다음날 정점 배지를 제거하고 기저부 쪽에서만 매일 먹이십시오.
- 실험 24시간 전에 선별 항생제 음성 배지를 공급합니다. 파종 후 6-10일 후에 CFBE41o- 세포에서 실험을 수행합니다.
2. 실험 전 준비(세포내이입 및 재활용 분석과 유사)
- 냉장실에 벤치 공간을 마련하십시오. Endocytic 및 Recycling 분석은 37°C에서 배양하는 경우를 제외하고는 냉장실에서 수행해야 합니다.24mm 필터가 포함된 플레이트는 냉장실의 벤치 탑에 직접 놓아야 합니다.
- 37ºC 인큐베이터를 켭니다.
- pH 8.2의 PBS++ 500ml(둘레코의 인산염 완충식염수(PBS), 1mM 염화마그네슘, 0.1mM 염화칼슘, pH 8.2)를 준비하고 인큐베이터에서 37°C에서 250ml, 냉장실에서 4°C에서 250ml를 보관합니다.
- 6웰 플레이트에 PBS++, pH 8.2, 37°C로 웰을 채우고 인큐베이터에서 37°C로 유지합니다.
- 다른 6웰 플레이트에 PBS++, pH 8.2, 4°C로 웰을 채우고 4°C의 냉장실에 보관합니다.
- PBS++ 100ml, pH 8.6, 4°C를 준비하여 냉장실에 보관합니다.
- 비오틴화 단계 후 30분 이내에 PBS++, pH 8.2, 4°C에서 0.8mg/ml 농도로 이황화 결합과 NHS 에스테르를 포함하는 비오틴을 준비합니다(비오틴 완충액의 부피는 필터의 전체 표면을 완전히 덮어야 함).1.5ml/24mm 필터를 권장합니다.
- GSH 완충액 100ml를 물, pH 8.6에 준비하고 4ºC(75mM 염화나트륨, 1mM 염화마그네슘, 0.1mM 염화칼슘, 50mM GSH, 80mM 수산화나트륨 및 10% FBS)로 냉각합니다. GSH와 수산화나트륨은 실험 직전에 첨가해야 합니다. pH를 확인하고 8.6으로 조정하십시오. 수산화나트륨은 카르복실기를 중화하고 글루타티온에 있는 시스테인 잔기의 절반을 탈양성자화합니다. 이 시스테인의 pKa, 즉 8.64에서 강력하게 완충됩니다. (재활용 분석을 위해 동일한 부피의 GSH 버퍼를 준비합니다).
- 용해 완충액 50ml, pH 8.2를 준비하고 4 °C (25 mM HEPES, pH 8.2, 1 % (v / v) Triton X-100, 10 % (v / v) 글리세롤)로 유지; 용해 완충액 50 ml 당 Complete protease inhibitor cocktail을 추가하고 4ºC로 냉각하십시오. pH가 떨어질 수 있으므로 Complete를 추가 한 후 pH를 확인하십시오.
- 100mM DTT로 Laemli 샘플 버퍼를 준비합니다.
- 1x 러닝 버퍼(100x 러닝 버퍼 100ml, 물 900ml)를 준비합니다.
- 1x Transfer buffer를 준비하고 4ºC(sodium dodecyl sulfate(SDS)가 없는 10x Transfer buffer 100ml, 메탄올 200ml, 물 700ml)로 냉각합니다.
3. 내포세포 분석
CFTR은 정점 막 도메인으로 분극화합니다. 따라서 프로토콜은 정점 막 도메인의 비오틴화(biotinylation)를 설명합니다. 기저외막(basolateral membrane)으로 분극하는 단백질의 세포내이입(endocytosis)을 연구하려면 기저외측 막(basolateral membrane domain)의 비오틴화(Biotinylation)가 필요합니다.
워크플로우: 4 ºC에서 세포 표면 단백질의 비오틴화(Biotinylation) → 37 ºC로 가열하여 내포성 소포에 비오틴화된 단백질을 적재 → 내포세포 이동을 막기 위해 4 ºC로 냉각 →세포 표면에 남아 있는 단백질에 부착된 비오틴의 이황화 결합 감소 → 세포 용해 → 비오틴화(biotinylated)의 분리(즉, streptavidin agarose를 사용한 endocytosed) 단백질 → streptavidin agarose → 단백질 전기영동 및 웨스턴 블로팅에서 biotinylated 단백질의 용출.
- 세포 배양 인큐베이터에서 6개의 24mm 필터(표 1: 샘플 ac)가 들어 있는 플레이트를 가져와 얼음 위에 차가운(4ºC) PBS++, pH 8.2로 채워진 플레이트로 빠르게 옮깁니다.
- PBS++가 정점 표면을 오버플로하여 전체 표면을 빠르게 덮도록 합니다. 얼음 접시를 차가운 방으로 가져와 벤치 위에 놓습니다.
- PBS++는 플레이트를 거꾸로 뒤집어 필터가 떨어지지 않도록 고정하여 빠르게 제거합니다. ~2ml의 PBS++를 정점과 기저측 쪽에 추가합니다.
- 차가운 PBS++ ~2ml, pH 8.2 3x로 필터를 2분 동안 세척합니다. 한 번에 한 면, 정점 또는 기저측에서 세척을 흡입하고 한 번에 한쪽에 새로운 PBS++, pH 8.2를 추가합니다.
- 마지막 세척을 흡입하고 기저측 쪽에 PBS++ 1ml, pH 8.2를 추가합니다. 비오틴 완충액 1.5ml를 정점 면에 추가하고 어두운 곳에서 30분 동안 배양합니다. 버퍼가 반대쪽 쪽으로 흘리지 않도록 합니다.
- 정점 쪽에서 비오틴 완충액을 흡입하고 PBS++, pH 8.2 3x로 2분 동안 세척합니다.
- 다른 플레이트에 두 개의 필터(표 1: 샘플 a 및 b)에 놓고 정점 및 기저측 쪽에 ~2ml의 PBS++, pH 8.2를 추가하고 냉장실에 보관합니다. 나머지 4개의 필터를 하나의 플레이트에 보관하고(표 1: 샘플 c) 각 필터의 정점 및 기저측 쪽에 PBS++ pH 8.2 ~2ml를 추가합니다. 접시를 얼음 위에 놓고 37ºC 인큐베이터 옆의 벤치 상단으로 가져옵니다.
- 예열된 PBS++ pH 8.2로 채워진 37ºC 인큐베이터의 플레이트로 얼음에서 필터를 빠르게 옮기고 각 필터의 전체 표면을 따뜻한 PBS++ pH 8.2로 덮는 2.5, 5.0, 7.5 또는 10분 동안 각각 하나의 필터를 정확하게 배양합니다.
- 배양하는 동안 접시에 4 개의 웰을 얼음 (4ºC) PBS ++ pH 8.2로 완전히 채 웁니다.
- 표시된 배양 시간이 지나면 각 필터를 거꾸로 뒤집어 따뜻한(37ºC) PBS++, pH 8.2를 배출하고 얼음 위의 플레이트로 옮깁니다. 차가운 PBS++, pH 8.2를 추가하여 정점 면을 넘치게 하고 각 필터의 전체 표면을 빠르게 덮습니다.
- 필터를 얼음으로 옮긴 후 플레이트를 냉장실로 가져와 벤치 상단에 놓습니다.
- 모든 필터의 양쪽에서 PBS++를 흡입하고(샘플 ac) 기저측 쪽을 PBS++ pH 8.6 1ml로 채웁니다. 필터 a의 정점 쪽에 PBS++ 1.5ml, pH 8.6을 추가합니다(표 1: 샘플 a).
- 필터 b 및 c에서 GSH 완충액(pH 8.6)을 사용하여 정점 막 단백질에 부착된 비오틴의 이황화 결합을 줄입니다(표 1: 샘플 b 및 c).
- GSH 완충액 1.5ml를 정점 쪽에 추가하고 15분 동안 배양한 다음 6회 반복합니다.
- 기저측 쪽에 PBS++ pH 8.6 1ml를 유지하십시오. 완충액을 기저측 쪽으로 흘리지 마십시오.
- 절차 3.15를 완료한 후 모든 필터(표 1: 샘플amples a, b, c)를 PBS++ pH 8.2 2x로 잠시 세척하고 정점 및 기저 측에서 세척을 흡입하고 필터가 있는 플레이트를 45° 각도로 설정하여 모든 세척 및 흡입을 다시 배수합니다.
- 플레이트를 벤치 상단에 평평하게 놓고 각 필터의 정점 면에 500μl의 용해 버퍼를 추가하고 15분 동안 진탕하면서 냉장실에서 배양합니다.
- 고무 경찰관으로 세포를 긁어내고 1.5 ml Eppendorf 튜브에 모읍니다.
- 14,000 x g에서 4°C에서 10분 동안 회전합니다.
- 상층액을 새 1.5ml 튜브에 옮기고 펠릿을 버립니다. 상층액은 이제 전체 세포 용해물(WCL)이라고 합니다.
- DTT가 포함된 Laemli 샘플 버퍼 100μl를 WCL 50μl(전체 WCL의 10%)에 추가하고 37°C에서 30분(WCL 샘플) 동안 배양합니다.
- 50% 스트렙타비딘 아가로스 200 μl 분취액을 준비하고 흡입에 부착된 27 G 바늘로 모든 세척 완충액을 제거합니다: 1 ml의 PBS로 2x를 세척하고, 세척 사이에 펄스 스핀이 있는 펠릿 비드를 세척합니다; WCL을 추가하기 전에 1 ml의 용해 완충액으로 한 번 세척하여 평형을 이룹니다. WCL을 추가하기 전에 아가로스를 흡입 건조시킵니다.
- 세척된 스트렙타비딘 아가로스로 남은 WCL을 배양합니다(용해 완충액으로 부피를 최대 1.2ml까지 가져오고 어두운 곳에서 최소 2시간 또는 냉장실에서 O/N으로 회전).
- 스트렙타비딘 아가로스-비오틴화 단백질 복합체를 1ml의 용해 완충액으로 세 번 세척하고(용해 완충액은 세척 중에 Complete를 포함할 필요가 없음), 세척 사이에 아가로스를 펄스 스핀하고, 마지막 세척 후 흡입 건조합니다.
- 스트렙타비딘 아가로스-비오틴화 단백질 복합체를 65μl Laemli 샘플 버퍼와 함께 85°C에서 5분 동안 DTT와 함께 배양합니다.
- 펄스를 돌리고 용리된 비오틴화 단백질 복합체를 수집합니다.
- 40μl의 WCL 샘플과 웰당 전체 부피의 비오틴화(BT) 샘플로 7.5% 겔을 로드합니다.
- 러닝 버퍼를 포함하는 SDS에서 120V로 젤을 실행합니다.
- SDS가 없는 전달 버퍼에서 90-95V에서 1.5시간(<400A까지) 동안 PVDF 멤브레인으로 단백질을 전달합니다.
- TBS-T 0.1 % O / N에서 5 % 무지방 우유를 차단하십시오. 항 CFTR 마우스 단클론 항체 CFF596과 염소 항 마우스 HRP 접합 2 차 항체로 두 막을 모두 블롯 블롭하십시오.
- 화학발광을 수행합니다. 두 멤브레인을 항-에즈린 또는 항-액틴 항체로 다시 블롯팅합니다.
4. 재활용 분석
워크플로우: 4ºC에서 세포 표면 단백질의 비오틴화 → 37ºC로 가→ 비오틴화된 단백질로 내포성 소포를 로드하기 위해 4ºC로 냉각 → 세포 표면에 남아 있는 단백질에 부착된 비오틴의 이황화 결합 감소 → 세포내포의 비오틴화된 단백질이 세포 표면으로 재활용될 수 있도록 37°C로 가→ 4ºC로 냉각 내포세포 밀매를 막기 위해 → 세포 표면으로 재활용된 단백질에 부착된 비오틴의 이황화 결합 감소 → 세포 용해 → 스트렙타비딘 아가로스로 비오틴화된 단백질(즉, 재활용되지 않은 단백질)의 분리 → 스트렙타비딘 아가로스에서 비오틴화된 단백질의 용출 → 단백질 전기영동 및 웨스턴 블로팅.
- Endocytic assay(섹션 3.1-3.6)에 설명된 절차에 따라 5개의 24mm 필터(표 2: 샘플 a-d)에서 정점 표면 단백질을 비오틴화합니다.
- 냉장실에서 새 플레이트에 두 개의 필터(표 2: 샘플 a 및 b)를 놓고 정점 및 기저측 쪽에 ~2ml의 PBS++, pH 8.2를 추가하고 냉장실에 보관합니다.
- 나머지 3개의 필터를 각 필터의 정점 및 기저측 쪽에 ~2ml의 PBS++ pH 8.2와 함께 하나의 플레이트(표 2: 샘플 c 및 d)에 보관합니다. 필터 c와 d가 있는 플레이트를 얼음 위에 놓고 37ºC 인큐베이터 외부의 벤치로 가져옵니다.
- 얼음 위의 플레이트에서 인큐베이터에서 예열된 PBS++ pH 8.2로 채워진 플레이트로 필터를 빠르게 옮기고 5.0분 동안 유지합니다.
- 배양하는 동안 얼음 위에 플레이트의 3 웰을 차갑게 (4ºC) PBS ++ pH 8.2로 채 웁니다.
- 37ºC에서 5.0분 배양 후 필터를 얼음 위의 플레이트로 옮깁니다. 차가운 PBS++ pH 8.2가 정점 면을 넘치게 하고 각 필터의 전체 표면을 빠르게 덮습니다.
- 얼음 접시를 차가운 방으로 가져와 벤치 위에 놓습니다.
- 필터 a, b, c, d의 양쪽에서 PBS++ pH 8.2를 흡입하고 기저측 쪽에 PBS++ pH 8.6 1ml를 추가합니다.
- 필터 a와 b를 필터 c와 d와 분리하여 유지합니다. 필터 a와 b의 정점 쪽에 PBS++ pH 8.6 1ml를 추가합니다.
- endocytic assay에 설명된 절차에 따라 필터 b, c 및 d의 세포 표면에 남아 있는 비오틴의 이황화 결합을 줄입니다(단계 3.13-3.15).
- 필터 b, c, d를 PBS++ pH 8.2 2x로 잠시 세척하고 새 PBS++, pH 8.2로 교체합니다. 필터 d를 새 접시에 놓고 얼음을 37ºC 인큐베이터 외부의 벤치 탑으로 가져옵니다.
- 얼음 위의 플레이트에서 예열된 PBS++ pH 8.2로 채워진 인큐베이터의 플레이트로 필터를 빠르게 옮기고 위의 4.4-4.9단계에서 설명한 대로 2.5분 또는 5.0분 동안 각각 하나의 필터를 정확하게 배양합니다.
- 4.4에 설명된 대로 필터 d에서 37ºC에서 두 번째 배양 후 GSH 완충액을 사용하여 정점 막 단백질에 부착된 비오틴의 이황화 결합을 감소시키지만, 이 단계에서는 GSH 완충액을 사용한 15분 배양이 3회만 수행됩니다. 이 단계에서 필터 a, b 및 c를 정점 및 기저 측의 PBS++ pH 8.6으로 유지합니다.
- 세포 용해 및 웨스턴 블로팅의 경우 내포성 분석법(3.16-3.31단계)에 설명된 절차를 따릅니다.
결과
콜라겐으로 코팅된 필터에서 배양된 CFBE41o- 세포를 통해 CFTR 엔도시토시스를 연구하였습니다 (Figure 1). 비오틴화된 CFTR은 마우스 단클론 항체(clone 596)와 항-마우스 서양와사비 peroxidase 항체를 이용한 웨스턴 블로팅 검출 시스템과 화학발광법을 통해 시각화하였습니다. 비오틴화된 CFTR의 정량 분석은 필름의 선형 동적 범위 내 노출 값을 이용하여 밀도 측정을 통해 수행하였습니다. CFTR 엔도시토시스는 배경값을 뺀 후 계산하였으며, 37 ºC로 가온한 후 각 시간대별 비오틴화된 CFTR의 양을 0분 시점에 존재했던 비오틴화된 CFTR의 양과 비교하여 백분율로 표시하였습니다 (Figures 1A 및 1B). CFTR 엔도시토시스는 0-7.5분 사이에 선형적으로 나타났습니다. 배경 CFTR이 >10%인 실험은 GSH 처리가 비효율적이었으므로 제외하였습니다 (Figure 1D).
콜라겐으로 코팅된 조직 배양 접시에서 배양된 HEK293 세포를 이용하여 CFTR 재순환을 연구하였습니다(그림 2). CFTR 엔도시토시스는 0.0-5.0분 사이에 선형적으로 나타났으며 5.0분 시점에서 최대치에 도달하였으므로(그림 2A), CFTR을 포함한 비오틴화 단백질이 엔도시토시스 소낭에 적재되도록 세포를 37 ºC에서 5.0분 동안 배양하였습니다(그림 2B 및 2C). 엔도시토시스된 CFTR의 재순환은 첫 번째와 두 번째 GSH 처리 후의 비오틴화 CFTR 양의 차이로 계산하였습니다.
표 1. 엔도사이토시스 분석법.
| 내포작용 | BT | GSH | Endo-2.5 | Endo-5.0 | Endo-7.5 | Endo-10.0 |
| 시료 | a | b | c2.5 | c5.0 | c7.5 | c10.0 |
| 비오틴 | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2.5 min | 5.0 min | 7.5 min | 10 min |
| GSH | (-) | + | + | + | + | + |
표 2. 재활용 분석.
| 재활용 | BT | 글루타치온(GSH) | 엔도-5(Endo-5) | Rec-2.5 | Rec-5.0 |
| 시료 | a | b | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | d2.5 | d5.0 |
| 비오틴 | + | + | + | + | + |
| 1차 37 ºC | (-) | (-) | 5분 | 5분 | 5분 |
| 제1회 GSH | (-) | (-) | + | + | + |
| 2차 37 ºC | (-) | (-) | + | + | + |
| 제2차 GSH | (-) | (-) | (-) | 2.5분 | 5분 |
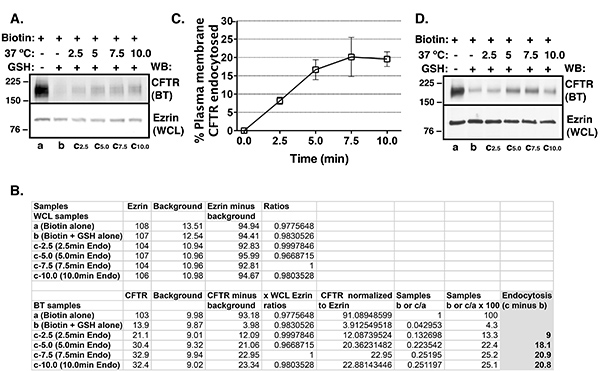
그림 1. CFBE41o- 세포에서 CFTR 엔도시토시스를 측정하기 위해 수행된 엔도시토시스 분석 요약. 세포는 콜라겐 코팅 필터에서 배양되었다. 시간 경과에 따른 CFTR 엔도시토시스를 보여주는 대표적인 웨스턴 블롯(A), 대표적인 밀도 측정 값(B) 및 실험 요약(C)이다. 선택적 세포 표면 비오틴화 및 웨스턴 블롯을 사용하여 세포막 CFTR의 양을 결정했다. 단백질 양은 필름의 선형 동적 범위 내 노출을 이용한 밀도 측정으로 정량화했다. 0분 시점에서 비오틴화(BT)된 CFTR의 양을 100%로 간주했다(표 1: 샘플 a). 0분 시점에서 GSH 처리 후 남아 있는 BT CFTR의 양을 CFTR 배경값으로 간주했다(샘플 b; 이는 그림 1B에 표시된 것처럼 모든 샘플에서 뺀 배경값과는 다른 것임에 유의하십시오). 분석에 포함된 실험에서 배경 CFTR은 6.7 ± 0.9%(평균 ± S.E.M.)였다. 37 ºC에서 2.5, 5.0, 7.5 또는 10분 동안 가온한 후의 BT CFTR에서 배경 CFTR을 뺐다(샘플 c에서 샘플 b를 뺌). CFTR 엔도시토시스는 배경 CFTR을 뺀 후 2.5, 5.0, 7.5 또는 10분 시점에서 비오틴화 상태로 남아 있는 CFTR의 백분율로 표시했다. CFTR 엔도시토시스는 0분에서 7.5분 사이에 선형적이었다. 전세포 용해물(WCL)의 Ezrin 양을 로딩 컨트롤로 사용했다. 그룹당 4회의 실험이 수행되었다. 배경 CFTR이 10% >인 실험은 비효율적인 GSH 처리로 인해 제외되었다(D). 제외된 실험에서 GSH 대조군(샘플 b)의 비오틴화 CFTR 양은 14.5%였다.
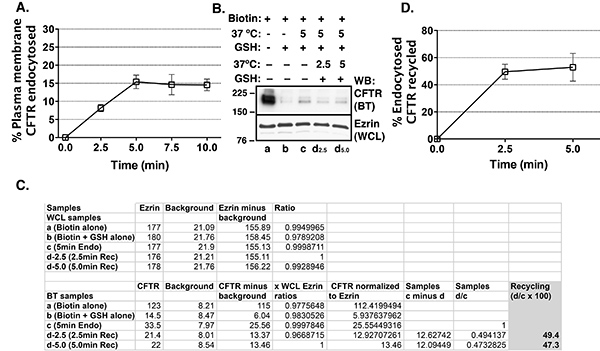
그림 2. CFTR을 안정적으로 발현하는 HEK293 세포에서 수행된 엔도사이토시스 및 리사이클링 분석 요약. 세포는 콜라겐이 코팅된 조직 배양 플레이트에서 배양되었다. CFTR 엔도사이토시스가 0-5분 사이에서 선형적으로 일어남을 보여주는 데이터 요약(A). 이에 따라, 리사이클링 분석에서는 37 ºC에서 5분간 가온하여 CFTR을 포함한 비오틴화(BT) 단백질을 엔도사이토시스 소포에 적재하였다. 단백질 양은 필름의 선형 동적 범위 내의 노출 시간을 사용하여 밀도 측정법으로 정량화하였다. 시간의 함수로 나타낸 CFTR 리사이클링을 보여주는 대표 웨스턴 블롯(B), 대표 밀도 측정 값(C), 그리고 실험 요약(D). 0분 시점의 BT CFTR 양을 100%로 간주하였다(표 2: 샘플 a). 0분 시점에서 GSH 처리 후 남아있는 BT CFTR의 양을 CFTR 배경값으로 간주하였다(샘플 b; 이는 C에 표시된 모든 샘플에서 차감된 배경값과는 다른 것임에 유의하십시오). 배경 CFTR이 >10%인 실험은 GSH 처리가 비효율적이었으므로 제외되었다. 엔도사이토시스 소포는 37 ºC에서 5분간 배양하여 CFTR을 포함한 BT 단백질을 적재한 후, GSH 처리를 통해 세포막에 남아있는 단백질로부터 비오틴을 절단하였다(샘플 c 및 d). 37 ºC에서 5분간 가온한 후 GSH 처리를 거친 BT CFTR의 양은 엔도사이토시스된 CFTR을 나타낸다(샘플 c). 37 ºC에서 5분간 가온하고 1차 GSH 처리를 수행한 후, 세포를 다시 37 ºC에서 2.5분 또는 5.0분간 가온하여 엔도사이토시스된 단백질이 세포막으로 리사이클링되도록 하였으며, 리사이클링된 CFTR의 비오틴은 2차 GSH 처리에 의해 환원되었다(샘플 d). 이 시점에서 엔도좀에서 세포막으로 리사이클링되지 않은 CFTR만이 비오틴화된 상태로 남아있었다(샘플 d). CFTR 리사이클링은 1차 GSH 처리 후의 BT CFTR(샘플 c)과 2.5분 및 5.0분에서의 2차 GSH 처리 후 BT CFTR(샘플 d)의 차이로 계산되었으며, 엔도사이토시스된 CFTR의 백분율로 표시되었다. CFTR 리사이클링은 빠르게 일어났으며 2.5분까지 최대치에 도달했다. 전체 세포 용해물(WCL) 내의 Ezrin 양을 로딩 컨트롤로 사용하였다. 그룹당 3회 실험.
토론
엔도사이틱 및 재활용 분석의 성공 여부는 원형질막에서 CFTR의 효율적인 비오티닐화에 달려 있습니다. 비오틴은 NHS-에스테르 부분이 쉽게 가수분해되어 반응성이 없기 때문에 사용 직전에 준비해야 합니다. 또한 비오티닐화 단계에서는 단백질 트래피킹을 막기 위해 4ºC의 엄격한 온도 제어가 필요합니다. 비오티닐화 단계 동안 온도가 4ºC 이상으로 상승하면 단백질 트래피킹이 발생하여 다양한 양의 CFTR이 비오티닐화될 수 있습니다.
엔도사이틱 및 재활용 분석의 성공은 또한 원형질막에 남아 있는 비오티닐화된 CFTR에서 이황화 결합의 효율적인 감소에 달려 있습니다. GSH 처리 후 비오티닐화된 상태로 남아 있는 CFTR의 양은 시간 0에서 총 비오티닐화된 CFTR의 <10%여야 합니다. GSH 대조군 샘플에서 비오티닐화된 CFTR의 양이 >10%인 실험은 제외되어야 합니다. 그림 1D는 GSH 대조군에서 비오티닐화된 CFTR의 양이 14.5%인 "실패한" 실험을 보여줍니다. 비오티닐화된 CFTR에서 이황화 결합의 불충분한 환원은 실험 중 온도 조절 불량으로 인해 이차적일 수 있습니다. GSH 치료 중 온도가 4ºC 이상으로 상승하면 단백질 트래피킹이 발생할 수 있으며 의도하지 않은 온도 상승의 결과로 엔도사이토시스된 비오티닐화된 CFTR은 배경 CFTR을 증가시킵니다. 또는 비오티닐화된 CFTR에서 이황화 결합의 불충분한 감소는 공기 중의 산화 또는 부적절한 pH로 인한 수용액에서 GSH의 반감기 감소로 인해 발생할 수 있습니다. 이전에 결정된 바와 같이 GSH는 pH 8.6에서 강력하게 완충됩니다4. 우리의 경험에 따르면 GSH 완충액을 사용한 6번의 15분 처리는 90분 처리 1회보다 더 효율적으로 이황화 결합을 90% 이상 감소시켰습니다.
세포 배양에는 특별한 주의가 필요합니다. 비오틴은 관심 단백질이 발현되는 온전한 세포의 원형질막 도메인에 도달해야 합니다. 우리는 정점막 도메인에서 발현되는 CFTR의 엔도사이토시스 및 재활용을 연구하기 위해 비오티닐화 기반 엔도사이티틱 및 재활용 분석을 사용했습니다. 이러한 분석은 또한 반투과성 성장 지지체에서 배양된 세포의 기저외측막 도메인에 위치한 단백질의 엔도사이틱 트래피킹을 연구하는 데 사용될 수 있습니다. 다층을 형성하는 상피 세포는 비오틴 및 GSH 완충액이 정점막 단백질을 검출하기 위해 세포의 최상층에만 도달하거나 기저막 단백질을 검출하기 위해 최하층에만 도달하기 때문에 이러한 분석에 적합하지 않습니다. 플라스틱에서 배양된 상피 세포는 분석 중에 씻겨 나가기 쉬울 수 있습니다. 실험 중 세포가 무작위로 손실되면 결과가 손상됩니다. 플라스틱 조직 배양 접시에서 세포를 배양하는 실험에서 현미경으로 단층 무결성을 주기적으로 검사하는 것이 좋습니다. 조직 배양 접시를 콜라겐으로 코팅하면 세포 부착이 증가할 수 있습니다.
비오티닐화된 단백질 샘플은 세포내 단백질에 의한 오염에 대해 정기적으로 테스트해야 합니다. 비오티닐화된 단백질 샘플에서 세포내 단백질의 검출은 WCL과 배양한 후 스트렙타비딘 아가로스-비오티닐화 단백질 복합체의 세척이 불충분했음을 나타낼 수 있습니다. 따라서 첫 번째 단계는 세탁 효율을 높이는 것입니다. 또한, 원형질막 무결성이 손상된 세포의 존재는 세포내 단백질에 대한 비오틴의 접근을 허용합니다. 소포체와 같은 세포내 구획에서만 발현되는 단백질에 대한 웨스턴 블로팅은 세포내 단백질의 비오티닐화를 검출하는 데 사용될 수 있습니다. 대안적으로, 액틴 또는 에즈린과 같은 세포골격 단백질을 사용하여 세포내 단백질에 의한 비오틴화된 단백질 샘플의 오염을 테스트할 수 있습니다. 세포골격 단백질은 막관통 단백질과 복합체를 형성할 수 있으며 소량의 세포골격 단백질이 비오티닐화된 단백질 샘플에서 검출될 수 있습니다. 그러나 우리의 경험에 따르면 비오티닐화/WCL ezrin 또는 액틴의 비율은 <1:1,000이므로 이러한 단백질은 비오티닐화 기반 분석에서 세포막 무결성 결정에 적합합니다.
비오티닐화 반응은 이전에 보고된 바와 같이 비반응 비오티닐화 시약을 제거하기 위해 글리신 또는 트리스로 담금질될 수 있다17. 또한 GSH는 요오도아세트아미드6으로 담금질할 수 있습니다. 우리의 경험에 따르면 비반응 비오티닐화 시약과 GSH는 담금질 시약을 사용하지 않고 PBS++로 부드럽게 세척하여 효율적으로 제거할 수 있습니다.
비오티닐화된 단백질 복합체를 분리하기 위한 스트렙타비딘 대 뉴트라비딘 아가로스의 선택은 사례별로 결정되어야 합니다. 우리의 경험에 따르면 스트렙타비딘 아가로스는 비특이적 결합이 분석 결과를 방해하는 수준에서 발생하는 뉴트라비딘 아가로스와 달리 비비오티닐화 단백질의 결합을 최소화하면서 비오티닐화 단백질 복합체의 효율적인 분리를 제공합니다(미공개 관찰).
공개 사항
저자는 경쟁하는 금전적 이해관계가 없음을 선언합니다.
감사의 글
이 연구는 미국 국립보건원(NIH) 보조금 R01HL090767, R01HL090767-02S1, P30 DK06010 및 NepCure Foundation Established Investigator New Direction Grant(미국)의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| CFBE41o- 세포 | 참조10,11,13,14,15 | ||
| HEK293 세포 | 참조13 | ||
| Minimal Essential Medium (MEM) | Gibco | 11095 | |
| L-Glutamine | Cellgro | 25-005-CL | |
| Penicillin | Sigma | P0781 | |
| 스트렙토마이신 | |||
| Puromycin | InvivoGen | ant-pr-1 | |
| PureCol 소 콜라겐 해결책 Type I | Advanced Biomatrix | 5005-B | |
| 배양 시약 | |||
| Dulbecco' s 인산염 완충 식염수(PBS) | Gibco | 14190 | |
| 염화칼슘 | 시그마 | C3306 | |
| 염화마그네슘 | 그마 | M2670 | |
| 염화나트륨 | 시그마 | S3014 | |
| EZLink Sulfo-NHS-SS-Biotin | Pierce | 21331 | |
| L-글루타티온 환원(GSH) | Sigma | G6529 | |
| Streptavidin-agarose resin | Thermo Fisher | 20353 | |
| 소듐 수산화물 | 시그마 | 224165 | |
| 태아 소 혈청 | Gemini Bioscience | 100-106 | |
| Milli-Q water | Millipore | 어드밴티지 시스템 | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| 글리세롤 | FisherScientific | G33 | |
| Laemli 샘플 버퍼 | BioRad | 161-0737 | |
| Dithiothreitol (DTT) | 시그마 | 646563 | |
| 컴플리트 프로테아제 억제제 칵테일 | Roche | 1697498 | |
| Streptavidin 비즈 | Thermo Scientific | 20353 | |
| Chemiluminescence | Perkin Elmer | NEL104001EA | |
| 시약 | |||
| 무지방 분유 | 카네이션 | N/A | |
| Tween-20 | BioRad | 170-6539 | |
| Tris-buffered Saline (미정) | BioRad | 170-6435 | |
| 소 혈청 알부민 (BSA) | Gibco | 15120 | |
| 1차 및 2차 | |||
| Western Blotting | |||
| Mouse monoclonal Anti-CFTR 596 | Cystic Fibrosis Foundation Therapeutics, Inc., Chapel Hill, NC | ||
| Anti-ezrin에 대한 항체 | |||
| 실행 버퍼 10x | BioRad | 161-0772 | |
| 전송 버퍼 10x ( SDS 없음) | BioRad | 161-0771 | |
| 메탄올 | 피셔 | A4129 | |
| 쿨터 카운터 | 벡크만 콜터 | Z1쿨터 입자 카운터 | |
| 표준 셀 배양 장비 | |||
| 자외선 | |||
| 스톡 플라스크 | |||
| Transwell 필터-24mm | Corning | 3412 | |
| 4cm 세포 배양 접시 | |||
| pH 측정기 | |||
| 15ml 및 50ml 원뿔형 튜브 | |||
| 1.5 ml의 Eppendorf 튜브 | |||
| 고무 경찰관 | |||
| 차가운 방 | |||
| 얼음 양동이와 얼음 | |||
| 27 G 바늘 | |||
| 37 º C 인큐베이터 | |||
| 온도계 | |||
| 탁상용 원심 분리기 | |||
| 냉각 원심 분리기 | |||
| 전기 영동 장비 | |||
| 개발자 | |||
| 필름 | GE Amersham | 28-9068-36 | |
| PVDF 멤브레인 | Millipore | IPVH00010 | |
| ImageJ 소프트웨어 | NIH |
참고문헌
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
재인쇄 및 허가
