심장 판막 내피 세포(VEC)를 분리하는 능력은 판막 발달, 유지 및 질병의 메커니즘을 이해하는 데 매우 중요합니다. 여기에서는 FACS를 사용하여 배아 및 성인 Tie2-GFP 마우스에서 VEC를 분리하는 방법을 설명하며, 이를 통해 발달 및 질병 과정에서 VEC의 기여도를 결정하는 연구를 수행할 수 있습니다.
이 논문에서
요약
초록
정상 판막 구조는 판막 간질 세포(VIC)가 산재하고 판막 내피 세포(VEC)의 단층으로 둘러싸인 특수 세포외 기질(ECM)의 층으로 구성됩니다. VEC는 배아 발달 과정에서 판막 구조를 확립하는 데 필수적인 역할을 하며, 평생 판막의 무결성과 기능을 유지하는 데 중요합니다. 건강한 판막 첨판의 표면 위에 연속적인 내피가 있는 것과는 대조적으로, VEC 파괴는 일반적으로 오작동하는 판막에서 관찰되며 판막 질환 및 기능 장애를 촉진하는 병리학적 과정과 관련이 있습니다. 임상적 타당성에도 불구하고, VEC가 발병 및 질병 과정에 기여하는 바를 결정하는 집중 연구는 제한적입니다. 동물 모델에서 VEC를 분리하면 세포 특이적 실험이 가능할 것입니다. VEC는 대형 동물 성체 모델에서 분리되었지만 개체군 크기가 작고, 취약성이 높으며, 특정 마커가 없기 때문에 배아 또는 성체 소동물 모델에서 VEC 분리에 대한 보고는 보고되지 않았습니다. 여기에서는 배아 및 성체 단계에서 마우스에서 VEC를 직접 분리할 수 있는 새로운 방법에 대해 설명합니다. 모든 내피 세포를 GFP(Green Fluorescent Protein)로 표지하는 Tie2-GFP 리포터 모델을 활용하여 FACS(Fluorescence Activated Cell Sorting)를 사용하여 반월판 및 방실 판막 영역에서 GFP 양성(및 음성) 세포를 분리하는 데 성공했습니다. 분리된 GFP 양성 VEC는 CD31 및 von Willebrand Factor(vWF)를 포함한 내피 마커에 대해 농축되며 배양 시 내피 세포 발현을 유지합니다. 반면, GFP 음성 세포는 VIC 표현형과 일치하는 분자 프로필과 세포 모양을 나타냅니다. 배아 및 성체 쥐 VEC을 분리할 수 있는 능력을 통해 이전에는 달성할 수 없었던 특정 판막 세포 집단에 대한 분자 및 기능 연구를 수행할 수 있으며, 이는 판막 발달 및 질병 메커니즘에 대한 이해를 크게 향상시킬 것입니다.
서론
성숙한 밸브는 심장 밸브 내피 세포 (vecS에서) 하나의 단일 층으로 전문화 된 세포 외 밸브 간질 세포 (VIC를) 산재 매트릭스 (ECM) 및 캡슐화의 세 층 화 층으로 구성되어 있습니다. ECM의 역할은 심장주기 동안 혈역학 힘 상수 변화를 견디도록 필요한 모든 생체 역학적 특성을 제공하는 것이다. 성인 밸브의 밸브 ECM의 회전율 단단히 크게 무부하 및 질병없는 섬유 아세포 등이다 VIC를 의해 통제된다. VIC 인구 이외에, 심장 판막 내피 세포 (vecS에서)은 교두 밸브 (2)의 표면 위에 중단 내피를 형성한다. 밸브 구조와 기능 및 VIC를위한 ECM의 중요성이 미국 및 다른 것들에 의해 설명되었지만, vecS에서의 역할은 덜 잘 알려져있다. 그러나, 이러한 비교적 작은 세포군은 배아에 밸브 형성 중요하며 밸브의 기능 장애로 설명질병.
방실 운하와 유출 기관 지역 내에서 내피 세포의 일부가 중간 엽 변환 (EMT) 및 심 내막 쿠션 1,3로 알려진 형태의 부종에 내피를 받아야 할 때 배아에서 심장 밸브 형성이 시작됩니다. 이러한 구조 내에서 새로 변환 된 중간 엽 세포는 나중에 VIC를로 분화 및 성숙 밸브를 형성한다. EMT가 완료되면, 쿠션 주위 내피 세포, vecS라고 지칭 부상 대 성숙한 밸브를 보호 중단 내피 세포층을 형성한다. 또한, vecS에서의 혈역학 적 환경을 감지하고 ECM은 1,3 항상성 조절하는 기본 VIC를 통신 분자 것으로 나타났다. 병 밸브에서, VEC 단층은 ECM 조직의 비정상적인 변화와 변경 생체 역학 4,5과 관련하여 중단된다. 게다가, 마우스 모델에서 연구 VEC 부전 밸브 (D)의 근본적인 원인임을 시사isease 1,6-9. vecS에서 밸브의 개발, 유지 및 질병에서 중요한 역할을 할 때, 우리가 충분히 미리 필드 및 질병의 메커니즘을 이해하기 위해 그들의 시간적인 표현형을 정의하는 것이 중요하다.
여러 실험실에 의해 이전 작업이 성공적으로 돼지와 네이쳐스 모델 10-12에서 vecS에서 격리하고있다. 이 때문에 밸브의 큰 크기로, 자성 비드와 세포 분리 단일 세포 클론 확장 순수한 11-13 개체군을 생성하는데 효과적이다 포함한 다른 분리 방법의 수에 따라, 보라고 및 / 또는 효소 분해를 통해 절연 부. 그러나, 이러한 모델 인해 높은 비용 이외에 분자 도구의 유용성을 제한하는 돼지 및 양 게놈 불완전한 주석으로 제한 될 수있다. 따라서 분리 한 후 돼지와 네이쳐스 vecS에서의 실험은 제한 될 수 있습니다. 마우스 모델 인해 유전 manipula위한 많은 가능성에 바람직기 및 배아와 성인 분자 도구는하지만, 지금까지 작은 동물 모델에서 더 VEC와 분리되어보고되지 않았다. 이는 현재시켜 항체 기반 격리 방법을 방지 VEC 특정 마커의 고유 한 정체성이 부족 소수 세포 인구를 포함 작은 조직 샘플 작업의 어려움을 가능성이있다.
이 문서에서는, 우리는 배아와 성인 단계에서 쥐 vecS에서 직접 분리하는 새로운 방법을보고합니다. 이 프로토콜은 모든 내피 세포 유형에 GFP를 표현하고 광범위하게 내피 세포 집단 (14)을 연구하는 데 사용 된 Tie2의-GFP 마우스, 활용합니다. 그러나,이 연구는 현재의 신규성은 처음 이들 생쥐, 밸브에서 내피 세포를 분리하기 위해 이용 된 점이다. 밸브 조직 및 FACS 정렬 뒤에 구 효소 digestions 일련의주의 절개함으로써 vecS에서 단리 될 수 있고, 각종 실험 기법을 사용직접 정렬 다음, RNA 추출과 문화를 CLUDING.
프로토콜
장비 및 솔루션의 1 준비
- 해부 도구를 소독 - 오토 클레이브에 의해 덮여기구 트레이에 - 판막 지역의 해부에 대한 성인의 마음과이 미세 집게를 추출하는 미세 조직 가위. 70 % 에탄올 (EtOH를) 해부하기 전에와 도구를 스프레이.
- 직전에 실험에 대한 모든 솔루션을 준비하고 멸균 0.2 μm의 필터를 통해 전달하여 솔루션을 소독. 사용할 때까지 얼음에 솔루션을 보관하십시오.
- 무균 해리 버퍼 (15 ㎖의 총 / 샘플). 1.2 ㎖의 콜라게나 제 IV, 300 ㎕의 2.5 % 트립신 및 150 ㎕의 병아리 혈청을 결합합니다. 행크의 균형 소금 솔루션 (HBSS)을 15 ml의 볼륨을 만듭니다.
- 무균 정렬 버퍼 (12 ㎖의 총). 25 ㎕의 0.5 M 에틸렌 디아민 테트라 아세트산 (EDTA), 12 μL의 DNase의 결합 I (의 RNase 무료). HBSS 12 ML에 볼륨 업을 준비한다.
- VEC 문화 미디어. 믹스 내피 촉진제EBM2 미디어의 500 ML에 키트에서 분주 구성 요소를 추가하여 제조업체의 지침 (재료 스프레드 시트를 참조)에 따라 미디어 WTH.
- GFP 부정적인 문화 미디어 (비 내피 세포 미디어). 페니실린 / 스트렙토 마이신 (펜 / 연쇄상 구균)의 5 ㎖ (1 % 최종 농도)와 50 ML의 FBS (10 % 최종 농도)와 중간 199 1 배 445 ㎖의 혼합.
성인 마우스와 E14.5 배아에서 판막 지역의 2 해부
- 모든 동물의 절차 승인 및 전국 아동 병원 연구소 IACUC 지침에 따라 수행 하였다.
- 의 Tie2-GFP 마우스는 잭슨 연구소 (주 번호 003658) 14에서 구입하고 FVB / N 배경에 동형 접합체 유전자형으로 유지되었다, 따라서 보장이 Tie2의 양성 내피 세포에서 모든 오프 스프링 명시 GFP.
- FACS 정렬 들어, 하나의 세 일치 부정적인 SAMP를 준비이러한 C57 / BL6으로 GFP를 포함하지 않는 제작은 FACS 분류 할 GFP 게이트 매개 변수를 설정합니다. 참고 :이 프로토콜과 대표적인 결과는 삼, 사 개월 된 성인 마우스 또는 배아 일 (E) 14.5에서 한 쓰레기를 사용을 기반으로합니다.
- 성인 마우스 : CO 2 산소 결핍에 의해 즉시 다음과 같은 희생은 부드럽게 흉강을 열고 심장과 폐를 노출 해부 가위를 사용합니다. 대 혈관에서 그립에게 집게로 마음을 노출 멀리 몸에서 끌어되면. 그대로 폐 조직을 제거하고, 차가운 HBSS의 장소 마음 씻어. 심실를 제거하고 그대로 방실 운하 '링'과 대동맥 영역을 떠나 심방을 당깁니다. '링'을 열고 판막 구조를 노출하는 방실 운하의 측면 아래 하나의 절개를합니다. 부드럽게 집게 멀리 괴롭 히고하여 심근 근위 대동맥 영역을 제거합니다. 핑크 심근 화이트, 조밀 한 조직으로 밸브 전단지를 확인합니다. 부드럽게 DETA방실 밸브에서 건삭 tendinae을 ch가 가능한 나머지 심근의 정도를 제거합니다. 당기거나 vecS에서이 빠질 수 있기 때문에이 과정에서 밸브 전단지를 긁어 할주의하십시오. 1 ㎖의 HBSS를 포함하는 1.5 ㎖의 에펜 도르프 튜브에 손질 판막 영역을 놓고 얼음에 보관하십시오. 참고 : 조심 해부 샘플을 오염시킬 수있는 비 판막 내피 세포를 제거하는 것이 중요합니다.
- 배아 : 교미 플러그가 관찰된다 14.0 일 후 여성 마우스 (교미 플러그 = 0.5 일의 아침)을 제물로 바친다.
- 즉시 희생을 다음, 자궁 (배아를 포함)를 해부 차가운 HBSS에 씻는다. 자궁에서 개별 배아를 해부하고 각 배아를 둘러싼 배아 난황을 제거합니다. 배아에서 각각 마음을 제거하고 2.1 단계를 따릅니다. (참고 : 부드럽게 마음을 노출하고 제거를 용이하게하는 데 도움이 단지 상부 부속 아래 집게로 배아를 압박.)
- 멸균 피펫 팁을 사용하여, 판막 영역을 함유하는 에펜 도르프 튜브에서 제거 HBSS.
- 1 ML의 해리 버퍼와 4 μL의 DNase의의 I.로 교체
- 7 분 동안 37 ° C에서 튜브를 회전합니다.
- 피펫은 최대 3 번 아래로 한 후 샘플을 15 초 동안 정착 할 수 있습니다. 15 ML 원뿔 튜브에 (해리 세포를 포함) 상층 액을 수집합니다.
- , 콜라게나 반응을 정지 포집 관에 말 혈청 125 μl를 추가합니다. 얼음에 포집 관을 유지합니다.
- 반복 해리 단계 (3.2-3.5) 아홉 번 뜨는 구 분수를 수집합니다.
- 이물질 및 덩어리를 제거하여 단일 세포 현탁액을 보장하는 새로운 포집 관에 70 μm의 나일론 필터로 분획 수집 합격.
- 5 분 펠릿 세포에 400g의 현탁액을 스핀.
- 1 ml의 정렬 버퍼에서 세포 펠렛을 재현 탁하고FACS 때까지 얼음에 보관하십시오.
GFP 긍정적 vecS에서 정렬 4 FACS
- 파편을 제외하고 단일 세포를 캡처 앞으로 및 측면 산란을 위해 게이트를 설정; 이중 차별 게이팅을 사용하여 이중선을 제외 할 수 있습니다. 음성 대조군 샘플을 기록하고의 Tie2-GFP 샘플에서 GFP 양성 세포 집단과 비교하고 정확하게 정의하기 위해, 게이트의 설정을 정의한다.
- FACS로 GFP 양성 세포를 분석하고, 게이트의 설정을 세분화.
- 정렬의 Tie2-GFP의 샘플은 모두 GFP 양성 및 GFP-음성 세포를 수집합니다. 세포를 직접 정렬 정렬 버퍼에 RNA 추출을 위해 사용되는 경우. FACS 후 배양 세포에, 1 ML의 FBS와 1 ㎖의 VEC 미디어를 포함하는 멸균 튜브에 GFP 양성 세포를 수집 한 ML의 FBS와 비 내피 미디어의 1 ㎖에 GFP 음성 세포를 수집합니다. 세포 생존을 향상시키기 위해이 50 % 미디어 / 50 % 혈청 조합을 사용한다. 포스트 FACS 분석까지 얼음에 보관하십시오.
5 포스트 FACS Analysi의
- RNA 추출 :
- 즉시 8 분 동안 1,500 XG에서 FACS, 원심 분리기 GFP 양성 및 음성 세포를 다음과 같습니다.
- 조심스럽게 상층 액 (정렬 버퍼를) 피펫 및 폐기합니다.
- 200 ㎕의 트리 졸에 (펠릿에서 권장 샘플 크기에 표시되지 않은) 세포 펠렛을 Resuspend.
- -80 ° C에서 동결하거나 이전에 우리가 실험실 (15)에 의해 설명 된대로 전체의 mRNA를 분리하기 위해 표준 페놀 - 클로로포름 추출을 시작합니다.
- 제조업체의 지침에 따라 Mastermix를 사용하여 cDNA 합성을위한 RNA의 50 ~ 200 NG를 사용합니다.
- 마우스 내피 세포 마커 (CD31, 폰 빌레 브란트 인자 (VWF)), 밸브 간질 세포 마커 (α-평활근 액틴 (α-SMA), Periostin (Postn))에 대한 IDT 개발중인 qPCR에 프로브를 사용하여 정량 PCR 증폭, 심근에 따라 cDNA를 마커 (Mhc6, Mhc7) 및 GAPDH.
- 쥐과 VEC를 배양 :
- FACS 정렬 및 셀 컬렉션 (단계 4.3), 5 분 동안 300 XG에 원심 분리기 세포 후.
- 조심스럽게 상층 액 (정렬 버퍼 + 미디어)를 오프 피펫 및 폐기합니다.
- VEC 미디어 1 ㎖에 GFP 양성 세포 펠렛을 1 ㎖의 비 - 내피 미디어 GFP 음성 펠렛을 재현 탁.
- 플라스틱 챔버 슬라이드의 잘 하나에 각각의 샘플 플레이트와 합류 할 때까지 성장한다. GFP 음성 세포에 대해 일주에 대한 문화 합류하게하고 GFP 양성 세포에 대한 2 주 이상 (3 샘플, 성인 쥐에서) 합류가 될 수 있습니다. 모든 이일 미디어를 변경합니다.
- 면역 형광 염색 :
- 세포에서 용지를 제거하고 실온에서 30 분 동안 4 % 파라 포름 알데히드 (PFA)에 고정한다. 인산염 완충 생리 식염수 용액에서 5 분 각 (PBS)에 고정 된 세포를 세 번 씻으십시오.
- 실온에서 1 시간 동안 5 % 소 혈청 알부민 / 1X PBS에서 슬라이드 블록에서 챔버 우물을 제거합니다.
- 품다(: 1000 또는 α-평활근 액틴 (α-SMA), 1 : 100 CD31, 1) 차 항체를 4 ° C에서 슬라이드 O는 / N. PBS에서 5 분 동안 배를 씻으십시오.
- , 400 PBS에서 슬라이드에 추가하고, 실온에서 1 시간 배양 : 이차 항체 (알렉사 - 플 루어 568 염소 안티 쥐) 일을 희석. 린스 슬라이드는 PBS에서 5 분 동안 3 배.
- Vectashield 함유 DAPI에서 마운트 및 이전보기로 4 ° C에서 1 시간 배양.
결과
의 Tie2-GFP 세포는 배아 및 성인 심장 판막에 내피 세포 마커와 공동 지역화.
배아 및 성인 쥐에서 vecS에서에서의 Tie2-GFP 발현의 특이성을 확인하기 위해, 면역 형광은 E14.5, 3 개월 된 성인의 Tie2-GFP로부터 제조 조직 절편에서 내피 세포 마커와 공동 지역화, CD31을 결정하기 위해 수행되었다 방법을 사용하여 마우스는 이전에 우리가 실험실 (16)에 의해 출판. 도 1에 도시 된 바와 같이, vecS에서 공동 익스프레스 GFP (도 1 A, B, E, F) 모두 성인에서와 CD31 (C, D, E, F도 1) (도 1 B, D, F) 및 배아 ( 따라서 이후 VEC 분리를위한 우리의 모델을 검증 그림 1 A, C, E) 단계.
FACS 분석의 Tie2-GFP 마우스에서 분리 된 배아와 성인 심장 판막에있는 개별의 GFP 양성 및 GFP 음성 세포 집단을 확인했다.
야생 t타 입 C57 / BL6 마우스는 GFP 매개 변수를 설정하는 데 사용하고 Tie2의-GFP 마우스에서 단일 게이트 세포의 약 2 % (그림 2) 배아와 성인 샘플 모두에서 FACS 분석에 의해 GFP 양성 세포에 상당한 농축을 보여줍니다. 도 1에 도시 된 공동 지역화 연구에 기초하여, 이들 세포가 vecS라고 간주하고 61,800 전체 셀의 평균을 산출되는 성인 시료 (N = 3), 및 8928 세포 (8,015- (샘플 39,000-77,000 세포 / 샘플의 범위) 11000 세포 E14.5 배아의 한 쓰레기에서 / 쓰레기).
PCR 분석의 Tie2-GFP 마우스에서 분리 된 GFP-음성 세포에서 GFP 양성 세포 및 밸브 간질 세포 마커의 내피 세포 마커의 농축을 확인합니다.
qPCR에 다음 FACS에 의해 GFP 양성 및 음성 세포 집단의 유전자 발현 분석은 별개의 분자 프로파일을 보여줍니다. 의 Tie2-GFP의 배아 및 adul에서 분리 된 GFP 부정적인 세포 집단에 비해TS, GFP 양성 세포는 내피 세포 마커 CD31와 VWF (그림 3)의 표현에 충실. 또한, 이들 세포 집단에서 심근 세포 마커 (Myh6, Myh7)의 발현은 비 - 내피 세포의 최소한의 오염을 보여 매우 낮다. 반면, 성인의 Tie2-GFP 마우스 및 E14.5 배아에서 분리 된 GFP 부정적인 세포는 밸브 간질 세포 (VIC) 마커, GFP에 α-SMA 및 Periostin (POSTN) 상대 양성 세포에 농축되어있다. 이러한 마커의 농축으로 인해 성인 VIC를의 대기 표현형 및 활성화 마커 따라서 낮은 표현 성인에 비해 E14.5 샘플에서 분리 GFP 음성 세포에서 더 높다.
의 Tie2-GFP 성인 쥐에서 분리 된 GFP 양성 세포가 시험 관내에서 배양 될 수있다.
성인 샘플로부터 분리 배양 GFP 양성 및 음성 세포에 GFP 능력은베이스를 조사했다세포 형태 및 면역 조직 화학 염색에 라. 이전에 우리는 GFP 양성 세포가 이주 문화 (그림 4C) 후 내피 세포 마커 CD31와 형태 (그림 4A) 라운드 공동 특급 GFP를 나타나는 그림 4에서 보여 우리 (17)에 의해 기술 된 프로토콜을 사용. 반면, 비 내피 세포는 구일 (그림 4D) 후 VIC 마커 α-SMA를 중간 엽 같은 형태 (그림 4B)를 표시하고 표현 GFP 부정적이다.

도 1의 Tie2-GFP 양성 세포는 태아 및 성인 심장 판막에 CD31와 공동 지역화. 면역 형광은 내피 세포 마커 (Tie2-) GFP 발현의 관계 (A를, B) 보여, CD31 (C, D)에서 의E14.5 (A, C, E)와 성인에서 승모판의 eptal 전단지 (B, D, F) 단계. 밸브 영역이 강조 표시됩니다, C, E. (E, F) 병합 된 이미지. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.

그림 2의 Tie2-GFP 양성 vecS라고는 FACS에 의해 식별 될 수있다. 연령 일치 C57 / BL6 컨트롤 (A, C)에 비해 Tie2의-GFP의 배아 (B)와 성인 (D)에서 격리 밸브가 별개의 GFP-를 포함 녹색으로 표시된 양의 세포 인구. 빨간색으로 표시 GFP 음성 이벤트는, 대조군으로 수집 하였다. (B) 및 (D)의 숫자는 GFP-P의 평균 %로 나타내FACS으로 분류 이벤트의 총 수에서 ositive 세포 (N = 3). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.

GFP-음성 세포 밸브 간질 세포와 관련된 유전자를 표현하는 반면 그림 3 GFP 양성 세포는 내피 세포 마커에 충실. 내피 세포 마커 (CD31, 폰 빌레 브란트 인자 (VWF)) 및 성인 (Myh6) 및 태아의 대표 qPCR에 ( Myh7) E14.5 (A) 및 성인 (B 판막의 영역으로부터 격리 GFP 양성 세포에서 심근 세포 마커)의 Tie2-GFP 마우스. 내피 세포 마커와 심근 세포 관련 유전자의 매우 낮은 수준의 참고 농축. (C, D) 차를 접어밸브 간질 세포 마커의 발현 nges α-SMA E14.5 (C)와 성인 (D)의 Tie2-GFP 마우스에서 분리 GFP-음성 세포 및 Postn. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
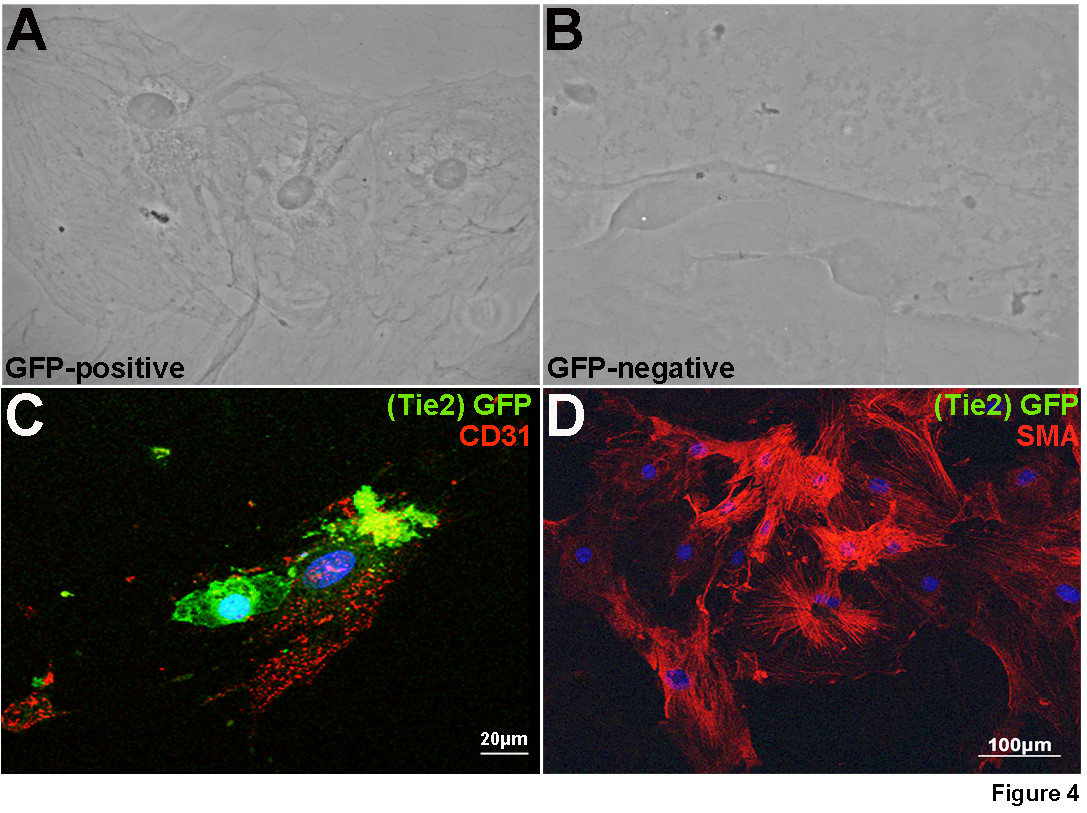
그림 4의 Tie2-GFP 양성 세포는 체외에서 내피 세포 마커의 발현을 유지한다. 다음 FACS, GFP 양성 (A, C)와 (B, D) 대비 영상을 단계적으로 합류 할 때까지 배양 대상이 성인 쥐에서 세포 집단했다을 (A, B) 및 면역 형광 (C, D). GFP 양성 세포가 후 CD31 (적색) (C)을 표현문화의 십일. 반면, GFP의 발현은 α-SMA, 활성화 VIC를 (D)의 마커에 대한 긍정적 인 스테인드 부정적인 세포 인구에서 검출되지 않았다.
토론
여기서는 처음 서술의 Tie2-GFP 마우스에서 배아 및 성인 뮤린 vecS에서의 분리를위한 신규 한 방법. 이 마우스 라인 광범위 내피 세포 집단의 분리를 위해 사용되었지만,이 vecS에서의 선택적 분리를 보여주는 첫 번째보고이다. 때문에 VEC 인구의 취약성, 우리는 배아와 성인 쥐의 심장 판막 긍정적 인 GFP (GFP 및 음수) 세포의 단일 세포 분리를 허용하는 엄격한 프로토콜을 개발했습니다. 의 Tie2-GFP 마우스 (14)로부터 전 배아 또는 기관을 사용하여 출판물에 비해, 우리는 세포의 집단을 분리 선택이 깨지기 내피 세포 집단의 낮은 풍부에 기초 콜라게나 및 절개 단계를 최적화했다.
VEC 아이솔레이션는 이전에 제한된 유전 적, 분자 생물학적 도구 큰 동물 모델에서보고되었다. 이러한 도구는 잘 따라서 ABI를 쥐에 설립된다뮤린 vecS에서 격리하는 품 질은 심장 판막의 연구에 사용되는 실험 디자인의 확장 집합을 허용한다. 따라서,이 방법의 중요한 장점은 vecS에서 야생형 마우스와 밸브 질환 및 상해의 모델로부터 시간적으로 분리 될 수 있다는 것이다. 두번째 장점은 절연 vecS에서보다 정확하게 생체의 상황을 반영하는 발현 패턴을 유지, 절개 후에 즉시 분석 할 수 있다는 것이다. 또한,이 분리 프로토콜 번호 팽창 및 시험 관내 환경에 의해 유도 따라서 전위 표현형 변화를 방지 할 수있다 세포 배양 물을 제거하기에 충분하다.
참신하고이 프로토콜의 실험적인 이점에도 불구하고, 우리는 한계가 여전히 존재 함을 인식하고 있습니다. 첫째, 밸브 내 뮤린 VEC 인구의 크기가 매우 작고, 따라서, 여러 타임 드 배아 담가가 유전자 발현 분석을위한 충분한 RNA를 생성하기 위해서 필요한 것이다. 생 동안S가 여러 브리더를 사용 극복 될 수 있고, 그것은 어떤 사후 분리 분석 툴의 적용에 영향을 미칠 수있다. 이 제한은 특히 분자 프로파일 및 기능적 어 세이를 포함 VEC 표현형의 더 철저한 분석을 수행하기 위해 GFP 양성 vecS에서의 합류 문화를 확립하기위한 도전이다. 그러므로 우리는 모든 어려움은 우리의 접근 방식에 의해 극복되고 있음을 인정하지만, 이것은 우리가 극복하기 위해 노력하고 있습니다 관심의 영역입니다.
판막 영역으로부터 분리 vecS에서의 이러한 접근법은 심실 내의 심근 내막 또는 혈관 구조 타이 GFP 이환 비 판막 내피 세포로부터의 오염의 가능성을 소개한다. 지금까지 다른 심장 혈관 내피 세포 집단에서 vecS에서의 분자 차이가 확인되지 않았다. 그러나 Nfatc1 유전자의 인핸서 영역을 파악하고 구체적으로 그렇지 않은 vecS에서 레이블을 보였다심장 (18) 내에서 EMT, 그리고 다른 내피 세포 인구를 받아야. Cre 호텔 모델 (Nfatc1합니다 사이트)를 구할 때, 미래 연구는 오염의 위험을 최소화하기 위해이 라인의 특이성을 활용할 수 있습니다. 비 판막의 Tie2 GFP--양성 세포 이외에, 밸브 전단지 중격 및 벽화 심근 벽의 윤대 영역에 부착 지점 근세포에서 오염 가능성은 항상 존재한다. 여기에 데이터가 표시되지 않음, 우리는 처음에 안티 GFP 및 항 CD31 항체로 코팅 된 복합 구슬을 사용하여 해부 판막 지역에서 vecS에서 격리하기 위해 연구를 시작했다. 이 방법은 내피 세포를 분리하는 성공 동안, 우리는 인접한 비 내피 세포 유형에서 유의 한 세포 덩어리를 경험 때문에 VIC를 심근 세포는 우리의 실험 샘플을 오염. 이 파라미터는 오직 단일 세포 현탁액을 분리하기 위해 설정되어있는 바와 같이 FACS 분석을 이용하여 회피되었습니다s 및 PCR 분석은 심근 특정 유전자의 발현이 제한 (그림 3)에 대한 통제했다 감지한다. 우리의 오염을 최소한으로 간주 될 수 있지만, GFP 및 내피 세포 특이 표면 마커의 선택과 배 향후 피할 수 전위 실험 복잡성 남아있다.
이 프로토콜을 사용하여, 우리는 배아 성인 마우스 및이 방법은 RNA 분리 및 GFP 포지티브 및 네거티브 GFP 세포 집단의 세포 배양에 사용할 수있는 방법을 제공하는 실시 예에서 성공적 절연 vecS에서있다. 그러나,이 방법은 이러한 애플리케이션에 한정되지 않고, 분자 및 세포 기능 접근법의 과다에 사용될 수있다. 또한, 상기의 Tie2-GFP 배경은 건강과 질환에서 VEC 개체군의 비교 연구를 허용한다 유전자 마우스 모델과 교배 할 수있다. 이 신규 한 방법의 개발은, 처음으로, 집중 연구를 허용한다밸브 개발 및 유지 보수에 vecS에서의 기여를 검사하고 내피 의존 밸브 질병의 이전에 진가를 인정받지 못한 메커니즘을 밝힐 수 있습니다.
공개 사항
저자가 공개하는 게 없다.
감사의 글
우리는 FACS 분석에 대한 기술 지원을위한 오하이오 주립 대학 종합 암 센터의 분석 세포 계측법 핵심 시설, 특히 카트리나 무어, 감사합니다. 또한 우리는 과학적 통찰력 박사 윌리엄 푸와 그의 그룹을 인식하고 있습니다. 이 작품은 NIH HL091878 (JL)과 전국 어린이 병원 심장 센터에 의해 지원되었다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Alexa Fluor 568 염소 항-쥐 IgG (H+L) | Life Technologies | A-11077 | |
| 70 μ m 나일론 세포 여과기 | BD Falcon | 352350 | |
| 2.5% Trypsin | Invitrogen LT | 15090-046 | |
| 소 혈청 알부민(BSA), 분획 V, 열 충격 처리 | Fisher Scientific | BP1600-100 | |
| CD31 쥐 안티 마우스 항체 | BD Pharmingen | 553370 | |
| 병아리 혈청 | Invitrogen LT | 16110-082 | |
| 콜라겐 분해 효소 IV | Invitrogen LT | 17104-019 | 제조사의 지시에 따라 준비 |
| DNase I, RNase free (10,000 단위) | Roche | 4716728001 | |
| EBM-2 | Lonza | CC3156 | VEC 매체 |
| EDTA용, 0.5 M 용액 | Hoefer | 03-500-506 | |
| EGM2 SingleQuot, Bulletkit | Lonza | CC-4176 | VEC 매체 |
| Fetal Bovine Serum (FBS), Heat Inactivated | Hyclone | SH3007103IH | |
| Hanks Balanced Salt Solution (HBSS) | Life Technologies | 14025-092 | |
| 호스 세럼 | Invitrogen LT | 16050-130 | |
| 하이브리드화 오븐 | VWR | 230301V | |
| Medium 199 1X | Corning cellgro | 10-060-CV | |
| 파라포름알데히드 16% 용액 EM 등급 | 전자 현미경 과학 | 15710 | |
| Pen/Strep | MP-Biomed | ICN1670049 | |
| Permanox 멸균 챔버 슬라이드(커버 포함 | ) Thermo-Scientific | 177429 | |
| 인산염 완충 식염수, 1X | Corning cellgro | 21-040-CV | |
| PrimeTime Mini qPCR Assay | Integrated DNA Technologies | Acta2 (αSMA), GAPDH, Myh6, Myh7, POSTN, CD31, vWF | |
| StepOnePlus Real-Time PCR System | Applied Biosystems | 4376600 | |
| SuperScript VILO Mastermix | Invitrogen LT | 11755050 | |
| [header] | |||
| Tie2-GFP 마우스 | Jackson Laboratories | 3658 | |
| 조직 집게 #5 11cm | Dumont | 14096 | |
| Trizol | Ambion | 15596018 | |
| α-SMA 항마우스 항체 | Sigma-Aldrich | A2547 | |
| VECTASHIELD 하드셋 마운팅 미디어(DAPI | Vector Laboratories | H-1500 |
참고문헌
- Tao, G., Kotick, J. D., Lincoln, J. Heart valve development, maintenance, and disease: the role of endothelial cells. Current topics in developmental biology. 100, 203-232 (2012).
- Lincoln, J., Yutzey, K. E. Molecular and developmental mechanisms of congenital heart valve disease. Birth defects research. Part A, Clinical and molecular teratology. 91, 526-534 (2011).
- Tao, G., Levay, A. K., Gridley, T., Lincoln, J. Mmp15 is a direct target of Snai1 during endothelial to mesenchymal transformation and endocardial cushion development. Developmental biology. 359, 209-221 (2011).
- Weinberg, E. J., Mack, P. J., Schoen, F. J., Garcia-Cardena, G., Kaazempur Mofrad, M. R. Hemodynamic environments from opposing sides of human aortic valve leaflets evoke distinct endothelial phenotypes in vitro. Cardiovasc Eng. 10, 5-11 (2010).
- Hinton, R. B. Jr Extracellular matrix remodeling and organization in developing and diseased aortic valves. Circulation research. 98, 1431-1438 (2006).
- Gould, S. T., Srigunapalan, S., Simmons, C. A., Anseth, K. S. Hemodynamic and cellular response feedback in calcific aortic valve disease. Circulation research. 113, 186-197 (2013).
- Bosse, K., et al. Endothelial nitric oxide signaling regulates Notch1 in aortic valve disease. Journal of molecular and cellular cardiology. 60, 27-35 (2013).
- Laforest, B., Andelfinger, G., Nemer, M. Loss of Gata5 in mice leads to bicuspid aortic valve. The Journal of clinical investigation. 121, 2876-2887 (2011).
- Hofmann, J. J., et al. Endothelial deletion of murine Jag1 leads to valve calcification and congenital heart defects associated with Alagille syndrome. Development. 139, 4449-4460 (2012).
- Wylie-Sears, J., Aikawa, E., Levine, R. A., Yang, J. H., Bischoff, J. Mitral valve endothelial cells with osteogenic differentiation potential. Arteriosclerosis, thrombosis, and vascular biology. 31, 598-607 (2011).
- Gould, R. A., Butcher, J. T. Isolation of valvular endothelial cells. Journal of Visualized Experiments : JoVE. , (2010).
- Butcher, J. T., Penrod, A. M., Garcia, A. J., Nerem, R. M. Unique morphology and focal adhesion development of valvular endothelial cells in static and fluid flow environments. Arteriosclerosis, thrombosis, and vascular biology. 24, 1429-1434 (2004).
- Cheung, W. Y., Young, E. W., Simmons, C. A. Techniques for isolating and purifying porcine aortic valve endothelial cells. The Journal of heart valve disease. 17, 674-681 (2008).
- Motoike, T., et al. Universal GFP reporter for the study of vascular development. Genesis. 28, 75-81 (2000).
- Peacock, J. D., Lu, Y., Koch, M., Kadler, K. E., Lincoln, J. Temporal and spatial expression of collagens during murine atrioventricular heart valve development and maintenance. Developmental dynamics : an official publication of the American Association of Anatomists. 237, 3051-3058 (2008).
- Levay, A. K., et al. Scleraxis is required for cell lineage differentiation and extracellular matrix remodeling during murine heart valve formation in vivo. Circulation research. 103, 948-956 (2008).
- Lincoln, J., Alfieri, C. M., Yutzey, K. E. BMP and FGF regulatory pathways control cell lineage diversification of heart valve precursor cells. Developmental biology. 292, 292-302 (2006).
- Wu, B., et al. Nfatc1 coordinates valve endocardial cell lineage development required for heart valve formation. Circulation research. 109, 183-192 (2011).
재인쇄 및 허가
