시냅스 전 방출 안면막에서 Ca2+ 전류를 기록하는 것은 Ca2+ 진입 및 신경전달물질 방출을 정확하게 이해하는 데 중요합니다. 우리는 기능적으로 고립된 망상척수 축삭돌기를 생성하는 lamprey 척수의 급성 해리를 제시하여 개별 시냅스전 말단의 방출면 막에서 직접 기록할 수 있습니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
장어 Reticulospinal 축삭의 급성 해리는 개별 기능 시냅스 터미널의 릴리스 얼굴 막에서 녹음을 활성화하는
이 논문에서
요약
초록
시냅스 전달은 매우 빠른 과정이다. 활동 전위가 릴리스 얼굴 막에있는 전압 게이트 칼슘 채널 (VGCCs)을 통해 시냅스 터미널에 칼슘의 유입을 주도, 소포 융합과 신경 전달 물질의 방출을위한 트리거이다. 시냅스 전달의 신속성에 중요 활동 전위, VGCCs의 도착과 신경 전달 물질 방출 기계 사이의 공간적 시간적 동시성이다. 직접 칼슘 개별적인 시냅스 단자 분리면에서 막 2 + 전류를 기록 할 수있는 능력은 시냅스 전 칼슘과 신경 전달 물질의 방출 사이의 관계를 정확하게 이해하는데 필수적이다. 전기 생리 학적 기록에 대한 시냅스 릴리스 얼굴 막에 대한 액세스는 대부분의 준비 및 연접 칼슘에서 사용할 수 없습니다 2 + 항목은 이미징 기술과 거시적 현재의 방식 측정을 사용하는 것을 특징으로하고있다국세청 - 칼슘 항목을 시각화 할 수있는 충분한 시간 분해능이없는 기술. 직접 하나의 시냅스 터미널에서 VGCCs의 특성은 중앙 시냅스에서 가능하지 않았다 및 지금까지 성공적으로 만 병아리 섬모 신경절의 꽃받침 형 시냅스와 쥐 꽃받침에 달성되었다. 우리는 성공적으로 시냅스 구조의 결여 기능 시냅스 단자를 절연 reticulospinal 축색 돌기를 산출 척수의 급성 해리 준비를 개발하여 칠성 장어의 척수의 거대한 reticulospinal 시냅스에서이 문제를 해결했다. 우리는 찬란 레이블 및 개별 시냅스 터미널을 확인하고 녹화를 타겟팅 할 수 있습니다. 이 혼합물을 사용하여, 우리는 면역 조직 화학 및 전기 생리학 접근 방식을 사용하여 개별 시냅스 터미널의 릴리스 얼굴을 직접 VGCCs을 특징으로하고 있습니다. 칼슘 전류는 릴리스 얼굴 막 O를 직접 기록 된F 시냅스 개별 단말들은, 최초의 기록은 중앙 시냅스에서 행할 수있다.
서론
시냅스 전달은 매우 신속하고 정확한 과정이다. 시냅스 터미널의 활동 전위 침공 릴리스 얼굴 막, 연접 칼슘의 결과 증가 2 + 소포 융합과 신경 전달 물질의 방출 하나의 트리거 역할에있는 VGCCs의 개방에 연결됩니다. 이러한 모든 단계는 마이크로이 수백 내에서 발생하고, 따라서 소포 융합 기계 3 VGCCs의 꽉 공간 커플 링을 필요로한다. 시냅스 칼슘 이온 플럭스는 주로 칼슘에 민감한 염료 사를 사용하여 접근 방법 영상을 특징으로하고있다. 시냅스 전 뉴런에서 칼슘을 혼입 변조 칼슘 버퍼 간접적 시냅스 신경 전달 칼슘과 3 사이의 관계를 특성화하는 데 사용되어왔다. 또한, 칼슘 5 uncaging 또는 macroscopi을 기록하여 시냅스 무료 칼슘 농도를 조절칼슘 2 + c를 전류 소포 융합 및 / 또는 방출의 측정과 관련하여 사용되었다; 이러한 정전 용량을 측정으로 6 시냅스 응답은 같은 질문을 해결하기 위해 2. 시냅스 소포의 융합과 신경 전달 물질의 방출을 유발 2 + 전류 그러나, 릴리스 얼굴 2 + 전류를 직접 칼슘의 특성, 막 탈분극이 캘리포니아로 번역 된 시냅스 막의 전문 섹션은 칼슘의 정확한 측정을 얻기에 필수적이다 2 + 시냅스 소포의 융합에 대한 요구 사항. 게다가, 능력이 직접 활동 전위의 시간 경과 간의 타이밍 관계의 정확한 해명이 소포 융합 및 릴리스 정확한 동시 측정을 가능 결합 개별 시냅스 말단에 칼슘 이온 전류의 특성을, 연접 칼슘 전류 소포의 융합 및 릴리스. 릴리스 얼굴 막에 대한 액세스시냅스 돌기에 의해 동격를 닫 인해 시냅스 터미널의 대부분에서 사용할 수 없습니다. 그것은 개별 시냅스 터미널에서 전류의 직접 측정을 방지 때문에 어려움은 VGCCs의 특성에 큰 장애물이되고있다. 개별 시냅스 터미널에서 시냅스 칼슘 전류의 직접 특성은 지금까지 중앙 시냅스 가능되지 않았으므로 및이 calyceal 형 시냅스 터미널에서 달성되었습니다; 병아리 섬모 신경절 7-10 쥐 꽃받침 11, 12의 꽃받침 형 시냅스. 심고 척수 13 거 reticulospinal 시냅스 포함한 모든 다른 시냅스 단자에서 시냅스 전 방출면 막에 대한 액세스의 부족은 시냅스 칼슘 플럭스 공부 칼슘 촬상 간접 방식의 사용을 필요로했다.
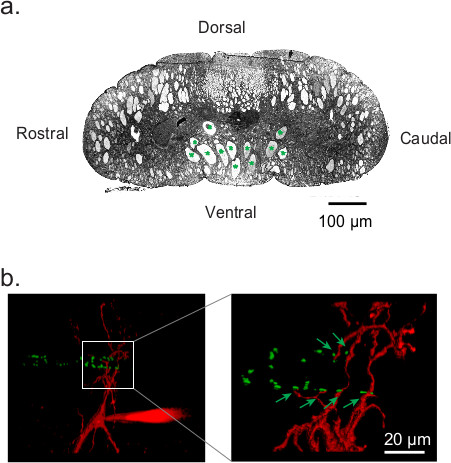 dorso - 복부 방향을 나타내는 칠성 장어의 척수의 그림 1 장어 거대한 reticulospinal 시냅스. () 단면. Reticulospinal 축삭 녹색 별표로 표시되어 있습니다. 시냅스 후 뉴런 (13) 상 (녹색 화살표로 표시) 시냅스 reticulospinal 축삭 옆모습 연락처 엔 수많은 결정을 보여주는 칠성 장어의 척수 reticulospinal 시냅스의 (b)는 3-D 재건. 시냅스 후 뉴런이 알렉사 플 루어 568 하이 드라 지드 (적색)로 가득하고있는 동안 시냅스 터미널, 알렉사 플 루어 488 하이 드라 지드 복합 phalloidin (녹색)으로 표시되어있다.
의 신경 세포에 옆모습 연접 엔 척추 주동이의 - 꼬리 축 그림 1a에 코드 병렬 형태의 다중의 복부 지역에 위치한 칠성 장어 거인 reticulospinal 축삭,척추 복부 혼 (14) 그림 1b 13. 육안 전체 세포 칼슘 전류는 그대로 척수 (13, 15)에 reticulospinal 축삭에서 기록되었다. 그러나, 칼슘의 직접 측정에서 이전 블라인드 시도는 세포 부착 패치 클램프 기술을 이용하여 그대로 심고 척수 reticulospinal 축삭에서 2 + 전류 인해 대향 시냅스 프로세스에 의해 시냅스 전 방출면 막 액세스 부족 13 실패 입증 그림 1b. 릴리스 얼굴 막은 이전에, 시냅스의 기계적 교란 전에 12를 기록, 기계적 해리 (16)와 결합 효소 처리 시냅스 후 뉴런 (11)의 제거에 의해 액세스 가능하게되었습니다. 척수의 복합 조직 감안할 때 시냅스 후 뉴런을 식별하고 그것을 기계적으로 후퇴 또는 일을 교란하는 것은 매우 어려울 것이다전자 시냅스. 따라서, 우리는 기계 해리 다음 효소 처리 (17)를 사용하기로 결정했다.
이 방법을 사용하여, 우리는 이에 개별 시냅스 터미널에 대한 무제한 액세스를 제공하는 시냅스 프로세스의없는 기능 시냅스 터미널 가능한 격리 reticulospinal 축색 돌기를 산출 칠성 장어의 척수의 급성 해리 준비를 개발했다. 표준 도립 현미경 및 형광 이미징과 결합에서, 세포 -을 사용하여 기록, 칼슘 이온 전류도 4C 및도 4D를 분리하는 기록 액을 함유하는 패치 피펫, 식별 및 개별 형광 식별 된 시냅스 전 단말을 대상으로 미국있게 연결된 전압 클램프 기법. 칼슘 전류는 개별 시냅스 터미널 그림 4 층의 시냅스 릴리스 얼굴 막에 직접 기록하고있다. 이 significa입니다그것이 중앙 시냅스에서 수행되는 최초의 기록이기 때문에 NT 시냅스 전달의 필드 돌파구.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
폴리-D-라이신 브롬화 수소 산염의 1 준비
- 0.1 M 붕산 완충액 (pH 8.5)에 1 ㎎ / ㎖ 폴리-D-라이신 하이드로 브로마이드를 준비합니다.
- -20 ° C에서 나누어지는 및 저장.
Coverslips는의 2 폴리 라이신 코팅
주 : 층류 챔버 내의 모든 세척 및 코팅 단계를 수행.
- 2 시간 동안 1 N 염산 (HCL)을 포함하는 페트리 접시에 배치 된 커버.
- 기음 모든 염산 및 70 % 에탄올 (EtOH로) 2 ~ 3 배 씻어.
- 1 시간 동안 70 %의 EtOH에 둡니다.
- 기음은 모두 70 % EtOH로는 100 % EtOH를 2 ~ 3 배 씻어.
- 2 시간 동안 100 %의 EtOH에 둡니다. 모두의 EtOH를 대기음.
- 몇 초 동안 필터 종이와 건조한 공기로 건조시킨다.
- 장소 O / N 일에 mg / ㎖ 폴리 라이신 솔루션입니다.
- 린스는 밀리 포아 물 4-5x와 다음날 된 커버.
- 공기 건조 폴리 라이신 깨끗한 페트리 접시에 유리 롤러에 커버 슬립 코팅.
- immunohistochemistr 들어Y는 35 X 10mm 페트리 접시의 뚜껑을 사용합니다. 0.3 cm의 두께로 접시에 30 ° CO / N로 설정 할 수 있습니다 : 실 가드를 준비 (polydimethylsilioxane, PDMS)는 PDMS (중량 일 엘라스토머 및 에이전트 열 경화) 부어 요리를 지어. 이 설정되면, PDMS로 인세 1cm에서 2cm를 잘라. 커버 슬립에 대해 위에서 언급 한 바와 같은 단계에 따라 폴리 리신과 클린 코트 인셋.
- 스토어 폴리 라이신 코팅 된 커버와 요리 사용까지 (이주까지하지만, 모든 3~4일 주기적으로 준비하여 최선의 접착 결과를 얻을 수) 층류 챔버 내부에 덮여.
- 진동 조직 슬라이서에서 척수를 핀, PDMS 블록을 준비합니다. 믹스 엘라스토머 및 엘라스토머 B 1 : 1 중량. 100 × 15mm 페트리 접시에 붓고 30 ° C에서 O / N을 설정할 수 있습니다. PMDS의 사각형 조각을 잘라 에폭시 접착제를 사용하여 슬라이스베이스 플레이트에 붙입니다. 접착제가 제자리에 고정 PDMS 설정할 수 있도록하고 평면을 얻기 위해 표면에서 다수의 얇은 섹션 슬라이스표면의 조직을 고정합니다.
장어 척수의 3 급성 해리는 고립 된 Reticulospinal 축삭을 얻었다
- (100 ㎎ / ℓ MS-222) tricaine의 메테 인설과 ammoecoete 또는 성인 칠성 장어 (Petromyzon의 스 marinus)를 마취. 칠성 장어를 포함, 뚜껑으로 덮여 플라스틱 컵에 물에 마취를 추가하는 희생한다.
- 130 염화나트륨, 염화칼슘, 1.8를 MgCl 2, 4 HEPES, 네 덱스 트로 오스 (산도 7.6, 삼투압이 270 mOsm) 2.1의 KCl, 2.6 제거 본체 : 감기 (4 ° C) (mm 단위) 조성의 링거액에 칠성 장어 목을 벨 벽의 근육은 척수의 등쪽 표면을 노출한다.
- 미세 집게를 사용하여 척수의 등쪽면에서 meninx의 primitiva를 제거합니다. 이 단계에서 복부 meninx의 primitiva를 제거하지 마십시오.
- 1cm 길이의 조각으로 척수를 잘라.
- PDMS는 기본 괞 찮아를 얇게 줄 지어에, 등쪽면이 위를 향하게 미세 곤충 핀을 사용하여 척수 조각을 핀빙냉 링거액 함유 진동 조직 슬라이서 챔버 내의 TE (2.12 참조).
- 주동이와 꼬리에 그대로 지느러미 열 섹션 뒤에 해리 공정도 2a 및도 2b 동안 처리하는 역할을 종료 떠나 블레이드 rostro - 꼬리 축을 따라 자르는 척수의 등 열의 중앙 부분을 제거합니다. 슬라이스 및 기본 reticulospinal 축삭 열 손상되지 않은 그림 2b를 떠나 만 지느러미 열을 제거하는 깊이 설정을 허용 느린 속도 설정을 사용합니다.
- 1 ㎎ / ㎖ 프로테아제 (스트렙토 마이 세스 (Streptomyces) griseus의에서 유형 XIV)와 링거액에 (클로스 트리 디움 histolyticum에서 유형 IA) 준비 1 ㎎ / ㎖ 콜라게나 제의 칵테일 45 분 동안 실온에서 분리 된 척수 조각을 품어 (엘 Manira & Bussières에서 적응 , 1997 17).
- PDMS에 미세한 핀을 사용 핀 효소 처리 척수 조각은 페트리 접시 conta의 안감ining 감기 (4 ° C에서) 링거액.
- 미세 집게로 복부 meninx의 primitiva를 제거합니다.
- 척수도 차원에서 그대로 reticulospinal 축색 돌기의 중앙 열을 떠나는 슬라이스 지느러미 부분의 중간 지점에 메스 블레이드와 척수의 측면 책자를 잘라.
- 렌즈에 침지 기름 한 방울을 놓습니다.
- 기록 챔버 그림 3의 슬롯에 폴리 라이신 코팅 커버 슬립 (그림 3a, 최고 조각, 빨간색 사각형)을 놓고 실을 용이하게하기 위해, 그림 3a에 빨간색과 파란색 사각형 사이에 (모든 가장자리에 공간을 진공 그리스를 적용합니다. 나사를 제자리에 가기는. 기록 장비의 삽입에 챔버를 놓습니다.
- 파스퇴르 피펫을 사용하여 기록 챔버로 링거액을 추가합니다.
- 열전 냉각 소자의 입력 튜브에 부동액을 함유하는 압력 병의 유출 배관을 연결한다. OUTP 연결외부 냉각 재킷의 입력단과 리저버도 3b에 출력 단부에 열전 냉각 소자의 UT 호스.
- 기록 챔버에서 한번에 척수 한장을 넣고 부드럽게 축삭 절연도 2E 및도 2F 전까지 테플론 코팅 된 포셉을 사용하여 항상 커버 슬립을 따라 유지 척수 분리.
- 기록 챔버도 3b의 외측 냉각 자켓을 통해, 열전기 냉각 장치를 통해, (변위) 부동액 가압 (병으로 밀어 질소 가스)를 통과함으로써 10 ° C로 기록 액 온도를 가져온다.
- 축삭은 10 ° C에서 1 시간 후 해리에 복구 할 수 있습니다.
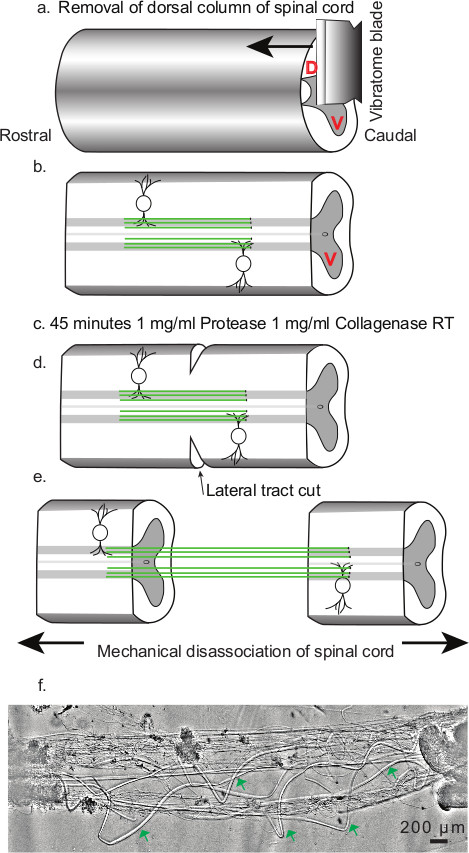
() 지느러미 열 제거. 화살표는 조직의 슬라이싱의 방향을 나타낸다. 알파벳 V (빨간색 글꼴 색)에 의해 복부 뿔. (b)는 지느러미 열이 reticulospinal 축색 돌기를 노출 척수의 중앙 부분에서 제거하는 동안 등쪽 뿔 (알파벳 D (빨간색 글꼴 색상)에 의해 녹색 선으로 표시된다 ). 슬라이스 처리 후 그대로 유지 복부 뿔이, 알파벳 V (빨간색 글꼴 색)으로 표시됩니다. (C) 단백질 분해 효소와 콜라게나 45 분 치료 칵테일 (1 ㎎ / ㎖)을 효소. 측면 책자의 (d)에 절단 척수; 위치, 방향 및 횡 방향의 절단 정도를 나타낸다. (E) 척수의 기계적 해리. 화살표는 집게와 분리시 분리 힘의 방향의 위치를 나타냅니다. (F) Representati해리 reticulospinal 축삭 준비의 예를했습니다. 녹색 화살표는 시냅스 과정없이 급성 해리 reticulospinal 축삭의 영역을 표시합니다.
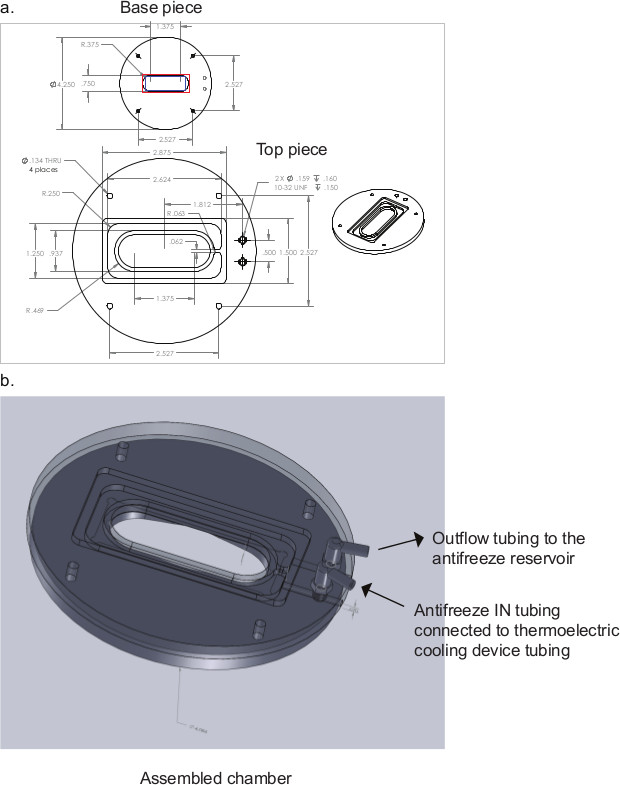
제공하는 전기 생리학 실험 챔버를 기록 그림 3 도식. 크기는 인치에 있습니다. basepiece 다이어그램 (a)에 도시 붉은 사각형 basepiece에서 커버 슬립 커버 슬립에 홈의 위치를 나타낸다. 높은 진공 그리스가 도포되는 경우 (a) basepiece 다이어그램에 도시 된 적색과 청색 사이의 사각형 영역이다. (b)는 조립 된 기록 챔버를 도시한다.
FM 1-43와 4 라벨링과 시냅스 터미널의 식별
- V로 FM 1-43을 통합하여, 시냅스 터미널 레이블높은 K + 탈분극 동안 시냅스 엑소 엔도 시토 시스 동안 esicles. (30 밀리미터의 KCl을 포함하는 5 ㎖의 링거액에) 5 μm의 FM 1-43로 준비를 관류.
- 1 밀리그램 준비를 관류 / ㎖ Advasep-7 (5 ㎖의 링거액에) 과잉 FM 염료) (18)를 제거합니다.
- 15 분은 어떤 remant 염료 및 Advasep을 세척하는 링거액과 함께 준비를 관류.
- 표준 형광 이미징 프로토콜을 사용하여 디지털 CCD 카메라와 화상 획득 소프트웨어 그런 경영자와 함께 반전 된 형광 현미경 (100)에 X 오일 침지 렌즈 (NA 1.25)를 가진 이미지.
- 그림 4C 및도 4D를 기록 대상으로 형광 표지 시냅스 터미널을 확인합니다.
고립 된 Reticulospinal 축삭의 5 면역 조직 화학
- 가의 이온 (칼슘과 마그네슘 2 +) 무료로 접시 삽입 (프로토콜 부분 2.10.)를 입력링거액.
- P-87 마이크로 피펫 풀러에 패치 피펫을 제작합니다. (실리콘 튜브보기 0.89 mm 흡입 단부에 부착 된 마이크로 피펫 팁 내경 사용) 패치 피펫 (1.5 mm 외경 유리) 및 흡입을 이용하여 폴리 리신 인셋의 일단에 봉합 접착제의 적은 양을 배치.
- 프로토콜 부 (3) 그림 2에서 언급 한 바와 같이. 동일한 절차를 사용하여 dissociations을 수행 표면에 강하게 부착 부드럽게 집게로 봉합 접착제 버튼을 누르세요 척수의 한쪽 끝을 놓습니다. 삽입의 다른 쪽 끝에서 봉합 접착제의 또 다른 드롭을 놓고 부드럽게 축삭이 분해 될 때까지 척추를 스트레칭하고 봉합 접착제 위에 부드럽게 끌어 무료 척수 끝을 준수합니다. 부드러운이 집게로 아래로 눌러 제자리에 고정합니다.
- 환율 2가 관류하여 일반 링거액과 링거액을 확보.
- 축삭은 20 분 후 dissoc에 복구 할 수10 ° C에서 iation.
- 20 분 동안 {인산 버퍼 식염수 (PBS, (MM)의 NaCl 137, KCl을 2.7 나 2 HPO 4 10, KH 2 PO 4 1.8, 산도 7.4)에서 제조} 4 % 파라 포름 알데히드 (PFA)에서 해리 축삭을 수정합니다. 0.2 μm의 주사기 필터를 통과하여 사용하기 전에 PFA 솔루션을 필터링합니다.
- 10 분 동안 (PBS)에 0.1 M 글리신을 관류하여 PFA를 씻으십시오.
- 10 분 동안 0.1 % (PBS)에 트리톤-X에 품어.
- 20 분 동안 PBS를 관류하여 씻으십시오.
- 4 ℃에서 6 시간 동안 (PBS)에 5 % 무 지방 우유를 차단합니다.
- 관심 VGCC 1 차 항체에 추가 (1 : PBS에서 200 희석)와 4 ℃에서 20 시간 동안 배양한다.
- 20 분 동안 PBS를 관류하여 씻으십시오.
- 4 ° C에서 10 분 동안 (PBS)에 5 % 무 지방 우유를 차단합니다.
- 이차 항체에 추가 (1 : PBS에서 400 희석)와 4 ℃에서 2 시간 동안 어둠 속에서 부화.
- 20 분 동안 PBS로 관류하여 씻으십시오.
- 1 % 소 혈청 Albu와 차단20 분 동안 (PBS)에 분.
- 알렉사 플 루어 488 phalloidin에 추가 (작업 농도 μL / 5 단위를 메탄올 200 단위 / ml의 제조 주).
- 20 분 동안 PBS로 관류하여 씻으십시오.
- 공 초점 현미경 100X 물 침지 렌즈를 사용하여 이미지.
(6) 전기 생리 녹화
- P-87 마이크로 피펫 풀러에서 알루미 노 실리케이트 유리 패치 피펫 (피펫 저항 2-5 MΩ)를 제작합니다. 피펫 팁은 전 시냅스 말단 직경을 포함하도록 설계 패치 피펫.
- PDMS (23)에 50 ~ 60 psi의 압력 하에서 패치 피펫을 침지시킴으로써 PDMS 코팅 패치 피펫 (패치 피펫의 백엔드에 질소 가스 실린더에 접속 된 실리콘 튜브, 0.89 mm의 내경을, 연결) 및 열을 이용한 드라이 총. 대안 적으로, 화합물 현미경 하에서 가능한 팁에 가까운 코팅을 적용 PDMS와 수동 코트 피펫.
- MICR를 사용하여 화재 폴란드어 패치 피펫oforge (복합 현미경의 무대에 장착 된 사용자 지정 내장 된 백금 필라멘트).
- 형광 현미경으로 표시된 시냅스 터미널을 보여 격리 된 축삭을 확인합니다.
- 레코딩 솔루션 작성, 주사기를 사용하여 패치 피펫으로 (칼슘 전류를 차단하도록 설계 전하 캐리어로 10 mM의 염화칼슘이 90 밀리미터 BaCl 2, HEPES pH를 7.6, 삼투압이 270 mOsm 버퍼).
- 전동 조작기의 MP225을 사용하여 목욕 위 피펫 홀더와 위치로 패치 피펫을 삽입합니다. 부드럽게 찬란 확인 시냅스 터미널의 얼굴에 대한 목욕 및 위치로 패치 피펫을 낮 춥니 다.
- 접촉이 막을 될 때까지 천천히 패치 피펫을 진행합니다. 이 시점에서, 피펫 홀더에 부착 된 튜브를 통해 부드러운 입 흡인 기가 옴 시일을 달성한다.
- 를 사용하여, 단일 채널 칼슘 전류를 기록하기 위해 필요한 극히 낮은 배경 잡음 레벨을 달성하기 위해,레코딩을위한 냉각 headstage와 xopatch (200B). 5 kHz의 베셀 필터를 사용하여 20 ~ 50 kHz 및 필터의 샘플 데이터입니다. X. Axograph를 이용하여 데이터 수집을 수행
- 자극 (10)과 같은 MV 증분 단계 표준 프로토콜을 사용한다. 칼슘 채널의 활성을 최대 보장하기 위해, 단계 프로토콜에 선행, 프로토콜 프리 펄스를 통합한다. 누설 전류의 사후 분석 감산하는 단계 프로토콜에 10 MV 누설 단계를 통합.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
이 해리 프로토콜 수익률 건강하고 기능적인 절연 reticulospinal 시냅스 돌기도 2 층의 결여 된 축삭, 그럼에도 불구하고 유발 시냅스 소포 엑소와 엔도 시토 시스의 그림 4C 및도 4D 할 수있는 기능 시냅스 터미널을 유지합니다. reticulospinal 축삭의 고립 된 지역의 섹션은 명확하게 reticulospinal 축삭 막 그림 2 층에 대한 무제한 액세스를 허용하는 다른 신경 프로세스 명확하게 광학 현미경에서 식별 할 수 있습니다. 축삭은 분리 후 구조적 무결성을 유지합니다. 고립 된 축삭은 전체 셀 구성에 패치와 알렉사 플 루어 488 하이 드라 자이드와 가득 차 있었다. 축삭없이 염료 누출 내에 균일하게 분산 염료는 축삭 그림 4a에서 관찰되었다.
/ftp_upload...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
우리의 해리 프로토콜은 시냅스 돌기도 2 층의없는 격리 된 reticulospinal 축색 돌기를 산출하여 중요하지만, 그럼에도 불구하고 기능적인 시냅스 단자도 4C 및도 4d를 유지한다. 시냅스 말단 대향 시냅스 프로세스의 부재는 이전, 중앙 시냅스 가능한 성공적 두 calyceal 연접 형 터미널에서 달성되지 단일 시냅스 말단에 연접 박리 얼굴 막에 직접 기록 액세스를 허용한다; 병아리 섬모 신경절 7-10 쥐 꽃받침 11, 12의 꽃받침 형 시냅스. 전자 현미경 사진 수준의 간단한 단일 활성 지역 (21)을 제공하는 것으로 나타났다 개별 시냅스 단말은 FM 1-43로 라벨링 재활용 소포 클러스터에 의해 식별되고, 기록도 4C 및도 4D의 대상이 될 수있다. 칼슘 까지 개별 시냅스 터미널 그림 4 층의 릴리스 얼굴 막에 기록...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 공개할 경쟁적인 재정적 이해관계나 기타 이해 상충이 없습니다.
감사의 글
이 작업은 NINDS, RO1NS52699 및 MH84874 to SA의 지원을 받았습니다.
면역조직화학 연구에 사용되는 봉합사 접착제를 제공해 주신 Dave Featherstone 박사(시카고 일리노이 대학교 생물학과)에게 감사드립니다. 마이클 알퍼트(Michael Alpert)의 논평과 원고 교정에 감사드립니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.2 & 마이크로; m 주사기 필터 | EMD Millipore | SLGV004SL | |
| 22 x 60 mm Coverslips | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 conjugated goat anti-rabbit secondary antibody | Invitrogen/Life Technologies | A21070 | |
| 부동액 | Prestone | ||
| 붕산 | Sigma-Aldrich | B7660 | |
| 소 혈청 알부민 | Sigma-Aldrich | A7906 | |
| 명시야 광원 | Dolan-Jenner | Fiberlite 180 | |
| 염화칼슘 | Sigma Aldrich | C4901 | |
| Cloristridium Histolyticum의 콜라겐 분해 효소 IA 형 | Sigma-Aldrich | C9891 | |
| 커버 슬립 | Fisher-Scientific | 12-545-J | |
| 포도당 | Sigma-Aldrich | D9559 | |
| 디지털 CCD 카메라 | Hamamatsu | C8484-03G01 | |
| 해부 미세 | 집게 미세 과학 도구 | 91150-20 | |
| 해부 집게 | 미세 과학 도구 | 11251-20 | |
| 해부 현미경 | Leica Biosystems | Leica MZ 12 | |
| 해부 가위 | 미세 과학 도구 | 15025-10 | |
| 해부 가위 미세 | 미세 과학 도구 | 91500-09 | |
| 해부 가위 초미세 | 미세 과학 도구 | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| 글리신 | 시그마 - 알드리치 | G7126 | |
| HEPES | 시그마 - 알드리치 | H7523 | |
| 고 진공 그리스 | 다우 코닝 | ||
| 염산 | Fisherbrand | SA-56-500 | |
| 침수 오일 | Fisher-Scientific | M2000 | |
| 산업용 질소 가스 탱크 | Praxair | UN1066 | |
| 곤충 핀 | Fine Science Tools | 26002-10 | |
| 액체 봉합사 접착제 | Braun Veterinary Cair Division | 8V0305 | 우리가 실험에 사용한 봉합사 접착제는 다른 실험실에서 제공되었습니다. 더 이상 제조되지 않습니다. 우리는 Aesculap (Ts1050071FP) |
| 염화마그네슘 | Sigma-Aldrich | M2670 | |
| 메탄올 | Sigma-Aldrich | 154903 | |
| 무지방 분유 | 세포 신호 기술 | 9999S | |
| P-87 마이크로 피펫 풀러 | Sutter Instruments | ||
| 파라 포름 알데히드 | Sigma-Aldrich에서 향후 사용을 위해 Histoacryl 봉합사 접착제를 공급했습니다. | P6148 | |
| 관류 펌프 | Cole-Palmer | Masterflex C/L | |
| 페트리 접시 100 x 15mm | Fisher-Scientific | 875712 | |
| 페트리 접시 35 x 10mm | Fisher-Scientific | 875712 | |
| Poly-D-lysine hydrobromide | Sigma-Aldrich | P1024 | MW > 300,000 |
| Potassium chloride | Sigma-Aldrich | P9333 | |
| 칼륨 인산 단일염기 | 성 Sigma-Aldrich | P5379 | |
| 기본 항체 R-타입 칼슘 채널 | Alomone Labs | ACC-006 | |
| 프로테아제 타입 XIV from Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| 메스 블레이드 | 세계 정밀 기기 | 500240 | |
| Schot Duran 압력 병 | Fisher-Scientific | 09-841-006 | |
| 접착제 도포용 실리콘 튜빙 | Cole-Palmer | 07625-26 | |
| 슬라이싱 베이스 플레이트 | Leica Biosystems | 14046327404 | |
| 슬라이싱 챔버 | Leica Biosystems | 14046230132 | |
| 염화나트륨 | Sigma-Aldrich | S7653 | |
| 수산화 | S8045 | ||
| 인산나트륨 이염기성 | 시그마-알드리치 | S9763 | |
| 소듐 테트라보레이트 | 시그마-알드리치 | B3545 | |
| 실가드 160 실리콘 엘라스토머 키트 | 다우코닝 | SYLGARD® 160 | 준비하려면 엘라스토머 A와 엘라스토머 B를 혼합하십시오 10:1 무게로 |
| Sylgard 184 실리콘 엘라스토머 키트 | Dow Corning | SYLGARD® 184 | 준비하려면 엘라스토머와 경화제를 중량 기준으로 10:1로 혼합 |
| 테플론 코팅된 펜치 | 파인 사이언스 툴 | 11626-11 | |
| 트리카인 메탄설포네이 | 트 시그마-알드리치 | A5040 | |
| 진동 블레이드 | 세계 정밀 기기 | BLADES | |
| 크세논 램프 | 니콘 |
참고문헌
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
