팔일 세 마우스의 신경 망막은 4 % 젤라틴 블록의 상단에있다. 에 vibratome에 의한 광 수용체 층 (200 μm의)의 분리 후, 광 수용체는 문화 기계 및 효소 분해 후 씨앗을 품고있다. 감광체 층은 분자량, 생화학 적 분석 또는 이식에 사용될 수있다.
이 논문에서
요약
초록
망막은 빛의 방향을 고려하여 망막에서 가장 먼 부분에서 망막 색소 상피, 감광체로부터 레이어 뉴런, 접촉 모두 봉과 콘 구조를 구성했다 중추 신경계의 일부이며 가장 인접 거리에있는 신경절 세포. 이 아키텍처에 vibratome 절편하여 감광체 층의 분리를 허용한다. 팔일 세 마우스의 해부 신경 망막은 평면 내장되어 아래로 향하게 20 % 젤라틴 광 수용체 층의 조각의 상단에 4 % 젤라틴에. 및에 vibratome 양날 면도날을 사용하여, 두께 100㎛의 내측 망막 구획된다. 이 섹션에서는 신경절 세포와 특히 양극성 세포 내부 층이 포함되어 있습니다. 광 수용체를 포함하는 외부 망막의 200 μm의가 복구되기 전에 15 μm의의 중간 부분은 삭제됩니다. 젤라틴은 37 ° C에서 가열에 의해 제거된다. 외부 층의 조각 incuba 있습니다37 ° C에서 20 분간 활성화 파파인의 2 대와 링거액 500 μL에 테드. 반응물 둘 베코 변형 이글 중간 (DMEM) 500 ㎕를 10 % 소 태아 혈청 (FCS)을 첨가하여 정지된다,의 DNase I의 물을 25 단위 혈청을 제거하고, 실온에서 원심 분리 전에 수회 세척 첨가하고, 세포를 재현 탁 500 DMEM의 μL 및 / cm 2 1 × 10 5 세포에 접종. 세포는 체외에서 오일로 성장하고 그들의 생존 라이브 / 죽은 분석을 사용하여 얻었습니다. 배양액의 순도는 제 실험 동안에 현미경 관찰에 의해 결정된다. 순도는 다음 파종 및 조직 학적 슬라이드에 세포를 고정하고 토끼 다 클론 항 SAG, 광 수용체 마커 및 마우스 단일 클론 항 RHO,로드 광 수용체 특정 마커를 사용하여 분석에 의해 확인된다. 대안 적으로, 감광체 층 (97 %로드)를 유전자 또는 단백질 발현 분석 및 이식에 사용될 수있다.
서론
망막은 척추 동물 중에서 보존 된 구조를 갖는 중추 신경계의 중요한 부분이다. 신경 망막 뉴런의 입사광, 눈 뒤쪽의 망막 색소 상피 (RPE)에 밀착 감광체 층으로 가장 먼, 레이어 구성된다. 로드와 콘 photorecptors 광자 캡처 옵신 민감한 분자에 의존 빛에 민감한 세포이다. 이들 분자는 RPE 하나의 방향으로 포인트 감광체의 외부 세그먼트에있는 세포의 구조의 디스크 멤브레인에 밀폐된다. 대부분 초기 감광체 변성증 가지 경우에 영향이 구조는, 매일 10 %의 비율로 경신된다. 소위 내층 감광체, 바이폴라, 무 축삭 세포 및 수평뿐만 아니라 신경절 세포로부터 수신 된 신호를 계산하는 다른 신경 세포의 대부분을 포함. 자신의 축삭과 후자의시신경입니다 빔을 형성한다. 이 레이어는 세포 내부 얼기 층 (2) 외부에서 발견되면 생물학 용어 난민 무 축삭 세포를 사용했을 정도로 보존이다. 신경 세포의 레이어 반경 뮐러 아교 세포의 뼈대 내에서 배포됩니다. 양극성 세포는 신경절 세포에 광 수용체를 연결합니다. 그들은 외부 얼기 층과 내부 얼기 층 사이에 위치하고 있습니다. 신경절 세포가 쌍극 세포에 관련 얼기 내부 층을 형성한다. amacrin 세포는 양극성 세포와 신경절 세포 사이의 내부 얼기 층에 위치한 협회 세포로 이름이 지정됩니다. 외부 망상 층은 수평 세포가 포함되어 있습니다. 중추 신경계의 뉴런 층의 독특한 배열을 이용하여에 vibratome 평평한 장착 망막 슬라이스하여 셀 내부 층으로부터 감광체 층의 분리를 허용한다.
원래이 기술 트란 용 감광체를 분리하는데 사용 하였다RD1 마우스, 인간 색소 성 망막염 (RP) (3)의 모델 눈 splantation. RD1 마우스로드 특정 포스 베타 서브 유닛에 대한 인코딩 Pde6b 유전자의 열성 돌연변이를 수행한다. 인간 4 RP에서이 유전자 결과의 열성 돌연변이. 로드 광 수용체가 퇴화 한 후, 환자는 야간 시력을 상실하고, 돌연변이 유전자를 발현하는 제 2 단계로 퇴화하지 놀랍게도 콘 광수. 콘을 색상 및 시력에 요구되기 때문에, 환자의 점진적 블라인드되고 질병에 대한 효과적인 치료법은 아직까지 개발되지 않았습니다. 야생형 마우스에서 호스트 마우스의 콘 변성 감광체 층 접목 3,5-를 지연된다. 봉과 바이폴라 셀 사이 시냅스 연결에만 R의 특정 단계에서 얻을 수 있기 때문에 콘로드 퇴행 모델에서 손실로드는 이식에 의해 대체 될 수 없었다NRL 식 (6)의 개시에 의해 표시 etinal 개발. 광 수용체 층은 RPE 및 광 수용체 나머지, 콘의 3 %에 대응하는 외측 망막 사이,로드리스 RD1 망막의 서브 공간에서 망막 수술로 도입된다. 두 주 수술 후, 통상 감광체 층 이식 동물에서 콘의 40 %, 또는 가짜 조작 동물 내 망막 세포의 정상 층 이식 동물에 비해 살아 남았다. 콘 생존의 토포 그래피는, 확산 - 아웃 그래프트 조직의 위치에 돌연변이 된 망막의 전체면은 보호 효과는 확산 성 분자 (7)에 의한 것을 나타낸다.
다음으로, 보호 효과가 봉 -8,9- 의한 단백질의 분비에 의존한다는 사실을 확인하는 공존 배양 시스템뿐만 아니라 조절 된 배양 배지를 사용했다. 우리는이 단백질이 EXPR됩니다 가설비 - 자율 방식으로 셀 (10)로부터 봉 보호 신호의 손실에 의해 보조 콘 변성을 발동 질환의 첫 번째 단계 동안 자신의 사망 봉 의해 연속적 것을 구체적 ESSID와. 때문에 영장류 콘 매개 중심 시력의 중요성이 추정 단백질은 RP에 대한 관련성이 높은 치료 도구가 될 것입니다. RP의 콘을 보존하는 것은 이론적으로 11 블라인드가 전 세계 150 만 명의 환자를 방지합니다. 우리는 망막 cDNA 라이브러리 (12)로부터 유래 콘로드 생존 인자 (RdCVF)을 코딩하는 cDNA를 식별하기 위해 고 함량의 스크리닝 방법 및 원뿔 - 농후 배양 모델을 사용했다. RdCVF은 흥미롭게 독스 13 항상성에 관여하는 단백질에 대한 티 오레 독신을 코딩하는 유전자 상동 NXNL1 유전자의 스 플라이 싱 산물이다. 유전자의 초 접합 생성물 RdCVFL은 타겟, 산화에 대해 D 타우 단백질을 보호 효소14 amage. RdCVF의 관리 콘의 2 차 변성과 열성에 자신의 시각 기능의 손실 및 RP 12,15의 지배적 인 모델을 방지 할 수 있습니다. 이 혁신적인 치료 전략 (16)의 두 가지 중요한 측면을 보여줍니다. 먼저, 유전자 독립적 인 방식으로 RP의 경우 대부분 적용될 수있다. 둘째, 경쟁 인자 반대로 CNTF, RdCVF 생존율은 시각 기능 (17)의 유지와 관련된다. 작용 효과의 부재는 RP 환자 18 CNTF의 투여 임상 효과의 부재의 이유를 설명 할 수있다. RdCVF는 체외에서 콘 구조가 RdCVF의 immunodepletion (12)에 의해 억제되어 있기 때문에로드와 콘 사이의 중요한 생존 신호의 한 가능성이 높습니다. 또한, 콘로드 유래 생존 유전자의 파괴는 산화 스트레스 장애 (19)에 대한 감수성과 감광체하도록 이끈다.
사용감광체 층 RdCVF의 식별 원점 20 및 신경 퇴행성 질환과 관련된 신규 독스 신호이다. 이 원고 분리와 감광체 층에서 배양 세포 RdCVF의 활성을 특성화하기 위해 사용되는 프로토콜을 설명한다. 감광체는 5-7일 21 배양 유지할 수있다. 이 기술은 감광체 특정 유전자의 발현을 연구 할 수있다.
프로토콜
참고 :이 절차는 대학의 피에르와 마리 퀴리 (/ 2009 / 048 CE5)에서 윤리위원회 다윈에 의해 승인
젤라틴 솔루션, 악기,에 vibratome, 문화 미디어와 문화 플레이트 1. 준비
- 이상의 실험 하루 전에 20 % 젤라틴 용액을 준비한다.
- 후드, CO 2 독립적 인 매체를 포함하는 500 ㎖의 병 (CO 2 -i)에 겐타 마이신 [10 ㎎ / ㎖] 500 μl를 추가합니다.
- 별도의 비이커에서 15 분 동안 일정하게 교반하면서 가열 블록에 95 ° C에서 열 (1.1.1)에서 CO2-I의 20 ㎖를 추가합니다. 이 솔루션은 추가 사용에 대한 준비가되어 있음을 나타내는 노란색으로 색 변화를 관찰한다.
- 황색 용액을 수득하기 위해, 45 분 동안 95 ℃에서 교반 및 가열을 증가와 함께 상기에서 조제한 용액 (단계 1.1.2)에 4 g의 젤라틴 서서히 빈약 무게. 젤라틴 용액은 아래를 냉각 시키약 5 분 동안 후드.
- 기포를 도입하지 않고 35mm 직경의 배양 접시에 젤라틴 용액 4 mL에 붓는다. 30 분 동안 21 ° C에서 접시를 유지합니다. 플라스틱 필름과 접시를 커버하고, 거꾸로 요리를 켭니다. 선택적으로, 사용하기 전에 최대 2 개월 동안 4 ° C에서 요리를 저장합니다.
- 4 % 젤라틴 용액을 준비합니다.
- 후드, 가열 블록에 42 ° C에서 CO 2 -i 멸균 플라스틱 용기 중간, 및 열 (25)를 가하여. 가열 블록에서 매체를 제거하고 점차 뜨거운 중간 파문에 젤라틴 1g을 추가합니다. 빠르게 가열 블록 (42 ° C)에 컨테이너를 반환하는 과정에서 따뜻하게.
- 설정 업에 vibratome 장치 :
- 4 ℃에서 보관 20 % 젤라틴 용액을 포함하는 요리를 제거합니다. 메스와 젤라틴을 잘라. 젤라틴 슬라이스를 뒤집고 (S)의 방울을 사용에 vibratome의 블랙지지 디스크에 붙여오일이 접착제.
- 두 반으로 면도날을 휴식하고에 vibratome 잡고 콘센트에 절반을 삽입합니다. 에 vibratome 장치 상에 검은 지원 디스크를 삽입합니다. 오른쪽에 검은 색 조절기의 전원을 켭니다. 에 vibratome의 머리에 들고 콘센트를 고정합니다. 젤라틴 블록을 커버하기에 vibratome 탱크 CO 2 -i 매체의 충분한 양을 첨가하는 것이 바람직하다.
- 에 vibratome에 스위치 및 젤라틴 블록의 세 100 μm의 조각을 잘라. 추가 사용에 대한 젤라틴 블록을 유지합니다.
- 배지 40㎖의 준비 :
- 후드 소 태아 혈청 (FCS)의 10 % 둘 베코 변형 이글 배지 (DMEM)를 준비한다. 1 ㎎ / ㎖ 폴리 D 라이신 사용하여 인산 완충 식염수 (PBS)의 pH 7.4을 준비합니다.
- 96- 웰 플레이트에 코팅하는 웰의 바닥을 폴리 D 라이신 2 ㎍ / cm (2)를 추가한다. 5 % CO2 인큐베이터 내에서 37 ° C에서 45 분 동안 플레이트를 인큐베이션. 배양 후, PBS를 제거하고 200 μL로 교체/ 사용하기 전에 5 % CO 2 배양기에서 37 ° C에서 다시 잘 DMEM과 장소.
전체 망막 2. 해부
- 마우스를 명백히하다 :
- 유럽 지침 63분의 2,010에 따라 마우스를 희생 : 자궁 전위에 의해. 곡선 가위로 머리를 잘라 살균제로 눈을 소독 한 후 100mm 직경 페트리 접시에 넣습니다.
- 매우 신중하게 곡선 그립을 사용하여 단면에 의해 시신경을 분리 한 후 눈을 제거합니다. 그런 다음 21 ° C에서 멸균 CO 2 -i 매체를 포함하는 35mm 페트리 접시에 두 눈을 놓습니다.
- 망막 제거 :
- 눈 글로브에 가위를 소개 할 수있는 18 G 바늘의 도움으로 눈 사지의 수준에 구멍을 만듭니다. 홀 내부 직선 가위를 소개하고주의 깊게 모양체를 제거하는 안구 세계의 모든 경계에 홍채 아래의 공막을 잘라.
- 각막과 렌즈를 제거하고 인공 수정체 망막 연속으로 눈의 후방 챔버를 유지합니다. 두 좋은 그립으로, 망막에 손상을주지 않고 후방 챔버 내부에있는 유리체를 제거합니다. 망막의 평탄화 수 있도록 네 개의 방사형 인하 (망막 / 공막)을 수행합니다.
- 안구 세계를 전복하고 "오렌지"로 껍질. 공막과 망막 색소 상피 (RPE)에서 망막을 분리합니다. 여전히 시신경의 수준 매우 신중하게 괜찮 곡선 가위에 부착 된 망막을 분리합니다.
- 두 미세 그립 망막의 가장자리로부터 중앙을 향하여 잔류 유리체를 분리. 모든 유리체가 완전히 망막의 평탄화 할 수 있도록 제거되어 있는지 확인합니다.
- 플라스틱 피펫의 사지를 잘라 플라스틱 피펫 CO 2 -i 매체를 포함하는 지름 35 mm 페트리 접시에 망막을 전송합니다.
플랫 mounte 3. 씰링젤라틴 블록 위에 D 망막
- 평면 탑재 망막의 밀봉을 허용하도록에 vibratome 탱크 (젤라틴 블록은 무료입니다)에서 CO 2 -i 매체의 30 ml의 - (20)를 제거합니다.
- 플라스틱 피펫을 사용하여 유리 슬라이드에 망막을 전송하고 2 -i 매체 젤라틴 조각에 아래로 향하게 광 수용체와 젤라틴 슬라이스로 전송하기 전에 CO의 드롭을 추가합니다.
- 부드럽게 반대편에 따뜻한 젤라틴 추방 동시에 망막과 젤라틴 블록 사이에 블록의 일측에 가온 4 % 젤라틴을 주입하여 젤라틴 블록 망막 첨부.
- 파스퇴르 피펫 대기음 4 % 젤라틴. 총 밀봉 할 수 있도록 10 분 동안 기다립니다. 블록과 완전히 블레이드 젖어 CO 2 -i 매체를 추가합니다.
4. 망막을 단면
참고 :이 단계는 다른 망막 세포없이 광 수용체 세포의 층을 얻는 것이 중요하다 (그림 1).
- 젤라틴 블록의 상단에서 시작, 망막에 도달하는 100 μm의 시리얼 부분을 잘라. 내부 층의 120 μm의 섹션 - 그럼 100를 잘라. 응용 프로그램에 따라이 층은 폐기 될 수도 있고, 액체 질소에 저장된다. 에 vibratome의 속도가 내부 층 또는 광 수용체 층의 단면 중 (1 또는 2에) 매우 느린 있는지 확인하십시오.
- 내측 및 외측 망막 사이의 인터페이스에 대응하는, 망막의 중간 15㎛의 부분을 수행한다. 현미경이 부분을 관찰한다. 혈관의 부재는 외측 망막에 도달했음을 나타낸다.
- 젤라틴과 외측 망막이 200㎛ (감광 층)을 잘라내어이를 CO 2 -i 배지 3 ㎖ 가득 지름 35 mm 접시에 옮긴다. 모든 망막의 모든 광 수용체 층 부분을 얻을 때까지 얼음에 보관하십시오.
5. 해리 광 수용체 세포
- (접시를 타고ES) 감광 층 (들)를 함유하고 10 분 동안 37 ℃ 배양기에서 (그들)을 넣어.
- 사용 포셉 부드럽게 젤라틴 감광 층을 분리하고 링거액 3 ㎖로 채워진 새 접시에 옮긴다. 각각의 광 수용체 층 준비를 위해이 단계 (5.2)를 반복합니다.
- 5 ml의 폴리 프로필렌 멸균 튜브에 5 % CO 2 배양기에서 37 ° C에서 그것을 30 분을 품어 (60 μM의 β-머 캅토 에탄올; 5.5 MM의 L - 시스테인 1.1 mM의 EDTA) 활성제 용액 25 μL와 파파인의 2 대를 품어 . 파파인의 활성화는 37 ° C에서 달성된다. 이 부화하는 동안, (너무 작은되지 않음) 2mm 2 조각으로 광 수용체 층을 절감하고 5 ml의 튜브에이 조각을 전송합니다.
- 중력 침강 다음 솔루션 링거액의 1.5 ml로 두 번 망막을 씻어. 시편과 튜브에서 남아있는 모든 링거액을 제거합니다.
- 활성화 파파인과 믹스가 들어있는 튜브에 링거액의 475 μl를 추가합니다. 망막을 포함하는 튜브에이 솔루션을 추가합니다.
- 5 % CO2 인큐베이터 내에서 37 ° C에서 20 분 동안 함께 망막 튜브 인큐베이션. DMEM 중 10 % FCS 1 ㎖를 첨가하여 반응을 정지. 죽음의 세포에서 소화 DNA에 데 옥시 리보 뉴 클레아 제 25 U I (의 DNase I)를 추가합니다. 조심스럽게 한 ML-피펫을 사용하여 세포 현탁액을 균질화시킨다. 실온에서 6 분 50 XG에 스핀.
- 혈청의 흔적을 제거하고 세포 펠렛 (특정 reagents_equipment의 표 참조) 보충과 DMEM 매체를 추가하고 조심스럽게 1 ML의 피펫 세포 현탁액을 재현 탁하는 상층 액을 제거한다. 실온에서 6 분 50 XG에 스핀. 이 단계 (5.7) 한 번 더 반복합니다.
6 배양 광 수용체 세포
- PN8에서 마우스의 광 수용체 층은이 기술을 사용하는 방법에 대한 1-1500000 세포가 포함되어 있습니다. 1 시각 세포 종자× 10 5 세포 / 문화 매체와 문화 5 % CO 2 배양기 내에서 37 ° C에서 5 일 동안 세포 배양 용기에 cm 2. 5 일에, 면역 화학 및 항체 공급 업체가 제공 서부 블로 팅 연구 다음과 같은 방법으로 진행.
참고 : 단계 문화를 중지하고 예비 시험 기준 (21)에 설명되어 있습니다.
결과
그렇다 이식에서, 감광체 층은 감광체 배양 12,22 만들기 위해 세포를 파종하여 세포 신호 전달을 연구하기 위해 사용되었다. 또한, 그들은 유전자 발현과 일주기 리듬 (23, 24)을 연구하는 데 사용됩니다. 우리는 5 %도 1E CO 2 (가진 배양기에서 37 ° C에서 5 일 동안 세포를 FCS의 부재 감광체 배양 물을 제조 출생 후 8 일째에 야생형 마우스에서 셀 감광체 층을 사용하고 유지하고 ). 세포를 4 % paraformadehyde를 사용하여 고정 다음 중 하나를 마우스 단일 클론 항 RHO와 항체 공급 업체에서 제공하는 방법을 사용하여 면역 세포 화학 분석을 진행 하였다 (1 : 250, 밀리 포아 Mab5316) 또는 토끼 다 클론 항 SAG (1 : 200, 관대 이갈 GERY와 데이비드 힉스)의 선물. 우리는 사용 방지 RHO 및 안티 SAG (비록 안티 SAG 라벨 콘로드) 안티 SAG 안티 RHO보다 이전 마커이라고 때문이. CEL의 비율안티 RHO 항체 양성 LS는 안티 SAG 항체 (도 2) 양성보다 낮다. 이것은 SAG가로드 아레스도 망막 산후 성숙 중에, SAG의 발현이 그 선행한다는 사실에 의해 대안 적으로 절연 층의 감광체의 3 %를 만들거나, 원뿔로 표현한다는 사실에 의해 설명 될 수있다 RHO (25), (26)의.
감광 층은 또한 RNA는 CsCl과 초 원심 분리 (27)를 사용하여 제조 및 마우스 DNA 칩 어레이에 혼성화 삼십오일 세 동물의 야생형 망막과 뇌의 감광체에 의해 유전자의 특이 적 발현을 모니터링하기 위해 사용되었다. 뇌 (그림 3A)에 비해 로돕신의 사자 (은 Rho)는, S-아레스 (처짐) 및 콘 transducin (Gnat2)은 망막에 구체적으로 표현된다. 표현은 포함 전체 망막에 비해 광 수용체 층 (PR)에서 눈에 띄는입니다내부 망막 층이 유전자가 광 수용체에 의해 실제로 표현되는 것을 보여. Gnat2 내용은 Rho 처짐에 비해 상대적인 발현 그것이 감광체 절연 층 내에 포함 된 콘에 의해 발현되는 것을 보여준다. 전체 망막에 비해 감광체 층의 recoverin의 식 (Rcvrn)은 (도 3B) 증가된다.
감광 층은 또한 RHO 및 GNAT2는 항체 공급자에 의해 제공된 방법에 따라 웨스턴 블롯을 사용하여 발현을 모니터링하고 망막 내층 (도 4)과 비교하기 위해 사용되었다. 전체 망막 및 산후 35 일에 RD1 마우스의 망막에 각각 RHO 및 GNAT2 (28), 막대 세포와 원추 세포의 마커가 없음을 알 수 있습니다.
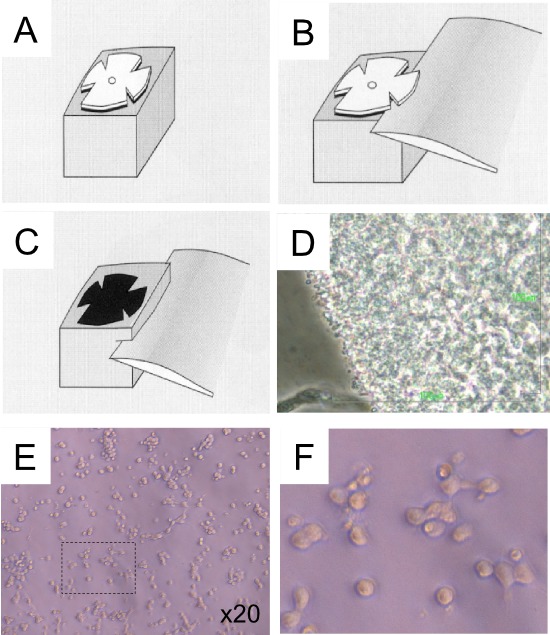
인터넷gure 1. 마우스 망막에 vibratome의 단면의 개략도. 에 vibratome 블레이드와 내부 망막의 (A) 젤라틴 조각에 아래로 향하게 광 수용체와 평면 탑재 망막의 설치. (B) 섹션을 참조하십시오. 외부 망막의 (C) 섹션은 젤라틴의 추가.의 (D) 제어 감광체 층의 분리 후 망막의 단편의 에지에서 감광체의 존재. 녹색 형광에 사용되는 스케일 바는 흰색 빛 현미경 사용됩니다. 광 수용체는 그림의 가장자리에 위치하고 있습니다. (E) 배양 광 수용체 세포 (후 5 일). (F) 패널 E.의 높은 배율
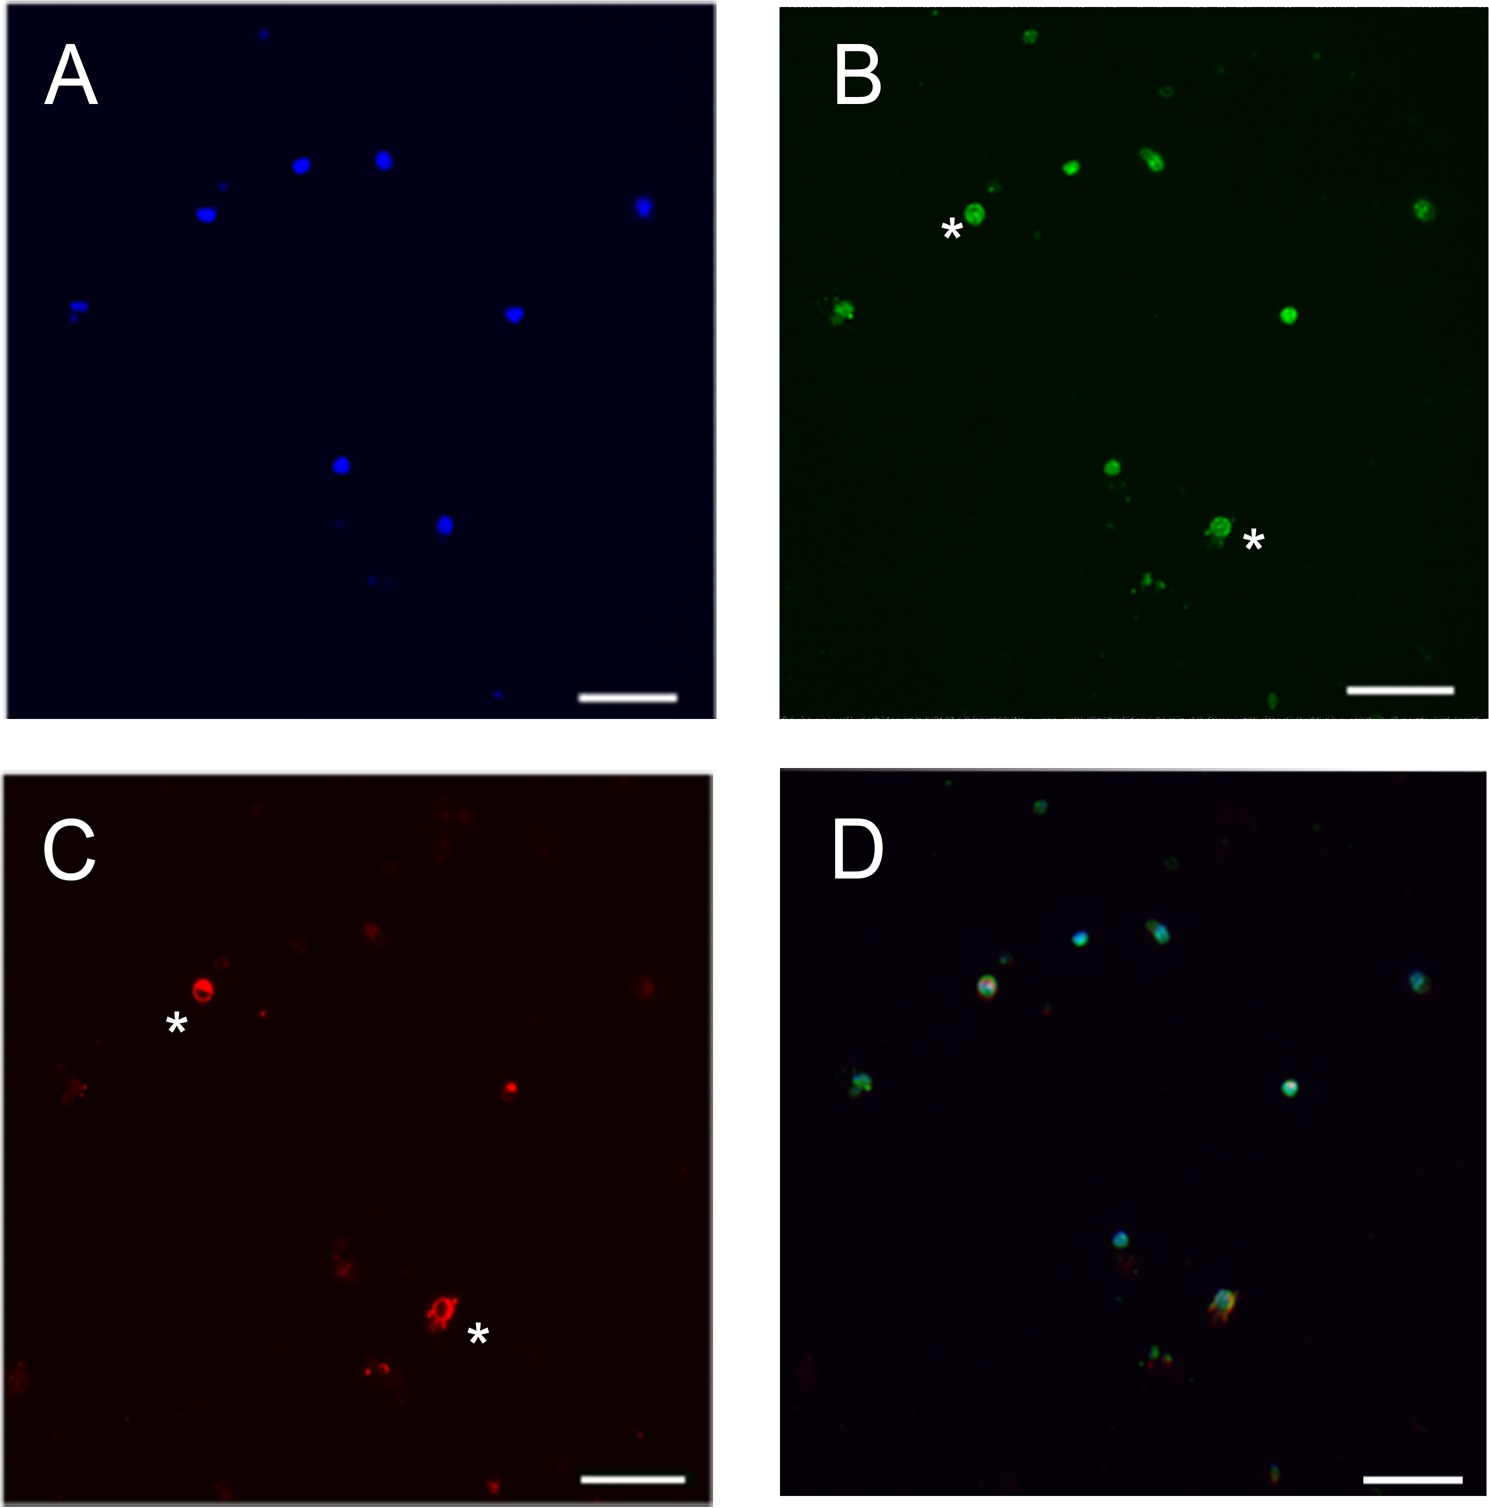
마우스의 광 수용체 문화 RHO 및 SAG 그림 2. 차동 식입니다. 핵의 (A) 염색 (블루), (B) SAG 염색 (녹색), (C) RHO 염색 (적색). (D)는 화상을 병합. SAG의 염색 이전 RHO 염색보다 표현되기 때문에, 두 개의 세포가 두 번 SAG와 RHO (참조 *)를 표시되어 있습니다. 스케일 바 :. 23 μm의 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
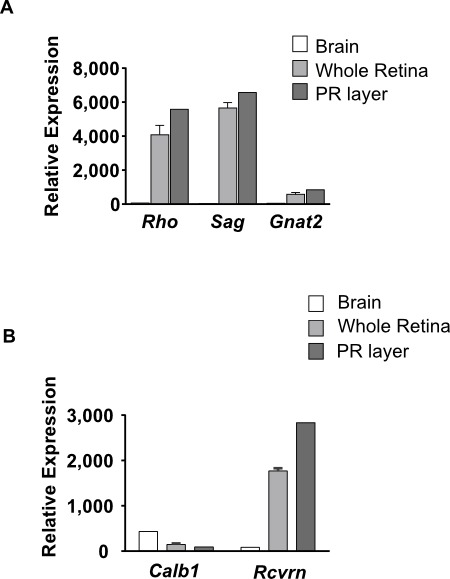
뇌와 전체 망막 및 삼십오일 세 야생형 동물의 광 수용체의 세 가지 유전자의 발현 3. 비교 그림. (A) 로돕신 (은 Rho), S-아레스 (처짐) 및 콘 transducin (Gnat2). (B) Calbindin (Calb1)과 Recoverin (Rcvrn). 데이터는 상대 식으로 표시됩니다. 상대 표현은 표현 값입니다KBaSS (http://kbass.institut-vision.org/KBaSS/) 지식 데이터베이스에서 사용할 수있는 소프트웨어 강력한 멀티 어레이 평균 (RMA)와 normaliszation 후 마이크로 어레이 데이터에서 얻을.

내부 망막 및 산후 35 일 ACTB, 베타에서 RD1 마우스의 망막에서의 표현의 산후 35 일 부재에서 야생 형 망막에서 외부 망막 RHO과 GNAT2 그림 4. 표현 액틴. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
망막은 생물학 모델 기관이다. 망막의 연구는 생물학 (6) 주요 발견되었다. 그것은 제 종양 억제 유전자 RB1의 원점이다. 그것은 sevenless 놈과의 상호 작용을 통해 수용체 티로신 키나제 및 MAP 키나제 분자 사이의 링크를 보여준다. 그것은 PAX6, 장기 형태 형성 용 제 마스터 제어 유전자의 발견에 참여했다. 또한, 연령 관련 황반 변성 (AMD)과 보체 인자 H (CFH)의 유전 적 관계의 중심에 연관 게놈 와이드 스크린 (GWAS)에 의해 식별 된 제 질환 감수성 유전자이다. 마지막으로, 선천성 흑내장 Leber 씨위한 최초의 성공적인 유전자 치료에지도, 임의의 인간의 제 교정 유전자 치료 시험은 유전 질환. 이 기관의 구조는 대부분의 척추 동물 종 보존된다. 생체 내에서 조작에 대한 접근성 센트의이 중요한 부분에 기능 유전체학 조사에 일찍 격려했다신경계를 RAL.
우리는에 vibratome 절편에 의해 망막 층 안쪽으로부터 감광 층을 분리하는 방법을 여기에 나타낸다. 이 단계는 순수한 시각 문화를 획득하는 것이 중요합니다. 우리의 해부 프로토콜은 망막 색소 상피 세포에 의한 오염이 발생할 가능성이 매우 희박하다.
주요한 과제 중 하나는 부 적절 내측 및 외측 망막에 필요한 망막의 평탄화이다. 망막의 절편은 설치류에서 그 작은 직경의 망막에 최선이며,이 직경은 현재 사용 가능한 물질과 기술의 한계입니다.
이는 망막 샘플 연습, 생물학적으로 의미있는 실험을 시작하기 전에 적당하다. 우리의 mRNA 및 단백질의 발현 양 학습을 수행하는 재료를 이용하여, 감광체 배양 세포로부터 얻어진 대표적인 결과에 의해 방법을 도시한다. 발현 연구는 또한 SECTIO 번갈아 수행 될 수있다NS 레이저 캡처 미세 절제 의해 수득 배양 최선에 vibratome 절편을 사용하여 수행된다. 우리는 완전히 다른 전략을 미세 절제 레이저의 기술을 사용할 수 있었다. 그러나, 배양 미세 절제 장치와 감광체 층을 수집하기 위해서는, 정착액을 방지 할 필요가있을 것이며, 이로 인해 현재의 방법론을 복잡하게한다.
우리는 색소 성 망막염의 모델에서 광 수용체의 변성시에 vibratome 섹션의 유전자 및 단백질 발현의 동역학을 연구하기위한 프로토콜을 개발하고있다. 우리는 프로토콜의 상세한 설명은 망막 생물학 분야의 연구에 유용하고, 특히 가장 단백질체 및 대사 체 연구 것이라고 믿는다.
공개 사항
저자는 공개할 것이 없습니다.
감사의 글
Igal Gery와 David Hicks는 항 SAG 항체를 제공합니다. 원고를 읽어준 Ram Fridlich.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 시티딘 5&프라임;-디포스포콜린* | 시그마-알드리치 | C0256 | 4.7 &마이크로; M 시티딘 5&프라임;-디포스포콜린 |
| 시티딘 5&프라임;-디포스포에탄올아민* | 시그마-알드리치 | C0456 | 2.7 &마이크로; M 시티딘 5&프라임;-디포스포에탄올아민 |
| 리놀&이울; c 산 / 소 혈청 알부민 (BSA) * | 시그마 - 알드리치 | L8384 | 100 &마이크로; g/ml 리놀ï c 산 / 소 혈청 알부민 (BSA) |
| 트리 요오도 -L- 티로닌 * | 시그마 - 알드리치 | T6397 | 0.03 &마이크로; M Triiodo-L-thyronine |
| 96-well plates | Greiner bio-one | 655-095 | |
| 쌍안 현미경 | Leica | MZ-75 | |
| CO2 independent (CO2-i) | Life Technologies | 18045054 | |
| DMEM Life Technologies | 41966029 | ||
| Forceps n° 5 Dumont | Bionic | 11254-20 | |
| 젤라틴 포르신 스킨 타입 A | Sigma-Aldrich | G2500 | |
| GeneChip | Affymetrix | U74v2 | |
| 겐타마이신 용액 | Life Technologies | 15710049 | |
| Hydrocortison* | Sigma-Aldrich | H0888 | 0.55 µ M 하이드로 코르티슨 |
| 인슐린 * (I) | 시그마 - 알드리치 | I1884 (ITS) | 0.86 &마이크로; M 인슐린 (I) |
| Papain | Worthington-biochem | WOLS03124 | |
| Poly-D-lysine | Sigma-Aldrich | P-6407 | |
| 프로게스테론* | Sigma-Aldrich | P7556 | 2.0 &마이크로; M 프로게스테론 |
| 프로스타글란딘* | 시그마-알드리치 | P5172 | 0.28 &마이크로; M 프로스타글란딘 |
| 푸트레신* | 시그마-알드리치 | P5780 | 182 &마이크로; M putrescine |
| 메스 Albion | EMS | 72000 | |
| 가위 | Moria | 15396-00 | |
| 나트륨 피루브산 | Sigma-Aldrich | S8636 | 1 mM 나트륨 피루 |
| 브 산염 나트륨 아 셀렌 산 * (S) | Sigma-Aldrich | I1884 (ITS) | 0.29 µ M Na2SeO3 (들) |
| 타우린* | 시그마-알드리치 | T8691 | 3 mM 타우린 |
| 트랜스페린* (T) | 시그마-알드리치 | I1884 (ITS) | 0.07 &마이크로; M 트랜스페린 (T) |
| 진동 장치 | Leica | VT1000-S | |
| * 보충제 |
참고문헌
- The Organization of the Retina and Visual System. Webvision. Kolb, H., Nelson, R., Fernandez, E., Jones, B. , (2014).
- Perez De Sevilla Muller, L., Shelley, J., Weiler, R. Displaced amacrine cells of the mouse retina. J Comp Neurol. 505 (2), 177-189 (2007).
- Mohand-Said, S., et al. Photoreceptor transplants increase host cone survival in the retinal degeneration (rd) mouse. Ophthalmic Res. 29 (5), 290-297 (1997).
- Daiger, S., Sullivan, L., Bowne, S. RetNet, the Retinal Information Network. , The University of Texas Health Science Center. Houston, TX. Available from: https://sph.uth.edu/retnet (2014).
- Mohand-Said, S., Hicks, D., Dreyfus, H., Sahel, J. A. Selective transplantation of rods delays cone loss in a retinitis pigmentosa model. Arch Ophthalmol. 118 (6), 807-811 (2000).
- MacLaren, R. E., et al. Retinal repair by transplantation of photoreceptor precursors. Nature. 444 (7116), 203-207 (2006).
- Yang, Y., et al. Transplantation of photoreceptor and total neural retina preserves cone function in P23H rhodopsin transgenic rat. PLoS One. 5 (10), (2010).
- Mohand-Said, S., et al. Normal retina releases a diffusible factor stimulating cone survival in the retinal degeneration mouse. Proc Natl Acad Sci USA. 95 (14), 8357-8362 (1998).
- Fintz, A. C., et al. Partial characterization of retina-derived cone neuroprotection in two culture models of photoreceptor degeneration. Invest Ophthalmol Vis Sci. 44 (2), 818-825 (2003).
- Cronin, T., Leveillard, T., Sahel, J. A. Retinal degenerations: from cell signaling to cell therapy; pre-clinical and clinical issues. Curr Gene Ther. 7 (2), 121-129 (2007).
- Wright, A. F. A searchlight through the fog. Nat Genet. 17 (2), 132-134 (1997).
- Leveillard, T., et al. Identification and characterization of rod-derived cone viability factor. Nat Genet. 36 (7), 755-759 (2004).
- Lillig, C. H., Holmgren, A. Thioredoxin and related molecules--from biology to health and disease. Antioxid Redox Signal. 9 (1), 25-47 (2007).
- Fridlich, R., et al. The thioredoxin-like protein rod-derived cone viability factor (RdCVFL) interacts with TAU and inhibits its phosphorylation in the retina. Mol Cell Proteomics. 8 (6), 1206-1218 (2009).
- Yang, Y., et al. Functional cone rescue by RdCVF protein in a dominant model of retinitis pigmentosa. Mol Ther. 17 (5), 787-795 (2009).
- Bennett, J. Strategies for delivery of rod-derived cone viability factor. Retina. 25 (8 Suppl), S47(2005).
- Komaromy, A. M., et al. Transient photoreceptor deconstruction by CNTF enhances rAAV-mediated cone functional rescue in late stage CNGB3-achromatopsia. Mol Ther. 21 (6), 1131-1141 (2013).
- Birch, D. G., Weleber, R. G., Duncan, J. L., Jaffe, G. J., Tao, W. Randomized trial of ciliary neurotrophic factor delivered by encapsulated cell intraocular implants for retinitis pigmentosa. Am J Ophthalmol. 156 (2), 283-292 (2013).
- Cronin, T., et al. The disruption of the rod-derived cone viability gene leads to photoreceptor dysfunction and susceptibility to oxidative stress. Cell Death Differ. 17 (7), 1199-1210 (2010).
- Leveillard, T., Sahel, J. A. Rod-derived cone viability factor for treating blinding diseases: from clinic to redox signaling. Sci Transl Med. 2 (26), 26ps16(2010).
- Fontaine, V., Hicks, D., Dreyfus, H. Changes in ganglioside composition of photoreceptors during postnatal maturation of the rat retina. Glycobiology. 8 (2), 183-190 (1998).
- Fontaine, V., Kinkl, N., Sahel, J., Dreyfus, H., Hicks, D. Survival of purified rat photoreceptors in vitro is stimulated directly by fibroblast growth factor-2. J Neurosci. 18 (23), 9662-9672 (1998).
- Reichman, S., et al. The homeobox gene CHX10/VSX2 regulates RdCVF promoter activity in the inner retina. Hum Mol Genet. 19 (2), 250-261 (2010).
- Sandu, C., Hicks, D., Felder-Schmittbuhl, M. P. Rat photoreceptor circadian oscillator strongly relies on lighting conditions. Eur J Neurosci. 34 (3), 507-516 (2011).
- Dorrell, M. I., Aguilar, E., Weber, C., Friedlander, M. Global gene expression analysis of the developing postnatal mouse retina. Invest Ophthalmol Vis Sci. 45 (3), 1009-1019 (2004).
- Brooks, M. J., Rajasimha, H. K., Roger, J. E., Swaroop, A. Next-generation sequencing facilitates quantitative analysis of wild-type and Nrl(-/-) retinal transcriptomes. Mol Vis. 17, 3034-3054 (2011).
- Delyfer, M. N., et al. Transcriptomic analysis of human retinal surgical specimens using jouRNAI. J Vis Exp. (78), (2013).
- Ying, S., et al. A CAT reporter construct containing 277bp GNAT2 promoter and 214bp IRBP enhancer is specifically expressed by cone photoreceptor cells in transgenic mice. Curr Eye Res. 17 (8), 777-782 (1998).
재인쇄 및 허가
