여기서는 마우스 난자 감수 스핀들 어셈블리 및 조직을 평가하기 위해 면역 분석 하였다 특정 된 siRNA 매개 mRNA의 파괴를위한 프로토콜을 제시한다. 이 프로토콜은 성적 증명서의 체외 고갈과 다른 스핀들 및 / 또는 난자에 MTOC 관련 요인의 기능 평가에 적합합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
이 논문에서
요약
초록
배우자의 감수분열 중 염색체 분리 오류는 이수성으로 이어질 수 있으며, 이는 나중에 수정 시 배아로 전달됩니다. 발달 중인 배아에서 발생하는 이수성은 임신 상실 및 다운 증후군과 같은 선천적 선천적 결함의 주요 원인으로 인식되고 있습니다. 정확한 염색체 분리는 미세소관 방추체 장치의 형성에 결정적으로 의존하지만, 이 과정은 포유류 난모세포에서 잘 이해되지 않고 있습니다. 흥미롭게도, 감수분열 방추체 조립은 유사분열과 다르며, 적어도 부분적으로는 독특한 미세소관 조직 센터(MTOC)에 의해 조절됩니다. MTOC 관련 단백질의 평가는 감수분열 방추체 형성 및 조직을 지배하는 조절 메커니즘에 대한 귀중한 통찰력을 제공할 수 있습니다. 여기에서는 siRNA 매개 접근법을 사용하여 기능을 테스트하기 위해 마우스 난모세포를 분리하고 MTOC 관련 단백질을 고갈시키는 방법을 설명합니다. 또한 감수분열 방추체 형성 및 조직을 평가하기 위해 난모세포 고정 및 면역형광 분석 조건을 설명합니다.
서론
감수 분열은 생식 세포 (난자와 정자)에서 발생하고 감수 분열-I 및 감수 분열-II, 각각 1시 상동 염색체와 자매 염색 분체를 분리하는 DNA 합성을 개입하지 않고 두 개의 연속 부문을 포함하는 고유의 분할 과정이다. 난자의 감수 분열시 염색체 분리의 오류 수정시 배아 상속 이수성,이 발생할 수 있습니다. 특히, 개발 배아의 염색체의 발생률은 산모의 나이 발전과 함께 증가하고 여성 1,2 임신 손실뿐만 아니라 선천성 기형아 출산의 주요 원인이며, 따라서, 감수 분열시 염색체의 분자 기초를 이해하는 중요한 필요성을 강조 .
세포 분열시 염색체 분리 반대 스핀들에 올바른 부착에 대한 미세 소관 스핀들 장치 및 안정적인 염색체 미세 소관의 상호 작용의 설립의 조립에 결정적으로 의존극. 중요한 것은, 포유 동물 난자의 감수 스핀들 형성은 체세포에서 유사 분열과 다른, 독특한 미세 소관 조직 센터 중심 소체 3,4 부족 (MTOCs)에 의해 조절된다. 미세 소관의 핵 및 조직에 필요한 필수 단백질은 미세 소관의 조립을 촉매 γ-tubulin에 포함 난자 MTOCs에 지역화. 또한,도 5에 결합 MTOCs 필수적인 비계 단백질로서 기능하고 앵커 γ-tubulin에뿐만 아니라 다른 요인 pericentrin. 특히, 우리의 연구는 키 MTOC 관련 단백질의 고갈이 감수 스핀들 조직을 방해 완전히 스핀들 조립 검사 점 (SAC) 6,7에 의해 해결되지 않은 난자의 염색체 분리의 오류에 이르게 것을 보여줍니다. 따라서, 감수 체포를 유발하지 않는 스핀들 안정성 결함은 염색체 이수성에 기여에 상당한 위험을 초래할. 스핀들 조립 및 조직, 난자 MTOC의 제자에서의 중요한 역할에도 불구하고EIN 구성과 기능을 제대로 이해 남아 있습니다.
곧 세포의 감수 분열 8,9 재개하기 전에 정지 될 전사적으로 포유류 난자 특정 표적 단백질의 기능을 시험하는 것은 도전적이다. 따라서, 사전 배란 된 난자는 감수 분열을 재개 모성 mRNA의 저장에 의존 감수 분열뿐만 아니라, 시비 10, 11 후 첫 번째 분열 부문을 지원합니다. 포유류의 난자에서 mRNA의 성적 증명서의 RNA 간섭 (RNAi의) 중재 저하의 효능은 잘 확립되어 감수 성숙하는 동안 번역 모집 산모의 RNA는 siRNA를가 12-14을 목표로, 특히 의무가 있습니다. 따라서, 난 모세포에 짧은 간섭 RNA를의 미세 주입 (siRNA를)은 기능 테스트를위한 대상의 mRNA를 고갈 가치있는 접근 방법을 제공합니다.
여기, 우리는 마우스 난자 특정 transcri의 siRNA를 매개 고갈의 분리를위한 방법을 설명PTS는 pericentrin, 필수 MTOC 관련 단백질의 기능을 테스트합니다. 또, 난자의 감수 스핀들 형성을 평가하기 위해 면역 분석 조건을 설명한다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
이 프로토콜은 조지아 대학의 기관 동물 관리 및 사용위원회 (IACUC)에 의해 승인되었다.
1. 준비
- 갓 난자 문화, 구매 또는를 들어 최소 필수 중간 (MEM)를 준비하고 표 1에 설명 된대로 3 ㎎ / ㎖ 소 혈청 알부민 (BSA)과 보완. (제로 용기)로드 밸런스에 폴리스티렌 병을 놓습니다. 위해, BSA를 제외한 모든 시약을 추가하고 250g의 총 중량 MQ-물에 최종 볼륨을 가지고. 그런 다음, BSA를 추가 용해 및 필터 소독 할 수 있습니다.
주 : 설명 MEM 배지, 5 % CO 2, 5 % O 2, N 2 90 %의 의료 가스 혼합물로 평형화 세포 배양을 필요로한다. 그러나, 다른 미디어 (예 CZB)은 대기압 조건에서 5 % CO 2에서 세포 배양을 허용하는 사용될 수있다. - 난자의 미세 주입의 경우, 구매 또는 M2 매체를 준비합니다.
- P 준비5 IU / 100 μL의 농도로 우세한 암말의 혈청 성선 자극 호르몬 (PMSG).
- 구입 및 1 μM의 작업 농도의 siRNA 주식을 재구성.
2. 마우스 난자 컬렉션
- 1 일 : 난소의 난포 발달을 자극하고 배란 전 난포의 수를 증가, 복강 난자 컬렉션에 48 시간 이전에 여성 생쥐에 PMSG 5 IU를 관리 할 수 있습니다.
- 주 3 : 난자 수집 및 문화에 대한 1 μg의 / ㎖ 밀리 논 보충 MEM / BSA의 3 ㎖로 35mm 배양 접시를 설정합니다. 이 포스 포 디에스 억제제의 난자를 유지 의향 - 내가 체포 새싹 소포 고장 (GVBD)을 방지 할 수 있습니다. 적어도 15 분 동안 의료 가스 혼합물에서 배양 접시 평형.
참고 : 밀리 논 보충 미디어는 난자 수집뿐만 아니라 난자의 미세 주입하고 24 시간 배양 유지 기간 이후의 siRNA에 걸쳐 필요합니다. - (15)을 실천 설립 실험실을 사용하여 암컷 마우스에서 난소를 검색하고 미리 예열과 함께 새로운 배양 접시에 전송하고 MEM / BSA / 밀리 논을 평형.
- 난자 수집을위한 실체 현미경의 무대에서 배양 접시를 놓습니다. 릴리스 운 - 난자 - 단지 (COC의) 수동으로 27 G 바늘 난포을 천공하여. 1 ML의 주사기에 부착 된 27 G 바늘, 배양 접시의 바닥에 하나의 난소를 수정하고, 모든 큰 모공에 구멍을하는 두 번째 바늘을 사용합니다. 각각의 난소에 대해 반복합니다.
- 소형 적운 세포의 2 층 이상에 둘러싸여 모든 난자를 수집, 표준 입 피펫 절차 나 난자 흡인의 다른 수단을 사용하여. 새로운 요리에 COC의 이동과 1 시간 동안 37 ° C에서 품어.
- 조심스럽게 750 μL의 열망 볼륨 설정 1 ML의 피펫을 반복 부드러운 피펫 팅에 의해 주변 적운 세포를 제거합니다. 피펫 팅 단계를 약 12 회 반복와 난자가 5 분 동안 복구 할 수 있습니다. 전부 또는 난구 세포의 대부분이 제거 될 때까지 이러한 방식으로 계속합니다. 다른 배양 접시에 무 결함 난자를 전송하고 15 분 동안 37 ℃에서 평형을 허용한다.
- 를 고려하여 관심의 대상에 대해 특정 된 siRNA의 (ⅰ) 마이크로 인젝션, 불특정 (제어) 된 siRNA의 (ⅱ) 마이크로 인젝션, 및 (iii) 비 - 주입 된 대조군 : 세 개의 실험 그룹으로 무 결함 난자를 할당을 위해 사용될 배양 조건.
3. 난자 미세 주입
- 난자에 미세 주입을위한 밀리 논 (1 μg의 / ml)로 보충 3 ㎖ M2 매체와 문화 요리를 설정합니다. 세척 및 주입 된 난자의 후속 문화 MEM / BSA / 밀리 논을 포함하는 배양 접시를 준비합니다.
주 : M2 배지 HEPES 완충액 함유하고 대기 조건 하에서 15 분 동안 37 ℃에서 미리 가온 요구한다. MEM은 설명 의료 가스를 사용하여 사전 온난화와 평형을 필요로위 거라고. - 미세 주사 시스템을 준비합니다. 1 μm의 특정 siRNA의 솔루션의 5 μL와 주사 바늘을로드합니다. 미세 주사 시스템의 미세 조작기에 유지 피펫과 주사 바늘을 고정 및 교정 볼륨과 압력으로 주입 장치를 설정합니다.
- 3cm 배양 접시의 뚜껑의 안쪽 M2 매체의 200 μL 마이크로 - 드롭을 배치하고 설정 및 마이크로 인젝션 시스템의 정렬에 난자를 추가한다.
- 참조 난자를 이용, 유지 및 주사 바늘의 위치를 조정한다. 부드럽게 난자를 확보하고 셀의 넓은 직경에 주사 바늘의 위치를 조정하는지지 피펫에 부압을 적용한다. 아무 곳이나 난자 세포질로의 siRNA 솔루션의 약 10 PL의 미세 주입 할 수 있도록 설정을 조정합니다.
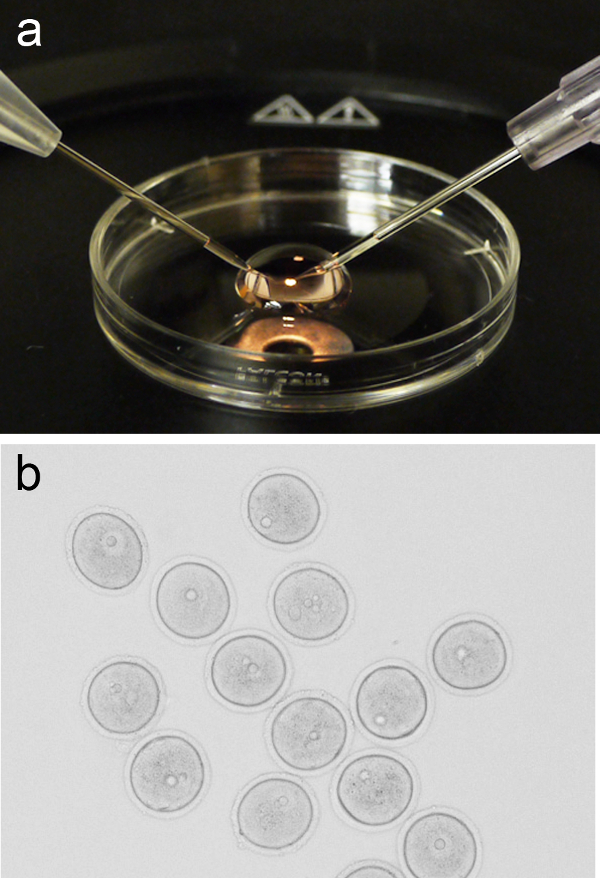
그림 1. 난자의 미세 주입을 설정합니다. ( 각각 좌우에 위치하는 홀딩 피펫 및 주사 바늘 3cm 배양 접시에서 뚜껑에 배치 M2 매체의 200 μL 마이크로 드롭의) 대표 화상. (B) 그룹의 의향 - 나는 미세 주입하기 전에 난자 (GV-단계)를 체포했다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오. - 실체 현미경 단계로 뚜껑을 돌려 신선한 M2 미디어의 200 μL 마이크로 드롭을 추가합니다. 입 피펫, 또는 다른 방법으로 마이크로 하락 난자의 그룹 (~ 10)를 추가 한 다음 미세 주입 단계에 마이크로 드롭으로 뚜껑을 돌려줍니다.
- 각각의 난자를 microinject로 이동합니다. 천천히 세포질 내로 주사 바늘의 선단을 삽입 한 채 피펫 난자 확보 및 siRNA를 용액의 주입량을 추방. 조심스럽게 주사 바늘과 미주리 철회미세 방울의 하단 위치까지 주입 된 난자를했습니다. 마이크로 드롭의 상단에 위치에 실패 주입 난자를 이동합니다.
- 각각의 난자에 미세 주입의 절차를 반복합니다. 시간에 최적의 난자 생존, 난자 microinject 소수만을 유지한다. 이 과정은 마이크로 드롭 온도와 pH가 변화를 방지하기 위해 몇 분 이상하지 않도록하십시오.
- 대기음이 성공적으로 난자를 주입 또는주의 실체에 주입 된 난자의 마이크로 드롭 뚜껑을 이동합니다. 세척하고 37 ℃에서 평형 / BSA / 밀리 논 매체를 MEM하는, 입 피펫 또는 다른 방법에 의해 주입 가능한 난자를 전송합니다.
- 난자들의 또 다른 그룹을 사용하여, 대조군에 대한 비 특정 된 siRNA 로케이션 새로운 주사 바늘로 마이크로 인젝션 프로세스를 반복한다. 별도의 배양 접시에 MEM / BSA / 밀리 논 및 전송에 난자를 씻으십시오.
- 문화 모든 그룹의료 가스의 분위기 하에서 37 ℃에서 MEM / BSA / 밀리 논에서 24 시간 동안 난자.
주 : "밀리 논 블록 '배양 기간이 효율적인 표적 mRNA의 / 단백질 고갈 필요하다.
감수 성숙 4. 난자 문화
- 주 4 : 난자의 각 실험군의 경우 3 ㎖ MEM / BSA와 설정 (4) 배양 접시 (35mm). 난모 세포의 성숙에 사용하는 10 % (고화질) 소 태아 혈청 (FBS)과 그룹 당 하나의 미디어 접시 보완. 모든 문화 요리 의료 가스 혼합물을 37 ℃에서 평형을 허용합니다.
- 순차적으로, '밀리 논 블록'에서 난자를 방출 MEM / BSA를 포함하는 요리 난자 세 번 세척 후 10 % FBS와 미디어를 포함하는 성숙 접시에 난자를 전송합니다. 문화 37 ° C에서 17 시간 동안 모든 난자 그룹은 재개과 감수 분열의 진행을 활성화합니다.
- 하루 5 : 난자 fixa 준비 솔루션기, 포함 : (ⅰ) PEM 완충액에서 4 % 파라 포름 알데히드 (PFA) (100 밀리미터 PIPES [pH를 6.9, 1 mM의의 MgCl 2, 1mM의 EGTA), 0.5 % 트리톤 X 100, 및 (ii) PBS 5 보충과 씻고 난 모세포를 차단하는 데 사용할 % FBS.
참고 :이 솔루션은 이전에 난자 고정 37 ° C의 온난화가 미리 필요합니다. - (17 시간 배양 후) 난자 고정의 경우, 신속하게 750 ㎕를 포함하는 입 피펫 또는 (4 잘 접시의) 개별 우물에 다른 방법으로 난자의 각 실험군을 전송할 4 % PFA 솔루션을 미리 예열 37 부화 1 시간 동안 C를 °. 그 후 5 % FBS를 포함하는 미리 예열 PBS 750 μL에 3 회 (15 분마다)을 난자의 각 그룹을 씻는다.
- 4 ° C에서 200 μL PBS / 5 % FBS O / N에서 블록 난자가 결합 불특정 항체를 최소화합니다.
5. 면역 형광 분석
- 6 일 :
주 : 면역 염색은 멀티 웰 플레이트에서 수행된다 OOCytes 직렬 각각의 항체 및 세척 솔루션을 포함, 연속 우물로 전송됩니다. 어느 48 또는 96 웰 플레이트를 사용할 수 있고, 단순히 잘 크기에 따라 용액의 양을 조정한다. 96 웰 플레이트에 잘 당 200 μL를 사용합니다. - 3 웰 워시 - 이차 항체 용액 - 3 워시 웰 차 항체 용액 : 난자는 다음과 같은 순서로 다른 솔루션에 전송된다. 판 호일로 커버 할 수 빛 노출을 제한합니다.
신선한 PBS / 5 % FBS를 준비하고 항체 희석을 준비하기 위해이 솔루션을 사용 (예를 들어, 토끼 반 pericentrin (1 / 1,000), 마우스 항 - 튜 불린 (1 / 1,000)). - 차 항체 용액 (부피가 덜 요구된다면, 100 μL) 200 μl를 각각의 웰에 포함 된 각 실험군의 고정 된 난 모세포를 옮기고 잘 파라 필름으로 커버. 최적의 항체 특정 조건에 따라 품어 (예를 들어, 1 시간 또는 4 ° CO / N 37 ° C를).
참고 : 1 차 항체 dilutio을N뿐만 아니라 특정 배양 시간과 온도는 사용 된 다른 항체에 대한 최적의 조건을 결정하기 위해 테스트를 필요로한다. - 차 항체와 부화 후, PBS / 5 % FBS (10 ~ 15 분마다)에 난자를 세 번 씻는다.
- 형광 접합 된 이차 항체를 포함하는 용액에 난자를 전송 (예를 들어, 서로 다른 파장의 형광 색소와 접합 된 항 - 토끼 항 마우스 항체의 1 / 1000 희석). 37 ℃에서 1 시간 동안 품어.
- (- 15 분 각 10) PBS / 5 % FBS에서 난자 세 번 씻으십시오.
- 최종 세척 단계 후, 깨끗한 유리 슬라이드에 난자를 전송하고 부드럽게 초과 세척 솔루션을 대기음. 이것은 유리 표면에 난자를 고정한다. 미디어 (DAPI를 포함)를 장착 8 μl를 추가 조심스럽게 22mm X 22mm 커버 슬립에 장착 매체를 오버레이. 난자를 공기 방울을 트래핑 및 / 또는 손상을 방지하기 위해 천천히 커버 슬립을 낮 춥니 다.
참고 : 또는, 공 초점 현미경 분석 난자의 3 dimentional 속성을 유지 종래 슬라이드 마운팅로 커버 슬립의 모서리에 100 μm의 유리 비드 (바셀린 혼합)의 작은 부피를 추가. - 4 ℃에서 보관 슬라이드 또는 감수 진행의 평가뿐만 아니라 사용 된 이차 항체에 맞게 필요한 필터가 장착 된 형광 현미경을 이용하여 발현 수준과 세포 내 단백질 위치 파악의 분석을 진행.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
된 siRNA의 미세 주입은 시험관 내에서 상이한 타겟 요인 효율적이고 고도로 특정 기능을 테스트 할 수 난자의 mRNA의 분해 및 후속 단백질 고갈을위한 효과적인 방법을 제공한다. 이어서, 특정 면역 표현형 분석에 사용 된 siRNA뿐만 아니라 주입 난 모세포에 단백질 고갈을 검증. 현재 예에서, 안티 - 튜 불린 및 안티 pericentrin 항체와 함께 DAPI 개별 난자의 형광 표지를 사용할 수 :뿐만 아니라 pericentrin 고갈 (I) 확인 (II) 제어 모두 염색질 및 감수 스핀들 구성의 종합적인 평가와 PCNT - 고갈 난 모세포.
비 특정 제어 또는 PCNT siRNA를 미세 주입 된 난자의 대표적인 면역 형광 이미지. 그림 2 (7)에 표시됩니다 17 시간 배양 후, 대부분의 제어 난자는 중기-II 사슴에 도달전자 스핀들 기둥 (그림 2A)에서...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
이러한 전기 천공과 같은 형질 체세포로 외인성 핵산 전달을위한 여러 가지 방법이 있지만, 마이크로 인젝션은 전사적으로 정지 된 난 모세포에 마우스 RNA 분자의 전달을위한 최적의 방법이다. 현재의 프로토콜은 서로 다른 스핀들 및 / 또는 난자에 MTOC 관련 요인의 기능 테스트를 가능하게 특정의 mRNA의 체외 고갈에 대한 효과적인 접근 방법을 제공합니다. 이러한 접근 방식은 효율적인 성적 증명서 고갈을 초래하고 높은 적응력이다. siRNA는 특별히 PCNT 사체를 대상으로 사용 되었더라도, 유사한 조건은 관심 거의 모든 유전자를 표적으로 사용될 수있다.
난자 수집, 문화 및 조작을 포함하여이 프로토콜의 여러 측면, 난자의 질을 유지하기 위해 기술 유물을 방지하기 위해 연습과 경험을 필요로한다. 배양 배지의 pH 및 / 또는 온도의 변동은 전자 작동함으로써 회피되어야xpediently 조심스럽게. 난자 소그룹의 마이크로 인젝션, 및 유해한 온도...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 공개할 것이 없습니다
감사의 글
이 연구는 조지아 대학의 일부 지원을 받았으며 미국 국립보건원(National Institutes of Health)의 MMV에 대한 보조금(HD071330)으로 지원되었습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Reagents | |||
| Pregnant Mare's Serum Gonadotropin (PMSG) | EMD Biosciences | 367222 | |
| Minimal Essential Medium (MEM) | *표 1에 명시된 레시피 | ||
| Earle's Balanced Salt Solution (10x) | Sigma | E-7510 | |
| Sodium 바이카보네이 | 시그마 | S-5761 | |
| 피루브산, 나트륨 염 | 시그마 | P-5280 | |
| 페니실린 G, 칼륨 염 | 시그마 | P-7794 | |
| 스트렙토마이신 설페이트 | 시그마 | S-9137 | |
| L-글루타민 | Sigma | G-8540 | |
| EDTA, 디소듐 솔트 디하이드레이트 | Sigma | E-4884 | |
| 필수 아미노산 (50개) | Gibco | 11130-051 | |
| MEM 비타민 혼합물 (100x) | Sigma | M-6895 | |
| 페놀 레드 용액 | Sigma | P-0290 | |
| 소 혈청 알부민(BSA) | Sigma | A1470 | |
| 밀리논 | Sigma | M4659 | |
| 소 태아 혈청(FBS) | Hyclone | SH30070.01 | |
| EmbryoMax M2 미디어 with Hepes | EMD Millipore | MR-015-D | |
| siRNAs targeting Pericentrin | Qiagen | GS18541 | |
| 음성 대조군 siRNAs | Qiagen | SI03650318 | |
| 파라포름알데히드(16% 용액) | 전자 현미경 과학 | 15710 | |
| Triton-X | Sigma | T-8787 | |
| 인산염 완충 식염수(PBS) | Hyclone | SH30028.02 | |
| Anti-Pericentrin (rabbit) | Covance | PRB-432C | |
| Anti-acetylated a-tubulin (mouse) | Sigma | T-6793 | |
| 염소 안티 랍빗 Alexa Fluor 488 | Invitrogen | A-21430 | |
| 염소 안티 마우스 Alexa Fluor 555 | Invitrogen | A-11017 | |
| 주요 장비 | |||
| Stereomicroscope (SMZ 800) | Nikon | ||
| Upright Fluorescent 현미경 | Leica Microsystems | ||
| 도립 현미경 | Nikon | ||
| Femtojet 마이크로 주입 시스템 | , Eppenforf | ||
| 마이크로 매니퓰레이터 | Eppendorf | ||
| Micro-injection needles(펨토팁) | Eppendorf | 930000035 | |
| 고정 피펫(VacuTip) | Eppendorf | 930001015 | |
| Plasticware | |||
| 35 mm 배양 접시 | Corning Life Sciences | 351008 | |
| 4웰 플레이트 | Thermo Scientific | 176740 | |
| 96웰 플레이트 | Corning Life Sciences | 3367 | |
| 0.45 mm CA 필터 시스템 | Corning Life Sciences | 430768 |
참고문헌
- Nagaoka, S. I., Hassold, T. J., Hunt, P. A. Human aneuploidy: mechanisms and new insights into an age-old problem. Nat Rev Genet. 13 (7), 493-504 (2012).
- Hassold, T. J., Hunt, P. A. To err (meiotically) is human: the genesis of human aneuploidy. Nat Rev Genet. 2 (4), 280-291 (2001).
- Szollosi, D., Calarco, P., Donahue, R. P. Absence of Centrioles in the First and Second Meiotic Spindles of Mouse Oocytes. J Cell Sci. 11 (2), 521-541 (1972).
- Manandhar, G., Schatten, H., Sutovsky, P. Centrosome Reduction During Gametogenesis and Its Significance. Biol Reprod. 72 (1), 2-13 (2005).
- Zimmerman, W. C., Sillibourne, J., Rosa, J., Doxsey, S. J. Mitosis-specific anchoring of gamma tubulin complexes by pericentrin controls spindle organization and mitotic entry. Mol Biol Cell. 15 (8), 3642-3647 (2004).
- Ma, W., Baumann, C., Viveiros, M. M. NEDD1 is crucial for meiotic spindle stabilty and accurate chromosome segregation in mammalian oocytes. Dev Biol. 339 (439-450), (2010).
- Ma, W., Viveiros, M. M. Depletion of pericentrin in mouse oocytes disrupts microtubule organizing center function and meiotic spindle organization. Mol Reprod Dev. 81 (11), 1019-1029 (2014).
- Bouniol-Baly, C., et al. Differential Transcriptional Activity Associated with Chromatin Configuration in Fully Grown Mouse Germinal Vesicle Oocytes. Biol Reprod. 60 (3), 580-587 (1999).
- De La Fuente, R., Eppig, J. J. Transcriptional Activity of the Mouse Oocyte Genome: Companion Granulosa Cells Modulate Transcription and Chromatin Remodeling. Dev Biol. 229 (1), 224-236 (2001).
- Hodgman, R., Tay, J., Mendez, R., Richter, J. D. CPEB phosphorylation and cytoplasmic polyadenylation are catalyzed by the kinase IAK1/Eg2 in maturing mouse oocytes. Development. 128 (14), 2815-2822 (2001).
- De La Fuente, R. Chromatin modifications in the germinal vesicle (GV) of mammalian oocytes. Dev Biol. 292 (1), 1-12 (2006).
- Wianny, F., Zernicka-Goetz, M. Specific interference with gene function by double-stranded RNA in early mouse development. Nat Cell Biol. , 270-275 (2000).
- Svoboda, P., Stein, P., Hayashi, H., Schultz, R. M. Selective reduction of dormant maternal mRNAs in mouse oocytes by RNA interference. Development. 127 (19), 4147-4156 (2000).
- Svoboda, P. Renaissance of mammalian endogenous RNAi. FEBS Letters. 588 (15), 2550-2556 (1016).
- Behringer, R., Gertsenstein, M., Nagy, K., Nagy, A. Manipulating the Mouse Embryo: A Laboratory Manual. , Fourth Edition, Cold Spring Harbor Laboratory Press. (2014).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
