성체 줄기세포 생물학을 연구하기 위한 이상적인 모델은 쥐의 모낭입니다. 여기에서는 모낭, 줄기세포 및 표피 각질세포의 다양한 집단을 분리하기 위한 프로토콜을 제시하며, 쥐 등쪽 피부의 효소 분해와 FACS 분석을 사용합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
이 논문에서
요약
초록
모낭(HF)은 성체 줄기세포(SC)의 생물학 및 조절을 연구하는 데 이상적인 시스템입니다. 이 역동적인 미니 기관은 팽대(bulge)로 알려진 영역인 HF의 영구적인 부분에 위치한 SC의 뚜렷한 풀에 의해 보충됩니다. 이러한 다분능 팽창 SC는 초기에 느린 순환 라벨 보유 세포로 확인되었습니다. 그러나 CD34 및 케라틴 15(K15)와 같은 특정 세포 마커를 식별한 후 분리가 가능해졌습니다. 여기에서는 FACS(Fluorescence Activated Cell-Sorting) 기술을 활용하여 마우스 HF에서 벌지 SC 및 표피 각질 세포를 분리하는 강력한 방법을 설명합니다. 고립된 모낭 SC(HFSC)는 다양한 생체 내 이식 모델에 활용될 수 있으며 다능성, 정지 및 활성화를 제어하는 메커니즘을 연구하기 위한 귀중한 체외 모델입니다.
서론
성체 줄기 세포 (SCS는) 죽어가는 세포를 대체하여 조직의 항상성 유지 부상에 손상된 조직을 복구에 필수적이다. 이 희주는 지속적인 자기 갱신을 받아야하고 다양한 세포 계통 1-3로 분화 할 수있는 능력으로 정의된다. 그 보급 용 성인으로 SC에 좌우되는 최고의 조사 시스템은, 조혈 시스템, 소장 및 피부 1,2,4을 포함한다.
배아 발생 동안, 피부 표피 세포의 단일 층으로 시작한다. 중간 엽 세포가 피부를 채우고 기초 콜라겐 진피 (5)을 형성 할 때 모낭 (HF)의 형태 형성이 시작됩니다. 아래쪽 6 성장하기 시작 머리 placodes을 형성 후에 모유두 (DP)를 구성하는 표피층 바로 아래 조직 및 상피 세포를 자극하는 중간 엽 세포를 전문. 높은 HF의 하부에 위치한 기질 세포를 증식,내층 모발 (HS) 및 주변 내측 근초 (IRS) 2,3-을 형성하는 동심의 실린더로 분화되기 시작하면서,이 중간 엽 세포 봉투와 모구를 형성한다.
interfollicular 표피 (IFE), 피지선 (SG)와 HF : 출생 후의 생활에서 피부 표피는 세 구획으로 구성되어 있습니다. 항상성의 일정한 상태에있는 IFE SG와 대조적으로, HF 연속 성장주기 (성장기) 파괴 (퇴행기)과 나머지 (텔로 겐) -4,7-를 거쳐 동적 미니 기관이다. 모낭 줄기 세포 (HFSCs)이 연료이 영구 사이클은 팽창 4로 알려진 HF 내 전문 틈새에 있습니다. 민주당에서 활성화 신호를 상기 HFSCs은 팽창을 종료 성장기 다음 중 증식을 시작하고 아래로하여 외부 루트 시스로 알려진 세포의 긴 선형 흔적을 만들어 내려 (ORS) 8-10. 매트릭스 셀, 즉HF를 빠르게 순환베이스에서 DP를 둘러싸고 따라서 HS 및 IRS (10) (도 1)를 생성하는 단말 분화를 겪고 상향 이동한다. 성장기의 기간은 모발의 길이를 결정하고, 행렬 셀 (6)의 증식 및 분화 능력에 의존한다. HF가 퇴행기 들어가면 전구 중단의 전송 증폭 매트릭스 세포 증식 아폽토시스를 겪게하고이 HF 8,11의 비 사이클의 부분에 도달 할 때까지 위쪽으로 DP 당기는 동안 완전히 퇴행한다. 이 후퇴하는 동안 HF는 퇴행기의 특징 상피 가닥으로 알려진 임시 구조를 형성하고, 많은 사멸 세포를 포함한다. 마우스에서, 퇴행기 3-4 일 간 지속 높은 제 헤어 사이클에서 동기화된다. HF는 휴지기에 도달하면 모든 HFSCs이 정지된다. HF 사이클의 구별 단계는 m에 의해 마우스의 피부의 색의 변화에 의해 특징 지어진다elanin 생산. 퇴행기 동안 어두운 회색으로 성장기 동안 검은 색의 피부 변화는 휴지기 6,7,12,13 동안 핑크합니다.
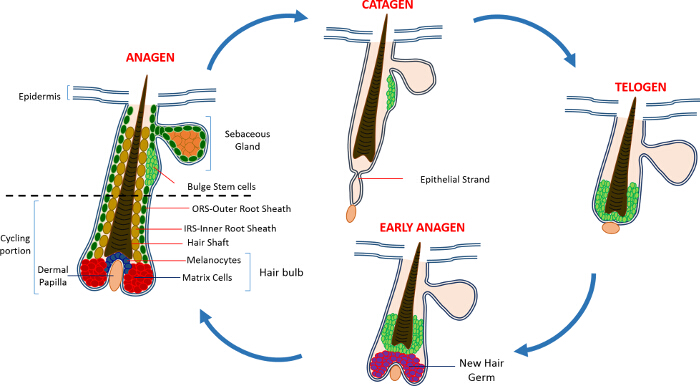
그림 1 : 헤어 난포주기. HF는 영구 상부의 구성과 빠른 성장 (성장기), 파괴 (퇴행기) 및 상대 정지 단계 또는 휴식 (휴지기)의 연속 사이클을 겪는다 낮은 지속적으로 리모델링, 자전거 부분은.되어 더 큰 보려면 여기를 클릭하십시오 이 그림의 버전입니다.
HF를 유지 희주는 처음에 그냥 SG (14) 아래 HF의 영구 지역에 거주 느린 자전거 레이블 유지 셀 (LRC)의 인구를 밝혀 삼중 티미 딘와 체이스 실험을 이용하여 확인 하였다. HFSC의 발전특성은 HF 틈새 (15)로부터 특정 희주를 식별하고 분리하는 데 사용할 수있는 마커의 작은 숫자를 한 것으로 밝혀졌습니다. 아마도 HFSCs의 농축을위한 최선의 마커 CD34, 또한 인체 (16)의 조혈 SC 마커로 확인 된 세포 표면 마커이다. 이 CD34 + 집단 내에서 두 가지 인구는 고립 α6의 인테그린 식 2를 기반으로하고있다. 또 다른 마커 CD34의 발현과 공동-지역화 및 K15 프로모터 타겟팅 및 형질 전환 동물 15,17-19에 HFSCs 분리에 사용되는, 각질이 높은 팽창 영역에 표현 15 (K15)입니다. 지난 10 년 HFSCs 및 선조 세포의 여러 가지 다른 별개 집단은 또한 HF 17,20-27 내에 상주하는 것으로보고되었다.
HFSCs의 또 다른 흥미로운 기능은 피부 복구에 기여한다. 정상적인 조건에서 HFSCs는 HF를 보충하고 IFE 항상성에 참여하지 않습니다. 하우버전은 상처에 대한 응답으로,이 세포는 IFE (9)를 다시 채우기 자신의 SC 틈새 및 지원을 종료합니다. 우리는 최근 마우스는 프로 세포 사멸 Sept4 / 예술 유전자 표시 세포 사멸에 저항을 보여 CD34, K15 및 Sox9 + HFSCs의 증가 수를 삭제할 것을 증명하고있다. HFSCs는 Sept4 / 예술에서 고립되었다 - / - 등의 스킨 정렬 형광 활성 셀 (FACS)를 이용하고 CD34 + 및 K15 + HFSCs의 수보다 두 배 증가가 발생했습니다. 이러한 Sept4 / 예술 - / - HFSCs 시험 관내에서 팽창되지 않은 콜로니는 더 초래했다하지만 컨트롤 (28)에 비하여도 가혹한 조건을 견딜 수 있었다.
HFSCs의 증가를 갖는 결과, Sept4 / 예술 - / - 마우스의 피부 적출 부상에 응답 훨씬 빠르게 치유. 놀랍게도, Sept4 / 예술 - / - 마우스는 displaye상처 침대에서 재생 모발, 상당히 작은 상처 다 많은 수의. 또한, XIAP (세포 사멸의 X-연결 억제제), 예술의 생화학 적 대상에 대한 삭제 마우스는 장애 치유 (28)을 보여 주었다.
우리의 결과와 다른 실험실에서 수행 한 작업은 HFSCs 성인 희주의 생물학 및 기능 연구를위한 이상적인 모델이 될 것으로 나타났습니다. 여기, 우리는 농축 및 HFSCs 네 마커의 발현에 따라 표피 각질 세포의 분리를위한 방법론에 대해 설명합니다 인테그린 α6을; 인테그린 β1; SCA-1 (표피 각질 세포 마커) 및 CD34. K15 + HFSCs 유사한 격리도 K15-GFP 리포터 마우스 (19)를 사용하여 수행 될 수있다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
이 연구는 건강의 이스라엘 교육부의 실험 동물의 관리 및 사용에 대한 가이드에 설명 된 권장 사항을 엄격히 준수 하였다. 동물의 모든 승인 된 기관 동물 관리 프로토콜 기술의 테크 니온 이스라엘 연구소의 IL-02302-2015에 따라 처리 하였다.
1. 실험 준비
- 킬레이트 태아 소 혈청의 제조
참고 : 칼슘이 세포의 노출을 제어하는 것이 중요하므로 상피 세포 칼슘에 매우 민감하다. 세포가 분리 과정 중에 칼슘 킬레이트에 노출되지 않도록하기 위해서 태아 소 혈청이 염색 버퍼 (29)의 제조에 사용으로부터 잔류 칼슘을 제거하기 위해 사용된다. 다음 프로토콜은 준비 FACS 염색 버퍼에 필요한 칼슘이없는 태아 소 혈청의 약 1 L를 준비합니다.- 건조 킬레이트 물질, 예를 들어 400 g을 넣고., Chelex, H 2 O 4 L 비이커에 증류 추가 전량 4 L. 커버 연속적 자기 교반기를 사용하여 교반한다.
- 교반하면서 10 N HCl 용액을 사용하여 7.4으로 산도를 조정합니다. 20 분 동안 교반 계속 pH가 20 분 동안 안정적으로 유지 될 때까지 필요에 따라 pH를 다시 조정합니다.
- 킬레이트 물질 소형 펠렛을 형성 할 수 있도록 39 ° C에서 밤새 인큐베이션 비이커. 조심 흡 H 2 O 및 추가 2 O 4 L. 총 부피 신선한 증류 H
- 단계 1.1.2에서와 같이 pH 조정을 반복합니다.
- 킬레이트 물질 소형 펠렛을 형성 할 수 있도록, 1 시간 동안 39 ° C에서 비커를 놓고. 조심스럽게 흡인 H 2 O
- 천천히 킬레이트 물질에 소 태아 혈청이 500 ml의 병을 추가합니다. 속도 설정이 거품을 생성하지 않는다는 보장 1 시간 동안 4 ℃에서 천천히 저어.
- 킬레이트 재료는 샘플 콘텐츠를 형성 할 수 있도록, 1 시간 동안 39 ° C에서 비커를 놓고펠렛을 역할을합니다.
- 조심스럽게 1 L 유리 병에 혈청을 전송하고 멸균 조건하에 병 상부 필터를 통해 필터링. -20 ° C에서 킬레이트 혈청을 보관하거나 즉시 사용합니다.
- 염색 버퍼의 준비
- 2 + 칼슘과 마그네슘없이 PBS에서 FBS를 킬레이트 3 %의 100 ㎖를 준비하고 얼음에 보관하십시오.
성인 표피에서 모낭 2. 분리
- 유도 상자를 사용하여 5 %의 이소 플루 란을 이용하여 마우스를 마취. 여기에 설명 된 프로토콜은 HF주기의 휴지기 단계에 50-80일 이전 마우스를 사용하여 최적화되었다.
- 표준 실험실 절차에 따라 쥐를 안락사. 여기서, 안락사 챔버 CO 2 과량을 사용하여 마우스를 안락사.
- 전기 면도기를 사용하는 등의 피부의 모든 머리를 면도. 머리와 사지 마십시오. 피부에 가능한 한 가까운 가위를 유지합니다. 피부 및 피하 층의 손상을 방지.
- 모든 모발 제거 할 때 머리카락의 잔사를 제거하고 등쪽 피부를 소독하는 70 % 에탄올을 사용한다.
- 해부 패드에 마우스를 놓고 사용하는 집게 꼬리 근처의 피부를 위로 당겨 가위를 사용하여 작은 흠을합니다. 조심스럽게 피부를 멀리 절단 및 근막에서 분리하여 후방 - 전방 방향으로 전체 지느러미 피부를 잘라. 피하 층의 손상을 방지.
- , 머리면이 아래를 향 해부 매트에 피부를 놓고 제자리에 고정하기 위해 피부의 두 개의 인접한 가장자리를 핀. 부드럽게 진피가 명확하고 깔끔한 때까지 무딘 메스를 사용하여 지방을 긁어.
참고 : 지방을 긁어 때, 피부에 부드러운 압력을 적용 할 곡선 집게를 사용합니다. 포셉의 곡선면을 사용하여 피부에 압력을 적용합니다. 이 찢어으로부터 피부를 방지 할 수 있습니다. - , 진피가 100mm 멸균 배양 접시에서 아래쪽으로 피부를 놓고 더 주름이 없는지 확인하기 위해 피부를 정돈합니다. 칼슘없이 PBS의 10 ML을 추가 2+ - SUP>과의 Mg 2+ (PBS).
- PBS를 대기음 0.25 % 트립신 10 ㎖를 추가합니다. 피부가 펼쳐 자유롭게 떠되어 있는지 확인합니다. 0.25 % 트립신 10 ㎖ 당 피부의 한 조각을 품어.
- 30 ~ 120 분 동안 또는 밤새 4 ° C에서 37 ° C에서 샘플을 품어.
모낭에서 단일 세포 현탁액 3. 준비
- 후방 방향 전방에 곡선 집게와 메스를 사용하여 피부 떨어져 모든 머리를 다 쳤어요. 포셉의 곡선면을 사용하는 대신에 피부를 잡고 머리를 긁어 메스를 사용합니다.
참고 : 단계 2.8에 추가 된 트립신 용액으로 머리를 다 쳤어요. 꼬리에서 시작하고 머리 성장의 방향을 따르십시오. 머리 성장의 방향에 대해 긁어내는 것은 세포 수율 상당한 모발의 손실 및 감소가 발생합니다. 모발 함께 각을 준수하고 작은 덩어리를 형성하는 경향이있다; 차를 감소시키기 위해HF 덩어리의 전자 크기는 한 번에 작은 영역을 긁어하려고합니다. - 새로운 배양 접시에 털이없는 피부를 옮기고 추가 PBS 10 mL로 - 건조되는 것을 방지하기 위해. 피부를 검사하고 나머지 머리를 다 쳤어요.
- 단일 HF 현탁액을 수득 될 때까지 메스와 핀셋을 사용하여 모발을 분해. 적극적으로 모든 머리카락 덩어리를 분해하는 데 몇 분 10 ML의 피펫을 사용하여 HF 현탁액을 씹다.
참고 : 얼음에서 다음 단계를 모두 수행합니다. - 미리 라벨링 된 50 ㎖ 튜브에 HF 현탁액을 전송.
- 상기 피부 및 HF 현탁액을 함유 세포 배양 접시 린스 데 사용 - PBS 대기음 50 ML 튜브로 전송할 수 있습니다.
- 세탁
- 50 ML 튜브에 장착 된 70 μm의 셀 스트레이너를 통과하여 정지를 필터링합니다. (- 3 % 킬레이트 FBS와 PBS) 초기 50 ML 튜브 및 염색 버퍼 10 mL로 스트레이너 씻으십시오.
- 전달하여 정지 필터40 μm의 셀 스트레이너를 통해 50 ML 튜브에 장착. 모든 세포가 새로운 튜브로 전송되었는지 확인하기 위해 염색 버퍼의 5 ~ 10 ml의 튜브를 씻으십시오. 모든 동물이 처리 될 때까지 얼음에 서스펜션을 유지합니다.
- 4 ° C에서 300 XG에 15 분 동안 원심 분리기. 염색 버퍼의 5ml에 펠릿과에 resuspend 펠렛을 방해하지 않고 조심스럽게 흡인 뜨는.
- 4 ° C에서 5 분 300 XG에 대한 원심 분리기. 조심스럽게 뜨는을 대기음 및 염색 버퍼 800 μL의 세포 펠렛을 resuspend.
참고 : 위의 지정된 볼륨이 성인 마우스에서 파생 된 세포를 염색 충분하다.
- 사전 라벨 FACS 튜브로 전송 서스펜션.
- 컨트롤 튜브를 들어, 세포 현탁액 (또는 세포 현탁액에서 잔류 왼쪽)의 25-50 μl를 타고 염색 버퍼 300 μL의 총 볼륨으로 구성한다.
참고 : 제어 튜브 (전체 부피 300 μL) 염색에 대한 준비 (더 항체를더 DAPI 없음); DAPI 만은; β1 인테그린; α6을 인테그린; 무서-1; CD34.
- 컨트롤 튜브를 들어, 세포 현탁액 (또는 세포 현탁액에서 잔류 왼쪽)의 25-50 μl를 타고 염색 버퍼 300 μL의 총 볼륨으로 구성한다.
- 적절한 튜브에 원하는 농도 차 항체 및 DAPI를 (적절한 희석 용 재료 표 참조)를 추가합니다. 조심스럽게 세포 현탁액을 혼합 튜브를 가볍게. 얼음에 돌아가서 빛으로부터 보호하기 위해 알루미늄 호일로 커버.
- 세포 현탁액에 보관됩니다 보장하기 위해 튜브마다 10 분을 가볍게 부드럽게 얼음에 30 분 동안 품어.
- 염색 버퍼 (튜브 당 약 4 ml)로 각 FACS 튜브를 작성하여 세포를 씻으십시오; 4 ° C에서 300 XG에서 5 분 동안 원심 분리기.
- 조심스럽게 뜨는을 대기음 및 염색 버퍼 800 μL의 세포 펠렛을 resuspend.
- 단일 세포 현탁액을 보장하기 위해 셀 스트레이너 모자와 FACS 튜브에 세포 현탁액을 전송합니다.
4. 유동 세포 계측법 분석
- 시그나에 적합한 필터 사이토 흐름을 사용하여 즉시 정렬 셀로 진행L 검출. (DAPI의 측정) 405 nm의 바이올렛 (APC의 여기에 대한) 및 633 nm의 적색 레이저 (FSC, SSC, PE, PE-Cy7 및 FITC의 측정) 488 nm의 블루를 사용하여
참고 : 장비가 세 형광 채널 검출기에서 기록되어 있는지 확인합니다. - 하나의 스테인드 컨트롤을 사용하여 스펙트럼 중복에 대한 흠없는 샘플 및 보상에 기초하여 설정 형광 게이트.
참고 : 형광 신호의 모든 중복을 제거하기 위해 채널 사이의 보상을 조정하기위한 하나의 스테인드 컨트롤을 사용합니다. 보상 조정은 사용하는 FACS 분류기에 의존 할 것이다. - DAPI에 따라 설정 기본 게이트 죽은 세포를 제외합니다.
- 단일 이벤트를 선택합니다 산포도 (FSC-A 대 SSC-A)를 조정합니다.
- 이중선을 위해 제거하고 단일 이벤트를 구별하기 위해 FSC와 SSC 높이와 너비 매개 변수를 설정합니다.
- CD 중 하나와 게이트 세포 높은 α6와 β1 발현에이 인구에서 게이트 셀34 고 발현 또는 SCA1 높은 식입니다.
- 미리 라벨링 FACS 튜브에 놓아 셀.
참고 : 분리 할 수 세포의 두 가지 일반 인구; α6 + / β1 + / CD34 + / 무서 - 1 - 및 α6 + / β1 + / 무서-1 + / CD34 -. 그들은 이러한 세포 배양 또는 RNA 분리와 같은 다운 스트림 응용 프로그램을 사용할 때까지 정렬 세포는 항상 얼음에 보관해야합니다
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
이 프로토콜 상세 및 농축 개체군의 두 종류의 단리 설명. 팽창으로 SC 및 표피 각질 2 프로토콜의 주요 단계들을 도시한다. 다시 팔주 된 마우스의 등쪽에서 제거 피부를 활용, 우리는 HFSCs로 표현되는 CD34 마커를 사용하여 팽창으로 SC를 강화; 및 무서-1, 표피 각질 세포를 라벨. (3) 피부 상피 세포의 α6 + / β1 + 인구 내에서 CD34과 무서-1 발현의 다른 패턴을 보여줍니다. 세포는 처음 인테그린 - α6의 발현에 따라 문이 있었다 그림 3에서 P1으로 지정되어 인테그린-β1. α6 양성과 세포의 인구는 / β1expression 후 CD34과 무서-1 세포의 발현에 따라 문이되었다. 세포의 두 가지 인구는 무서-1 플롯 대 CD3...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
여기에 설명 된 프로토콜은 또한 성인 마우스의 등쪽 피부 HFSCs 분리 확립되지만 동일 2,16,23,28,29 마커의 선택에 기초하여, HF 구조 내의 다른 집단의 분리에 적용 할 수있다. 이 방법은 조직 분리 등의 세포 분리의 다른 방법을 통해, 특히 유리하다, 즉의 특정 세포 유형이 선택 될 수 있으며, 이종의 세포 집단의 혼합물로부터 수확. 또한, 여기에 기재된 방법은 빠르고 안정적이며 사용 된 마커의 차등 발현 수준에 기초하여 네 가지 HFSC 집단까지 분리 할 수있다. 이것은 농축 및 RNA-SEQ 질량 분석계로서 상기 분자 분석 HFSCs의 분리뿐만 아니라 후속 세포 배양 및 확장 및 생체 이식에 사용될 수있다.
고품질의 제조는, 단일 세포 현탁액 SUC의 필수 성분 인을 거두었 FACS 29. 이 프로토콜의 효율은 HF의 분리를 위해 사용 된 출발 물질에 따라 달라진다. 출발 물질 케어 비 표피 조...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 선언할 것이 없습니다
감사의 글
이 작업은 NIH 보조금 RO1GM60124(H.S.에게)에 의해 부분적으로 지원되었습니다. H.S.는 Howard Hughes Medical Institute의 조사관입니다. Y.F.는 Deloro Career Advancement Chair와 The German Israeli Foundation (I-2381-412.13/2015)의 지원을 받고 있습니다. D.S.는 Coleman-Cohen 박사후 연구원의 지원을 받고 있습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 이소플루란 | 프라이멀 크리티컬 케어 | 66794-017-10 | |
| 이산화탄소 | - | - | |
| 전기 면도기 | Oster | Golden A5 | 쉐이버는 |
| 70% 에탄올 | Gadot Lab | 830000051 | 96% 에탄올을 증류수로 희석하여 |
| 어떤 공급자에서든 사용할 수 있는 해부 매트 | |||
| 펜치 | Dumont | 11251-10 | 회사의 포셉스를 사용할 수 |
| 있습니다. 가위 | Dumont | 14094-11 | 다른 회사의 가위를 사용할 수 있습니다 |
| 바늘 / 핀 | - | ||
| Scalpel | Albion | 10 | 메스의 끝이 뭉툭한지 확인하십시오 |
| 조직 배양 접시 60 mm x 15 mm | Sigma-Aldrich | CLS430166 | |
| PBS | - | 칼슘과 마그네슘이없는 집 PBS | |
| 0.25 % 트립신 / EDTA | Biological Industries | 03-050-1A | 다른 회사에서 얻은 트립신은 활성이 다를 수 있으며 트립신 다이제스트의 지속 시간을 그에 따라 조정해야 합니다 |
| 펫 10 ml | Sigma-Aldrich | Corning, 4488 | |
| Ice | - | - | |
| 50 ml 멸균 원심분리기 튜브 | Minplast Ein-shemer | 35050-43 | |
| 70 µ m 세포 여과기 | Fisher | 22362548 | |
| 40 µ m 세포 여과기 | Fisher | 22362549 | |
| 염색 완충액 | - | ||
| Centrifuge | Eppendorf 5804 R | 5805 000.017 | |
| FACS 튜브와 세포 여과기 캡 | 팔콘 | ||
| FACS 튜브 | 팔콘 | ||
| Integrin β 1 | eBioscience | 25-0291 | 1:400 |
| 인테그린 &알파; 6 | eBioscience | 15-0495 | 1:600 |
| Sca I | eBioscience | 11-5981 | 1:200 |
| CD34 | eBioscience | 9011-0349 | 1:300 |
| DAPI | Sigma-Aldrich | D9542 | 50 ng/ml |
| Dry Chelex | BioRad | 142-2842 | |
| Beaker | Pyrex-Distilled | ||
| H2O | - | - | |
| 젓는 막대 | - | ||
| NHCl | BioLab | 1903059 | |
| Fetal bovine serum (FBS) | Beit Haemek Biological Industries | 400718 | FBS는 다른 회사에서 얻은 것으로 사용될 수 있습니다. |
| 1 L 유리병 | Ilmabor | Boro 3.3 | |
| 병 상단 필터 | Autofil | 1102-RLS |
참고문헌
- Wagers, A. J., Weissman, I. L. Plasticity of adult stem cells. Cell. 116, 639-648 (2004).
- Blanpain, C., Lowry, W. E., Geoghegan, A., Polak, L., Fuchs, E. Self-renewal, multipotency, and the existence of two cell populations within an epithelial stem cell niche. Cell. 118, 635-648 (2004).
- Fuchs, E. Scratching the surface of skin development. Nature. 445, 834-842 (2007).
- Hsu, Y. C., Fuchs, E. A family business: stem cell progeny join the niche to regulate homeostasis. Nat Rev Mol Cell Biol. 13, 103-114 (2012).
- Blanpain, C., Fuchs, E. Epidermal homeostasis: a balancing act of stem cells in the skin. Nat Rev Mol Cell Biol. 10, 207-217 (2009).
- Alonso, L., Fuchs, E. The hair cycle. J Cell Sci. 119, 391-393 (2006).
- Muller-Rover, S., et al. A comprehensive guide for the accurate classification of murine hair follicles in distinct hair cycle stages. J Invest Dermatol. 117, 3-15 (2001).
- Zhang, Y. V., Cheong, J., Ciapurin, N., McDermitt, D. J., Tumbar, T. Distinct self-renewal and differentiation phases in the niche of infrequently dividing hair follicle stem cells. Cell Stem Cell. 5, 267-278 (2009).
- Ito, M., et al. Stem cells in the hair follicle bulge contribute to wound repair but not to homeostasis of the epidermis. Nat Med. 11, 1351-1354 (2005).
- Hsu, Y. C., Pasolli, H. A., Fuchs, E. Dynamics between stem cells, niche, and progeny in the hair follicle. Cell. 144, 92-105 (2011).
- Fuchs, E. The tortoise and the hair: slow-cycling cells in the stem cell race. Cell. 137, 811-819 (2009).
- Plikus, M. V., Chuong, C. M. Complex hair cycle domain patterns and regenerative hair waves in living rodents. J Invest Dermatol. 128, 1071-1080 (2008).
- Ito, M., Kizawa, K., Hamada, K., Cotsarelis, G. Hair follicle stem cells in the lower bulge form the secondary germ, a biochemically distinct but functionally equivalent progenitor cell population, at the termination of catagen. Differentiation. 72, 548-557 (2004).
- Cotsarelis, G., Sun, T. T., Lavker, R. M. Label-retaining cells reside in the bulge area of pilosebaceous unit: implications for follicular stem cells, hair cycle, and skin carcinogenesis. Cell. 61, 1329-1337 (1990).
- Cotsarelis, G. Epithelial stem cells: a folliculocentric view. J Invest Dermatol. 126, 1459-1468 (2006).
- Trempus, C. S., et al. Enrichment for living murine keratinocytes from the hair follicle bulge with the cell surface marker CD34. J Invest Dermatol. 120, 501-511 (2003).
- Morris, R. J., et al. Capturing and profiling adult hair follicle stem cells. Nat Biotechnol. 22, 411-417 (2004).
- Lyle, S., et al. The C8/144B monoclonal antibody recognizes cytokeratin 15 and defines the location of human hair follicle stem cells. J Cell Sci. 111 (Pt 21), 3179-3188 (1998).
- Liu, Y., Lyle, S., Yang, Z., Cotsarelis, G. Keratin 15 promoter targets putative epithelial stem cells in the hair follicle bulge. J Invest Dermatol. 121, 963-968 (2003).
- Vidal, V. P., et al. Sox9 is essential for outer root sheath differentiation and the formation of the hair stem cell compartment. Curr Biol. 15, 1340-1351 (2005).
- Snippert, H. J., et al. Lgr6 marks stem cells in the hair follicle that generate all cell lineages of the skin. Science. 327, 1385-1389 (2010).
- Nijhof, J. G., et al. The cell-surface marker MTS24 identifies a novel population of follicular keratinocytes with characteristics of progenitor cells. Development. 133, 3027-3037 (2006).
- Jensen, U. B., et al. A distinct population of clonogenic and multipotent murine follicular keratinocytes residing in the upper isthmus. J Cell Sci. 121, 609-617 (2008).
- Jensen, K. B., et al. Lrig1 expression defines a distinct multipotent stem cell population in mammalian epidermis. Cell Stem Cell. 4, 427-439 (2009).
- Jaks, V., et al. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat Genet. 40, 1291-1299 (2008).
- Horsley, V., et al. Blimp1 defines a progenitor population that governs cellular input to the sebaceous gland. Cell. 126, 597-609 (2006).
- Goldstein, J., Horsley, V. Home sweet home: skin stem cell niches. Cell Mol Life Sci. 69, 2573-2582 (2012).
- Fuchs, Y., et al. Sept4/ARTS regulates stem cell apoptosis and skin regeneration. Science. 341, 286-289 (2013).
- Nowak, J. A., Fuchs, E. Isolation and culture of epithelial stem cells. Methods Mol Biol. 482, 215-232 (2009).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
