이 프로토콜에서는, 우리는 최적화 된 C2C12 세포의 유지 보수, 유전자 형질 전환 / 전달 및 심근 분화를 포함한 근긴장 성 이영양증 1 근원 세포 모델을 설정하는 절차를 제시한다.
방법 논문
C2C12 근육 모세포의 세포에 근긴장 성 이영양증 1 모델링
* These authors contributed equally
이 논문에서
요약
초록
근긴장 이상증 1 (DM1)는 근육 영양 장애의 일반적인 형태입니다. 여러 동물 모델이 DM1 설립되었지만 그들은 세포 및 분자 이벤트를 공부하기위한 효율적인 세포의 대안을 제공하기 때문에, 근원 세포 세포 모델은 여전히 중요하다. C2C12 근육 모세포의 세포가 광범위하게 유전자 형질 전환, 형질 도입 또는 바이러스에 근육 생성, 저항을 연구하는 데 사용되었다하더라도, C2C12 세포의 연구를 방해한다. 여기, 우리는 C2C12의 근육 아세포 및 심근 분화의 유도에 유전자를 도입하는 일상적인 유지 보수, 형질 전환 및 전달 절차를 포함하는 최적화 된 프로토콜을 설명합니다. 종합적으로, 이러한 절차는 최선의 형질 전환 / 전달 효율뿐만 아니라 일관성있는 차별화 된 성과를 가능하게한다. 근긴장 성 이영양증의 연구뿐만 아니라 다른 근육 질환에 유익 할 DM1 근육 모세포 셀 모델 확립에 기재된 프로토콜.
서론
근긴장 이상증 (DM)는 여러 시스템, 특히 심장과 골격 근육 (1)에 영향을 미치는 염색체 우성 질환이다. 이 질병, DM1과 DM2의 두 하위 유형이 있습니다. DM1 더 일반적이며 DM2 2보다 더 심한 표현이 있습니다. DM1 근본적인 유전 적 변이는 3 '비 번역 영역 DM 단백질 키나제 유전자 (DMPK) 3 (UTR)에있는 CUG 삼중 반복의 확장이다. 영향을받지 않는 개인의 CUG 반복 수는 대조적으로 (37)에 5,은 50 개 이상으로 증가하고, 때로는 최대 DM1 환자 4 천에 달라집니다. 그 결과, 같은 RNA 결합 단백질, muscleblind 형 1 (MBNL1) CUGBP 및 Elav 같은 가정 한 (Celf1) misregulated이다. 때문에 확장 된 CUG 반복에 격리에 MBNL1 대체 스 플라이 싱 (5)을 조절하는 능력을 잃게된다. Celf1 반면에, 6,7-을 조절한다. Celf1 과발현 근육 손실과 연관된MBNL1 기능의 손실에 기인되지 않고 약점. DMPK 3'-UTR CUG 확장, MBNL1 상실 및 과발현 Celf1 포함 DM1 관련 변화를 시뮬레이션 동물 모델이 수립되었다. 그러나, 근육 아세포에서 DM1을 모델링 특히 DM1 관련 세포 및 분자 이벤트를 해부에 대한 효율적인 대안을 제공합니다.
C2C12 근육 모세포 세포주 제 부상 C3H 마우스 근육 분리 널리 근육 조직 분화 8,9을 연구하기 위해 사용되었다. C2C12 세포는 급속 소 태아 혈청 (FBS)을 함유 미디어 증식 용이 FBS가 소모 될 때 분화를 겪는다. 그러나,이 근육 모세포 분화 모델을 사용하여 두 가지 과제를 제시한다 : C2C12 세포는 종종 유전자 형질 전환 / 바이러스 형질 도입에 대해 내성이고; 세포 처리 및 분화 과정에 약간의 차이는 myotube 형성에 표시된 변경 될 수 있습니다.
우리 연구실은 정기적으로 교류 등 C2C12의 근육 아세포를 사용엘 모델과 효과적으로 C2C12 세포주 (10)에 플라스미드 형질 전환, 레트로 바이러스 전달 및 렌티 바이러스 전달에 의해 유전자를 제공하는 프로토콜을 개발했다. 비디오에서 우리는 / 형질 C2C12 세포를 형질 도입 및 DM1의 근원 세포 모델을 확립 차별화 일관성을 유지하기위한 최적화 과정을 보여줍니다.
프로토콜
1. C2C12 세포 배양
- 성장 배지에서 100mm 플레이트 C2C12 마우스 근육 아세포를 유지 (둘 베코 변형 이글 배지 (DMEM)) 20 % 소 태아 혈청, 100 U / ㎖ 페니실린, 100 μg의 / ㎖ 스트렙토 마이신, 2 mM의 L- 글루타민. 60 % 합류 - C2C12 계대 세포는 약 50이 될 수 있습니다.
- 성장 배지를 버리고 3 ㎖을 실온 인산 완충 식염수 (PBS)로 C2C12 세포를 세척 하였다. PBS를 제거하고 세포를 분리하기 위해 500 ㎕를 0.25 % 트립신 - EDTA를 추가합니다. 5 분 - 3 37 ° C, 5 % CO 2 배양기에서 접시를 놓습니다.
- 3 ml의 성장 배지를 첨가함으로써 트립신을 중성화. 세포를 일시 중단 8 회 - 6 피펫. 새로운 100mm 판에 일시 중단 된 세포의 1 ML을 추가하고 37 ° C, 5 % CO 2 부화.
2. C2C12 세포 형질 / 전달 및 선택
- C2C12 플라스미드 형질
- 24 시간 이전에 형질 전환, 페이지에각 형질에 대한 여섯 잘 플레이트 잘 하나에 늦게 7.0 × 10 5 C2C12 세포.
참고 :이 50 리드 - 형질 전환시 60 %의 합류. - 형질 시약은 사용 전에 실온에 올 수 있습니다.
- 간단히 미리 예열 무 혈청 배지와 소용돌이 200 μL에 플라스미드 DNA (GFP-CUG5 또는 GFP-CUG200)의 2 μg의 추가. 중간에 6 μl를 형질 전환 시약을 추가하고 소용돌이를 사용하여 30 초 즉시 섞는다. 실온에서 30 분 동안 혼합물을 인큐베이션.
- 2.5 ml의 무 혈청 성장 미디어 C2C12 세포의 미디어를 변경합니다. 배양 한 후 세포에 형질 전환 혼합물을 추가합니다. 5 % CO 2, 37 ° C 배양기에 플레이트를 돌려줍니다.
- 4 시간 또는 야간까지 형질 전환 혼합물 / 무 혈청 성장 배지에서 세포를 유지합니다. 다음 날 다시 성장 미디어 매체를 변경하거나 독성이 명백한 경우.
참고 : 세포 독성은 CE의 현미경 검사로 평가된다LLS. 세포 형태 및 세포 분리의 변화를 관찰한다. 한은 어떠한 명백한 독성이없는 한, 무 혈청 성장 배지에서 밤새 배양 한 형질을 향상시킨다. - (플라스미드없이 형질) 제어 문화가 살아있는 세포를 가지고 있지 않을 때까지 십일 ~ 1.6 ㎎ / ㎖의 G418 - 1.2을 추가하여 세포를 형질 전환 후 48 시간을 선택합니다. G418 보충 성장 미디어 매 2 일 매체를 변경합니다.
- 후속 실험을 37 ℃에서 성장 배지 및 5 % CO 2에서 G418 내성 세포를 유지한다.
- 24 시간 이전에 형질 전환, 페이지에각 형질에 대한 여섯 잘 플레이트 잘 하나에 늦게 7.0 × 10 5 C2C12 세포.
- 레트로 바이러스 제제와 C2C12의 레트로 바이러스 전달
- 10 % 소 태아 혈청, 100 U / ㎖ 페니실린, 100 μg의 / ㎖ 스트렙토 마이신 및 2 mM L- 글루타민으로 DMEM 고 글루코스 보충하여 HEK 293 배지를 준비한다.
- 약 24 시간 형질 전환 이전에, 100 밀리미터 판 (형질에서 80 % 합류)에 4.0 × 10 6 ecotropic HEK 293 기반의 포장 세포를 플레이트 Containing 세포 배양 배지.
- 형질 시약은 사용 전에 실온에 올 수 있습니다.
- 1 ml의 무 혈청 성장 배지에서 15 μg의 플라스미드 DNA (pMSCV-또는 순수하지 않아 pMSCV-Celf1Flag - 순수하지 않아)를 섞는다. 소용돌이 짧게. DNA를 / 무 혈청 성장 매체 튜브에 단계 2.2.2에서 30 ㎕를 형질 전환 시약을 추가하고 소용돌이를 사용하여 잘 섞는다. 30 분 동안 혼합물을 실온에서 인큐베이션.
- ecotropic의 HEK 293 기반 패키징 세포로 형질 전환 혼합물 적가를 추가합니다. 부드럽게 플레이트 소용돌이와 5 % CO 2, 37 ° C 배양기에 다시를 반환합니다. 24 시간 후, 10 ml의 사전 예열 신선한 성장 매체에 미디어를 변경합니다.
- 상층 액 (포함하는 레트로 바이러스) 피펫을 이용하여 형질 전환 후 48 시간을 수확하고 50 ML의 원심 분리기 튜브에 뜨는을 전송합니다. 판에 새로운 따뜻한 매체의 10 ML을 추가하고 인큐베이터로 돌아갑니다. 4 ° C에서 뜨는을 유지합니다.
참고 : 용지가 T로 부드럽게 추가그는 또한 측면 세포 단층을 방해하지 않도록. - 형질 전환 후 상층 액을 60 시간의 두 번째 배치를 수확 및 2.2.5에서 뜨는와 함께 수영장. 500 XG, 7 분 4 ° C에서 원심 분리기 세포 파편을 제거합니다.
- 새로운 50 ML의 원심 분리기 튜브에 뜨는을 전송합니다. 2.2.9 또는 나누어지는 단계로 향후 사용을 위해 -20 ° C에서 뜨는을 저장하기 위해 진행하여이 시점에서 C2C12 세포를 형질 도입하는 레트로 바이러스를 사용합니다.
- 냉동 재고가 여기에 사용되는 경우, 실온에서 2.2.7에서 레트로 바이러스를 녹여.
참고 : 여러 동결 해동 사이클을 피하십시오. - 합류의 40 % - 30을 목표로 전달의 같은 날에 C2C12 세포를 플레이트.
- 성장 배지를 버리고 3ml를 실온으로 PBS C2C12 세포를 세척 하였다. 의 PBS를 제거 500 ㎕를 0.25 % 트립신 - EDTA를 추가하고, 3 37 ° C, 5 % CO 2 배양기에서 접시를 품어 - 5 분.
- 3 ㎖ 성장 의대를 추가하여 트립신을 중화IUM. 세포를 일시 중단 8 회 - 6 피펫. 혈구를 사용하여 세포를 계산하고, 60mm 판에 8.0 × 10 5 C2C12 세포를 추가합니다.
- 3 ㎖ 성장 배지에서 세포의 하나 60mm 판을 감염 0.5 ml의 레트로 바이러스를 추가합니다. 인큐베이터에 접시를 돌려줍니다.
- 감염 후 48 시간 - 선택 항생제 (3 μg의 / ㎖의 퓨로 마이신 1)로 보충 3 ㎖ 새로운 미디어로 교체하십시오. untransduced C2C12 제어 문화가 밖으로 죽을 때까지 5 ~ 일 동안 매일 항생제와 3 ㎖ 매체를 교체합니다.
- 10 % 소 태아 혈청, 100 U / ㎖ 페니실린, 100 μg의 / ㎖ 스트렙토 마이신 및 2 mM L- 글루타민으로 DMEM 고 글루코스 보충하여 HEK 293 배지를 준비한다.
- 렌티 바이러스 준비와 C2C12의 렌티 바이러스 전달
참고 : 바이오 안전성 레벨 2 캐비닛을 모든 렌티 바이러스 관련 절차를 수행하고 생물 안전 지침을 따르십시오. 바이러스를 포함하는 액체 폐기물은 폐기하기 전에 소독해야합니다.- 10 %의 태아 보충 HEK 293 세포 배양 배지 (DMEM 높은 포도당과 함께 100mm 접시 (~ 형질의 날에 80 % 합류)에 판 4.0 × 10 6 293T 세포,소 혈청, 100 U / ㎖ 페니실린, 100 μg의 / ㎖ 스트렙토 마이신 및 2 mM L- 글루타민) 형질 감염 전 24 시간.
- 실온으로 형질 감염 시약을 따뜻하게. 8 μg의의 렌티 바이러스 전송 벡터와 함께 렌티 바이러스 포장 벡터 (4 μg의 pMD2.G 6 μg의 psPAX2) 혼합 (Celf1의 shRNA 또는 제어 shRNA를 스크램블) 1 ml의 무 혈청 세포 배양 배지에서. 소용돌이 짧게.
- DNA를 / DMEM 튜브에 36 μL 사전 예열 형질 전환 시약을 추가하고 소용돌이에 의해 잘 섞는다. 30 분 동안 혼합물을 실온에서 인큐베이션.
- 인큐베이터에서 293T 세포를 제거하고 판에 형질 전환 혼합물을 추가합니다. 부드럽게 플레이트 소용돌이 다시 5 % CO 2, 37 ° C 배양기에 반환. 24 시간 후, 10 ml의 신선한 배양액으로 형질 전환 혼합물을 교체합니다.
- 형질 전환 후 상층 액을 포함 렌티 바이러스 48 시간을 수집하고 50 ml의 원심 분리기 튜브로 전송할 수 있습니다. 접시에 10 ml의 새로운 따뜻한 미디어를 추가하고 반환인큐베이터합니다. 4 ° C에서 뜨는을 저장합니다.
- 형질 전환 후 상층 액을 60 시간의 두 번째 배치를 수집하고 2.3.5에서 뜨는와 결합. 500 XG, 7 분 4 ° C에서 원심 분리기 잠시.
- 신선한 50 ML의 원심 분리기 튜브에 뜨는을 전송합니다. 신선한 바이러스를 사용하는 경우, 2.3.9 단계로 진행합니다. 향후 사용을 위해, 매장 10 ㎖를 분취에서 -20 ° C에서 뜨는 바이러스 함유.
- 동결 스톡이 사용되는 경우, 사용하기 전에 실온에서 2.3.7에서 바이러스를 해동.
참고 : 여러 동결 해동 사이클을 피하십시오. - 전달의 같은 날 2.2.9에 기술 된 바와 같이 (2.1 절에서 얻은) 플레이트 C2C12-CUG200 세포.
참고 : 30 목표 - 합류의 40 %. - C2C12-CUG200의 60mm 판을 감염 인큐베이터에 접시를 반환하는 0.5 ml의 바이러스를 추가합니다.
- 전달 후 72 시간 - 선택 항생제 (3 μg의 / ㎖의 퓨로 마이신 1)와 보충 신선한 매체와 문화 매체를 교체합니다.모든 untransduced C2C12 - CUG200 제어 문화가 밖으로 죽을 때까지 5 ~ 일 동안 선택 항생제와 문화 매체 일상을 새로 고칩니다.
- GFP-CUG200 형질 세포에서 Celf1 최저를 확인하기 위해 웨스턴 블롯을 사용합니다.
3. C2C12 세포 분화
- 플레이트 분화 개시 전에 2.5 ml의 성장 매체 24 시간에서 6 웰 플레이트 잘 하나에 2 × 10 6 세포.
주 : 전체 합류 24 시간에 도달되도록 도금 밀도를 조정할 수있다.- PBS로 융합 세포를 씻어 낮은 혈청 분화 배지 2.5 ㎖ (둘 베코 이글 배지는 2 % 말 혈청 개질 100 U가 / ㎖ 페니실린, 100 μg의 / ㎖ 스트렙토 마이신, 2 mM L- 글루타민, 1 μM의 인슐린)을 추가 . 매 2 일 매체를 교체합니다.
참고 : 냉동 재고 인슐린을 유지하고 각각의 매체 변화에 미디어에 추가합니다.
- PBS로 융합 세포를 씻어 낮은 혈청 분화 배지 2.5 ㎖ (둘 베코 이글 배지는 2 % 말 혈청 개질 100 U가 / ㎖ 페니실린, 100 μg의 / ㎖ 스트렙토 마이신, 2 mM L- 글루타민, 1 μM의 인슐린)을 추가 . 매 2 일 매체를 교체합니다.
- C2C12 차별화하는 동안, 콴에 대한 샘플을 수집titative 다음 시점에서 RT-PCR (섹션 4 참조) Day0, 1, 2, 4, 6 일째에 대한 면역 염색 배양 공정 6 - 8 (섹션 5 참조).
4. RNA의 분리 및 정량 RT-PCR
- RNA 분리에 대한 제조 업체의 프로토콜을 사용합니다. 분리 후, 30 μL의 RNase가없는 물에 RNA 펠렛을 재현 탁하고 다운 수회 피펫을하고.
주의 : 샘플을 정량적 RT-PCR을 진행 또는 -80 ° C에서 저장 될 수있다. - 정량적 RT-PCR (10)에 대한 RT qPCR에 키트를 사용하여 제조업체의 지시 사항을 따르십시오. 표 1에 따른 반응 혼합물을 준비한다.
| 구성 요소 | 볼륨 (μL) | 최종 농도 |
| 2 × 반응 버퍼 | (10) | 1 배 |
| 앞으로 프라이머 | 0.5 | 200 nm의 |
| 역방향 프라이머 | 0.5 | 200 nm의 |
| 조사 | 0.5 | 200 nm의 |
| 효소 및의 RNase 억제제 역 | 0.1 | 0.25 U / ㎖ |
| 주형 | 1 | 100 NG 총 RNA |
| 의 RNase없는 물 | 7.4 | NA |
| 총 믹스 | (20) |
표 1. 정량적 RT-PCR 마스터 믹스 준비
- 열 프로파일 표 2를 사용하여 20 ㎕의 RT-qPCR에 반응을 실행합니다.
| 역전사 단계 | 30 분, 48 ° C |
| DNA 폴리머ASE의 활성화 / 비활성화 역전사 | 10 분, 95 ° C |
| (40) 사이클 | 15 초, 95 ° C |
| 1 분, 60 ° C |
표 2. 정량적 RT-PCR 열 프로파일
5. 면역 염색
- 2.5 단층 배양 해결 갓 실온에서 10 분 동안 4 % 파라 포름 알데히드 / PBS를 제조 ㎖로.
- 실온에서 30 분 동안 2.5 ml의 0.1 % 트리톤 X-100 / PBS에서 샘플 Permeabilize 하시려면.
- 가습 챔버에 샘플을 전송합니다. 37 ° C에서 30 분 동안 완충액 (0.1 % 비이 온성 계면 활성제 / PBS 10 % 정상 염소 혈청)을 차단하는 2.5 ml의 샘플을 차단.
- 차단 버퍼를 취소하고 버퍼 (1 : 100)를 차단에 희석 마이 오신 무거운 사슬에 800 μL 차 항체를 적용합니다. 상온에서 습윤 챔버에서 밤새 인큐베이션.
- 판 3 팀을 씻으십시오ES 2.5 ml의 세척 버퍼 2 일에 (0.1 % 폴리 소르 베이트 20 / PBS)와 (10 분마다).
- 세척 완충액을 제거하고 800 ㎕의 차 항체 (염소 항 - 마우스 IgG, 1 : 500 희석 된 PBS)을 적용한다. 실온에서 1 시간 동안 습윤 챔버에서 인큐베이션.
- 2.5 ml의 세척 버퍼로 2 회 (10 분마다)를 씻으십시오.
- 5 분 (증류수 탈 H 2 O에 희석 1 μg의 / ㎖) 800 ㎕를의 DAPI로 품어.
- 10 분 동안 다시 2.5 ml의 세척 버퍼로 씻으십시오.
- 2.5 ml의 PBS로 세척 버퍼를 변경하고 이미지를 캡처하는 형광 현미경을 사용합니다.
결과
C2C12 세포는 GFP-CUG5 또는 GFP-CUG200로 형질했다. 약제 내성의 선택 후, 안정한 풀을 GFP 발현 (도 1a)에 의해 시각화 될 수있는 확립 하였다. 차별화 된 근육 아세포에서 Myotube 형성은 10 (그림 1B)를 면역 염색 중쇄를 미오신에 의해 검출되었다. myotube 형성의 정량은 융합 지수는 2.6 ± 1.1 %로 35.4 ± 4.1 %로 감소하고, myotube 영역이 GFP-CUG200 (그림 1C)에 이상 CUG 확장에 의해 2.7 ± 0.8 %로 35.6 ± 2.2 %로 감소되었음을 보여 주었다. 융합 인덱스 및 myotube 영역 핵의 총수 및 각각 myotubes 의해 덮여 전체 화상 영역의 비율로 나눈 myotubes (≥ 2 핵)의 핵의 총 개수로 계산 하였다. 실시간 RT-PCR (10)는 다른 근육의 숫자에 대한 표현을 분석 하였다MyoD, MyoG, Mef2c 및 Celf1 포함 iation 관련 유전자. CUG5 배양에 비해 CUG200 분화의 시작 아세포 증식에 Celf1의 mRNA의 발현이 증가 하였다. 이전 보고서와 일치하는, Celf1의 상향 조절은 근육 조직의 영양 장애 1 (그림 1D)에 CUG 팽창과 연관이 있었다. 또한, 웨스턴 블로 팅 (10)는 지속적으로 보여 Celf1 단백질 수준 (그림 1E) 상승 및 CUG200는 분화 (그림 1D) 동안 MyoD, MyoG 및 Mef2c의 발현을 억제되었다. 이러한 결과는 CUG-확장 결함과 장애 근원 세포의 분화를 myotube에 이르게하는 것이 좋습니다.
근원 세포의 분화에 Celf1의 역할을 연구하기 위해, pMSCV- Celf1Flag의 레트로 바이러스 벡터는 C2C12 세포를 형질 도입하도록 구성되었다. 10 퓨로 마이신 내성 클론 분화 연구에 풀링 하였다. 웨스턴 블롯 결과를 보여 주었다 플래그 - 타gged Celf1는 pMSCV-Celf1Flag 형질 문화 만 존재하고 Celf1 단백질의 발현은 (그림 2A)를 상향 조절했다. Celf1의 과발현 심각한 근육 모세포 분화 저해 제안 제어 배양 (도 2B)에 비해 세포 Celf1가 과발현에 myotubes의 형성은 드물다.
Celf1의 최저은 CUG 팽창 세포에서 분화 결핍을 구출 있는지 확인하려면 Celf1의 shRNA는 렌티 바이러스 벡터에 의해 GFP-CUG200 세포에 전달했다. 더블 내성 클론 (G418 및 퓨로 마이신)를 선택 분화 연구에 풀링 하였다. Celf1 내인성 단백질의 수준이 현저 Celf1의 shRNA (도 3A)의 존재 하에서 감소 하였다. 분화 6 일 후, myotube 형성을 증가에 Celf1의 shRNA의 효과 (그림 3B) 분명했다. 퓨전 지수와 myotube은로 4.6 ± 0.8 % 및 제어 배양 (도 3c)에서 5.1 ± 1.3 %과 비교하여 각각 16.1 ± 3.0 % 15.2 ± 1.2 %였다. 한편, 실시간 RT-PCR 결과 MyoD, 및 MyoG Mef2c의 발현이 현저히 Celf1 최저 구출 근세포 분화 결핍지지 Celf1 shRNA를 셀 (도 3D)이 증가되었음을 시사한다.
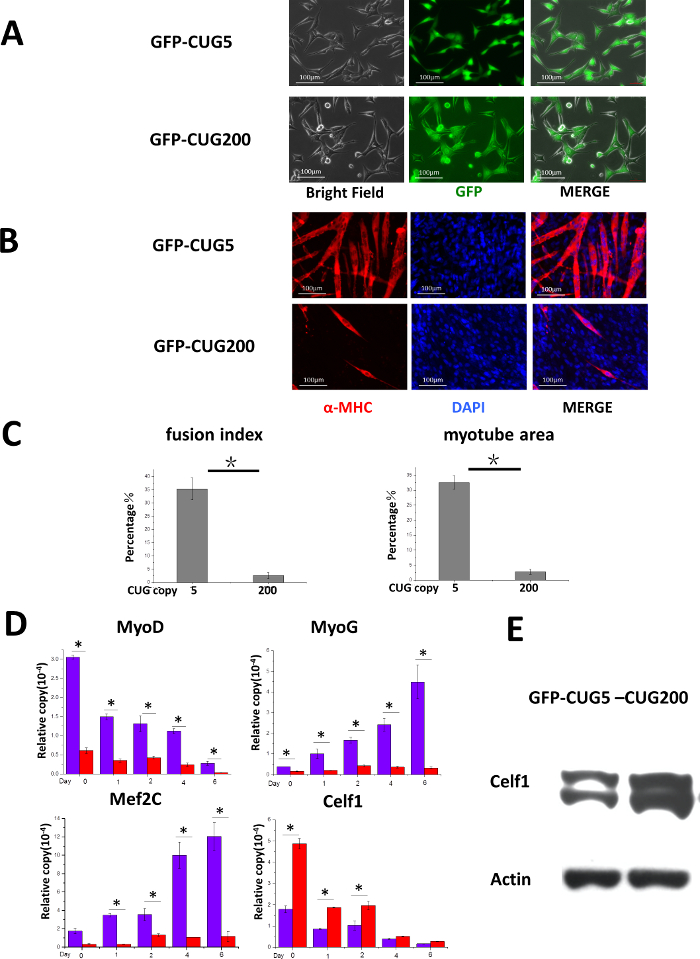
그림 1. CUG-확장 C2C12 세포에서 심근 세포의 분화를 억제한다. (A) C2C12 세포는 선택 후 재하 GFP-CUG5 또는 GFP-CUG200를 표명했다. 스케일 바는 100 μm의 수 있습니다. 이 수치는 이전 용지 (10)에서 수정되었습니다. (B)는 Myotubes는 GFP-CUG5 세포에서 형성하지만 GFP-CUG200 세포에서 덜했다. Myotubes는 중쇄 (MF-20) 면역 염색을 미오신에 의해 가시화되었다. 스케일 바는 100 μm의입니다. (C) GFP-CUG200 문화는 상당히 융합 지수와 myotube 영역을 감소시켰다. 오류 막대는 표준 편차를 나타냅니다. (D) Celf1의 실시간 RT-PCR 분석, 전사는 근육 모세포의 분화 동안 MyoD, MyoG 및 Mef2c 발현 요인. mRNA 수준은 GAPDH 정규화 후의 플롯 하였다. 오류 막대는 표준 편차를 나타냅니다. 스튜던트 T 테스트 컨트롤 시험을 비교 하였다. N> 3 * P <0.05. (E) GFP-CUG200 형질 증가 Celf1 단백질 발현. ß-굴지는로드 컨트롤로 표시됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
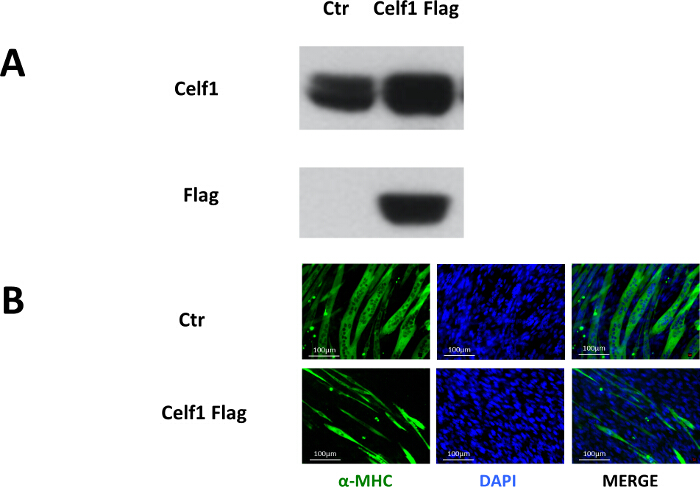
Celf1 손상 근육 모세포의 분화 그림 2. 과발현. 외인성 Celf1Flag의 expre의 (A) 증명웨스턴 블롯에 의해 C2C12 세포에서 ssion는. (B) Myotube 형성은 Celf1Flag 과발현 C2C12의 근육 아세포에 손상되었다. Myotubes은 MF-20의 면역 염색에 의해 가시화되었다. 스케일 바는 100 μm의입니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
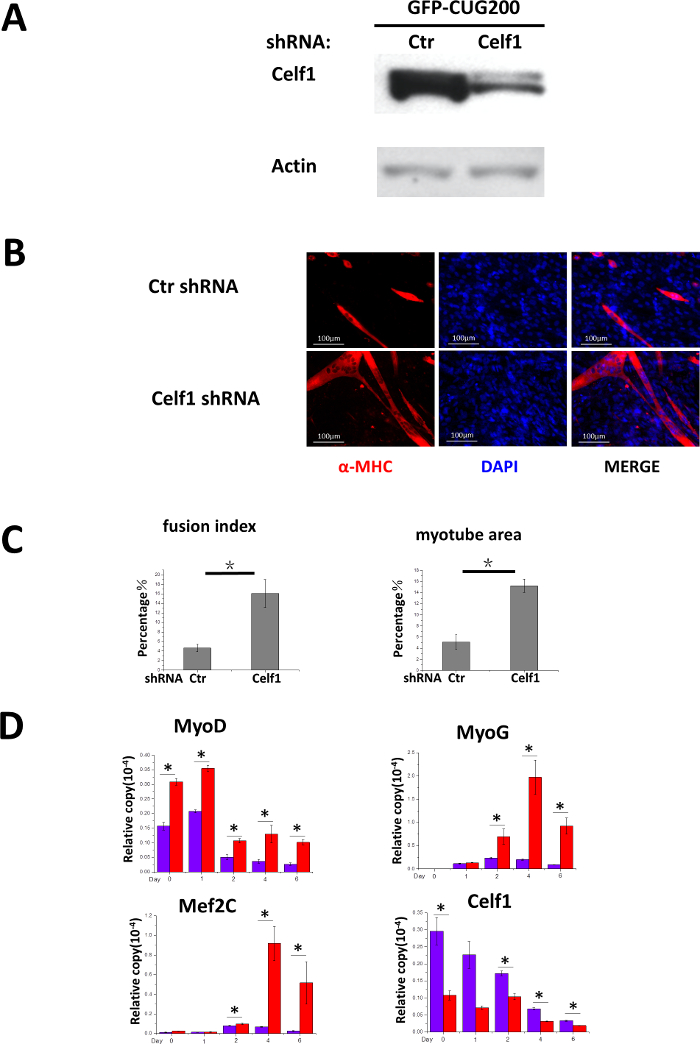
Celf1 부분적으로 구출 CUG-확장 유도 근원 세포의 분화 결핍의 그림 3. 최저. 웨스턴 블롯에 의해 Celf1 최저의 (A) 증거. GFP-CUG200의 근육 아세포에서 (B) Celf1 shRNA를 유도 myotube 형성. Myotubes은 MF-20의 면역 염색에 의해 가시화되었다. 스케일 바는 융합 지수와 myotube 영역을 증가 하였다 100 μm의. (C) Celf1의 shRNA가-구조 세포이다. 오류 막대는 표준 편차를 나타냅니다. (D) Celf1의 실시간 RT-PCR 분석, 전사는 차별화 동안 MyoD, MyoG 및 Mef2c 발현 요인. mRNA의 수준은 GAPDH의 정규화 이후에 플롯 하였다. 오류 막대는 표준 편차를 나타냅니다. 학생의 T 테스트는 컨트롤에 검사를 비교 하였다. N> 3, * P <0.05. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
C2C12 세포주 11-14 근육 생성을 연구 모델로서 이용되어왔다. 이러한 세포는 섬유 아세포와 같은 모양을 유지, 20 % 소 태아 혈청을 함유하는 배지에서 증식 신속 용이 2 % 말 혈청 (15)를 포함하는 배지에서 분화. 빠른 성장 및 분화는 근육 생성 세포 모델에서 유리한 특성이다. 여기서는 C2C12 세포 내로 cDNA의 3'-UTR, 및 shRNA를 소개하는 플라스미드, 레트로 바이러스 및 렌티 바이러스 벡터의 사용을 입증한다. 형질 전환 / 전달 및 분화의 일관성 유지를위한 중요한 포인트는 아래에 강조 표시됩니다.
매일 셀 유지 보수의 세포 밀도가 매우 중요하다. 70 % 합류 - 이들 세포는 50 이하로 배양 할 필요가있다. 밤새 떠날 때 때문에 짧은 인구 배가 시간에 높은 합류 (> 70 %) C2C12 문화는 자발적으로 구별합니다. 자발적으로 분화 된 세포의 비율을 작게 할 수 있지만, 존재차별화 된 세포는 이후 분화 실험에서 일관성에 기여할 것입니다. 낮은 통로 번호를 갖고 또한 갓 해동 C2C12 세포가 바람직하다. 그들은 24 시간 후 완전 합류에 도달 할 수 있도록 차별화를 들어, 세포는 미리 정해진 번호로 도금되어있다. 인슐린은 작은 분취 량을 동결 보관하고, 분화 배지가 변경 될 때마다 추가된다. 이러한 조치는 차별화 성과를 향상시킬 수 있습니다.
무 혈청 배지는 C2C12 세포의 형질 감염을 향상시킨다. 세포를 밤새 형질 전환 혼합물 / 무 혈청 배지에서 배양 할 수있다. 연구실에서는 약간의 독성 증상을 동반 형질 감염 20 % 속도까지 달성한다. C2C12 세포를 선택하기 위해 사용되는 약물의 농도가 높은 1.2-1.6 ㎎ / ㎖의 G418 또는 1 내지 3 μg의 / ㎖ 푸로 마이신, 및 이상 대부분의 다른 세포주보다 선택의 지속 기간이다. 때문에 높은 약물 농도 하에서 잠재적 독성 및 연장 된 배양 기간 로트에분화 잠재력의 변화가 발생할 수 있습니다. 세포의 모양에 따라 선택 방식 (농도 및 지속 시간)을 조정하고, 함께 실험과 대조군의 치료에 매우 중요하다.
우리는 성공적으로 DM1의 3'-UTR의 CUG 확장을 재현 C2C12 세포에 GFP-CUG200을 도입했습니다. GFP-CUG200 C2C12 세포로 C2C12 세포와 Celf1의 shRNA에 Celf1 소개는 Celf1의 상향 조절 및 Celf1 각각 DM1의 근육 모세포의 분화를 돕기 위해 대상의 탐사에 의해 유발 세포 및 분자 이벤트의 평가를 허용했다. 요약하면, 여기에 제시된 C2C12의 근원 세포 모델은 근긴장 성 이영양증뿐만 아니라 일반 근육 세포 생물학 및 근육 조직 분화의 조사에 도움이됩니다. 이 모델의 제한은 세포주의 연구 결과는 완전히 생물로 확장되지 않을 수있다. 현재 모델의 결과는 종종 자신의 differentia를 동물에서 신선한 근육 아세포를 분리하고 공부에 진출하는기. 궁극적으로 우리는 생물의 근원 세포 연구 결과를 입증.
이 연구의 고유 강도가 DM1의 연속 유전 적 / 병리학 이벤트를 모델링 가능 C2C12의 근육 아세포에서 다중 계층 유전자 조작이다. Celf1의 병리학 적 역할이 별도로 마우스 모델 (16, 17)에 조사하는 동안 이전 DMPK CUG 확장 RNA의 독성 효과는 근육 아세포 11-14에서 설명 하였다. 이러한 순차적 인 유전 / 병적 인 이벤트를 모델링하는 것은 기술적으로 어려운 시간 동물 모델에서 수행 한 경우이 소요됩니다. 이 연구에서 입증 된 바와 같이, 형광 및 약제 내성 마커의 조합 사용은 근긴장 성 이영양증에 추가 분자 이벤트의 모델링을 할 수 있습니다. 본 연구에서 확립 된 모델은 DM1의 발병 기전에 대한 자세한 메커니즘을 해부에 유용 할 것이다. 또한 DM1의 발병 기전의 다른 단계를 대상으로 의약품에 대한 심사에 도움이 될 것입니다. 전략이 절차연구는 근육 아세포의 다른 근육 질환 모델 구축을 밝혀 수 있습니다.
공개 사항
저자는 공개할 것이 없습니다.
감사의 글
시약을 제공해 주신 베일러 의과대학의 톰 쿠퍼(Tom Cooper) 박사님, 위스콘신-매디슨대학교(University of Wisconsin-Madison)의 마니 S. 마하데반(Mani S. Mahadevan) 박사님, 제네바 대학교(University of Geneva)의 디디에 트로노(Didier Trono) 박사님께 감사드립니다. 이 연구는 휴스턴 대학교 스타트업 펀드(YL), 미국심장협회 보조금(YL, 11SDG5260033) 및 중국 국립자연과학재단(XP, 81460047)의 지원을 받고 있습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| DMEM, 고포도 | Life Technologies | 11965-084 | 배양 배지 |
| Fetal Bovine Serum - Premium | Atlanta Biologicals | S11150 | 배양 배지 |
| 페니실린-스트렙토마이신-글루타민 (100x) | Life Technologies | 10378-016 | 배양 배지 |
| 인슐린 소 췌장 Sigma | Aldrich | I6634-100MG | 분화 매체 |
| Atlanta Biologicals | S12150 | 분화 매체 | |
| FuGENE HD 형질주입 시약 | Promega | E2311 | transfection용 |
| G418 황산염 | 골드 바이오테크놀러지 | 약물 내성 선택을 위한 | G-418-10 |
| Puromycin dihydrochloride | Sigma Aldrich | sc-108071 | 약물 내성 선택을 위한 |
| NuPAGE Novex 4 - 12% Bis-Tris 단백질 겔, 1.0 mm, 15 well | Life Technologies | 웨스턴 | 블롯용 |
| NP0323BOX NuPAGE Transfer Buffer (20x) | 웨스턴 블롯을 위한 | Life Technologies | NP00061 |
| NuPAGE MES SDS Running Buffer (20x) | 웨스턴 블롯에 대한 | Life Technologies | NP0002 |
| Amersham Protran 지원 0.2 NC, 300mm x 4m | 블롯에 대한 | GE 헬스케어 생명 과학 | 10600015 |
| MF 20 | 발달 Hybridoma Bank | MF 20 | 일차 Ab 면역 염색을 위한 |
| 염소 항 마우스 IgG (H+L) 2차 항체, Texas Red-X conjugate | Thermo Fisher Scientific | T-862 | 2차 Ab 면역염색 |
| qRT-PCR MasterMix | AnaSpec | 05-QPRT-032X | for qRT-PCR |
| TriPure 분리 시약 | Roche | 11667165001 | RNA 분리용 |
| CUG-BP1 항체 (3B1) | santa cruz | sc-20003 | primary Ab western blot |
| Actin 항체 | santa cruz | sc-1615 | goat polyclonal IgG for loading control |
| 293T Ecopack | 클론텍 | 631507레 | 트로바이러스 제제를 위한 세포 |
| pMSCV-puro | 클론텍 | 634401 | 레트로바이러스 제제를 위한 빈 레트로바이러스 벡터 |
| pMSCV-Celf1Flag-puro | 하우스 구성 | 트로바이러스 제제에 사용되는 Celf1Flag를 인코딩하는 레트로바이러스 벡터 | 사용 불가 |
| 디에 트로노의 | psPAX2 | 렌티바이러스 제제에 | 사용할 수 없음 |
| 디디에 트로노로부터의 | pMD2.G | 렌티바이러스 제제에 | 사용할 수 없습니다 |
| M.S. 마하데반으로부터 | GFP-CUG5 | 참조 10에서 | 사용할 수 없습니다 |
| M.S. Mahadevan의 | GFP-CUG200 | 참조 10 에서 사용할 | 수 없습니다 |
| 트리톤 X-100 | 시그마 Aldrich | X100 | 면역 염색 |
| 파라포름알데히드 | Sigma Aldrich | P6148 | 면역 염색 |
| TWEEN 20 | 면역염색을 위한 | Sigma Aldrich | P9416 |
| DAPI | 염색을 위한 | Sigma Aldrich | D9542 |
참고문헌
- Harper, P. S. Myotonic dystrophy. 3rd edn. , W. B. Saunders. (2001).
- Timchenko, L. Molecular mechanisms of muscle atrophy in myotonic dystrophies. Int J Biochem Cell Biol. 45 (10), 2280-2287 (2013).
- Brook, J. D., et al. Molecular basis of myotonic dystrophy: expansion of a trinucleotide (CTG) repeat at the 3' end of a transcript encoding a protein kinase family member. Cell. 68 (4), 799-808 (1992).
- Chau, A., Kalsotra, A. Developmental insights into the pathology of and therapeutic strategies for DM1: Back to the basics. Dev Dyn. 244 (3), 377-390 (2015).
- Ho, T. H., et al. Muscleblind proteins regulate alternative splicing. EMBO J. 23 (15), 3103-3112 (2004).
- Kuyumcu-Martinez, N. M., Wang, G. S., Cooper, T. A. Increased steady-state levels of CUGBP1 in myotonic dystrophy 1 are due to PKC-mediated hyperphosphorylation. Mol Cell. 28 (1), 68-78 (2007).
- Kalsotra, A., et al. The Mef2 transcription network is disrupted in myotonic dystrophy heart tissue, dramatically altering miRNA and mRNA expression. Cell Rep. 6 (2), 336-345 (2014).
- Yaffe, D., Saxel, O. Serial passaging and differentiation of myogenic cells isolated from dystrophic mouse muscle. Nature. 270 (5639), 725-727 (1977).
- Blau, H. M., Chiu, C. P., Webster, C. Cytoplasmic activation of human nuclear genes in stable heterocaryons. Cell. 32 (4), 1171-1180 (1983).
- Peng, X., et al. Celf1 regulates cell cycle and is partially responsible for defective myoblast differentiation in myotonic dystrophy RNA toxicity. Biochim Biophys Acta. 1852 (7), 1490-1497 (2015).
- Amack, J. D., Mahadevan, M. S. The myotonic dystrophy expanded CUG repeat tract is necessary but not sufficient to disrupt C2C12 myoblast differentiation. Hum Mol Genet. 10 (18), 1879-1887 (2001).
- Amack, J. D., Paguio, A. P., Mahadevan, M. S. Cis and trans effects of the myotonic dystrophy (DM) mutation in a cell culture model. Hum Mol Genet. 8 (11), 1975-1984 (1999).
- Bhagavati, S., Shafiq, S. A., Xu, W. (CTG)n repeats markedly inhibit differentiation of the C2C12 myoblast cell line: implications for congenital myotonic dystrophy. Biochim Biophys Acta. 1453 (2), 221-229 (1999).
- Amack, J. D., Mahadevan, M. S. Myogenic defects in myotonic dystrophy. Dev Biol. 265 (2), 294-301 (2004).
- Emerson, C. P., Sweeney, H. L. Methods in muscle biology. 52, Academic Press. (1997).
- Ward, A. J., Rimer, M., Killian, J. M., Dowling, J. J., Cooper, T. A. CUGBP1 overexpression in mouse skeletal muscle reproduces features of myotonic dystrophy type 1. Hum Mol Genet. 19 (18), 3614-3622 (2010).
- Koshelev, M., Sarma, S., Price, R. E., Wehrens, X. H. T., Cooper, T. A. Heart-specific overexpression of CUGBP1 reproduces functional and molecular abnormalities of myotonic dystrophy type 1. Hum Mol Genet. 19 (6), 1066-1075 (2010).
재인쇄 및 허가
