이 메서드는 모든 2 중 부담에서 tetraploid 및 triploid 꼬마 선 충의 세대에 대 한 수 있습니다. 이다 긴장이이 메서드에 의해 생성 된 meiotic 의향에서 염색체 상호 작용을 공부 하는 데 사용 되었습니다 그리고이 메서드는 셀을 개발, 진화, 그리고 암 생물학에서 중요 한 기본적인 질문을 검토 하는 데 유용.
이 논문에서
요약
초록
개발 및 진화; 전체 게놈 polyploidy 놀이 중요 한 역할을 포함 하는 메커니즘 또한, tetraploid 세포의 비정상적인 생성은 암 진행 및 약물 저항의 개발 관련 된 되었습니다. 지금까지, 그것은 쉽게 주로 살 균 자손을 생성 하지 않고 다세포 동물의 ploidy 조작 가능 하지 않았습니다. 여기는 tetraploid 꼬마 선 충 을 생성 하기 위한 간단 하 고 빠른 프로토콜 제시 어떤 2 중 긴장에서 동물. 이 메서드를 사용 하면 궁극적으로 증가 ploidy C. 선 충에서 감수 분열 동안 염색체 분리에는 바이어스를 만들 수 있습니다. 이 전략의 rec-8 진 2 중 gametes를 생성 하는 식의 일시적 감소에 의존 합니다. Rec-8 돌연변이 잠재적으로 수정 시 tetraploids를 생산할 수 있는 2 중 gametes를 생성 합니다. 이러한 세공 구조는 돌연변이 염색체 재배열 페어링 및 synapsis 감수 분열에서 염색체 역학과 상호 작용에 대 한 통찰력을 얻기 위해 들고 tetraploid 긴장을 생성 하 사용 되었습니다. 이 방법은 유전자 표시 없이 안정적인 tetraploid 긴장을 생성 하기 위한 효율적인, 어떤 2 중 긴장에 적용 될 수 이며 triploid C. 선 충을 파생 하는 데 사용할 수 있습니다. 이 간단한 메서드는 다른 근본적인 생물학 질문 게놈 불안정성, 유전자 노출량, 생물학 확장, extracellular 신호, 적응 스트레스, 약물, 저항의 개발 관련 조사 및 종 형성의 메커니즘입니다.
서론
전체 게놈 polyploidy 자연에 걸쳐 존재 하 고는 종종 적응, 종 형성, organogenesis, 상처 치유, 및 생물 학적 스케일링;에서 필요한 단계 그것은 또한 암 및 저항 마약1,2,3,,45,6,7,8, 에 알려져 9 , 10 , 11 , 12. 농업 및 어업 산업 생성 이다 식물, 생선, 그리고 조개 화학 치료 (예를 들어, 콜 히 친 고 orzalin) 빠른 성장 속도 및 bulkier 작물과 가축13, , 14,15. Tetraploids의 실험 및 비효율적인 생산 마우스와 zebrafish 모델 시스템16,17에 대 한 존재합니다. 그러나, 대부분의 또는 모든 이다 다세포 동물 생성 embryonically 치명적인 또는 살 균 및 따라서 다세포 생물에서 polyploidy의 효과 대 한 실험실 연구에 대 한 좋지 않은 있습니다. 따라서, 다세포 생물에 전체 게놈 polyploidization의 어떤 이해 제한 되었습니다 밀접 하 게 관련 종 진화 최근 polyploidization 이벤트18,19,20 . 생물학 역할의 쿼리 또는 polyploidization의 결과를 경로 C. 선 충 모델 시스템의 사용 이다. 중요 한 것은, C. 선 충 은 일반적으로 존재 하는 2 중으로, 5 autosomes (A) 그리고 게놈 당 1 개의 성 염색체 (X)를 포함, vivo에서 생물 학적 과정의 관찰에 대 한 투명 한 수 세공 유전자 시스템 및 (성적으로 성숙한 성인에 게 계란)에서 3-4 일의 짧은 라이프 사이클 있다. C. 선 충 전체 게놈 자연에서 polyploidy의 가장 일반적인 유형인 tetraploid로 재현할 수 표시 되었습니다. Triploid 동물 diploids와 함께 tetraploids로 생성 될 수 있습니다 하지만 그들의 ploidy 안정적 이며 긴장 될 몇 세대 내 2 중.
지난 몇 십년에 한 줌의 실용적이 고 비옥한 C. 선 충 tetraploids 긴장 고립 되었다 실험실에서 힘 드는 이며 제한 된 유형의 긴장21,22, 를 생성 하는 전략을 사용 하 여 23.이 전략 C. 선 충 tetraploids 여 생성 열 충격 처리는 아마도 유전자 표시를 사용 하 여 상 상속 이다 동물에 대 한 심사 뒤 gametes에서 염색체 분리에 영향을 줍니다. 이 tetraploids이 선 충이 류 남성 또는 자웅 동체 될 것인지를 결정 하는 방법의 문의에 매우 유용 했다. 나중 연구 조사, 유전자 복용량, 성장과이 선 충21,,2425,26감수 분열 동안 synapsis의 규정을 사용할 수 있는 긴장을 사용. 불행 하 게도, 이러한 연구는 새로운 tetraploid 긴장과 배경 유전자 표시 포함 된 이러한 변종 생성 어려움에 의해 제한 되었다. 여기에 표시 된 감수 분열27동안 synapsis의 규칙을 공부 하는 긴장을 생성 하는 데 사용 되었습니다는 안정적인 tetraploids, 생성 하 간단 하 고 빠른 프로토콜이입니다.
자연에서 polyploidization 단일 gametes 대신 2 중의 형성에 의해 발생할 수 있습니다. 감수 분열-특정 cohesin 구성 요소 돌연변이 rec-8 2 중 정자 생성 및 oocytes 표시 rec-8 유전자를 노크 하는 우리의 찾는 tetraploid 자손 (그림 1)27의 생산 귀 착될 것입니다. , 2829. 노크 rec-8 phenocopy rec-8 순서로 2 세대에 대 한 RNA 간섭 (RNAi)에 의해 2 중 gametes 돌연변이 포함 됩니다 단순히 tetraploid 긴장을 생성. 상 상속 polyploids 그들의 이상으로 쉽게 식별할 수 있습니다 정상적인 신체 크기 보다. Polyploids는 일단 안정적인 라인 설립 핵 당 염색체의 수를 계산 하 여 전체 또는 일부 tetraploids로 확인 됩니다.
여기에 설명 된 전략 초기 2 중 유전 배경 또는 karyotype 유전자 표시의 사용 없이 안정적인 tetraploid 꼬마 선 충 종자의 생성 수 있습니다. 이 프로토콜 더 다재 다능 한, 효율적이 고 이전에 사용 하는 제도 보다 간단한 이기 때문에, 그것은 개발, 게놈 안정성 및 다세포에 진화의 기본적인 과정에 polyploidization의 역할을 쿼리 하는 데 필요한 도구를 확장 됩니다. 유기 체입니다. 이 프로토콜의 사용에만 예측 가능한 한계 유전 배경 RNAi를 저항에 이다.
프로토콜
1. 설정 rec-8 RNAi ( 그림 2의 일 1-3)
이 프로토콜은 Kamath 및 Ahringer30에서 수정 됩니다.
- 대장균에 rec-8 dsRNA 식의 유도, 선 충 류 성장 매체 (NGM) 한 천 격판덮개31 1mm 이소프로필-β-D-2-thiogalactopyranoside (IPTG)와 100 µ g/mL의 최종 농도와 보완을 준비합니다 암 피 실린입니다. 사용, 최대 4 주까지 4 ° C에서 어둠 속에 저장 합니다.
- 100 µ g/mL 암 피 실린과 50 µ g/mL 항생물질 보충 Luria 국물 (파운드) 접시에 Ahringer 연구소 도서관30 rec-8 클론에서 rec-8 (W02A2.6) 복제를 들고 행진 HT115 박테리아. 37 ° c.에 통에 하룻밤 성장
- 주 1 4 mL 파운드 포함 100 µ g/mL 암 피 실린 및 50 µ g/mL 항생물질으로 rec-8 RNAi 클론을 들고 HT115 대장균 박테리아의 갓 질주 된 단일 식민지에서 단일 식민지 접종. 성장 통 또는 37 ° c.에 롤러 드럼에 하룻밤 박테리아 문화
- 다음날 아침 (주 2), 두 배 배가 좌초 하는 (ds) RNA 1mm IPTG의 최종 농도 추가 하 고 37 ° c.에 40 분 동안 흔들어 여 HT115 세균성 문화에 rec-8 W02A2.6의 생산을 유도
- 유도 후 NGM/IPTG 접시 HT115 rec-8 박테리아의 100-200 µ L 씨 하 고 어두운 하룻밤 (3 일)에 실 온에서 접시를 저장.
- 다음날 아침 (4 일), 단계 2.1 아래에 설명 된 대로 유도 HT115 rec-8 박테리아 접시에 원하는 선 충 스트레인을 추가 합니다.
2. 생성 하 고 Tetraploids ( 그림 2에서 4-16 주) 분리
- 하루 4, L4 (4 애벌레) 단계 광고에 나온 것 NMG/IPTG 접시에 원하는 2 중 긴장의 하루 전에 유발 했다 HT115 rec-8 박테리아와 시드 3-4 영 장소 (위에 1.5, 단계). 어둠 속에서 15 ° C에서 선 충을 성장.
- 3 일 전에 해당 단계에서 첫 번째 자손 (F1s) L4s 될 것입니다 1.3과 1.4 단계 2.1, 후에 3 일을 시작 단계 반복 합니다. 이 단계의 타이밍 15 ° c.에 얼마나 빨리 선 충 스트레인 성장에 따라 달라 집니다. 일부 2 중 돌연변이 체 긴장은 느린 재배 자, 그리고이 타이밍 잘 필요 tetraploids을 분리 하려면.
- ( Rec-8 RNAi 먹이 치료의 4 일) 후 8 일, 20 (2 광고에 나온 것/페 트리 접시)는 F1 (첫 번째 자식 세대) L4 광고에 나온 것 갓 유도 HT115 rec-8 RNAi에 HT115 rec-8 박테리아에서의 전송 및 허용 그들 self-fertilize입니다.
- 또는,에 HT115 rec-8 박테리아에서 갓 재배는 F1 L4 광고에 나온 것의 전송 20 HT115 rec-8 RNAi 박테리아 같은 스트레인 (2 광고에 나온 것 4-6 남성/플레이트)의 치료 남성 함께 유도.
- 하루 13, 시작 나타나는 긴 자손 F2 (2 자식 세대)에 대 한 심사 (Lon)에 전체 보다 크거나 야생 유형; 다음 대장균 박테리아의 일반적인 OP50 또는 HB101 변종에 개별 론 동물 전송. 계속 심사 F3 (3 자식) 자손; 그러나, 동일한 접시에서 F3 자손 이라고 할 수 없다 독립 긴장 그들이 설립 될 경우, 그들은 수 있기 때문에 같은 형제 이미 F2 어머니를 설립.
참고: 그들은 명확 하 게 diploids 이상 때문에 상 상속 tetraploids 식별 쉽게 됩니다. 야생 타입 광고에 나온 것은 tetraploids 보다 짧은 3 분의 2. 그것은 더 이상, 때문에 tetraploid 몸 만드는 여분의 차례 꼬리 (그림 3A) 머리에서 정현파 몸 절곡 파도 생성 하 여 앞으로 이동. - Self-fertilize 하 론 자손만 rec-8 RNAi 치료의 부재에 낼지는 론 자손을 선택 하 여 전파 론 웜 수 있습니다. 이 2 ~ 3 추가 세대를 걸릴 수 있습니다. 론 벌레는 자주 살 균 하 고 자손을 생성 하지 않습니다.
3. 확인 Tetraploid 긴장 (영화 1와 그림 3A, B)
참고: Tetraploid 긴장 그들의 unfertilized oocytes에서 염색체의 수를 계산 하 여 유효성 수 있습니다. 형광 현미경 검사 법을 사용할 수 있는 경우 변형 염색체에 대 한 형광 성 감 적 (meiotic 사단), 이전 unfertilized 2 중 oocytes에서 염색체 쌍의 수에 대 한 화면. 염색체 형광 표식 부재, tetraploid nematodes 선 충 및 DNA 염료;와 얼룩에 의해 상영 수 있습니다. 에탄올 및 전체 동물 4 '에 대 한 프로토콜에 대 한 아래 참조 6-Diamidine-2-phenylindole dihydrochloride (DAPI) 얼룩.
- 전체 동물 DAPI 얼룩
참고: 12 연결 된 염색체 쌍을 들고 Tetraploid 긴장 DAPI 이러한 동물을 얼룩이 지 고는 unfertilized oocytes에 DAPI 시체의 수를 계산 하 여 유효성 수 있습니다.- 현미경 슬라이드에 M9 버퍼31 10 µ L 장소 5 다음 드롭 6-10 선 충을 전송.
- 해 현미경 보풀 청소 조직으로 선 충을 제거 하지 않고 사용에서 M9의 대부분을 그립니다. 그런 다음, 즉시 벌레에 90% 에탄올의 10 µ L 드롭 추가. 몇 초 보다는 더 이상 벌레 완전 하 게, 하지만 대 한 건조를 허용 합니다.
- 최대한 빨리 에탄올 증발 (이 볼 수 있습니다 해 현미경 발생), 90% 에탄올 벌레에의 한 추가 10 µ L을 추가.
- 3.1.3 단계 세 번 더 반복 합니다.
- 일단 마지막 한 방울까지 에탄올의 증발 했다, 선택 (예를 들어 m 9에 2 ng / µ L DAPI 재고 농도의 1:1,000 희석)의 설치 미디어에서 권장된 하는 최종 농도에 DAPI 또는 Hoechst 염료의 6 µ L를 추가 합니다. 슬라이드의 장기 저장을 위한 0.5 %p-phenylenediamine M9, 대신 20 mm Tris HCl, pH 8.8, antifade 솔루션으로 90% 글리세롤에 녹을 사용할 수 있습니다.
- coverslip로 슬라이드에 벌레를 커버 하 고 매니큐어와 coverslip의 가장자리를 밀봉. 형광 현미경 (단계 3.1.7) 점수는 coverslip 추가한 후 적어도 10 분. Antifade 없이 슬라이드 전에 득점, 4 ° C에서 몇 일 동안 저장 될 수 있다 하지만 형광의 품질 몇 일 후 감소 하기 시작 합니다.
- 바로 옆에 spermatheca 이며는 spermatheca 아직 입력 하지 않은 가장 성숙한 unfertilized oocyte에서 단일 DAPI 시체 (아마도 단일 염색체 쌍)의 수를 점수 100 배 확대에 형광 현미경을 사용 하 여 또는 자 궁입니다.
- 점수는 oocyte의 핵 내에서 개별 DAPI 시체, 현미경의 정밀한 초점을 사용 하 여 천천히 oocyte 핵의 위쪽에서 아래쪽으로 계산 하는 동안. 그런 다음, DAPI 시체의 계산된 수를 확인 하는 반대 방향으로 (즉, 핵의 맨 아래에서)에 포커스를 이동 하는 동안 동일한 핵 재검표.
- 가장 성숙한 unfertilized oocyte 안정적 Lon 스트레인 당 적어도 10 광고에 나온 것에 2 개의 생식 기의 각 점수. 야생 타입 oocytes 6 DAPI 시체 평균, 5 autosome 쌍과 성 염색체 쌍에 있다. 안정적인 론 종자는 oocyte에서 12 DAPI 시체의 존재 나타냅니다이 긴장에 동물 부분 (4 세트 Autosomes, 3 X-chromosomes의) 또는 (4 세트 Autosomes, 4 X-chromosomes) tetraploids.
- DAPI 시체 스트레인 당 여러 개의 (10) oocytes에서 관찰의 평균 수를 계산 합니다. 일부 염색체 쌍을 감동 것입니다 또는 오른쪽에 하나의 또 다른, 그래서 DAPI 수는 oocyte에서 시체의 상단은 종종 염색체 쌍의 실제 번호 보다 작습니다.
- (선택 사항) 더 안정적인 론 긴장 DAPI 시체의 평균 수는 전체 (4A, 4 X) 인지 부분 (4A, 3 X) 여부를 테스트 하려면 12 확인 tetraploids 면역 형광 검사 HTP-332같은 염색체 축 단백질에 대 한 얼룩에 의해. 이 얼룩 부분 tetraploid에 단일 연결 되지 않은 염색체에서 십자형 패턴을 보여주는 염색체 쌍 구분 됩니다.
결과
Rec-8 2 중 Gametes에 Meiotic Cohesin 구성 요소 함수 결과의 장애:
Cohesin 구성 요소 돌연변이 rec-8 의 meiotic 부분의 이미징 정자와 oocytes tetraploid 동물 (그림 1)27,,2933생성 가능한 메커니즘 밝혀. Mechanistically, rec-8 돌연변이 정자와 oocyte의 meiotic 부문 결함 다르다; 그러나, 둘 다 남성과 여성 2 중 gametes는 rec-8 돌연변이 의해 생산 됩니다.
야생 타입 감수 분열에서 상 동 염색체 일시적으로 크로스 오버 재결합에 의해 서로 연결 되 고 단위 또는 (그림 1A)가 첫 번째 meiotic 부문 입력34. 첫 번째 부분 동안 동종 염색체 (homologs) 분리, 서로 떨어진 반면 자매 각 체에 chromatids 2 부까지 함께 남아 있다. 비록 염색체 분리의 패턴은 여성 및 남성 gametes에 동일, oocyte 부서는 반면 spermatocyte 분할 대칭 이며 전문된 cytokinesis 받아야 비대칭. 각 부문에는 oocyte 작은 북극 몸으로 부문 제품의 절반을 삭제합니다. 따라서, 각 oocyte 전조는 단일 단일 oocyte와 두 극 시체 (그림 1B, C)35에 상승을 제공합니다. 반대로, 단일 spermatocyte 전조 2 개의 대칭 사단을 겪고 하 여 4 개의 기능 spermatids에 상승을 제공 합니다. 2 부는 잔여 시체에서 떨어져 싹 트는 4 개의 spermatids와 절정. 이 cytokinesis가입니다 특별 한 패턴 및 spermatids의 수 centrosomes36에 의해 결정 됩니다.
Rec-8 돌연변이 gametes에 전조에서 상 동 염색체 사이 크로스 오버 재결합 일어나지 않는다 하 고 homologs로가 첫 번째 meiotic 부문29,34의 시작 부분에 연결 되지 않은. 야생 타입 gametes에서와 마찬가지로 각 체의 자매 chromatids 1 부 2 부까지 함께 남아 대신에 서로에서 분리. 흥미롭게도, 2 부 중 rec-8 돌연변이 표현 형은 다른 남성과 여성 gametes에 oocytes 반면 spermatocytes 받아야 비교적 정상적인 cytokinesis (그림 1B- 는 cytokinesis을 실패 F) 27 , 28 , 29. 2 중 oocytes 두 번째 부문에서 그들은 염색체 분리 및 cytokinesis 실패 하기 때문에, 따라서 그들은 두 번째 극 시체 (그림 1B, C)을 돌출 하지 않습니다. Rec-8 germlines에 있는 spermatocytes spermatid 신진 또는 cytokinesis, 받을 하지만 종종 spermatids 2 중 spermatid 및 spermatid chromatin 부족에 한 염색체의 두 세트를 분리 (그림 1D- F)27. Rec-8 정자 부족 chromatin의 비율의 정량화는 그림 1 층에 표시 됩니다.
Rec-8 돌연변이에 여성 및 남성 2 중 gametes의 형성이 돌연변이 표현 형 잠재적으로 전체 게놈 tetraploid 긴장을 생성 하는 데 사용 될 수 제안 했다.
Tetraploid C. 선 충 종자의 생성:
모든 생성 된 tetraploid 긴장에 rec-8 유전자에 돌연변이의 존재는 뚜렷이 RNAi29,37여 rec-8 내려 노크 하 여 피할 수 있습니다. Rec-8 돌연변이 할29,37RNAi rec-8 기능 감소 전체 게놈 tetraploid 동물, 잠재적으로 증가 줄 수 있는 2 중 gametes을 생성 것 이라고 가정 한다. 이 프로토콜에 필수적인 rec-8 돌연변이 2 중 gametes을 합리적으로 많은 젊은 aneuploid gametes와 치명적인 주로 살 균 또는 배아/애벌레를 다른 meiotic 뮤턴트 반대를 폐하입니다.
여러 tetraploid 긴장 ( 프로토콜, 그림 2및 표 1참조) 두 가지 전략 중 하나를 사용 하 여 rec-8 dsRNA를 표현 하는 선 충 C. 박테리아를 먹이로 생성 했다27. Tetraploids 자체 기름 광고에 나온 것으로 접시에 2 ~ 3 세대에 대 한 rec-8 dsRNA를 표현 하는 박테리아를 생성할 수 있습니다. 자웅 동체에 갓 배치는이 전략에 의해 만들어진된 rec-8 RNAi 접시와 그것의 자손 갓 유도 rec-8 RNAi 표현 박테리아 ( 프로토콜참조)와 함께 새로운 접시에 나중에 몇 일 전송 됩니다. 또한, tetraploids rec-8 dsRNA ( 를 표현 하는 박테리아와 rec-8 dsRNA 접시에서 동일한 유전자 형의 치료 남성을 표현 하는 박테리아를 먹이 광고에 나온 것의 1 세대를 건너 통해 생성 될 수 있습니다. 그림 2). 이 경우에, 십자가에서 남성에서에서 노출 됩니다 rec-8 RNAi 박테리아에 L4 단계 이후, 짝짓기 하는 동안. 두 구성표 tetraploid 동물27을 일으키 다. 표 1 은 여기에 제시 된 계획을 사용 하 여 얻은 tetraploid 종자를 보여준다. Triploid 및 tetraploid C. 선 충 보다는 더 큰 크기에서 diploids, 하지만 triploid 종자 불안정 tetraploid 긴장은 상대적으로 안정적인22,23반면 하나 또는 두 개의 세대 2 중 될 경향이 있다. 상 상속 tetraploid 종자는 원래 스트레인 (Lon) 광고에 나온 것만 론 자손 (그림 3A)를 물려받은 그 보다 더 큰 것으로 확인 되었다. 론 동물 쉽게 확인-야생 타입 2 중 동물 tetraploids의 길이의 2/3 고 그들의 시체 앞으로 정현파 움직임 (그림 3A) 동안 발견 될 수 있는 여분의 벤드를 만들지 않는다.
Tetraploid 종자는 tetraploid 광고에 나온 것 2 중 광고에 나온 것 (그림 3BC, 그리고 영화 1)의 oocytes에서 6 개의 염색체 쌍에 비해 oocytes에서 12 염색체 쌍의 존재에 대 한 심사에 의해 확인 되었다.
Tetraploid 클래스:
두 가지 유형의 tetraploid 광고에 나온 것이 확인 되었다: 하나의 물려받은 남성 2 중 광고에 나온 것, 다른 비슷한 주파수에서 물려받은 남성이 훨씬 더 높은 주파수 (표 1). 이러한 두 종류 tetraploid 광고에 나온 것의 비슷합니다 2 중 남성의 클래스 생성 주파수는 tetraploid 모든 염색체 (4A, 4 배), 대 한 남성의 생산 클래스 높은 주파수는 다 표시 되었습니다. 광고에 나온 것 autosomes 하지만 성 염색체 (4, 3 X)에 대 한 triploid tetraploid입니다. Tetraploids의 최신 클래스 안정 되며 4A, 3 X 광고에 나온 것과 4A, 2 X 남성 생산.
Tetraploid 긴장 느리게 성장 하 고 생산 감소 가만히 크기 이전 방법22,23생성 된 변종 처럼 그들은에서 파생 했다 diploids에 비해. 그러나 Madl와 허먼22 제안 tetraploid 긴장에서 죽은 태아의 증가 비율에는 oocyte 이수성 때문일 수 있었다,이 수가 상승 tetraploid 종자의 표면 검사 충분히 공개 하지 않았다 oocytes도 비정상적인 oocyte 또는 spermatocyte 사단 무리 크기 (영화 2및 그림 3C, D)에서 관찰 된 감소를 위한 계정.
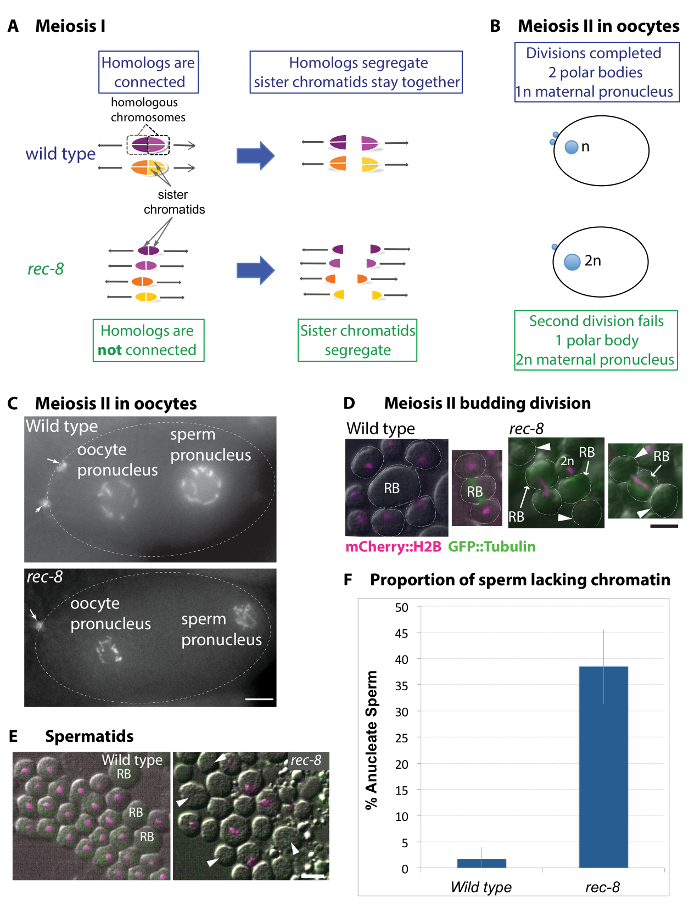
그림 1: rec-8 돌연변이에 Gametogenesis 의미 안정 이다 얼룩 생성 가능한 메커니즘. 야생 유형 및 rec-8 돌연변이 meiotic 부문에서 염색체 조직 및 분리 패턴의 (A) 도표. 야생 타입 감수 분열에서 상 동 염색체 첫 번째 meiotic 부문에서 분리합니다. 각 체에 자매 chromatids 동일한 스핀 들 극 쪽으로 방향을 설정 하 고 2 부까지 함께 남아. Rec-8 돌연변이, homologs 크로스, 형성 하지 않는다 고 따라서 연결 되지 않은. 반면에 야생 유형, rec-8 자매 chromatids 서로에서 방향 및 첫 번째 meiotic 부문에서 분리. 야생 유형 및 돌연변이 oocytes 여성 pronucleus 및 돌출된 극 시체 (남성 pronucleus 묘사 되지 않습니다)의 (B) 도표. 야생 타입 oocytes, 2 개의 비대칭 meiotic 사단 2 극 시체의 압출에 결과. 그러나 Rec-8 돌연변이에, 두 번째 극 몸 돌출 실패 2 중 oocyte에서 발생 합니다. (C) 야생 유형 및 rec-8 mCherry::histone H2B 표현 된 돌연변이 oocytes의 이미지. 화살표는 두 개의 북극 야생 타입 oocyte에서 몸과 rec-8 돌연변이에 하나를 나타냅니다. 눈금 막대는 5 µ m. (D 및 E) 라이브 이미지 야생 유형 및 rec-8 mCherry::histone H2B (마젠타) 표현 된 돌연변이 동물에서 spermatids의. 화살촉은 anucleate spermatids를 나타냅니다. 눈금 막대는 2 µ m. (D) Spermatocytes 야생 유형 및 rec-8 돌연변이에서 두 번째 (신진) 사단을 겪고. 야생 타입 spermatocytes 대칭 사단을 4 신진 spermatids, 각각 단일 염색체 보완 결과 받 다. Rec-8 돌연변이 spermatocytes, 염색체 분리 2 부에 손상 이다. 가장 자주 chromatin의 단일 질량 남아 잔여 몸 (RB) 또는 두 자매 중 두 번째 meiotic 부문에서 spermatids. 이 anucleate rec-8 돌연변이 정자 (화살촉으로 표시) 또는 2 중 정자에 상승을 제공 합니다. (E) 야생 유형 및 rec-8 돌연변이 차동 간섭 콘트라스트 (DIC) 및 형광 현미경 검사 법을 사용 하 여 시각에서 포스트 신진 spermatids의 라이브 이미지. 모든 야생 타입 spermatids 유사한 chromatid 대 중 있다. rec-8 돌연변이 spermatids anucleate 정자 형성. (F) 야생 유형 및 rec-8 돌연변이 anucleate 정자의 정량화. rec-8 돌연변이의 anucleate 정자에서 야생 타입 미만 1.6%에 비해 38.5% 생산. 피셔의 정확한 시험 rec-8 돌연변이의 anucleate (p ≤0.0001) 야생 타입에 비해 상당히 높은 발생률을 나타냅니다. 오차 막대는 표준 편차를 나타냅니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
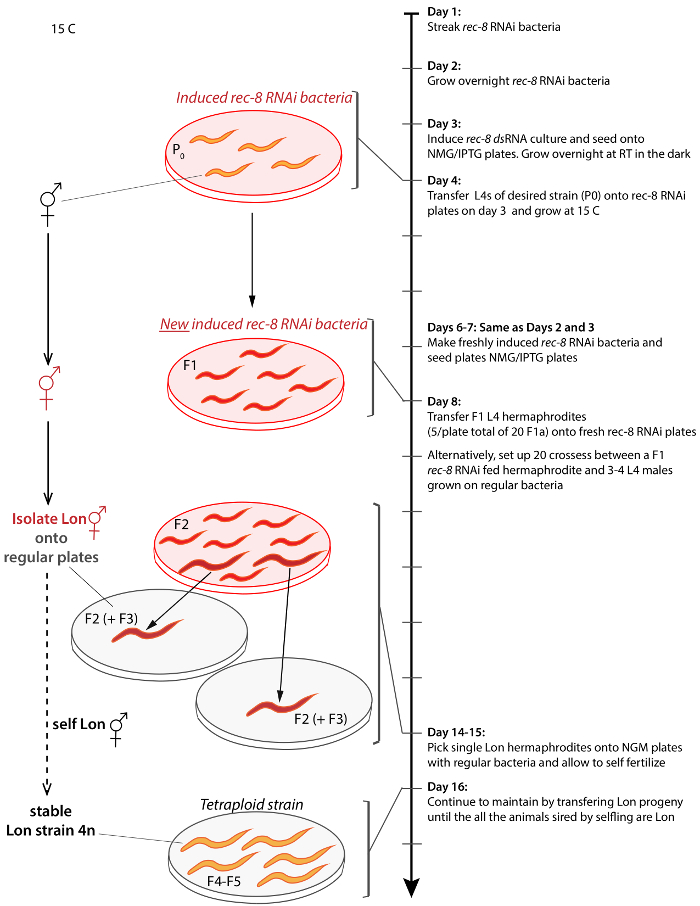
그림 2: 생성 하 고 어떤 긴장에서 tetraploid C. 선 충 분리에 대 한 체계. 오른쪽에 화살표 프로토콜 하루 1에서 시작 하 고 하루 17에 진행의 타임 라인을 나타냅니다. 하루 9에 치료 되지 않는 남성에 게 교차점 광고에 나온 것으로 비슷한 결과 얻을 수 있습니다. 괄호는 시간 표시 막대에 단계의 묘사를 연결합니다. 치료 되지 않는 동물 오렌지, 치료 동물 들은 빨간색, 론 동물 크기에 더 큰, rec-8 dsRNA 박테리아 표현로 서 투명 한 붉은 배경 및 일반 OP50 박테리아 투명 판 투명 한 회색에 그려진 그려져 배경 접시입니다. 달리 명시 되지 않은 절차 15 ° C에서 이루어집니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.

그림 3: Tetraploid 예. (A) tetraploid (MSC2) 동물 및 2 중 변형 (AV740)에서 파생 된 그것의 밝은 분야 심상. Tetraploid C. 선 충 보다는 2 중에 있는 전반적으로 크고 긴 (경도). 몸 크기에이 차이 이동 tetraploid 본문의 추가 사인 곡선 귀착되 고 tetraploid 파생 상품에 대 한 화면을 기준으로 사용할 수 있습니다. 눈금 막대는 0.1 m m. (B, C) 형광 이미지 (AV740) 2 중 및 tetraploid (MSC1) 가장 성숙한 unfertilized oocyte nulcei, meiotic 사업부 이전. 2 차 심사는 같이 영화 1 에서 Mcherry::H2B 및 GFP::β-Tubulin는 생식에 표현 MSC1 스트레인에 대 한 설립된 론 긴장의 unfertilized oocytes에서 염색체 쌍의 수를 관찰 하 여 수행 됩니다. 눈금 막대는 일반적으로 정상적인 감수 분열을 묘사한 tetraploid oocyte meiotic 사단의 시간 경과 (동영상 2)에서 5 µ m. (D) 이미지입니다. 극 지 시체를 표시 하는 화살표 머리와 점선 안에 spermatheca oocyte의 피 질을 표시 하 고 둘러싸인 정자; t = 시간 분에 타락 한. 눈금 막대는 10 µ m. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
| 유전자 형 | Tetraploid 파생 (Autosomes의 설정: # X-chromosomes의) * | 부모의 부담 (2 중) |
| meIs16 [파이-1p::mCherry:: 그의 58 + unc-119(+)]; | MSC1 (4A:4 X) | MSC0 |
| ruIs57 [파이-1p::GFP::b-tubulin + unc-119(+)] | MSC2 (4A:3 X) | |
| MSC3 (4A:4 X) | ||
| MSC5 (4A:3 X) | ||
| MSC6 (4A:4 X) | ||
| MSC8 (4A:4 X) | ||
| unc-119(ed3) III; ddIs6; ddIs6 [tbg-1::GFP + unc-119(+)]; ltIs37; ltIs37 [pAA64; 파이-1p::mCherry::HIS-58 + unc-119(+)] 4 | MSC14 (4A:3 X) | TMR17 |
| MSC15 (4A:3 X) | ||
| MSC16 (4A:4 X) | ||
| spo-11 (me44) / nT1 IV; + nT1 [qIs51 [묘 2::gfp Ppes-10::gfp, PF22B7.9::gfp]] V | AV800& | AV776 |
| meIs8 [파이-1p::gfp::cosa-1 + unc-119(+)] II; | AV809& | AV727 |
| ltIs37 [파이-1p::mCherry:: 그의 58 + unc-119(+)] IV; | ||
| ltIs38 [pie-1p::gfp::ph(PLC1delta1) + unc-119(+)] | ||
| meIs8 [파이-1p::gfp::cosa-1 + unc-119(+)] II; mnT12 (X; 4) | AV826& | AV695 |
| mIn1 [dpy-10(e128) mIs14 [묘 2::gfp pes-10::gfp]] / | AV810& | DR2078 |
| bli-2(e768) unc-4(e120) II | ||
| ruIs32 [파이-1::GFP::H2B + unc-119(+)] III | AV822& | AZ212 |
| AV823& | ||
| C. briggsae-mfIs42 [Cel-시드-2 + Cel-묘-2::DsRed] | AV824& | JU1018 |
표 1: Tetraploid 긴장 생성. * Oocytes 물려받은 남성의 비율 뿐만 아니라 meiotic 사단 이전에 bivalents (연결 된 동종 쌍) 및 univalents (개별 homologs)의 수를 채 점 하 여 추론.
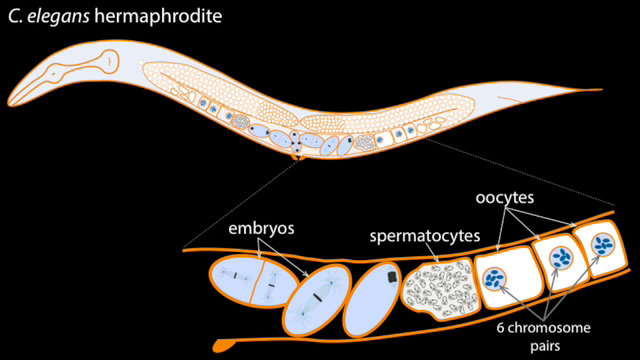
영화 1: 안정적인 론 종자 인지 전체 또는 부분 tetraploids를 확인 하는 심사. 영화 시작 지역 강조는 야생 타입 자웅 동체의 다이어그램 염색체 쌍을 계산 하 여 tetraploids를 식별 하기 위해 (unfertilized oocytes) 몇 군데. 다이어그램, 따라 Z-스택 영화와 예측의 시리즈 DAPI 스테인드 고정 하는 2 중 고 tetraploid 동물의 생식 선 표시 또는 Mcherry::H2B 히스톤을 표현 하는 긴장의 이미지 라이브. 심사는 unfertilized oocytes에 연결 된 상 동 염색체 쌍의 수를 계산 하면 됩니다. MCherry 또는 DAPI 계산 묻은 시체 spermatheca ("-1 oocyte")를 저장 하는 정자에 가장 가까운 unfertilized oocyte에서 이루어집니다. 이 oocyte에서 염색체 가장 응축 하 고 보다 정확한 체 쌍 수에 대 한 수 있도록, 서로에서 분리. 스트레인 당 10 이상 동물-1 oocyte 염색체 수가 정확 했다 되도록 상영 했다. 스택 두께 0.2 µ m. 하시기 바랍니다 여기를 클릭이 비디오를 볼 것 이다. (다운로드 오른쪽 클릭.)
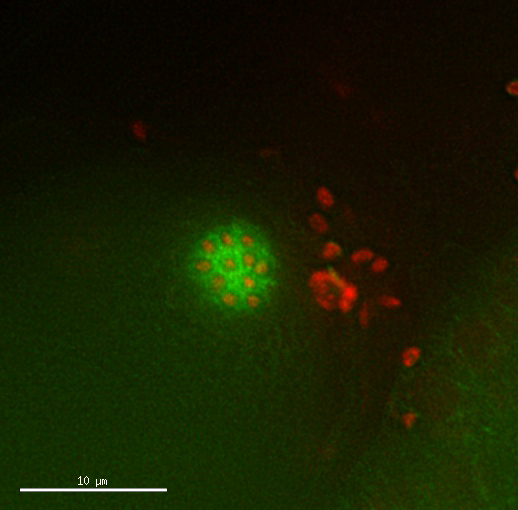
영화 2: Tetraploid oocyte 사단 정상 나타납니다. 히스톤 Mcherry::H2B와 GFP::β-Tubulin tetraploid 스트레인의 oocyte 분할의 시간 경과. 타이밍 및 패턴 부분의 정상 표시 됩니다. 제발 2.5 분 마다 촬영 한 이미지를이 비디오를 보려면 여기를 클릭 하십시오. (다운로드 오른쪽 클릭.)
토론
단일 (n) gametes의 생산에서 수정 (2n) 2 중 접합 자 생성에 열쇠 이다. 게놈의이 감소는 단일 게놈 복제 후 2 연속 셀 구역으로 감수 분열 동안 수행 됩니다. 단일 생성 하 gametes, C. 선 충, 대부분 다른 metazoans와 마찬가지로 분리 1 부에 임산부 및 paternally-파생 homologs 반면 각 체에서 chromatids 2 부에 분리 하는 여동생. 그 전체 게놈 polyploidy 자연에서 발생 하는 방법 하나는 감수 분열 동안에 그들의 절반 크기의 게놈을 실패 하는 gametes의 세대를 통해입니다.
그것은 잘 알려져 있다 50 년 이상 그 tetraploid C. 선 충 선 충은 실용적이 고 비옥한. Nigon23, 그리고 이후 Madl와 허먼22, 생성 meiotic 염색체 분리를 방해 하 여 선 충 C. tetraploids의 소수를 식별 열 충격 처리를 사용 하 고 각각 유전자 표시를 사용 하 여. 단일 추가 C. briggsae tetraploid 스트레인 30 년 이상이 프로토콜을 사용 하 여 파생 된 이후24. 이러한 tetraploids 어떻게 C. 선 충 결정 될 남성 또는 자웅 동체, ploidy 성장 및 크기를 조절 하는 방법 하 고 페어링 및 감수 분열25,26, 에서 synapsis 분석 조사를 이용 하였다 38 , 39 , 40. 아직 이들과 특정 tetraploids 또는 triploid 종자의 사용을 필요로 하는 다른 연구가 메서드에서 tetraploid 종자 생성에 어려움에 의해 제한 되었다.
여기에 설명 된 프로토콜 통해 안정적인 전체 4A, 4 X 세대 및 부분 4A, 3 X tetraploid 꼬마 선 충 종자에서 2 중 유전 배경 초기 또는 karyotype 유전자 표시의 사용 없이.
Tetraploidy C. 선 충에 메커니즘 중 하나 이상에 의해 발생할 수 있습니다.
Madl와 허먼은 생성 가능성이 tetraploid 긴장 triploid 중간 상태에서 파생 된 제안 했다. 그들의 긴장은 여러 세대에 걸쳐 또는 상 상속 triploid 2 중 남성22중간을 횡단 하 여 선택을 통해 얻은 했다. Rec-8 돌연변이에 준다 오 2 중 oocytes와 정자를 분할 하는 염색체에 결함 tetraploid 동물 rec-8 RNAi 체계27발생할 수 있는 다른 가능한 메커니즘을 제안 합니다.
rec-8 RNAi 대우 광고에 나온 것은 2 중 oocytes 및 수정 시 tetraploid 동물을 야기할 것 이라고 spermatocytes 생산할 수 있습니다. 이 가능성과 일치 하는 복제 f 2 광고에 나온 것 중 일부 상승 했다 안정적인 론 계통에 제안 그 다음 세대에는 복제 론 F2 광고에 나온 것 하는 사실 이다 이미 tetraploid 어디. 횡단 계획에서 rec-8 RNAi 대우 광고에 나온 것의 1 세대 치료 남성으로 건 넜 다. 2 중 spermatocytes 수 여전히 남성 십자가 rec-8 dsRNA를 표현 하는 박테리아의 존재 하 고 따라서, 남성에 노출 되는 rec-8 RNAi 적어도 3 일 동안 짝짓기 하는 동안 때문에 발생 합니다. 따라서, cross-fertilizing 체계에 론 polyploids 수 또한 2 중 oocytes의 수정에서이 2 중 정자 형성 했습니다. 안정적인 tetraploid 긴장 사이 2 중 gametes 중 수정 또는 변수 ploidy의 oocytes를 포함 하는 단일 정자를 생산 하는 2 중 동물과 triploid 동물 크로 싱에서 발생할 수 있습니다.
중요 한 고려 사항:
자기-십자가 구조 대:
자체 기름 rec-8 RNAi의 계획 f 1 광고에 나온 것을 취급 하 고 치료 남성과 두 광고에 나온 치료 것의 교차점을 포함 하는 계획이 4A, 4 배 상승 했다 및 4A, 3 X tetraploid 긴장. 더 많은 polyploids 처음 자체 기름 체계에서 고립 되었다, 비록 더 이다 동물의 살 균 되었고 따라서 두 구성표는 마찬가지로 tetraploid 안정적인 종자 생산에 효율적. 증가 성공 자체 기름 체계에 불 임에 대 한 이유를 알 수 없는 남아 있습니다. 두 구성표는 마찬가지로 효율적인, 자체 기름 체계가 쉽습니다 짝짓기에 대 한 남성의 격리를 필요로 하지 않습니다. 또한, 관심의 변형 비효율적 이거나 짝짓기에 결함이 있는 경우 자체 기름 체계는 것이 좋습니다 것입니다. Cross-fertilizing 체계는 단일 염색체의 두 개 이상의 버전을 포함 하는 복잡 한 tetraploids를 생성 하는 데 사용할 수 있습니다.
수정 및 제한:
현재,이 프로토콜 rec-8 유전자에 대 한 dsRNA를 표현 하는 박테리아를 먹이로 rec-8 RNAi 치료를 포함 한다. 따라서, 먹이, 또는 조직41,,4243사이 RNAi의 환경 또는 조직 확산에 결함이 있는 돌연변이이 프로토콜 꼬마 종 RNAi 응답에서 작동 하지 않습니다. 이 문제는 생식에 직접 관심의 dsRNA의 직접 주입 RNAi 치료를 도입 하 여 잠재적으로 해결 될 수 있습니다.
이 제도 안정적인 triploid 종자44,45를 생성 하지 않습니다 때문에 그것은 파생 된, 2 중 동물에 게는 tetraploid로 triploid 동물을 생성 되어야 합니다. 계란의 15%만 물려받은 triploids 해치에 의해 그리고 그들의 자손은 주로 메 마른 자손 이수성 때문. 또한, 몇 살아남은 비옥한 자손 세대 이내 완료 또는 diploids 근처 하 경향이 있다. 이것은 아마, 적어도 부분, oocytes는 부분적으로 첫 번째 meiotic 부문에 북극 몸으로 세 번째 염색체를 분리 하 여 trisomy를 수정 하기 때문에.
이 프로토콜의 insuperable 한계는 그것 때문에 그들은 RNAi 치료46에 저항력이 RNAi 기계의 구성 요소에 영향을 주는 돌연변이의 tetraploids을 만들기 위한 작동 하지 않습니다 이다.
문제 해결:
rec-8 RNAi.
몇 가지 고려 사항은 성공 하려면이 프로토콜에 대 한 중요 한입니다. 첫 번째 rec-8 dsRNA 생산 rec-8 (W02A2.6) 복제를 들고 박테리아 HT115 박테리아에서의 유도 대 한 신선한 IPTG와 갓 만든된 IPTG NMG 플레이트를 사용 하는. IPTG는 빛에 민감한 고 번호판에 빛 노출을 줄이기 위해 하는 것이 중요 하다. IPTG 접시 어둠 속에서 4 ° C에서 한 달에 저장할 수 있습니다. 둘째, rec-8 (W02A2.6) RNAi 세균 HT115 변종 (Kamath 및 Ahringer 2003) Ahringer 라이브러리에서 다른 사용 가능한 rec-8 보다 더 강한 rec-8 형 HT115 클론을 얻지 못했다.
Tetraploid 스트레인 유지 보수:
Tetraploid 긴장 매우 느리게 성장 하 고 세대47당 최대 50 progenies 생산. 모든 확인 된 tetraploid 긴장은 상대적으로 안정적인, 하지만 그들은 무 너 뜨 리 수 있는 2 중 때 스트레스 (조나단 Hodgkin 개인 통신 및 우리의 되지 않은 관찰) 되 고. 따라서, 그것은 tetraploid 긴장 굶 어, 열 충격, 25 ° C에서 재배 하거나 냉동 고 녹여, 그들은 신속 하 게 되돌릴 수 diploidy, 그래서 계속 이러한 긴장을 녹이는 때 론 동물을 선택 하는 것이 중요 하다 또는 때 주의 하는 것이 중요 복귀 하도록 발생할 수 있습니다 스트레스 조건 이러한 긴장을 노출 합니다.
가능한 응용 프로그램:
효과의 조사 또는 전체 게놈 진화, 세포 주기, 유전자 발현 및 다세포 유기 체에서 개발 polyploidization의 역할 사이의 비교에 의존 하고있다: 다른 ploidy, 같은 셀을 포함 하는 유기 체에서 세포 형식에 밀접 하 게 관련 다른 ploidy와 종 또는 받은 진화론 최근 polyploidization 이벤트와 물리적으로 격리3,,56,7,8 종 ,11,18,19,20,,4849,50. Tetraploids 제 브라와 마우스 모델 시스템에서 파생 될 수 있다, 그들의 자손은 멸 균 또는 embryonically 치명적인16,17. 또한, 이러한 모델 시스템 C. 선 충 에 비해 긴 수명 주기 있고 사용할 수 있는 방법 이다 동물을 생성 하는 복잡 하 고 비효율적인. 따라서, C. 선 충 종자가 메서드에서 파생 효과 및 전체 게놈 다세포 생물에서 polyploidy의 역할에 어떤 조사를 발전에 대 한 수단이 될 것입니다.
Diploids, triploids, 및 게놈의 사본의 수만 다른 tetraploids 비교 독특하고 전례 없는 기회를를 제공 합니다 이후는 triploid 원래 2 중에 tetraploid 건너는 tetraploid에서 파생 될 수 있다, 다른 게놈 크기 (또는 유전자 복용량) 해당 동물/장기/셀을 평가 합니다. 유연성과 쉽게 여기에 설명 된 계획의 다른 유전자 2 중 배경 또는 karyotypes 수십 tetraploid 종자의 생성을 허용 했다. 이러한 긴장의 일부 이미 쿼리 메커니즘 synapsis 동종 염색체 쌍의 감수 분열27동안 사용 되었다.
형광 마커를 들고 야생 유형 및 돌연변이 tetraploid 긴장의 스케일링, 전체 게놈 세포내/휴대/기관 및 전체 동물에 게놈 크기와 핵/cytosol 비율 간의 관계를 이해 하는 새로운도 제공할 것입니다. 적응, 종 분화, 유전자 복용량 및 표현과 조직 및 장기 개발에 polyploidization. 생물 학적 스케일링의 연구 뿐만 아니라 tetraploid 긴장의 세대 것 이다 크게 더 근본적인 생물학 질문 extracellular 신호, 게놈 불안정성, endoreduplication, 전체 게놈 관련 쿼리 복제, 유전자 노출량, 스트레스, 약물, 그리고 종 형성 메커니즘을 개발에 적응.
공개 사항
저자는 공개 없다.
감사의 글
긴장에 감사 꼬마 유전학 센터 (건강의 국가 학회 (NIH) 사무실의 연구 인프라 프로그램 P40 OD010440에 의해 자금) 하 고. 저자 뱁 티 스 트 Roelens 및 Eli Lessman, 건설적인 의견 및 마 노 연구소 CCNY, 촬영의 일부에 대 한 그리고 그들의 도움에 대 한 그들의 실험실의 사용을 위한 CUNY에서 제공 감사 하 고 싶습니다. 이 작품은 PSC CUNY 수상 TRADB-46-113에 의해 지원 되 고 NIH 부여 1SC2GM118275-01. 석사 박사 건강 (CIHR) 친교의 캐나다 학회에 의해 부분적으로 지원 되었다 그리고 E.K. NIH/NIGMS 상승에 의해 지원 되었다 GM062981를 부여.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 해부 현미경 | 모션 현미경 | SMZ171 | |
| Name | Company | 카탈로그 번호 | Comments |
| NGM 한천 플레이트 | |||
| 60mm x 15mm 페트리 접시, 멸균 | Tritech 연구 | T3305 | |
| 35mm x 15mm 페트리 접시, 멸균 | Tritech Research | T3500 | |
| 세균 한천, 5kg | VWR | 89140-850 | |
| 염화나트륨, 생명 공학 등급 | VWR | 97061-278 | |
| 펩톤, BD Bacto | VWR | 90000-368 | |
| 암피실린 삼수화물 | VWR | 97062-300 | |
| IPTG, 다이옥산이 없는 | Thermo Scientific | R0391 | |
| Name | Company | 카탈로그 번호 | Comments |
| >Growth Culture | |||
| LB Lennox Broth | IBI Scientific | 89126-176 | |
| 이름 | Company | 카탈로그 번호 | Comments |
| LB 한천 플레이트 | |||
| LB 한천 Lennox | IBI Scientific | 89126-182 | |
| Name | >Company | 카탈로그 번호 | 코멘트 |
| Antibiotics | |||
| Ampicillin Trihydrate | VWR | 97062-300 | |
| Tetracycline Hydrochloride | Fisher Scientific | BP912-100 | |
| Name | >Company | 카탈로그 번호 | Comments |
| Staining | |||
| Hoechst 33258, Pentahydrate | Biotium | 40045 | |
| DAPI | Biotium | 40011 | |
| Name | Company | 카탈로그 번호 | Comments |
| Ethanol Fixation | |||
| Ethanol, Pure, 190 Proof (95%), USP | Koptec, VWR | 89125-166 | |
| Name | Company | 카탈로그 번호 | Comments |
| M9 완충액 | |||
| 염화나트륨, 생명공학 등급 | VWR | 97061-278 | |
| 인산칼륨, 일염기성 무수 등급 | VWR | 97062-346 | |
| 인산나트륨, 일염기성 이수화물 | Fisher Scientific | AC271750025 | |
| Name | Company | 카탈로그 번호 | 코멘트 |
| RNAi Clones | |||
| HT115 bacteria expressing rec-8 dsRNA | Source Bioscience | W02A2.6 | |
| HT115 bacteria expressing rec-8 dsRNA | Dharmacon | RCE1182-202299820 |
참고문헌
- Ricke, R. M., van Ree, J. H., van Deursen, J. M. Whole chromosome instability and cancer: a complex relationship. Trends Genet. 24, 457-466 (2008).
- Frawley, L. E., Orr-Weaver, T. L. Polyploidy. Curr Biol. 25, R353-R358 (2015).
- Orr-Weaver, T. L. When bigger is better: the role of polyploidy in organogenesis. Trends Genet. 31, 307-315 (2015).
- Otto, S. P. The evolutionary consequences of polyploidy. Cell. 131, 452-462 (2007).
- Davoli, T., de Lange, T. The Causes and Consequences of Polyploidy in Normal Development and Cancer. Annu Rev Cell Dev Biol. 27, 585-610 (2011).
- Adams, K., Wendel, J. Novel patterns of gene expression in polyploid plants. Trends Genet. 21, 539-543 (2005).
- Adams, K. L., Wendel, J. F. Polyploidy and genome evolution in plants. Curr Opin Plant Biol. 8, 135-141 (2005).
- Berman, J. Ploidy plasticity: a rapid and reversible strategy for adaptation to stress. FEMS Yeast Res. 16, (2016).
- Levy, D. L., Heald, R. Mechanisms of Intracellular Scaling. Annu Rev Cell Dev Biol. 28, 113-135 (2012).
- Breneman, A., Cande, J., Dunn, J., Burbank, K., O'toole, E. Genome-wide genetic analysis of polyploidy in yeast. Nature. 443, 541-547 (2006).
- Kuznetsova, A. Y., et al. Chromosomal instability, tolerance of mitotic errors and multidrug resistance are promoted by tetraploidization in human cells. Cell Cycle. 14, 2810-2820 (2015).
- Taylor, J. S., Van de Peer, Y., Meyer, A. Genome duplication, divergent resolution and speciation. Trends Genet. 17, 299-301 (2001).
- Younis, A., Hwang, Y. -J., Lim, K. -B. Exploitation of induced 2n-gametes for plant breeding. Plant Cell Rep. 33, 215-223 (2014).
- Ihssen, P. E., McKay, L. R., McMillan, I., Phillips, R. B. Ploidy Manipulation and Gynogenesis in Fishes: Cytogenetic and Fisheries Applications. Trans Am Fish Soc. 119, 698-717 (2011).
- Stanley, J. G., Allen, S. K., Hidu, H. Polyploidy induced in the American oyster, Crassostrea virginica, with cytochalasin B. Aquaculture. 23, 1-10 (1981).
- Eakin, G. S., Behringer, R. R. Tetraploid development in the mouse. Dev Dyn. 228, 751-766 (2003).
- Heier, J., Takle, K. A., Hasley, A. O., Pelegri, F. Ploidy manipulation and induction of alternate cleavage patterns through inhibition of centrosome duplication in the early zebrafish embryo. Dev Dyn. 244, 1300-1312 (2015).
- Arnold, B., Kim, S. -T., Bomblies, K. Single Geographic Origin of a Widespread Autotetraploid Arabidopsis arenosa Lineage Followed by Interploidy Admixture. Mol Biol Evol. 32, 1382-1395 (2015).
- Session, A. M., et al. Genome evolution in the allotetraploid frog Xenopus laevis. Nature. 538, 336-343 (2016).
- Gallardo, M. H., Bickham, J. W., Honeycutt, R. L., Ojeda, R. A., Köhler, N. Discovery of tetraploidy in a mammal. Nature. 401, 341(1999).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, Suppl . 5-16 (1987).
- Madl, J. E., Herman, R. K. Polyploids and sex determination in Caenorhabditis elegans. Genetics. 93, 393-402 (1979).
- Nigon, V. Polyploidie experimentale chez un nematode libre, Rhabditis elegans maupas. Bull Biol Fr Belg. 95, 187-225 (1951).
- Woodruff, G. C., Eke, O., Baird, S. E., Félix, M. -A., Haag, E. S. Insights Into Species Divergence and the Evolution of Hermaphroditism From Fertile Interspecies Hybrids of Caenorhabditis Nematodes. Genetics. 186, 997-1012 (2010).
- Mlynarczyk-Evans, S., Roelens, B., Villeneuve, A. M. Evidence That Masking of Synapsis Imperfections Counterbalances Quality Control to Promote Efficient Meiosis. PLoS Genet. 9, e1003963(2013).
- Lozano, E., Sáez, A. G., Flemming, A. J., Cunha, A., Leroi, A. M. Regulation of Growth by Ploidy in Caenorhabditis elegans. Curr Biol. 16, 493-498 (2006).
- Roelens, B., Schvarzstein, M., Villeneuve, A. M. Manipulation of Karyotype in Caenorhabditis elegans Reveals Multiple Inputs Driving Pairwise Chromosome Synapsis During Meiosis. Genetics. 201, 1363-1379 (2015).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Severson, A. F., Ling, L., van Zuylen, V., Meyer, B. J. The axial element protein HTP-3 promotes cohesin loading and meiotic axis assembly in C. elegans to implement the meiotic program of chromosome segregation. Genes Dev. 23, 1763-1778 (2009).
- Kamath, R. S., Ahringer, J. Genome-wide RNAi screening in Caenorhabditis elegans. Methods. 30, 313-321 (2003).
- Wood, W. B. The Nematode Caenorhabditis Elegans. , Cold Spring Harbor Laboratory Press. New York. (1988).
- MacQueen, A. J., et al. Chromosome Sites Play Dual Roles to Establish Homologous Synapsis during Meiosis in C. elegans. Cell. 123, 1037-1050 (2005).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Schvarzstein, M., Wignall, S. M., Villeneuve, A. M. Coordinating cohesion, co-orientation, and congression during meiosis: lessons from holocentric chromosomes. Genes Dev. 24, 219-228 (2010).
- Kim, S., Spike, C., Greenstein, D. Germ Cell Development in C. elegans. , Springer. New York, NY. 277-320 (2013).
- Peters, N., et al. Control of mitotic and meiotic centriole duplication by the Plk4-related kinase ZYG-1. J Cell Sci. 123, 795-805 (2010).
- Pasierbek, P. A Caenorhabditis elegans cohesion protein with functions in meiotic chromosome pairing and disjunction. Genes Dev. 15, 1349-1360 (2001).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, 5-16 (1987).
- Flemming, A. J., Shen, Z. -Z., Cunha, A., Emmons, S. W., Leroi, A. M. Somatic polyploidization and cellular proliferation drive body size evolution in nematodes. Proc Natl Acad Sci U S A. 97, 5285-5290 (2000).
- Meneely, P. M. Sex determination in polyploids of Caenorhabditis elegans. Genetics. 137, 467-481 (1994).
- Whangbo, J. S., Hunter, C. P. Environmental RNA interference. Trends Genet. 24, 297-305 (2008).
- Imae, R., Dejima, K., Kage-Nakadai, E., Arai, H., Mitani, S. Endomembrane-associated RSD-3 is important for RNAi induced by extracellular silencing RNA in both somatic and germ cells of Caenorhabditis elegans. Sci Rep. 6, 28198(2016).
- Tijsterman, M., May, R. C., Simmer, F., Okihara, K. L., Plasterk, R. H. A. Genes required for systemic RNA interference in Caenorhabditis elegans. Curr Biol. 14, 111-116 (2004).
- Cortes, D. B., McNally, K. L., Mains, P. E., McNally, F. J. The asymmetry of female meiosis reduces the frequency of inheritance of unpaired chromosomes. Elife. 4, e06056(2015).
- Vargas, E., et al. Autosomal Trisomy and Triploidy Are Corrected During Female Meiosis in Caenorhabditis elegans. Genetics. 207, 911-922 (2017).
- Tabara, H., et al. The rde-1 gene, RNA interference, and transposon silencing in C. elegans. Cell. 99, 123-132 (1999).
- Hodgkin, J. Karyotype, ploidy, and gene dosage. , University of Oxford. (2005).
- Schoenfelder, K. P., Fox, D. T. The expanding implications of polyploidy. J Cell Biol. 209, 485-491 (2015).
- Levy, D. L., Heald, R. Biological Scaling Problems and Solutions in Amphibians. Cold Spring Harb Perspect Biol. 8, a019166(2015).
- Taylor, J. S., Van de Peer, Y., Braasch, I., Meyer, A. Comparative genomics provides evidence for an ancient genome duplication event in fish. Philos Trans Royal Soc B. 356, 1661-1679 (2001).
재인쇄 및 허가
