체세포 SCs의 가용성은 재생 의학에 대 한 중요 한 질병 모델링 및 사우스 캐롤라이나 속성에 대 한 통찰력을 얻을. 여기에 우리가 프로그램을 실험 전략 제시 에 체 외, 단일 transcriptional 공동 활성 야프의 과도 식으로 그들의 해당 확장 조직 관련 줄기/시 조 세포로 성인 세포 분화.
이 논문에서
요약
초록
여기 기본 분화 세포 및 녹음 방송 요인의 과도 식으로 같은 혈통의 줄기/시 조 세포 (SCs)로 그들 짖 차례 분리 프로토콜 선물이. 이 방법으로 마우스 유선의 luminal 차별화 (LD) 세포는 유 방 SCs. 얍 분자 속성과 기능 또한 회전 완전히 분화 췌 장 외 분 비 세포 췌 장로 덕트 같은 셀으로 변환 됩니다. 창시자입니다. 마찬가지로, 내 생, 자연 SCs를 유도 하는 YAP 줄기 모양의 셀 ("ySCs") 확장할 수 있습니다 결국 organoid 문화 장기 생체 외에서, 소성 얍/TAZ의 추가 필요 없이 상속 자체 갱신 SC 같은 상태와 부여 하는 ySCs로.
여기에 제시 된 재활 절차를 생성 하 고 차별화 된 셀에서 시작 하는 다양 한 조직 소스의 조상 세포 생체 외에서 확장 가능성을 제공 합니다. Ex vivo 체세포의 간단한 확장 세포 및 개발 생물학 연구를 위한 일반적으로 종양 개시의 메커니즘을 이해 하 고, 더 많은 대 한 재생 의학에 대 한 의미를 갖는다.
서론
조직의 특정 체세포 줄기 세포 (SCs) 부상 후 조직 재생 및 복구에 대 한 중요 하다. 쉽게 분리 하 고 unlimitedly 확장 한다 확장 ex vivo 체세포 SCs 나타냅니다 중요 한 문제가 잠재적인 재생 치료, 뿐만 아니라 기본 연구 및 질병 모델링에 SC 응용 프로그램에 대 한 가능성. 하지만이 방향으로 진행, 다양 한 상피 장기 체 외의 SC 상태 캡처의 어려움에 의해 제한 되었습니다. 실제로, 여러 성인 조직에서 거주 SCs 수 있습니다 존재 하지 쉽게 사용할 수 없습니다 또는 그들의 번호와 재생 잠재력 노화 또는 질병 조건에 의해 침식 수 있습니다. 2016 년, 우리는 그 표현의 단일 transcriptional coactivator 보고 하 여이 간격을 채우기 위해 시작 얍 (예-관련 된 단백질) 또는 말기 차별화 된 세포로 그것의 밀접 하 게 관련된 단백질 TAZ (PDZ 모티브로 transcriptional 활성 제), 효율적으로 운영 및 분자로 그들의 해당 조직의 특정 SCs1분간 되지 않은 기능, 확장, 비 tumorigenic, 자가 세포 인구를 만듭니다. 펄스 지속 얍 또는 몇 일 동안 TAZ 활동 자체 갱신 체세포 SCs의 외관을 유도 하기에 충분. 이것은 소성 얍/TAZ1식 추가 없이 셀 세대를 통해 전달 될 수 있다로 연속 transgene 식에 의존은 더 이상 안정 된 상태 이다. 프로토콜 제시 여기 내용은 유선 및 췌 장,이 조직의 차별화 된 세포에서 시작의 드 노 보 상피 줄기/뿌리 세포를 생성 하는 데 사용 되는 절차. 이 절차는 현재 프로그래밍/transdifferentiation 경기장에서 블랙 박스를 채웁니다. 주요 활동 방향으로 지금까지 실제로 셀 전환 유도 만능 줄기 세포 (iPSC) 상태로, 이러한 배아의 변환 다음에 중심으로 고로 만능 SCs는 더 세포 분화. 그러나, Ipsc tumorigenic는 한 번 그들의 완전 하 고 효율적인 차별화2에 대 한 프로토콜 개발의 필요성을 제기 하는 성인 조직에 도입. 그러나,이 감 별 법 단계 가능한 경우에 온다 장기 확장성, 자기 조직 및 기관 repopulation 잠재력의 가격. 이들은 일반 생 조직 관련 SCs의만 및 현재 설명된 유도 하는 YAP SCs (ySCs)의 실제로 장기 재생을 위한 필수 특성입니다. 마찬가지로, 다양 한 녹음 방송 요인 또한 생성의 칵테일을 사용 하 여 다른 한 셀 형식의 직접 transdifferentiation 필수 증식 stemness 잠재적인3부족 세포 분화.
여기 설명 하는 절차 또한 활용 최근에 소개 된 organoid 기술, 여 생 SCs 확장 될 수 있다 및 비보 전4분화. 유도 하는 YAP SCs는 생 SCs 존재 하지 않는 실험, 생물 학적 또는 질병 조건 에서도 organoid 형성 SCs를 생성할 수 있습니다. 우리는, 다른 재활 절차와 차이에 셀 소성 얍에 의해이 수의 유형 생활 조직에서 발생 하는 사우스 캐롤라이나와 같은 상태에 복귀의 유일한 형태에 해당 수 있습니다 싶습니다. 사우스 캐롤라이나-같은 특성의 획득 조직 복구 또는 종양 활성화5와 연결 되었습니다. 비록 여러 성인 조직의 항상성 위해 불가결, 야프 TAZ는 재생, 종양 성장 및 체 외1,6,,78 체세포 SCs의 확장에 대 한 절대적으로 필수 9,10,,1112
프로토콜
우리의 기관 지침을 준수 하 고 OPBA 및 건강의 교육부에 의해 승인 모든 동물 절차 수행 했다
1. 야프 유도 유 방 줄기 모양의 셀 (yMaSCs)의 생성
참고: 모든 미디어와 솔루션 구성 섹션 1 표 1에 지정 됩니다.
- 기본 유 방 세포 인구의 절연
- 셀 문화 후드 준비: 일회용 scalpels hyaluronidase 솔루션, 분리 매체, hemolytic 솔루션, 정렬 솔루션, 내가 코팅 솔루션, 캘리포니아2 + chelating 솔루션, 세척 매체 #1 세척 중간 #2, dispase 솔루션, 콜라겐 유 방 2D 문화 매체, 얼음 차가운 HBSS/추
- 전형적인 실험에 대 한 희생 10 여성 쥐 (CD-1 C57BL/6 스트레인의), 8-12 주 오래 된 자 궁 경부 전위에 의해. 절 개 전에 풍부한 70% 에탄올 솔루션으로 복 부를 소독.
- 복 부 피부 따라 Y 자 모양의 절 개를 하 고 신중 하 게 Dumont 집게로 살짝 당겨 복 막에서 동맥을 분리 하 여 유 방 동맥 해 부. 해 부 동맥 10 mL 얼음 비 세포 접착 접시에 놓고 차가운 HBSS/PS (각 요리에 대 일 분 비), 모든 피부 부분이 월 하지 않아야 함.
- 조직 문화 후드 신선한 HBSS/PS의 10 mL에 각 선을 한 번 세척 하 고는 빈 셀이 아닌 접착제 요리 (각 요리에 대 일 분 비)에 배치 합니다. 셀 것 이다 그들에 게 충실 하는 경향이 조직 문화 접시를 사용 하지 않는 재료의 상당한 손실을 일으키는 원인이 되.
- 1 m m3 파편의 균질 성 혼합 얻을 때까지 가늘게 scalpels와 유 방 땀 샘을 말하다. 막힘 방지를 적어도 5 x 세분화 조직 덩어리를 pipetting 50 mL 원뿔 튜브에 정지를 전송 25 mL 혈 청 학적인 피 펫과 분리 매체의 10 mL에 각 접시에서 다진된 조직을 복구 합니다.
참고: 효율적인 소화 단계 1.1.5에서에서 조직의 적절 한 닦지 중요 하다. - 연속 활기찬 동요와 37 ° C에서 1 시간에 품 어. 1 시간 후에 homogenate를 확인 하 고 수 풀은 여전히 존재 하는 경우 부 화 10 분 연장. 실 온에서 5 분에 대 한 400 x g에서 소화 조직을 아래로 회전 시키십시오 그리고 삭제는 상쾌한. 3 ml hemolytic 솔루션의 조직 펠 릿을 resuspend 하 고 얼음에 3 분을 품 어.
참고: 혈 이므로 오히려 가혹한 처리, 엄격한 타이밍은이 단계에서 중요 한. - 세척 매체 # 1의 10 mL로 세포를 세척 하 고 스핀 5 분에 대 한 400 x g에서 소화 조직 다운 삭제는 상쾌한. 세척 매체 # 2와 10cm 조직 문화 접시에 접시의 10 mL에 조직 펠 릿을 resuspend. 셀 문화 인큐베이터에서 37 ° C에서 1 시간을 위한 요리를 품 어.
참고:이 단계는 문화 접시에 고착 해야 하는 섬유 아 세포의 대부분의 제거를 허용할 것 이다. - 요리에서 세포 현 탁 액을 복구 하 고 50 mL 원뿔 튜브에 붓는 다. 5 분에 대 한 400 x g에서 회전 시키십시오 그리고 제거는 상쾌한. 펠 릿 캘리포니아2 + 솔루션 회전 아래로 5 분에 대 한 400 x g에서 각 시간에 의해 킬레이트 화 10 mL에 두 번 세척. 0.25%의 5 mL에 펠 릿을 resuspend 트립 신/EDTA와 37 ° c.에 5 분 동안 품 어
- 상단 트립 신 솔루션 dispase 솔루션의 5 mL을 추가 하 고 보충 DNase I 1μg/mL. 1 mL-팁 DNA 덩어리를 세분화 하 고 모든 3 분 떨고 37 ° C에서 10 분 동안 품 어을 통해 적어도 5 배 아래로 플라스틱.
- 40 μ m 셀 스 트레이너를 통해 새로운 50 mL 원뿔 튜브에서 세척 매체 # 2의 10 mL와 필터를 추가 합니다. 5 분에 대 한 400 x g에 세포 현 탁 액 아래로 회전 시키십시오 그리고 모든 액체를 제거 하는 상쾌한 삭제.
- FACS에 의해 유 방 상피 세포의 정화
- 10 μ를 추가 하 여 항 체 혼합 준비 린 (마우스 리니지 항 체 칵테일), 12 μ 안티-CD326 (Ep-캠) 최종 농도 30 ng/mL, 10 μ 안티-CD49f, 25 ng/mL, 10 ng/mL의 최종 농도 10 μ 안티-CD61의 최종 농도에 하 2.5 μ 안티-CD29, 2.5 ng/mL의 최종 농도에.
참고: 1.3이 단계 단계에서 항상 붙일 레이블된 항 체의 표백 피하기 위해 어둠 속에서 작동. 각 펠 릿에 대 한: - 별도 튜브에 세포의 작은 수 (펠 릿에서 100 μ 팁 찍기)에 의해 유지. FACS 튜브에 솔루션을 정렬의 500 μ 셀 resuspend 고 얼음 FACS 절차에 대 한 레이블이 없는 샘플으로 계속.
- 각 펠 릿을 세척 매체 # 1의 200 μ에 resuspend 하 고, 항 체 혼합의 44.5 μ를 추가 하 고 철저 하 게 플라스틱 한 어둠 속에서 얼음에 30 분 동안 품 어. 세척 매체 # 1의 10 mL에 세포 현 탁 액을 희석 하 고 5 분 동안 400 x g에서 스핀 다운 삭제는 상쾌한.
- 솔루션 분류의 2 개 mL에 셀 펠 릿 resuspend와 모자 거르는 FACS tubeand 통해 필터 FACS-분리 ( 그림 1B)로 세포 인구에. 다 색 FACS 프로토콜을 수행 하기 전에 각 사람의 각 형광 색소의 가능한 다른 일에 대 한 수정 해야 합니다. 이렇게 하려면 셀 서 스 펜 션와 별도로 각 fluorophore 활용 된 항 체를 품 어 하 고 보상 행렬을 만들기 위해 모든 fluorophores 단색 컨트롤을 통해 모든 감지기에서 스펙트럼 중복 값을 측정 한다.
참고:이 실험에서 다소 85 μ m 노즐을 갖춘 고용 되었다. 10 여성 쥐에서 일반적인 준비 약 800000 보장할 LD 셀. FACS 절차 동안 수 풀 형성 하는 경우 보조 여과를 진행 합니다.
- 10 μ를 추가 하 여 항 체 혼합 준비 린 (마우스 리니지 항 체 칵테일), 12 μ 안티-CD326 (Ep-캠) 최종 농도 30 ng/mL, 10 μ 안티-CD49f, 25 ng/mL, 10 ng/mL의 최종 농도 10 μ 안티-CD61의 최종 농도에 하 2.5 μ 안티-CD29, 2.5 ng/mL의 최종 농도에.
- 기본 유 방 LD 셀의 시드
- FACS 절차 동안 코트 콜라겐 멀티 잘 조직 배양 플레이트 나 코팅 솔루션. 37 ° C에서 1 시간, 5% CO2 셀 문화 인큐베이터에서 품 어. 코팅 솔루션을 제거 하 고 세척 매체 #1 도금의 바로 전에 세척.
- 세척 솔루션 # 1의 10 mL와 FACS 절차에서 복구 하는 세포를 세척 하 고 스핀 5 분에 대 한 400 x g 다운 상쾌한 제거. 유 방 2D 문화 매체 (500 µ L/잘) 및 콜라겐 치료 플레이트에 셀 펠 릿 resuspend 적절 한 셀 첨부를 확산 있도록 48 h에 대 한 셀 문화 인큐베이터에 앉아 셀을 하자.
참고:는 일반적인 정렬 10 여성 쥐에서 24-잘 멀티 잘 플레이트의 6-8 우물 최적의 셀 밀도 (100 000 셀/잘)를 얻을 것입니다.
- YMaSCs (유 방 줄기 세포 유도 하는 YAP)의 유도
참고:이 단계 이후부터 모든 절차는 BSL-2 조건 하에서 수행 되어야 합니다.- 유 방 식민지 매체를 준비 합니다. 갓 셀 뿌리기 직전 매체에 지하실 멤브레인 매트릭스를 추가 합니다.
- 혈 청 무료 유 방의 두 개의 볼륨으로 한 양의 FUdeltaGW rtTA 바이러스 상쾌한, FUW-tetO-얍 (TAZ) 상쾌한의 하나의 볼륨을 혼합 하 여 transduce 기본 LD 셀 lentiviral 감염으로 유도 하는 YAP 유 방 줄기 세포 (yMaSCs)의 유도 대 한 보충, 500 mL의 총 볼륨에서의 2D 문화 매체 2 배 농도 48 h lentiviral supernatants 셀을 품 어. 전형적인 lentiviral 준비 온라인 프로토콜22를 참조 하십시오.
- 감염 후 부착 세포를 세척 하 고 2 µ g/mL doxycycline exogenous 얍 (TAZ) 유전자 발현을 유도 하는 것으로 보충 하는 유 방 2D 문화 매체와 치료. 셀 비어, EGFP 또는 YAPS94A 표현 벡터, 또는 유도할 수 있는 야프 (TAZ) 벡터, 감염 세포에 감염을 사용 하지만 부정적인 컨트롤로 doxycycline 없이 왼쪽.
참고: 성공적인 감염 수 확인 qRT-PCR transgene 인간 짖 에 대 한 특정 한 뇌관으로 하 여 앞에서 설명한1. - 부착 세포 0.05%를 가진 외피 분리 doxycycline와 유도의 7 일 후 트립 신/EDTA (150 μ/잘) 37 ° C에서 10 분 1: 5을 세척 매체 #2 (600 μ/잘)을 diluting 하 여 trypsinization를 중지 하 고 셀. 2 μ g/mL doxycycline와 셀/잘 24-잘 ultralow 첨부 파일 접시에에서 1000의 clonogenic 조밀도에 씨앗 보충 각 잘 (1 mL), 유 방 식민지 중간에 셀 resuspend
참고: 유 방 식민지 매체 얼음 차가운 지하실 멤브레인 매트릭스 덧셈의 시간에 있는지 확인 합니다. 지하실 막 매트릭스 해야 합니다 항상 도착 후,-20 ° C에 저장 하 고 하룻밤; 4 ° C에서 천천히 해 동 일단 해 동, 그것 항상 처리 되어야 합니다에 얼음, 제조업체의 지침에 따라. - 한 번 짖-LD 셀 표현 확산 시작 및 정지 (yMaSC 식민지) MaSC-같은 식민지로 시드 후 (14 일), 계산 성장과 처리 추가 분석 (그림 1C).
참고: (1.4.3 포인트)로 부정적인 제어 셀은 단일 셀으로 유지 됩니다. - YMaSC 식민지 성장;의 14 일 동안 신선한 유 방 식민지 매체 마다 72 h와 문화를 보충 이렇게 하려면 5% 지하실 멤브레인 매트릭스, 10 배 농도 보충의 보충 없이 유 방 식민지 매체의 약 수를 준비 하 고 1: 10을 각 영역 (예: 100 μ 총 매체의 1 ml에서), 과도 한 희석을 피하기 위해 전체 볼륨 추가 매트릭스 현 탁 액입니다.
- 하위 yMaSCs의 배양
- 유 방 식민지 매체에서 기본 식민지를 복구 후 해리와 초기값을 다시 설정 합니다.
참고: yMaSC 식민지 얍 재설정 LD 셀에서 파생 된 자체 갱신 용량을 확보 하 고 성공적으로 하위 추가 doxycycline 관리 (즉, 유전자 변형 얍/TAZ의 표현 별도로) 없이 경작 될 수 있다. - 준비, 셀 문화 후드 단계 1.4.1 에서처럼 유 방 식민지 매체 및 유 방 organoid 매체.
- 각 샘플을 수집 하 고 얼음의 초과 볼륨 (10:1)에서 품 어 차가운 HBSS 지하실 멤브레인 매트릭스를 solubilize 위해 얼음에 1 h. 씻어 식민지 3 x 180 x g 5 분 및 얼음에 resuspend에서 centrifuging으로 차가운 HBSS. 0.05 %trypsin / EDTA 단일 세포 현 탁 액을 37 ° C에서 10 분 동안에 식민지를 품 어. 단일 세포 수준으로 완벽 한 분리 되도록 p1000 팁 10 배 아래로 식민지 플라스틱
- 셀/잘 24-잘 ultralow 첨부 파일 접시에에서 1000의 clonogenic 조밀도에 doxycycline 없이 유 방 식민지 매체 (1 mL 각 잘) 수와 다시 셀. 10-14 일 마다 자체-갱신 평가 절차를 뿌리고이 반복 합니다.
- 세 번째 통과 하기 전에 yMaSC 식민지 organoid 문화 조건, yMaSC 확장을 강화 하 고 미니-땀 샘, vivo에서 유 방 동맥의 밀접 하 게 연상 bilayered 상피에 조직 자체의 형성을 위한 통로 조직학 조직입니다.
- 1.5.3 1.5.4 단계에서 유 방 식민지 매체에서 식민지를 복구 합니다. 100% 성장 인자에서 resuspend 식민지 지하실 멤브레인 매트릭스, 매트릭스의 150 µ L에서 24-잘 ultralow 정판의 각 음에 대 한 20-25 식민지의 최대 replate 고려 감소.
- 37 ° C에서 40 분 셀 문화 인큐베이터에 접시를 품 어 그리고 지하실 멤브레인 매트릭스 고형화 하 고 유 방 organoid 매체의 500 μ와 젤을 오버레이.
- 몇 일 후에 organoids (그림 1E) 신진 형태로 식민지의 형성에 대 한 확인 합니다.
- 후에 10-14 일, 통로 또는 프로세스 추가 분석을 위해 organoids.
- Organoids 문화 통로, 각 샘플을 수집 하 고 얼음의 초과 볼륨 (10:1)에서 배양 하 여 organoids를 복구 차가운 HBSS 지하실 멤브레인 매트릭스를 solubilize 위해 얼음에 1 h. Organoids 3 세척 스핀에 의해 x 180 x g 5 분에서 아래로 하 고 얼음에 resuspend 감기 HBSS.
- 0.05 %trypsin / EDTA 단일 세포 현 탁 액을 37 ° C에서 10 분 동안에 organoids를 품 어. 단일 세포 수준으로 완벽 한 분리 되도록 p1000 팁 10 배 아래로 organoids 플라스틱
- 100% 증가율 감소 지하실 멤브레인 매트릭스 (24-잘 ultralow 정판의 각 잘 150 μ)의 한 방울에 단일 셀 서 스 펜 션으로 다시 시드하십시오. 지하실 막 매트릭스 셀 문화 인큐베이터에서 37 ° C에서 40 분을 배양 하 여 젤을 형성 하 고 유 방 organoid 매체의 500 μ와 젤 오버레이 하자.
참고: yMaSC organoids 단계 1.5.13, trypsinization를 피하에서 100% 지하실 멤브레인 매트릭스 문화에서 복구 하 여 cryopreserved 수 있습니다. 10 %DMSO 보충 유 organoid 매체에 저장 합니다. - 신속 하 게 동결-80 ° C에서 yMaSC organoids와 다음 액체 질소에 보존.
- 유 방 식민지 매체에서 기본 식민지를 복구 후 해리와 초기값을 다시 설정 합니다.
2입니다. yDucts 세대
참고: 모든 미디어와 솔루션 구성 섹션 2는 표 2에 지정 됩니다.
- 주 췌 acini의 절연
- 70% 해 부 집게와가 위 배치 EtOH 셀 문화 후드 포상 문화 매체, 각 마우스;에 대 한 15 mL에서 준비 포상 복구 매체, 각 마우스; 60 mL PBS/PS; 재고 솔루션 콜라 나; 콜라 나 솔루션, 각 마우스;에 대 한 15 mL 쥐 꼬리 콜라겐 무력화 나 솔루션. 쥐 꼬리 콜라겐 중화 나 pH = 7, 어 얼음에 모든 시 약을 그것을 중화 쥐 꼬리 콜라겐 PBS/ps. 계속에 있는 교원 질 용 해, 그리고 10N HCl. Dilute 2.5 mg/ml와 아세트산 버퍼링을 0.1 N NaOH와 함께 먼저 조정 하 여. 6 적절 한 유전자 형의 9 주 된 쥐를 희생.
- 그것의 뒤에 각 마우스를 놓고 70% 에탄올 솔루션으로 복 부를 세척 합니다. 복 부 벽을 따라 절 개를 경도 확인 합니다. 및 (사용 하 여 비장 가이드로) 췌 장 해 부 찾아서 10 mL 얼음에 10 cm 비 세포 접착 요리에 차가운 PBS/ps. 전송 셀 문화 후드 즉시 요리. 이 단계 이후, 셀 문화 후드 항상 작동 합니다.
- 새로운 비-셀에 각 췌 전송 접착제 접시 이전 가득 콜라의 7 mL 나 솔루션 1.
- 신속 하 게 약 1 m m3 파편의 균질 조직 정지를 일회용 scalpels의 한 쌍 각 췌를 말하다.
참고:이 절차 최적의 세포 생존 능력에 대 한 더 이상 2 분 걸릴 한다 중요 하다. - 37 ° C에서 콜라 소화, 5% CO2 10 분, 균질 성 조직 소화를 보장 하기 위해서 모든 3 분 떨고 셀 문화 인큐베이터에 접시를 품 어.
- 50 mL 원뿔 튜브 (각 췌 하나) 소화 조직 복구, 포상 세척 매체의 10 mL와 접시 세척 같은 50 mL 원뿔 튜브에, 이상의 3 배 아래로 조직 소화 pipetting.
- 100 x g 18 ° C에서 5 분에 대 한 소화 조직을 아래로 회전 시키십시오 그리고 제거는 상쾌한.
참고:이 단계 동안 콜라 활동 낮은 18 ° C에서 셀 아래로 회전 합니다. - 조직 resuspend 펠 렛 7 mL 콜라에에서 나 솔루션 및 새로운 10 cm 비 세포 접착 접시에이 솔루션을 부 어.
- 콜라 소화 단계 2.1.5, 떨고 동종 조직을 소화를 보장 하기 위해서 모든 3 분에서 10 분 동안 37 ° C에서의 두 번째 라운드에 대 한 요리를 품 어. 한편, 100 μ 셀 스 트레이너로 각 췌 한 깨끗 한 50 mL 원뿔 튜브 준비.
- 소화 조직을 복구 하 고 macerating 살 균 10 mL 주사기 플런저 (전단 힘 여과기 표면에 접선을 피하 조직, 신중 하 게 눌러 있는지 확인)를 조직 하 여 100 μ 셀 스 트레이너를 통해 전달 합니다. 포상 세척 매체의 10 mL와 함께 접시를 세척 하 고 동일한 100 μ 셀 스 트레이너가 10ml를 통과.
- 100 x g 18 ° C에서 5 분에 대 한 소화 조직을 아래로 회전 시키십시오 그리고 제거는 상쾌한.
- 포상 세척 매체의 10 mL와 함께 조직 펠 릿을 복구 합니다. 이미 포함 된 신선한 포상 세척 매체의 추가 10 mL, 물의 resuspension의 펠 릿에 대 한 과도 한 pipetting 피하고 50 mL 원뿔 튜브에 셀 솔루션을 전송 합니다.
- 100 x g 18 ° C에서 5 분에 대 한 소화 조직을 아래로 회전 시키십시오 그리고 제거는 상쾌한.
- 조심 스럽게 소화 조직 포상 복구 매체의 6 ml에서 resuspend 하 고 6-잘 멀티 잘 조직 문화 접시, 3 mL의 2 우물에 그것을 배포. stereomicroscope에서 신중 하 게 평가 포상 격리의 품질 단일 셀 ( 그림 2B참조);의 작은 비율과 포상 클러스터의 동종 중단으로 나타나는 어떤 큰 조직을 제거 덩어리 결국 제시 (일반적으로 육안으로도 보이는), 솔루션에서 pipetting으로.
- 주 췌 acini의 시드
- 셀 복구 수 있도록 2 h, 셀 문화 인큐베이터에서 37 ° C에서 소화 포상 클러스터를 품 어.
- 셀 복구 코트 동안 48-잘 멀티 무력화 쥐 꼬리 콜라겐의 100 μ와 웰 스 하 고 양식에 히드로 쿠션 수 있도록 셀 문화 인큐베이터에서 37 ° C에서 1 시간에 품 어.
- 후 세포 복구, 2 h 포상 세포 현 탁 액 원뿔 튜브에 수집, 18 ° C에서 100 x g에 5 분 동안 스핀 다운 하 고는 상쾌한을 제거 합니다.
- 포상 문화 매체 (150 μ 48 잘 조직 배양 플레이트의 각 음에 대 한)의 적절 한 볼륨에는 acini resuspend. 각 씨는 최적의 밀도 (100-120 포상 클러스터/잘)를 16 우물에 췌 장을 해리 했다.
- 희석 중화 쥐 꼬리 콜라겐의 동등한 양으로이 포상 일시 중지 나 솔루션, 얼음에 튜브를 유지. 신중 하 게 혼합 하 고 신속 하 게 씨앗 2.2.2 (300 μ 48 잘 멀티 잘 조직 배양 플레이트의 각 음에 대 한)에 설명 된 콜라겐 쿠션 위에 세포 현 탁 액.
- 양식에 히드로 있도록 셀 문화 인큐베이터에서 37 ° C에서 1 시간을 품 어.
- 췌 장 organoids의 유도
- 500 μ의 포상 문화 매체 R26-rtTAM2;에서 췌 장 organoids의 야프-종속 유도 2 μ g/ml doxycycline 보충으로 콜라겐 hydrogels 오버레이 TetO 얍S127A 쥐; 네거티브 컨트롤 wt 셀 교양된 같은 조건 또는 R26-rtTAM2;에 의해 제공 됩니다. TetO 얍S127A doxycycline의 부재에서 경작 하는 세포.
- 문화 포상 세포 포상 문화 매체에서 2 μ g/mL doxycycline 상쾌한 문화 매체 (300 μ/잘) 모든 48 h organoid 형성 ductal 같은 구조 ( 를 형성 하는 낭종으로 형태학 적 변화에 의해 다음 5 ~ 7 일에 대 한 보충 그림 2C). 세포를 췌 장 organoid 문화 조건에 passaged 또는 추가 분석에 대 한 수확 수 있습니다 organoids 형성 되 면 (예: RNA 추출, 면역 형광 검사).
- 하위 췌 장 organoids의 배양
- 그들의 자기 재생 능력을 평가, clonally 유도 하는 YAP 췌 장 organoids (yDucts) 외 인 얍/TAZ 공급 (즉별도로 3 차원 지하실 멤브레인 매트릭스 hydrogels (췌 장 organoid 문화 조건)에 통행. doxycycline 관리는 별도로).
- 트립 신 준비 0,05%/EDTA; 100% 증가율 감소 지하실 멤브레인 매트릭스; 췌 장 Organoid 매체와 콜라 나 솔루션 b.
- 준비 15 mL 원뿔 튜브 콜라의 4 mL 나 솔루션 B passaged 수를 각 잘.
- 문화 매체를 버리고, 신중 하 게 부드러운 포부에 의해 hydrogels 우물에서 추출 하 고 원뿔 튜브에 그들을 전송.
- 콜라겐 매트릭스 (체크는 히드로 solubilized 완전히 때까지 각 10 분)의 완벽 한 소화 수 있도록 지속적인 활기찬 동요와 함께 30 분 동안 37 ° C에서 튜브를 품 어. 750 x g 2 분에 복구 된 셀 아래로 회전 시키십시오 고 상쾌한을 제거 합니다.
- 품 어 트립 신 1 mL에 복구 된 셀 단일 세포 현 탁 액을 37 ° C에서 10 분 동안 0,05%/EDTA. 9 mL PBS 1의와 트립 신을 희석 x 750 x g 2 분 동안에 아래로 회전 하 고 상쾌한 제거.
- 얼음 차가운 증가율 감소 지하실 멤브레인 매트릭스에서 셀 펠 릿과 매우 낮은 부착 판 (일반적으로 24-잘 접시의 한 잘에서 150 μ의 드롭)에 씨앗을 resuspend.
- 37 ° C에서 40 분 셀 문화 인큐베이터에 접시를 배양 하 여 고형화 하 고 췌 장 Organoid 매체와 다음 오버레이 지하실 멤브레인 매트릭스 히드로 게 (500 μ 각 잘). yDucts는 7-10 일 (그림 2D) 낭종 같은 organoids로 성장할 것입니다.
- 더 organoids를 뿌리고 제거할 수 있습니다 지하실 멤브레인 매트릭스에서 얼음 차가운 PBS 1 부 화에 대 한 x 30 분 뒤 세척 하 여 3 번 스핀 다운 5 분 및 얼음 차가운 PBS 1 물의 resuspension 180 x g에서 매트릭스 carryover 피하기 위해 x. Organoids는 다음 단일 셀 정지를 10 분에 대 한 트립 신 0.05% 해리 신선한 지하실 멤브레인 매트릭스에 다시 시드해야 고 췌 Organoid 매체 (2.4.7-2.4.8)로 입혔다.
- yDuct organoids 단계, 2.4.9 trypsinization, 피하로 100% 지하실 멤브레인 매트릭스 문화에서 복구 하 여 액체 질소에 cryopreserved 수 고 10 %DMSO 보충 췌 Organoid 매체에 저장.
- yDuct organoids-80 ° C에서 신속 하 게 고정 되며 다음 액체 질소에 보존.
결과
YMaSCs의 생성
얍의 과도 식으로 기본 유 방 LD 셀 프로그램을 실험 전략의 개요 그림 1A에 제공 됩니다. 기본 유 방 LD 상피 세포13정렬 형광 활성화 된 세포에 의해 정화 된다. 그림 1B 세 가지 가지 부분 모집단을 얻기 위해 일반적인 정렬 프로시저를 나타냅니다: 기저 세포 (EpCAM낮은CD49f높은CD61-), Luminal 조상 (LP) 세포 (EpCAM높은CD49f낮은CD61+ )와 LD 셀 (EpCAM높은CD49f낮은CD61-). 주의 3 부분 모집단의 게이팅 격리 LD 셀의 순수한 준비 필수, 그는 완전히 분화 하 고 성장 때 유선 식민지 형성 ( 그림 1C, 왼쪽 패널 참조)에서 시드를 체포 하는 완전히. 반대로, exogenous 얍을 표현 하도록 유도, LD 셀 시작 5% 지하실 멤브레인 매트릭스 현 탁 액 문화 (그림 1C)에 쉽게 인식할 수 있는 조밀한 상피 식민지를 확산. 프로그래밍, 효율 인증 약 3%는 전형적인 실험, 원래 지하실 멤브레인 매트릭스 현 탁 액 문화 (그림 1D)에 시드 단일 셀의 수에 식민지의 수를 계산 하 여 득점 될 수 있다. 재설정된 luminal 셀 (yMaSCs) 다음 상태로 100% 지하실 멤브레인 매트릭스 organoid 문화 ( 그림 1A에서 구성표 참조), 스스로 여러 루멘 주위를 개발 하는 복잡 한 organoid 같은 구조로 조직 통과 수 고 doxycycline (즉 유전자 변형 얍 식의 부재에서)의 부재에도 놀라운 자기 재생 능력을 표시 (그림 1E). 조직학, yMaSC에서 파생 된 organoids 표시 기저 레이어 (긍정적인 K14), ECM 및 luminal 레이어 (K8 긍정적인), organoid (그림 1 층) 내에서 루멘 모양의 구멍을 직면 하 고 재구성 지하실 멤브레인 매트릭스를 직면 하 고. 이 아키텍처는 네이티브 MaSCs (그림 1 층)에 의해 형성 하는 organoids의 저것에서 구별할 수 없습니다.
YDucts의 생성
주 췌 acini 야프의 과도 식으로 프로그램을 실험 전략에 대 한 개요는 그림 2A에 표시 됩니다. 전체 포상 클러스터 온화한 분리 및 여과 통해 크기 배제의 조합에 의해 췌 장 조직의 대부분에서 격리 됩니다. 일반적인 준비는 그림 2B에서 제공 됩니다. 절연, 포상 세포 클러스터 exocrine 포상 단위의 균질 크기, 내 분 비 Langerhans islets 또는 췌 장 ductal 트리와 단일 셀에 최소한의 분리의 조각에 의해 오염 없이의 정지로 표시 됩니다. 내 분 비 작은 섬 또는 ductal 파편 오염은 가혹한 처리;으로 인해 부족 한 선택적 여과 (2.1.10 단계)의 표시 단일 셀에 포상 클러스터의 원치 않는 분리 추가 SBTI 치료 curbed 수 조직에 의해 발표 하는 분해 효소의 과도 한 콜라 치료 또는 버퍼링으로 인해 수 있습니다.
전형적인 포상 재활 실험은 그림 2C; 제시 3D 콜라겐에서 문화의 5-7 일 이내-히드로 doxycycline 존재를 기반으로, 췌 장의 acini R26-rtTAM2/tetO-얍S127A 마우스에서 쉽게 파생 덕트 같은 클러스터로 얇은 작곡 (그 우리 라는 yDucts), 확장 중앙 구멍 주위 확산 상피 세포의 단층. 약 70% 인 전형적인 실험에 대 한, 재활 효율성 시드 acini (그림 2D)의 총 수에 덕트 같은 클러스터 수를 득점으로 쉽게 측정할 수 있습니다. 부정적인 통제 세포, 즉 R26-rtTAM2 / + 셀 또는 R26-rtTAM2/tetO-얍S127A 셀 왼쪽 doxycycline, 하지 않고 변함없이 유지 하지 이러한 문화 조건에, 이전 보고1 포스트 mitotic 포상 클러스터로 ,,1415. 있으 나 재설정된 yDucts Matrigel 기반 organoid 문화 조건16 으로 단일 세포 수준에서 다음 passaged 될 수 있다 ( 그림 2A에서 구성표 참조), doxycycline (즉 의 부재에도 놀라운 자기 재생 능력을 표시 유전자 변형 얍 식의 부재)에서 (그림 2E).
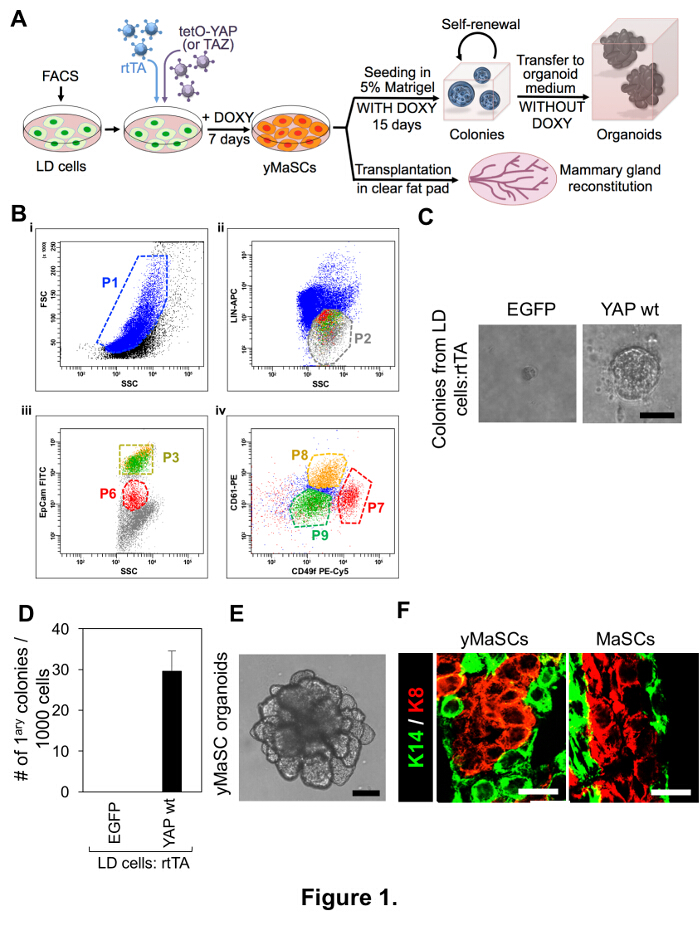
그림 1: 기본 유 방 LD의 고립 세포와 유도의 유 방 줄기 세포. (A) 실험 절차의 도식 표현 기본 유 방 LD 셀 프로그램을 채택 했다. (B) 대표 FACS-구획 전형적인 정렬 절차를 보여주는 LD 세포를 정화. i) 천연된 셀 고 측면 분산형 라이브 셀 (P1; 블루);에 따라 문이 ii) 인구 P1의 린 프로 파일에 따라 추가 문이 다음: 혈통 부정적인 세포 (P2; 그레이)의 부분 모집단 선택 제외 혈통 긍정적인 조 혈 모 세포; 3) 인구 P2 다음는 EpCAM높은 (P3, 옐로우 + 그린)와 EpCAM낮은 (P6, 레드) 모집단;으로 구분 4) P3, P6는 다음 추가 문이 그들의 CD61/CD49f 프로 파일에 따라 3 개의 모집단으로: EpCAM낮은CD49f높은CD61- 기저 세포 (P7, 레드), EpCAM높은CD49f낮은CD61+ LP 셀 (P8, 노랑) 그리고 EpCAM높은CD49f낮은CD61- LD 셀 (P9; 녹색). (C) 이미지는 유 방 식민지 매체에 뿌리기 후 15 일 유 방 식민지를 형성 하는 LD 셀, 지정 된 구조와 감염의 기능 설명입니다. 식민지 형성으로 셀 턴 얍 표현 셀, 반면 부정적인 제어 (EGFP 감염) 세포 유지 성장 체포 단일 셀으로. 눈금 막대 = 50 μ m. (D) (C)에서 표시 된 셀의 능력을 형성 하는 식민지의 정량화. 데이터 의미 + 사 우 스 다코타 제시 되며 각각 6 기술 복제 5 개의 독립적인 실험의 대표. (E) 얍 재설정 유 방 줄기 세포와 같은 세포 (yMaSCs) 상태로 organoid 문화에 신선한 3 차원 100% 지하실 멤브레인 매트릭스 히드로 부재에 Doxycycline의 12 일 후의 대표 이미지. 눈금 막대 100 μ m =. (F) organoids의 (레드) luminal 마커 K8 기저 마커 K14 (녹색)에 대 한 대표적인 면역 형광 이미지 organoid 문화 조건에 12 일 후에 하는 지정 된 셀에서 파생 된. 눈금 막대 = 10 μ m. 이 그림은 Panciera 그 외 여러분, 20161에서 재생 된다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
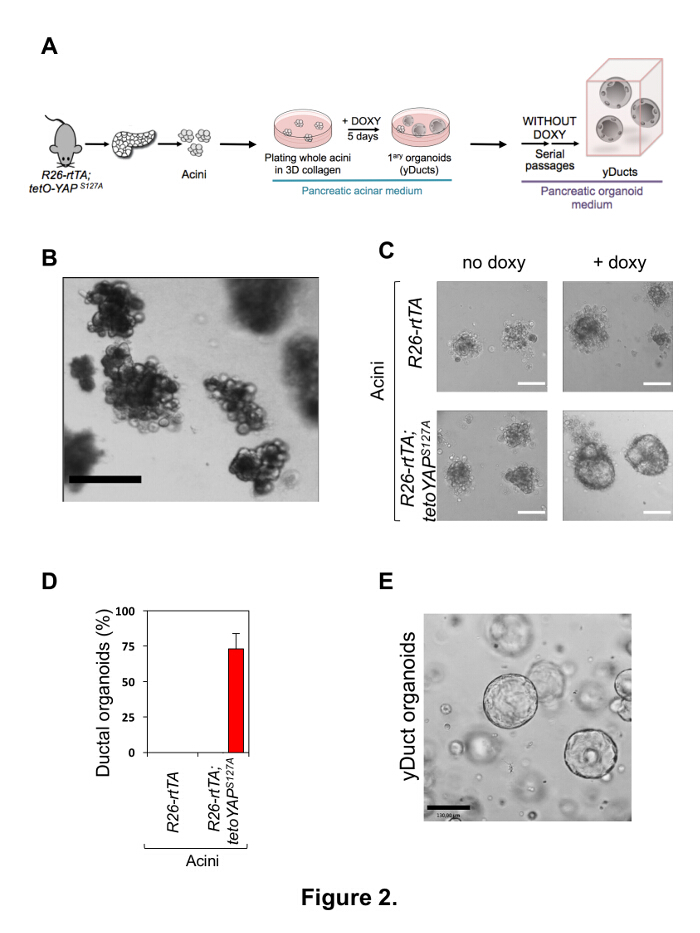
그림 2 : 기본 췌 장 acinar 세포 및 췌 장 창시자의 유도의 격리. (A) 실험 절차의 도식 대표 주 췌 exocrine 포상 세포를 프로그램을 채택. (B) 기본 췌 acini 격리 절차 (단계 2.1.14) 직후의 대표 이미지. 포상 준비 포상 클러스터의 균질 정지로 단일 셀의 최소한의 존재와 함께 나타납니다. 눈금 막대 = 400 μ m. (C) 기본 췌 acini의 대표 이미지 R26-rtTAM2 (위 패널)에서 파생 된또는 R26-rtTAM2; tetO 얍S127A (낮은 패널) 쥐 나 3 차원 콜라겐에 경작 하 고-함께 또는 없이 5 일 동안 하이드로 겔을 기반으로 Doxycycline (doxy), 표시 된 대로입니다. 만 주 acini 얍 표현 Doxycycline 추가 후 낭종 같은 organoid로 성장 하는 셀을 변환 합니다. 스케일 바 = 70 μ m. (D) (C)와 같이 유전자 변형 얍 overexpression에 ductal organoids를 형성 하는 췌 장 acini의 기능의 정량화. 데이터 의미 + 사 우 스 다코타 제시 되며 4 개의 기술 복제 수행 5 개의 독립적인 실험의 대표. (E) 얍 reprogramed ductal 같은 셀 (yDucts) 후 신선한 3 차원 100% 지하실 멤브레인 매트릭스 히드로 Doxycycline의 부재에 3 구절의 대표 이미지. 눈금 막대 = 130 μ m. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
| 기본 유 방 세포의 고립 | |
| 캘리포니아2 + 해결책 킬레이트 화 | 4 ° C에서 저장소 |
| EDTA | 0.02 %w / V |
| PBS | |
| 콜라겐 코팅 솔루션 나 | |
| 초 산 0.02N, pH 3,23 | |
| 쥐 꼬리 콜라겐 (코팅) | 1:50 |
| Dispase 솔루션 | 4 ° C에서 저장소 |
| Dispase | 5 mg/ml |
| PBS | |
| 분리 매체 | |
| DMEM:F12 | |
| Hyaluronidase 재고 솔루션 | 400 U/mL |
| 펜/Strep | 1 x |
| 재고 솔루션 콜라 나 | 600 U/mL |
| Haemolytic 솔루션 | 4 ° C에서 저장소 |
| NH4Cl 솔루션 | 1 부품 |
| TrisBase 20.6 g/L | 9 부품 |
| pH 7.2 조정 | |
| HBSS/PS | 4 ° C에서 저장소 |
| HBSS | |
| 펜/Strep | 2 x |
| Hyaluronidase 재고 솔루션 | 0.2 µ m 필터, 4 ° C에서 저장 |
| 소 고환 (분말)에서 hyaluronidase | 2000 U/mL |
| 나트륨 인산 염 버퍼 1 M pH7.3 | |
| NH4Cl 솔루션 | T. amb에 저장 합니다. |
| H2O | |
| NH4Cl | 7.1 g/L |
| 7.65에 pH를 조정 | |
| 솔루션을 정렬 | 0.2 µ m 필터, 4 ° C에서 저장 |
| BSA | 0.1% |
| EDTA | 1mm |
| HEPES pH 7 | 25 m m |
| PBS | |
| 세척 매체 #1 | |
| DMEM/F12 | |
| 펜/Strep | 1 x |
| 세척 매체 #2 | |
| DMEM/F12 | |
| FBS | 5% |
| 펜/Strep | 1 x |
| 유 방 2D 문화 매체 | |
| DMEM/F12 | |
| FBS | 2% |
| 헤 파 린 | 4 mg/mL |
| L-글루타민 | 1 x |
| murine bFGF | 10 ng/mL |
| murine EGF | 10 ng/mL |
| 펜/Strep | 1 x |
| 유도 및 yMaSCs의 Passaging | |
| 유 방 식민지 매체 | |
| DMEM:F12 | |
| FBS | 5% |
| 헤 파 린 | 4 µ g/mL |
| L-글루타민 | 1 x |
| Matrigel (뿌리기 직전 추가) | 5% |
| murine bFGF | 20 ng/mL |
| murine EGF | 10 ng/mL |
| 펜/Strep | 1 x |
| 유 방 Organoid 매체 | |
| 고급 DMEM:F12 | |
| B27 | 1 x |
| GlutaMax | 1 x |
| 헤 파 린 | 4 µ g/mL |
| Hepes | 1 x |
| 인간의 머리 | 100 ng/mL |
| murine bEGF | 20 ng/mL |
| murine EGF | 50 ng/mL |
| R-Spondin 1 | 1 µ g/mL |
표 1: yMaSCs의 생성. 모든 다른 문화 미디어와 기본 유 방 LD 세포의 분리 및 yMaSCs (제 1)의 유도에 필요한 솔루션의 구성
| 주 췌 acini의 절연 | |
| 문화 매체 포상 | |
| BPE | 50 µ g/mL |
| BSA | 0.1% |
| Dexamethasone | 1 µ g/mL |
| FBS | 0.1% |
| 그것의 X | 1 x |
| 펜/Strep | 1 x |
| SBTI | 0.2 mg/mL |
| Waymouth의 매체 | |
| 포상 세척 매체 | |
| BSA | 0.1% |
| 펜/Strep | 1 x |
| RPMI 매체 | |
| SBTI | 0.2 mg/mL |
| 포상 복구 매체 | |
| 문화 매체 포상 | |
| FBS | 30% |
| 콜라 나 솔루션 A | |
| 포상 세척 매체 | |
| 재고 솔루션 콜라 나 | 360 U/mL |
| PBS/PS | 4 ° C에서 저장소 |
| PBS (인산 염 버퍼 염 분) | |
| 펜/Strep | 1 x |
| 재고 솔루션 콜라 나 | -20 ° C에서 저장소 |
| 콜라, 유형 I (분말) | 6000 U/mL |
| PBS | |
| 췌 장 organoids의 뿌리고 | |
| 콜라 나 솔루션 B | |
| PBS 1 x | |
| 재고 솔루션 콜라 나 | 240 U/mL |
| 췌 장 Organoid 매체 | |
| 고급 DMEM/F12 | |
| B27 | 1 x |
| gastrin | 10 nM |
| 인간 FGF10 | 100 ng/mL |
| 인간의 머리 | 100 ng/mL |
| murine EGF | 50 ng/ml |
| N-진 | 1.25 m m |
| 니코틴 | 10 m m |
| 펜/Strep | 1 x |
| R-Spondin 1 | 1 mg/mL |
| SBTI | 0.2 mg/mL |
표 2: yDucts의 생성. 모든 다른 문화 미디어와 yDucts (제 2)의 뿌리고 주 포상 세포와 유도의 격리에 필요한 솔루션의 구성
토론
여기 선물이 그들의 해당 조직의 특정 조상 세포 (또는 ySCs)로 다른 조직의 비보 전 말기 분화 상피 세포를 프로그램을 프로토콜 얍의 과도 식으로 보고 이전1. 우리 두 절차 세부: lentiviral 벡터와 두 번째 하나는 바이러스 감염을 방지 하 고 유전자 변형 얍 식의 활용을 통해 셀 FACS 정화의 프로그래밍 허용 하나. 각 프로토콜 효율적인 전략을 제시 하 고 문화 기본 차별화 된 세포와 세 하 전략 짖 차별화 된 세포에 유전자 발현에 드 노 보 체세포 조직-특정 확장 줄기 세포 (참조 생성 그림 1A 와 2A음모).
우리는 우리가 결코 부정적인 컨트롤 샘플 (그림 1C 와 2c)에서 어떤 결과 감지 하는 사실에 의해 증명 여기 제시 효과적으로 격리 전략의 차별화 된 셀의 순수한 인구 격리 시연 했다.
기본 유 방 LD 셀의 프로그래밍에 대 한이 연구에 사용 된 lentiviral 벡터 doxycycline 유도할 수 있는 transgene 식;의 꽉 컨트롤의 가능성을 제공 하는 이 설정에 있으며 exogenous 얍 오프에 식을 것 이다. 특히 주의 프로그래밍 효율성 측면에서 해로운 수 과도 한 바이러스 titer의 사용을 피하에 두어야 한다. 주요 포상 세포의 경우 우리는 최소한의 조작으로 얍 따라 프로그래밍를 완전히 유전자 변형 방법 전환. 이 후자의 전략도 고립 된 포상 클러스터는 거의 순종 lentiviral 감염 하 고 매우 깨지기 쉬운 기본 췌 acini 특히 적합 이다. 유전자 변형 전략 고용 유전자 발현의 꽉 컨트롤 doxycycline 종속 lentiviral 벡터의 동일한 이점을 제공 합니다. 또한, 유전자 변형 전략 기본 췌 acini와 착취는 훨씬 높은 재활 효율 유 LD 세포의 바이러스 성 유도 프로그래밍에 비해의 추가적인 장점을 맺는 다. 다른 조직에서 파생 된 셀에 연결 된 다른 본질적인 소성 넘어 췌 장 프로그래밍의 더 높은 속도 모두 균일 하 고 자치 얍 식에 연관 된 식의 높은 효율에서 파생 될 수 있습니다. explanted 셀입니다. 특히, 우리는 외 인 야프는 더 이상 필요 (yMaSC 식민지 그리고 yDucts), ySCs의 생성 후 자신의 자기 재생 능력을 영향을 주지 않고 증명 하고있다. YSCs 생 얍/TAZ를 다시 활성화 하 고 꺼지면 exogenous 얍1자기 갱신에 대 한 그들을 사용 하는 때문입니다.
우리는 ySCs 유전자 계보 추적 유효성 검사1통해 우리의 재활 실험의 원래 셀을 제어 하 여 차별화 된 세포에서 실제로 등장 하는 개념 검증.
광범위 한 특성ySCs의 표시는 일반 체세포 SCs1 로 생성 프로그래밍 유도 하는 YAP) transcriptomic 수준에서 ySCs 네이티브 SCs;와 대규모 중복 표시 ii) ySCs 감 별 법 잠재력을 표시 하 고의 그들의 조직의 정체성을 항상 제한 multilineage 자손을 생성할 수 있습니다. ySCs iii) 변형 비 고 비 tumorigenic 때 생체 내에이식.
여기 우리 또한 유지 하 고 문화에 확장 하는 절차를 설명 100% 지하실 멤브레인 매트릭스 hydrogels에 포함 된 yMaSCs와 organoids로 yDucts. 자기 조직에 대 한 이러한 조건이 허용 stemness 속성 장기 문화에의 유지 보수를 보장 하는 3 차원 organoids에 ySCs의 다운스트림 분석 및 응용 프로그램에 대 한 것입니다 인구 줄기 이러한 확장을 사용. 알 수 없는 이유로, 우리는 yMaSC를 실패 했습니다 배치 하 여 organoids 감염 organoid 문화 조건에 직접 LD 셀 플라스틱 조직 문화 접시; doxycycline 치료 후 7 일 즉, 유 방 식민지 상태에서 중간 성장 단계는 필수적입니다. 우리의 손에 네이티브 MaSCs organoid 문화에 뿌리고 전에 유 방 식민지 상태를 요구 한다. 또한, 가장 효율적인 organoid 파생물은 우리가 단일 세포로 기본 식민지를 해리를 방지 하지만 오히려 organoid 문화 조건에 그대로 식민지를 전송 때 얻어진 다.
Organoid 문화 조건 또한 ySCs, cryopreserve에 organoids cryopreservation 질소 목욕에 있는 이전 셀 분리를 피하고 그들의 행렬에서 복구 되는 주는 장점은 곰.
제시 하는 절차를 프로그래밍 하는 얍 (우리는 테스트 유 방, 췌 장 및 신경 세포를 사용 하 여) 그들의 해당 조직 관련 줄기 세포로 다른 성인 조직에서 파생 하는 뚜렷한 차별화 된 셀 형식을 변환할 수 있습니다1. Ipsc 또는 기타 재활 노력에서 차이에서 얍/유도 SCs 근원의 그들의 직물의 기억을 유지할 수 있다. 메모의 세포 줄기 같은 속성 부여로 체세포의 탈 분화 세포 운명 소성의 유일한 형태 이다 하 고 상처 치유5,17 을 지원 하 고 조직 손상 후 예 vivo에서 관찰 프로그래밍 , 18 , 19 , 20. 그것은 주목할 만한 야프와 TAZ는 크게 일반 항상성 위해 불가결 하지만 여러 조직11,21조직 수리를 위해 중요 한. 일관 되 게 여기 설명 된 재활 단계의 생리 적 기능, 얍/TAZ 최근 표시 되었습니다 발생으로 성인 장 셀의 변환 하 여 궤 양성 대 장 염 환자의 마우스 모델에서 장 재생에 필요한 것으로 태아 창 자19의 기능을 표시 하는 수리 상피 지금까지 시험관을 잡으려고 도전 상태 체세포 줄기 세포를 생성 하는 수단을 제공 하 여 현재 유도 셀 소성 전략 확장 따라서 얍 프로그래밍 합니다. 이 방법은 또한 인간 파생 셀에 확장 하는 경우 체세포 stemness 상태의 연구 재생 의학 응용 프로그램에서 광범위 한 관련 되 고 체세포의 확장을 위한 줄기 세포에 생체 외에서.
공개 사항
저자 아무 경쟁 금융 관심사를 선언합니다.
감사의 글
우리는 tetO 얍S127A 마우스;의 선물에 감사 F. 카 마르고 R26-rtTAM2 마우스 (주식 #006965)는 잭슨 실험실에서 구입 했다. 우리는 키 아 라 Frasson와 주세페 바소 FACS 절차에 대 한 감사. 이 작품 AIRC 특별 프로그램 분자 임상 종양학 'mille 당 5 '에 의해 지원 되 고는 AIRC PI-그랜트 머리글, 그리고 Epigenetics 플래그십 프로젝트 CNR Miur S.P.에 부여 이 프로젝트는 유럽 연합의 수평선 2020 연구 및 혁신 프로그램 (부여 계약 DENOVOSTEM No. 670126)에서 유럽 연구 회의 (ERC)에서 자금을 받았다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 10 mL 멸균 주사기 | 광선 | 10LC | |
| 100 mm 셀 여과기 | Corning | 352360 | |
| 15 mL 멸균 원뿔형 튜브 | Corning | 430052 | |
| 24-well 초저 부착 플레이트 | Costar | 3473 | |
| 40 mm 셀 여과기 | Corning | 352340 | |
| 48-well 멀티웰 플레이트 | Corning | 353078 | |
| 50 mL 멸균 코니컬 튜브 | Corning | 430290 | |
| 6웰 멀티웰 플레이트 | Corning | 353046 | |
| Advanced DMEM/F12 | Gibco 12634028 | ||
| B27 supplement (50x) | Gibco | 17504001 | |
| BPE | Gibco | 13028014 | |
| BSA | Sigma | A9418 | |
| 콜라겐 분해 효소, 유형 I | 시그마 | 17018029 | |
| 덱사메타손 | 시그마 | D4902 | |
| Dispase | Gibco | 1705-041 | |
| 일회용 메스 | Swann-Morton | 0503 | |
| DMEM/F12 | Gibco | 11320033 | |
| DMSO | Sigma | D2650 | |
| DnaseI | Roche | 11284932001 | |
| doxycycline hyclate | Sigma | D9891 | |
| EDTA | Sigma | E5134 | |
| 에탄올 100% | Sigma | 51976 | |
| FACS 튜브 (스트레이너 캡 포함) | Falcon | 352235 | |
| FBS Gibco | 10270106 | ||
| FITC 안티-마우스 CD326 (Ep-CAM) | BioLegend | 118208 | |
| FUdeltaGW-rtTA | 애드진 | #19780 | |
| FUW-tetO-EGFP | Addgene | #84041 | 음성 대조군으로 사용 |
| FUW-tetO-MCS | Addgene | #84008 | 음성 대조군으로 사용 |
| FUW-tetO-wtYAP | Addgene | #84009 | |
| FUW-tetO-YAPS94A | Addgene | #84010 | 음성 대조군으로 사용(전사적으로 죽은 YAP 돌연변이) |
| GlutaMax | Gibco | 35050061 | |
| HBSS | Gibco | 24020117 | |
| HCl | Sigma | 30721 | |
| 헤파린 나트륨 소금 | Sigma | H3149 | |
| HEPES 완충 용액 (1M) | Gibco | 15630-056 | |
| 인간 R-Spondin1 (His Tag) | Sino Biological | 11083-H08H-5 | |
| Hyaluronidase | Sigma | H3506 | |
| ITS-X | Gibco | 51500056 | |
| K-14 항체 | Life Technologies | Ab7800 | |
| K-8 항체 | Life Technologies | Ab14053 | |
| L-글루타민 | Gibco | ||
| Lin (allophycocyanin [APC] 마우스 계통 항체 칵테일) | BD Biosciences | 51-9003632 | |
| Matrigel® 성장 인자 감소 기저막 매트릭스, 페놀 레드-프리 | 코닝 | 356231 | |
| N-아세틸시스테인 | 시그마 | A9165 | |
| NaOH | J.T.Baker | 0402 | |
| NH4Cl | 시그마 | A9434 | |
| 니코틴아미드 | 시그마 | 72340 | |
| 비셀 접착제 10cm 접시(멸균 폴리스티롤 페트리 접시 ø 94) | ROLL | 18248 | |
| PBS 10x | Euroclone | ECM4004XL | |
| PE 햄스터 안티 마우스 CD61 | BD Biosciences | 553347 | |
| PE-Cy5 Rat Anti-Human CD49f | BD Biosciences | 551129 | |
| PE/Cy7 안티-마우스/랫트 CD29 항체 | BioLegend | 102222 | |
| Pen/Strep (10,000 U/mL) | Gibco | 15140122 | |
| Rat Tail Collagen I (코팅) | Sigma | 122-20 | |
| Rat Tail Collagen I for 3D culture | Cultrex | 3447-020-01 | |
| 재조합 인간 FGF10 | Peprotech | 100-26 | |
| 재조합 인간 Noggin | Peprotech | 120-10C | |
| 재조합 쥐 EGF | Peprotech | 315-09 | |
| 재조합 쥐 FGF 염기성 (bFGF) | Peprotech | 450-33 | |
| RPMI 1640 배지 | Gibco | 31870025 | |
| SBTI (트립신 억제제 글리신 최대) | 시그마 | T6522 | |
| 트리스 베이스 | Roche | 11814273001 | |
| Trypsin-EDTA 0,05% | Gibco | 25300054 | |
| Waymouth 매체 | Gibco | 31220023 |
참고문헌
- Panciera, T. Induction of Expandable Tissue-Specific Stem/Progenitor Cells through Transient Expression of YAP/TAZ. Cell Stem Cell. 19 (6), 725-737 (2016).
- Bar-Nur, O. Lineage conversion induced by pluripotency factors involves transient passage through an iPSC stage. Nat Biotechnol. 33 (7), 761-768 (2015).
- Xu, J., Du, Y., Deng, H. Direct lineage reprogramming: strategies, mechanisms, and applications. Cell Stem Cell. 16 (2), 119-134 (2015).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Blanpain, C., Fuchs, E. Stem cell plasticity. Plasticity of epithelial stem cells in tissue regeneration. Science. 344 (6189), 1242281(2014).
- Bai, H. Yes-associated protein regulates the hepatic response after bile duct ligation. Hepatology. 56 (3), 1097-1107 (2012).
- Cai, J. The Hippo signaling pathway restricts the oncogenic potential of an intestinal regeneration program. Genes Dev. 24 (21), 2383-2388 (2010).
- Elbediwy, A. Integrin signalling regulates YAP and TAZ to control skin homeostasis. Development. 143 (10), 1674-1687 (2016).
- Taniguchi, K. A gp130-Src-YAP module links inflammation to epithelial regeneration. Nature. 519 (7541), 57-62 (2015).
- Zhang, W. Downstream of mutant KRAS, the transcription regulator YAP is essential for neoplastic progression to pancreatic ductal adenocarcinoma. Sci Signal. 7 (324), ra42(2014).
- Zanconato, F., Cordenonsi, M., Piccolo, S. YAP/TAZ at the Roots of Cancer. Cancer Cell. 29 (6), 783-803 (2016).
- Azzolin, L. YAP/TAZ incorporation in the beta-catenin destruction complex orchestrates the Wnt response. Cell. 158 (1), 157-170 (2014).
- Stingl, J. Purification and unique properties of mammary epithelial stem cells. Nature. 439 (7079), 993-997 (2006).
- Means, A. L. Pancreatic epithelial plasticity mediated by acinar cell transdifferentiation and generation of nestin-positive intermediates. Development. 132 (16), 3767-3776 (2005).
- Shi, G. Maintenance of acinar cell organization is critical to preventing Kras-induced acinar-ductal metaplasia. Oncogene. 32 (15), 1950-1958 (2013).
- Huch, M. Unlimited in vitro expansion of adult bi-potent pancreas progenitors through the Lgr5/R-spondin axis. EMBO J. 32, 2708-2721 (2013).
- Fernandez Vallone, V. Trop2 marks transient gastric fetal epithelium and adult regenerating cells after epithelial damage. Development. 143 (9), 1452-1463 (2016).
- Yanger, K. Robust cellular reprogramming occurs spontaneously during liver regeneration. Genes Dev. 27 (7), 719-724 (2013).
- Yui, S. YAP/TAZ-Dependent Reprogramming of Colonic Epithelium Links ECM Remodeling to Tissue Regeneration. Cell Stem Cell. , (2017).
- Pan, F. C. Spatiotemporal patterns of multipotentiality in Ptf1a-expressing cells during pancreas organogenesis and injury-induced facultative restoration. Development. 140 (4), 751-764 (2013).
- Panciera, T., Azzolin, L., Cordenonsi, M., Piccolo, S. Mechanobiology of YAP and TAZ in physiology and disease. Nat Rev Mol Cell Biol. 18 (12), 758-770 (2017).
- Lentiviral production and infection. , http://www.bio.unipd.it/piccolo/protocols/YAP_reprogramming_protocols.pdf (2016).
재인쇄 및 허가
