칠면조 (HVT)의 herpesvirus 조류 질병의 숫자에 대 한 재조합 백신의 세대에 대 한 벡터 플랫폼으로 널리 사용 됩니다. 이 문서는 통합된 NHEJ-CRISPR/Cas9 및 Cre Lox 시스템을 사용 하 여 재조합 형 HVT 벡터화 백신의 세대에 대 한 간단 하 고 빠른 접근을 설명 합니다.
이 논문에서
요약
초록
칠면조 (HVT)의 herpesvirus가 이다는 이상적인 바이러스 성 벡터 bursal 전염병 (IBD) 등 조류 인플루엔자 (AI), 뉴캐슬 질병 (ND), 조류 질병의 숫자에 대 한 재조합 백신의 세대를 위한 세균성 인공적인 염색체 (를 사용 하 여 BAC) mutagenesis 또는 기존의 재조합 방법입니다. 클러스터는 정기적으로 회문 반복 (CRISPR) interspaced / Cas9 시스템 성공적으로 사용 되었습니다 많은 설정에서 유전자 편집에 대 한 몇 가지 큰 DNA 바이러스 게놈의 조작을 포함 한. 우리는 신속 하 고 효율적인 CRISPR/Cas9-중재 게놈 편집 파이프라인 재조합 HVT를 생성 하기 위해 개발 했습니다. 이 방법의 사용 가능성을 극대화 하기 위해 선물이 여기 IBDV의 VP2 단백질을 표현 하는 재조합 형 HVT를 생성의 방법론에 대 한 자세한 정보. VP2 식 카세트 삽입은 HVT 게놈 을 통해 (nonhomologous 끝-가입)는 NHEJ에-의존 수리 통로. 녹색 형광 단백질 (GFP) 식 카세트 쉽게 시각화에 대 한 삽입에 처음 연결 하 고 통해 Cre LoxP 시스템 제거. 이 방법은 다른 바이러스 성 항 원 재조합 백신의 급속 한 발전에 대 한 HVT 게놈으로 소개 하는 효율적인 방법을 제공 합니다.
서론
마렉의 질병 (MD)에 Alphaherpesvirinae의 인도의 속 Mardivirus serotype 1 (Gallid Herpesvirus 2 [GAHV-2])에 의해 유도 된 닭의 lymphoproliferative 질병이 이다. Mardivirus 는 또한 두 nonpathogenic serotypes 포함: serotype 2 (GaHV-3) 및 3 (MeHV-1, 역사적으로 HVT로 알려진) serotype 메릴랜드주에 대 한 백신으로 사용 되는 라이브 HVT 백신 (FC-126 스트레인) 1970 년대 초반에 사용 하는 MD 백신의 첫 번째 세대는 여전히 사용 되 고 널리가 고 다 원자가 백신 정립에 메릴랜드주에 대 한 향상 된 보호 기능을 제공 HVT은 다양성 및 모두 에서 비켜 피하 화장 관리 및 평생 면역을 제공 하는 기능에 대 한 안전 조류 질병의 숫자에 대 한 보호를 유도 하는 백신 벡터로 또한 널리 사용 됩니다. 재조합 형 HVT 백신을 생성 하는 전략 중 기존의 동종 재조합 바이러스에 감염 된 세포, 겹치는 cosmid DNAs, 또는 BAC mutagenesis2를 기반으로 합니다. 그러나, 이러한 메서드는 일반적으로 시간과 전송 벡터의 건설, 대장균, 플 라크 purifications에서 바이러스 성 게놈의 유지 보수 및 BAC 시퀀스와 선택의 제거를 요구 하는 노동 집약 편집된 바이러스3,4에서 표식입니다.
CRISPR/연결 (Cas9)은 최근 몇 년 동안 그것의 다양성 및 특이성 때문에 도구를 편집 하는 가장 인기 있는 유전자 이다. CRISPR/Cas9 시스템은 성공적으로 유전자 변형된 세포 및 동물 모델5,6,7,,89,10, 효율적인 세대에로 사용 뿐만 아니라 여러 큰 DNA 바이러스 게놈11,12,13,14,15,,1617, 조작 18,,1920. HVT 게놈21편집 CRISPR/Cas9 시스템을 사용 하 여 간단 하 고 효율적인 방법을 보고 후 우리는 신속 하 고 효율적인 재조합 HVT22세대에 대 한 파이프라인을 개발 했다.
이 방법의 잠재적인 응용 프로그램을 확장 하기 위하여 재조합 HVT 백신이이 보고서에서 UL45/46 로커 스에서 IBDV의 VP2 유전자 표현 형의 세대에 대 한 자세한 방법을 설명 합니다. 접근 결합 NHEJ-CRISPR/Cas9 GFP 취재 원 유전자와 나중 GFP 식 카세트 제거 하 Cre LoxP 시스템 태그 VP2 유전자를 삽입 합니다. 전통적인 재결합와 BAC recombineering 기술에 비해, Cre Lox 시스템 함께 NHEJ-CRISPR/Cas9는 재조합 형 HVT 백신을 생성 하는 신속 하 고 효율적인 접근 방식을 설명 합니다.
프로토콜
1. Cas9/gRNA 식 및 기증자 구성 준비
-
Cas9/gRNA 식 플라스 미드의 건설
- GRNA 시퀀스 HVT22위에서 설명한 대로의 UL45 및 UL46 유전자 사이 intergenic 지역 대상으로 디자인. 배제 HVT 게놈에서 어떤 잠재적인 오프 대상 시퀀스 HVT 게놈에 대 한 가이드 RNA 대상 시퀀스를 정렬 합니다. 합성 하 고 UL45/46 지역 및 pX459 v 222이전에 설명 된 대로 게시 된 데이터23 에서 sg-A 시퀀스를 대상으로 하는 gRNA 시퀀스를 복제. 생어 시퀀싱 U6 Fwd 뇌관24를 사용 하 여 복제 gRNA 시퀀스를 확인 합니다.
-
기증자 플라스 미드의 건설
- VP2 식 카세트 이동식 GFP 기자 카세트와 태그를 포함 하는 기증자 플라스 미드를 생성 하려면 oligos 기증자-F와 기증자-R (그림 1A 와 그림 3A)는 다음과 같은 요소가 포함 된 디자인: sg-A 대상 시퀀스 끝, GFP 기자 카세트 복제 및 절단, 두 LoxP 시퀀스와 형벌 PacI 사이트와 VP2 식 카세트의 복제에 대 한 두 개의 SfiI 사이트에서.
- PGEM-T-쉬운 벡터에 시퀀스를 복제 하 고, 다음, pGEM-sgA-GFP-VP222로 지정 된 기증자 플라스 미드를 생성 하는 결과 벡터에 GFP와 VP2 유전자 카세트를 복제.
참고: 모든 복제 벡터 기증자 플라스 미드를 만드는 데 사용할 수 있습니다.
-
플라스 미드 DNA 준비
- 기증자 플라스 미드와 Cas9/gRNA 식 플라스 미드 DNAs 제조업체의 지침에 따라 상업 DNA 추출 키트를 사용 하 여 준비 합니다.
2. CRISPR/Cas9-중재 노크-에서: Transfection 및 감염
- Transfection, 전날 transfection/감염, 5% 태아 둔감 한 혈 청 (FBS), 10 %tryptose 인산 염 국물, 스-100 U/mL 페니실린, 보충 M199 매체에서 10 일 된 배아를 사용 하 여 병아리 태아 섬유 아 세포 (CEFs)을 준비 하 고 0.25 µ g/mL fungizone입니다. 매체의 2.5 ml에서 6 잘 플레이트의 각 음에 잘 당 종자 1.3 x 10⁶ 셀.
참고: CEF 세포 보관 하실 수 있습니다 3 d 4 ° c.에 - CEF 셀 (2.1에서 준비 단계) UL45/46-gRNA의 0.5 µ g, sg-a, 0.5 µ g와 pGEM-sgA-GFP-VP2 제조업체의 지침에 따라 적절 한 transfection 시 약을 사용 하 여의 1 µ g transfect (5% CO238.5 ° C)에 인큐베이터에 12 h에 대 한 셀을 품 어.
- Cas9/gRNA 및 기증자 플라스 미드의 12 h posttransfection 1 x 10⁵ pfu/mL에 M199 문화 매체와 HVT 바이러스 재고 희석. Transfected 세포의 각 음에 희석된 바이러스의 130 µ L을 추가 하 고 바이러스의 동일한 수량으로 부정적인 컨트롤로 untransfected 셀의 한 우물을 설정. 5% CO238.5 ° C에서 3 d 페/감염 된 세포를 품 어. 모든 절차는 공동 코드의 연습 (JCoPR)는 funders에 의해 승인를 사용 하 여 수행 합니다.
3. 수확 및 HVT 재조합 바이러스의 정화
-
형광 활성화 된 세포 분류
- 정렬 하기 전에 잘 일 당 2 × 10⁴ CEF 셀 미리 두 96 잘 접시를 준비 합니다.
- CEFs 3 d 바람직합니다 페/감염 trypsinize 각 우물에서 매체를 발음 하 고 인산 염 버퍼 식 염 수 (PBS)와 셀 시트를 헹 굴. Trypsinize 약 5 분 동안 38.5 ° C 배양 기에서 세포를 트립 신-EDTA (0.48 m m) 0.05%의 1 mL를 추가 합니다.
- Resuspend와 microcentrifuge 튜브 1.5 mL FBS의 50 µ L로 세포를 전송. 5 분 동안 200 x g 에서 원심 분리기.
- 1%와 PBS의 1 mL에 셀 resuspend FBS. hemocytometer를 사용 하 여 셀 수를 계산 하 고 1 x 10⁶ 셀/mL을 셀 수를 조정 합니다.
참고: 셀 1-2 h에 대 한 얼음에 보관할 수 있습니다. - 폴리스 티 렌 그것의 여과기 모자를 통해 튜브를 정렬 하는 셀을 전송 합니다. 제조업체의 지시에 따라 셀 정렬을 사용 하 여 CEFs로 시드 96 잘 접시에 GFP를 표현 하는 단일 셀을 정렬 합니다. 5 d 5% CO238.5 ° C에서 정렬된 셀을 품 어.
참고: 재조합 형 바이러스에의 한 통로 경우 너무 많은 단일 GFP 식 세포와 원래 잘에서 몇 GFP-긍정적인 플 라크를 정렬 하기 전에 필요할 수 있습니다.
-
재조합 형 바이러스 뿌리고
- 1.3 통과 하기 전에 잘 하루 106 CEF 셀 x와 시드 6-잘 접시를 준비 합니다. 5 d postsorting, 형광 현미경 96 잘 접시를 확인 합니다. 단일 GFP-긍정적인 패를 포함 하는 우물을 표시 합니다.
참고: 그림 2A 대표 GFP-긍정적인 플 라크에 대 한 참조. - 트립 신-EDTA 3 분의 50 µ L로 잘 각 GFP-긍정적인 trypsinize 추가 문화 매체의 50 µ L, resuspend 하 고 CEFs와 6 잘 플레이트 한 우물으로 셀을 전송. 이 1 세대 재조합 HVT의 될 것입니다.
- 재조합 형 바이러스 3 d 나중의 1 세대를 수확, 중간 포함 10% 태아 종 아리 혈 청 (FCS), 10% 디 메 틸 sulfoxide (DMSO) 및 80% 문화 매체, 동결의 1 mL에 각 한 유리병 아래로 고정 하 고 액체 질소에 바이러스를 저장 합니다.
참고: 바이러스의 확산 및 용량에 따라 2-4 d에서 수확 시간이 달라 집니다. - 바이러스의 각 1 세대의 1 x 10⁵ 셀을 수집 하 고, 원심은 상쾌한 삭제. 세포 DNA 추출-20 ° C에 저장 합니다.
- 1.3 통과 하기 전에 잘 하루 106 CEF 셀 x와 시드 6-잘 접시를 준비 합니다. 5 d postsorting, 형광 현미경 96 잘 접시를 확인 합니다. 단일 GFP-긍정적인 패를 포함 하는 우물을 표시 합니다.
-
연쇄 반응에 의해 게놈 삽입의 검출
- DNA 추출에 대 한 서 리 없애다과 단계 3.2.4 버퍼를 첨 벙 첨 벙의 50 µ L에서에서 셀 펠 릿 resuspend (10 mM Tris HCl [pH 8], 1 mM EDTA, 25 mM NaCl, 그리고 200 µ g/mL 가수분해 K) 30 분 동안 65 ° C에서 샘플을 lyse 고 고 다음, 가수분해 K. 비활성화를 2 분 동안 95 ° C에
- 중 합 효소 연쇄 반응 (PCR) 3' 접합 뇌관으로 (표 1) DNA 샘플의 1 µ L를 사용 하 여 수행 합니다. 각 샘플에 대 한 준비 얼음에 다음 20 µ L 반응 혼합: PCR 주인 혼합 x 2 (10 µ L), 10 µ M 업스트림 뇌관 (0.5 µ L), 10 µ M 다운스트림 뇌관 (0.5 µ L), DNA (1 µ L), 템플릿과 nuclease 무료 물 (8 µ L). 증폭 프로그램은: 95 ° C 2 분; 95 ° C 30에 대 한 s, 55 ° C 30에 대 한 s, 그리고 40 72 ° C s 35 주기; 72 ° C 1 %agarose 젤 젤 전기 이동 법에의 한 음을 증폭 제품의 7 분 부하 2 µ L에 대 한.
참고: 그림 2A 3' 접합 PCR의 대표적인 결과 대 한 참조.
4. 시스템 통해 Cre lox 형광 성 취재 원 유전자의 절단
- 재조합 형 바이러스에서 GFP 유전자를 제거, Cre recombinase 식 플라스 미드의 2 µ g 6 잘 플레이트에 transfect CEF 셀, 제조업체의 지시에 따라 transfection 시 약을 사용 하 여 미리.
- 12 h posttransfection, 액체 질소에서 재조합 형 바이러스에의 한 유리병에 서 리 없애다, 부드럽게 resuspend, transfected 세포의 각 음에 50 µ L 씨 고 하나 잘 바이러스의 동일한 금액으로 부정적인 컨트롤로 설정 합니다. 5% CO238.5 ° C에서 3 d에서 품 어.
5. 플 라크 정화
-
형광 활성화 된 세포 분류
- 정렬 하기 전에 잘 일 당 2 × 10⁴ CEF 셀 씨 두 96 잘 접시.
- 정렬에 감염 된 세포를 준비 (4 단계)에서 단계 3.1 72 h 바람직합니다에 설명 된 절차를 따릅니다. CEFs와 시드 96 잘 접시로 단일 nonfluorescence 셀을 정렬 합니다.
-
재조합 형 바이러스 및 PCR 확인 뿌리고
- 5-10 단일 nonfluorescence 패 5 d postsorting, 트립 신-EDTA 3 분, 38.5 ° C에서의 50 µ L 함께 trypsinize와 resuspend 셀 문화 매체의 50 µ L를 추가 선택 합니다.
참고: 그림 2B 대표 GFP 네거티브 플 라크에 대 한 참조. - 2 세대로 CEFs와 미리 6 잘 플레이트의 각 음에 셀의 절반을 전달 합니다.
- 5 분 동안 200 x g 에서 각 클론의 나머지 세포를 원심, 상쾌한, 삭제 하 고 셀 DNA 추출에 대 한 버퍼를 첨 벙 첨 벙의 50 µ L resuspend.
- 3.3.2 단계에서 설명한 대로 동일한 PCR 반응 조건으로 DNA 템플렛의 1 µ L를 사용 하 여 5' 접합 뇌관 (표 1)으로 PCR을 수행 합니다.
참고: 그림 2B 5' 접합 PCR의 대표적인 결과 참조 하십시오. - PCR 결과에 따라 달라 집니다, 추가 구절 및 검증을 위한 재조합 형 HVT의 3 ~ 5 긍정적인 클론을 선택 합니다.
- 5-10 단일 nonfluorescence 패 5 d postsorting, 트립 신-EDTA 3 분, 38.5 ° C에서의 50 µ L 함께 trypsinize와 resuspend 셀 문화 매체의 50 µ L를 추가 선택 합니다.
6입니다. 재조합 형 HVT의 확인
-
간접 면역 형광 분석 결과
- 재조합 HVT 감염 전날 105 CEFs x 2.5 시드 24-잘 접시에 단계 5.2에서에서 얻은의 두 번째 세대와 함께 CEFs를 감염. 세포 배양 매체 48 h 바람직합니다 제거 하 고 셀을 해결 하기 위해 PBS에 4 %paraformaldehyde 500 µ L를 추가. 30 분 동안 실내 온도에 격판덮개를 품 어,는 정착 액을 제거 하 고 세척 셀 레이어 3 x PBS.
참고: 셀 저장할 수 있습니다이 단계에서 4 ° C에서 몇 주 동안. - PBS를 제거 하 고 추가 500 µ L 0.1%의 15 분 세척 셀에 대 한 세포를 permeabilize에 Triton X-100 레이어 PBS 가진 3 배.
- 블로킹 버퍼 (PBS에 5% 소 세럼) 1 시간을 추가 하 여 블록 일반적인 바인딩.
- 1 차적인 항 체 안티 VP2 단일 클론 항 체 차단 버퍼에서 1: 200에서 닭 혈 청 HH7 또는 HVT 감염을 묽 게 하십시오, 잘, 당 200 µ L을 추가 하 고 1 h. 세척 셀 레이어 PBS 가진 3 배 대 한 실 온에서 품 어.
- 이차 항 체 염소 반대로 마우스 IgG 알 렉 사 568 또는 염소 항 치킨 IgG 알 렉 사 488 블로킹 버퍼에서 1: 200 희석, 잘 당 200 µ L을 추가, 1 시간, 실 온에서 품 어와 셀 3 세척 PBS와 x. 형광 현미경에서 단백질 발현을 확인 하십시오.
주: 결과 얼룩이 지기 대표 VP2 그림 4 를 참조 하십시오.
- 재조합 HVT 감염 전날 105 CEFs x 2.5 시드 24-잘 접시에 단계 5.2에서에서 얻은의 두 번째 세대와 함께 CEFs를 감염. 세포 배양 매체 48 h 바람직합니다 제거 하 고 셀을 해결 하기 위해 PBS에 4 %paraformaldehyde 500 µ L를 추가. 30 분 동안 실내 온도에 격판덮개를 품 어,는 정착 액을 제거 하 고 세척 셀 레이어 3 x PBS.
-
VP2 유전자의 시퀀싱
- 고 충실도 DNA 중 합 효소와 뇌관 UL45-f 1와 UL46-R1 (표 1) 전체 삽입 감지 UL45 및 UL46 intergenic 지역에 걸친 DNA 순서를 증폭.
- 다음 50 µ L 반응 혼합 준비: 5 µ L 10의 x Pfx 반응 혼합, 10 µ M 상류의 1.5 µ L 및 다운스트림 뇌관 믹스, 10mm dNTP 믹스의 1 µ L, 50 mM MgSO4의 1 µ L, DNA 템플렛의 1 µ L 그리고 Pfx DNA 중 합 효소의 0.5 µ L 50 µ L nuclease 무료 물 추가. 증폭 프로그램은: 95 ° C 2 분; 95 ° C 15에 대 한 s, 55 ° C 30에 대 한 s, 그리고 35 사이클에 대 일 분 68 ° C. 젤 전기 이동 법에 대 한 1 %agarose 젤에 PCR 제품의 모든 로드.
- 명령 다음에 DNA 젤 정화 키트의 PCR 제품을 정화. PCR 제품 (30 ng / µ L)의 10 µ L VP2 유전자의 노크에서 확인 하는 시퀀싱 회사에 보내기.
7입니다. 재조합 바이러스의 안정성
- 각 T25 플라스 크 바이러스 확장 하기 전에 하루에 씨 2.6 x 10⁶ CEF 셀.
- 5.2; 단계에서 적어도 3 개의 긍정적인 클론을 녹여 각 T25 플라스 크에 세포/바이러스에의 한 병을 추가 합니다. 50 %cytopathic 효과 관찰 될 때까지 5% CO2 38.5 ° C에서 품 어.
- 세포 배양; 2 mL에 수확 다음 세대를 위해 CEF 셀 미리 새로운 T25 플라스 크를 50 µ L를 감염. 적어도 15 세대를 위한 재조합 형 바이러스를 뿌리고 계속. 각 세대 바이러스 VP2 시퀀스의 존재에 대 한 PCR 및 재조합 형 바이러스의 안정성을 평가 하기 위해 VP2 식 간접 면역 형광 분석 결과 (IFA)의 분석.
결과
그림 1어떻게 기증자 플라스 미드는 재조합 HVT (그림 1B 를 생성 하는 생성된 (그림 1A) 및 절차를 포함 재조합 형 HVT 백신의 생성에 사용 되는 전략을 설명 하는 ). 야생-타입 플 라크에 의해 포위 하는 5 ~ 30 GFP-긍정적인 패 유전자 웰 스 노크에 형광 현미경 3 d posttransfection 및-감염에서에서 관찰할 수 있습니다. 3' 접합 (그림 2A, 하단 패널) 예상 되는 크기의 PCR 제품을 보여주는 PCR 분석은 단일 셀 정렬 (그림 2A) 후 얻은 정제 바이러스. Cre recombinase 여 GFP 기자 절단 후 이상는 플 라크의 50% 그들의 GFP 식을 잃었다. GFP 절단 (그림 2B) 단일 셀 정렬 후 정화 패 추가 5' 접합 오른쪽 크기의 PCR 제품 (그림 2B, 하단 패널)를 보여주는 PCR에 의해 확인 되었다. 그림 3 에서 PCR 제품 다른 색된 요소와 두 접점의 시퀀싱 결과 보여준다. 그림 4에서 단백질 표정 VP2 특정 단일 클론 항 체와 안티 HVT 닭 혈 청 IFA에 의해 확인 되었다. 예상 했던 대로, 부모의 HVT 감염 세포 수만 얼룩이 질 안티 HVT 혈 청에 의해 (녹색), 재조합 형 HVT 감염 세포 명확 하 게 보여 잠시 VP2 유전자의 표현 (빨간색).
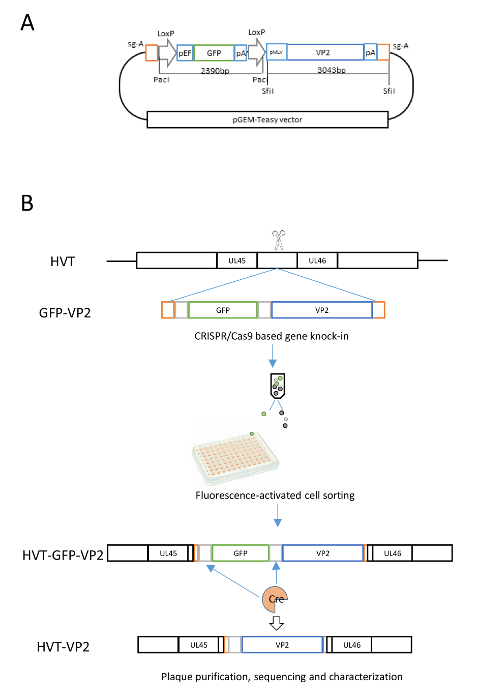
그림 1: 재조합 백신 HVT 벡터화의 세대에 대 한 전략. (A)이이 패널 표시 도식 기증자에 대 한 복제 전략의 플라스 미드 건설. 핵심 요소 삽입, 기자 GFP 카세트 LoxP 시퀀스, GFP의 절단에 대 한 형벌 및 VP2 식 카세트 방출에 대 한 두 개의 Cas9 대상 사이트 (sgA)를 포함 합니다. (B)이이 패널 2 단계 유전자 노크에서 전략의 개요를 보여 줍니다. GFP와 VP2 식 카세트 삽입 조각 Cas9/sgA 분열에 의해 발표 하 고 UL45/46 loci 통해 NHEJ-CRISPR/Cas9에서 HVT 게놈에 삽입. GFP-긍정적인 재조합 바이러스는 다음 정렬 하 고 정렬 (FACS) 단일 셀 형광 활성화 된 세포에 의해 정화. 그 후, GFP 취재 원 유전자 Cre recombinase에 의해 excised 그리고 재조합 형 바이러스 정화 및 특징. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.

그림 2 : 재조합 형 HVT 확인. (A)이이 패널 GFP-긍정적인 패 (HVT-GFP-VP2) 형광 현미경 (위 패널) 및 PCR 확인 HVT GFP VP2의 뇌관 VP2 F & UL46-R1 3' 접합에 대 한 시각을 보여줍니다. (B)이이 패널에서는 시각 HVT-GFP-VP2, GFP 절단 후 패 (HVT VP2) 사용 하 여 Cre recombinase 및 HVT VP2의 PCR 확인 UL45-F1 및 VP2 R1 뇌관으로 접속점 5'에 대 한. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
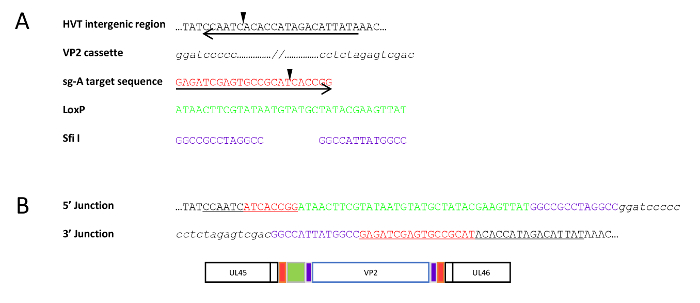
그림 3 : 재조합 형 HVT 바이러스의 분석 순서. (A)이이 패널에 있는 다른 색상에 핵심 요소의 시퀀스는 밑줄이 gRNA 대상 시퀀스와 UL45/46 사이 HVT intergenic 지역 및 Cas9 분열 사이트를 보여주는 화살 끝 VP2 식 카세트에 시퀀스 기울임꼴 소문자, Cas9 분열 사이트, LoxP 사이트 시퀀스 녹색, 파란색에서 두 SfiI 사이트 시퀀스를 보여주는 화살표와 빨간색에서 sg-A 대상 시퀀스 (B)이이 패널 시퀀스에 해당 색상으로 5'과 3' 접합 및 핵심 요소와 HVT VP2의 도식 프레 젠 테이 션의 시퀀싱 결과 보여줍니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
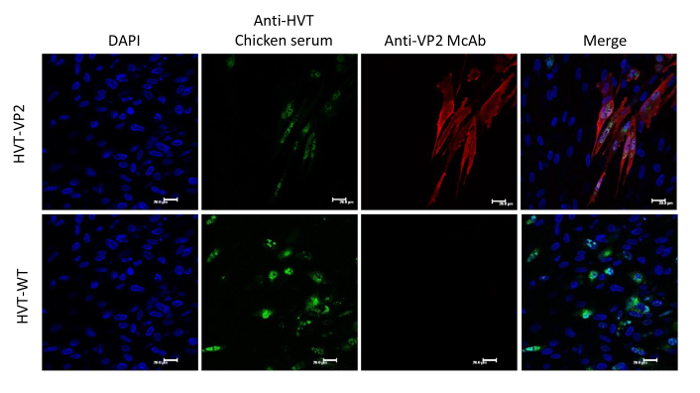
그림 4 : 재조합 형 HVT VP2의. 이 패널을 보여 줍니다 VP2 감염된 CEFs에서의 성공적인 식의 확인 간접 면역 형광 분석 결과 (IFA)에 의해 안티 VP2 단일 클론 항 체 HH7 (빨간색). HVT 감염 HVT 감염 닭 혈 청 (녹색)으로 IFA에 의해 확인 된다. 눈금 막대 = 20 µ m. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
토론
CRISPR/Cas9 시스템 유전자 편집 하는 유용한 도구가 되고있다. 재조합 동종 재결합13 등 BAC mutagenesis 기술25, HVT 벡터 개발에 대 한 전통적인 기술 일반적으로 벡터 클로닝 및 선택으로 대규모 심사의 여러 라운드를 포함 몇 개월 걸릴 수 있습니다. Cre Lox 시스템 및 단일 세포 분류는 NHEJ-CRISPR/Cas9-기반 전략을 사용 하 여 여기 설명 된 프로토콜은 재조합 백신 세대에 더 편리 하 고 효율적 하 고 빠른 접근 이다. 이 파이프라인을 사용 하 여, 재조합 바이러스만 1-2 주24에서 얻어질 수 있다 그리고 플 라크 정화 단계17정렬 형광 활성화 된 세포를 사용 하 여 단일 라운드 분리도 줄일 수 있다. 1 개월 이내 취득 순화 된 재조합 형 HVT 바이러스 gRNA 디자인 및 기증자 건설에서 전체 프로세스를 구현할 수 있습니다. 성공적인 재조합 형 HVT 세대를 위한 중요 한 단계 포함 외국 유전자 삽입, Cas9에 대 한 기회를 최대화 하기 위해 높은 transfection 효율에 대 한 효율적인 분열을 보장 하기 위해 바이러스 성 게놈을 대상에 대 한 높은 효율 gRNA 선택 / gRNAs 고 편집, 동일한 셀에 기증자 및 gRNA 플라스 미드의 transfection 그리고 Cas9와 gRNA는 바이러스 세포에 도달 하기 전에 합리적인 수준에서 표현 될 수 있도록 바이러스 감염 12 시간 간격에 맞게 바이러스.
HVT 재조합 세대에 대 한 한계는 GFP-긍정적인 식별의 복잡성 접합 PCR에 의해 클론 이다. GFP VP2 카세트 어느 방향에 삽입 될 수 있습니다. PCR는 여기에 설명 된 접합 감각 방향에서 삽입의 식별은 이다. 센스 방향으로 삽입 하는 경우 PCR 설명 뇌관 쌍을 사용 하 여 작동 하지 않을, 그리고 내부 뇌관이이 목적을 위해 교환할 수 있는. 또 다른 잠재적인 문제는 기증자 구성만 사용할 수 있습니다 GFP 제거 후 나머지 LoxP 시퀀스의 존재 때문에 동일한 바이러스에 하나의 유전자 삽입에 대 한 Cre 치료 이다. 변종 LoxP 시퀀스 새로운 기증자 구문은 여러 삽입 목적을 위해 대신 사용 될 수 있습니다.
NHEJ와 HDR (homology 감독 수리) Cas926,27에 의해 만들어진 더블-좌초 틈 (DSBs) 복구 두 경로입니다. NHEJ는 HDR 덜 효율적 이며, S g 2 단계6,,2930중에 발생 하는 반면 세포 주기28일에 걸쳐 발생으로 더 효율적입니다. 우리는 대상된 위치에 외래 유전자를 도입 하 여기 더 효율적인 NHEJ 복구 통로 악용. 비록는 NHEJ 복구 소개 indels 쪼개진된 기증자 시퀀스와 게놈 DNA는 indels 사이 homology 독립적인 mechanistically 유연한 프로세스31,32 noncompatible 또는 손상 된 DNA 끝에 가입 하 여 sgA, 분열 사이트에서에 발생 하 고 외국 유전자 발현 카세트에 영향을 받지 않습니다. 이 방법의 또 다른 장점은 NHEJ는 homology 팔 공사의 제한에서 무료로 매우 간단 단계 복제 만들기입니다. 이 외래 유전자 삽입을 위한 NHEJ의 응용 프로그램에 대 한 좋은 잠재력을 표시합니다. 둘 다 유니버설 gRNA 대상 사이트의 소개는 외국 유전자 카세트의 기증자 템플릿을 특정 gRNA 선택에 대 한 필요 없이 바로 생성 수 더 빠른 프로세스를 끝납니다. SgA 대상 사이트, LoxP 사이트 및 PacI SfiI 사이트를 포함 하는 기증자 플라스 미드의 백본 또한 간에 공유할 수 있습니다 광범위 하 게 다른 기자 유전자, 외래 유전자 발현 카세트, 그리고이 새로운 접근의 이점을 주는 다른 바이러스 벡터 사용자 지정입니다.
VP2 HVT 은닉 삽입이 원고; 프로토콜을 설명 하기 위해 사용 되었다 그러나, 동일한 접근 multivalent 재조합 형 HVT 벡터화 백신의 개발에 대 한 원하는 해당 시퀀스를 대상으로 하는 gRNA를 사용 하 여 HVT 게놈의 다른 genomic 위치의 더 바이러스 성 유전자를 삽입 하려면 사용할 수 있습니다. SB-1, CVI988, 전염 성 laryngotracheitis 바이러스, 오리 장 염 바이러스, 및 또한 다른 조류 DNA 바이러스, 수 두 바이러스, adenoviruses, 등 등 다른 조류 herpesviruses 등 다른 MDV 백신 긴장 또한 설계 될 수 있다 동일을 사용 하 여 multivalent 재조합 백신 개발을 위한 접근입니다. 여기 설명 된 CRISPR/Cas9 시스템 플랫폼을 사용 하 여 새로운 multivalent 벡터화 된 백신의 개발은 여러 가금류 질병 으로부터 보호 하기 위해가 금 산업에 대 한 매우 유리할 것 이다.
공개 사항
저자는 공개 없다.
감사의 글
저자 피파 Hawes confocal 영상 도움 감사 합니다. 이 프로젝트는 생명 공학에 의해 지원 되었다 고 생물 과학 연구 위원회 (BBSRC) 부여 게시판/E/I/00007034 및 BB/L014262/1.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| M199 배지, Earle's Salts | Life 기술 | 11150059 | 세포 배양 배지 |
| Fetal Bovine Serum | Sigma | F0926 | 세포 배양 배지 |
| 페니실린 및 스트렙토마이신 15140148 | 항생제 | ||
| Fungizone | Sigma | 1397-89-3 | 항진균제 |
| Tryptose Phosphate Broth | Sigma | T8782 | 세포 배양 배지 |
| HVT Fc126 균주 | 조류 질병 및 종양학 실험실 | 야생형 HVT 바이러스 | |
| pX459-v2 | Addgene | Plasmid #62988 | Cas9 및 gRNA 발현 벡터 |
| pGEM-T Easy Vector Systems | promega | A1360 | 공여체 벡터 클로닝 |
| 서브클로닝 효율 DH5α 유능한 세포 | Invitrogen | 18265-017 | transformation |
| PacI | NEB | rR0547S | donor vector cloning |
| SfiI | NEB | R0123S | donor vector cloning |
| T4 DNA Ligase | NEB | M0202S | cloning |
| QIAprep Spin Miniprep Kit QIAGEN | 27106 | plasmid extraction | |
| TransIT-X2 | Mirus | MIR 6004 | 형질주입 |
| 세포 배양 6-웰 플레이트 | 써모피셔 140675 | 세포 배양 | |
| GoTaq Master Mixes | Promega | M7123 | 접합 PCR 증폭 |
| 플래티넘 PFX DNA 중합효소 | Thermofisher | 11708021 | 전체 삽입 |
| 염소 안티 닭 IgY (H+L) 항체, Alexa Fluor 488 | Invitrogen | A-11039 | 의 PCR 증폭면역형광 염색, |
| 염소, 항생쥐, IgG 항체, Alexa Fluor 568 | Invitrogen | A-11004 | 면역형광 염색, |
| 컨포칼 레이저 스캐닝 현미경 | Leica Microsystems, Leica | TCS SP5, LASAF | 형광 |
| FACS 세포 분류기 | BD biosciences, | BD, FACSAria | 단일 세포 분류 |
| 파라포름알데히드(PBS 중 4%) | Santa cruz 생명공학 | SC-281692 | 세포 고정 |
| Triton X-100 | GeneTex | GTX30960 | 투과화 |
참고문헌
- Witter, R. L., Solomon, J. J. Experimental infection of turkeys and chickens with a herpesvirus of turkeys (HVT). Avian Diseases. 16 (1), 34-44 (1972).
- Baigent, S. J., et al. Herpesvirus of turkey reconstituted from bacterial artificial chromosome clones induces protection against Marek's disease. Journal of General Virology. 87, Pt 4 769-776 (2006).
- Messerle, M., Crnkovic, I., Hammerschmidt, W., Ziegler, H., Koszinowski, U. H. Cloning and mutagenesis of a herpesvirus genome as an infectious bacterial artificial chromosome. Proceedings of the National Academy of Sciences of the United States of America. 94 (26), 14759-14763 (1997).
- Zhao, Y., Nair, V. Mutagenesis of the repeat regions of herpesviruses cloned as bacterial artificial chromosomes. Methods in Molecular Biology. 634, 53-74 (2010).
- Ma, Y., et al. Generating rats with conditional alleles using CRISPR/Cas9. Cell Research. 24 (1), 122-125 (2014).
- Mali, P., et al. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Niu, Y., et al. Generation of gene-modified cynomolgus monkey via. Cas9/RNA-mediated gene targeting in one-cell embryos. Cell. 156 (4), 836-843 (2014).
- Ran, F. A., et al. Double nicking by RNA-guided CRISPR Cas9 for enhanced genome editing specificity. Cell. 154 (6), 1380-1389 (2013).
- Yin, H., et al. Genome editing with Cas9 in adult mice corrects a disease mutation and phenotype. Nature Biotechnology. 32 (6), 551-553 (2014).
- Zhang, Y., et al. CRISPR/Cas9 mediated chicken Stra8 gene knockout and inhibition of male germ cell differentiation. PLoS One. 12 (2), 0172207(2017).
- Bi, Y., et al. High-efficiency targeted editing of large viral genomes by RNA-guided nucleases. PLoS Pathogens. 10 (5), 1004090(2014).
- Bierle, C. J., Anderholm, K. M., Wang, J. B., McVoy, M. A., Schleiss, M. R. Targeted mutagenesis of guinea pig cytomegalovirus using CRISPR/Cas9-mediated gene editing. Journal of Virology. 90 (15), 6989-6998 (2016).
- Suenaga, T., Kohyama, M., Hirayasu, K., Arase, H. Engineering large viral DNA genomes using the CRISPR-Cas9 system. Microbiology and Immunology. 58 (9), 513-522 (2014).
- Xu, A., et al. A simple and rapid approach to manipulate pseudorabies virus genome by CRISPR/Cas9 system. Biotechnology Letters. 37 (6), 1265-1272 (2015).
- Yuan, M., et al. Efficiently editing the vaccinia virus genome by using the CRISPR-Cas9 system. Journal of Virology. 89 (9), 5176-5179 (2015).
- Yuen, K. S., et al. CRISPR/Cas9-mediated genome editing of Epstein-Barr virus in human cells. Journal of General Virology. 96, Pt 3 626-636 (2015).
- Liang, X., et al. A CRISPR/Cas9 and Cre/Lox system-based express vaccine development strategy against re-emerging Pseudorabies virus. Scientific Reports. 6, 19176(2016).
- Zou, Z., et al. Construction of a highly efficient CRISPR/Cas9-mediated duck enteritis virus-based vaccine against H5N1 avian influenza virus and duck Tembusu virus infection. Scientific Reports. 7 (1), 1478(2017).
- Peng, Z., et al. Pseudorabies virus can escape from CRISPR-Cas9-mediated inhibition. Virus Research. 223, 197-205 (2016).
- Tang, Y. D., et al. Live attenuated pseudorabies virus developed using the CRISPR/Cas9 system. Virus Research. 225, 33-39 (2016).
- Yao, Y., Bassett, A., Nair, V. Targeted editing of avian herpesvirus vaccine vector using CRISPR/Cas9 nucleases. Journal of Vaccine and Technologies. 1, (2016).
- Tang, N., et al. A simple and rapid approach to develop recombinant avian herpesvirus vectored vaccines using CRISPR/Cas9 system. Vaccine. 36 (5), 716-722 (2018).
- He, X., et al. Knock-in of large reporter genes in human cells via. CRISPR/Cas9-induced homology-dependent and independent DNA repair. Nucleic Acids Research. 44 (9), 85(2016).
- Ran, F. A., et al. Genome engineering using the CRISPR-Cas9 system. Nature Protocols. 8 (11), 2281-2308 (2013).
- Petherbridge, L., et al. Cloning of Gallid herpesvirus 3 (Marek's disease virus serotype-2) genome as infectious bacterial artificial chromosomes for analysis of viral gene functions. Journal of Virological Methods. 158 (1-2), 11-17 (2009).
- Hsu, P. D., Lander, E. S., Zhang, F. Development and applications of CRISPR-Cas9 for genome engineering. Cell. 157 (6), 1262-1278 (2014).
- Sander, J. D., Joung, J. K. CRISPR-Cas systems for editing, regulating and targeting genomes. Nature Biotechnology. 32 (4), 347-355 (2014).
- Panier, S., Boulton, S. J. Double-strand break repair: 53BP1 comes into focus. Nature Reviews Molecular Cell Biology. 15 (1), 7-18 (2014).
- Wang, H., et al. One-step generation of mice carrying mutations in multiple genes by CRISPR/Cas-mediated genome engineering. Cell. 153 (4), 910-918 (2013).
- Yang, H., et al. One-step generation of mice carrying reporter and conditional alleles by CRISPR/Cas-mediated genome engineering. Cell. 154 (6), 1370-1379 (2013).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Lieber, M. R. The mechanism of double-strand DNA break repair by the nonhomologous DNA end-joining pathway. Annual Review of Biochemistry. 79, 181-211 (2010).
재인쇄 및 허가
