이 프로토콜 사용을 설명 합니다 단일 체인의 MHC 종류 I 인간 CD8 + T 세포 활성화의 분자 상호 작용을 조사 하기 위해 단지: 조작된 항 단일 체인을 표현 하는 세포의 생성, 인간 CD8 + T 세포 복제의 문화 그리고 T 세포 활성화 실험입니다.
이 논문에서
요약
초록
비 물질로 각자 펩 티 드 MHC (pMHC) 단지 T 세포 활성화 및 이펙터 기능을 유도 하지 않습니다 하지만 공동 agonism 불리는 과정을 통해 주 작동 근 pMHC T 세포 응답을 향상 시킬 수 있습니다. 이 프로토콜 설명 실험적인 시스템 조사 공동 agonism 인간 MHC 표현 하 여 인간 CD8 + T 세포 활성화 동안에 종류 I 분자도 미리 결정 된 펩 티 드를 제시 xenogeneic 셀 라인에서 polypeptides (단일 체인 MHC) 단일. 우리는 주 작동 근 단일 체인 p-MHC 복합물의 낮은 수준 및 비 물질로 단일 체인 p-MHC 복합물의 높은 수준의 표현 되었다 조건 하에서 단일 체인 MHCs 표현. 이 실험 시스템의 사용을 사용 하 여 비 물질로 pMHC의 유무에서 CD8 + T 세포 응답 주 작동 근 pMHC 비교할 수 있었습니다. 프로토콜 설명 셀 라인 transfection 단일 체인 MHC 구문으로 안정적인 셀의 세대, B 형 간염 바이러스-특정 인간 CD8 + T 세포의 문화 고 T 세포 활성화 실험 동시에 측정 cytokine 생산 및 degranulation입니다. 제시 방법은 연구 CD8 + T 세포 활성화의 다양 한 측면에 대 한 인간 T 세포 시스템에서 알려진된 펩 티 드 MHC로 사용할 수 있습니다.
서론
MHC 종류 I (MHC-나) 분자 제시 (8-10 아미노산) 짧은 펩 티 드 단백질 합성 각 셀에서에서 파생 된. MHC-난 생 단백질에서 파생 된 각자 펩 티 드를 제시 하는 건강 한 세포에 분자. MHC에 비 자체 바이러스 파생 된 펩 티 드의 프레 젠 테이 션을 리드 하는 바이러스 성 감염-난, 하지만 심지어 감염 된 세포 현재 비 각자 펩 티 드 다량 각자 펩 티 드-MHC (pMHC)의 존재. MHC-T 세포 수용 체 (TCR) 및 T 세포에 CD8 공동 수용 체에 의해 인식 됩니다. CD8 바인딩은 펩 티 드-독립 펩 티 드 pMHC TCR 바인딩 선호도 높은 제시 펩 티 드의 순서에 따라 달라 집니다. 비 각자 주 작동 근 pMHC 복잡 한 TCR 바인딩을 T 세포 활성화 및 이펙터 기능 이끌어 낸다. 비 물질로 자기 pMHC 단지 T 세포 활성화 및 이펙터 기능을 유도 하지 않습니다 하지만 공동 agonism1,2,3을 불리는 과정을 통해 주 작동 근 pMHC T 세포 응답을 향상 시킬 수 있습니다. Co agonism 마우스와 인간 CD8 + T 세포7,,89,10, 에서 뿐만 아니라 마우스 CD4 + T 세포4,,56 에서 관찰 되었다 11 , 12 , 13. 생리 적 조건 하에서 T 세포 항 원 제시 세포 (Apc) 공동 최적의 T에 기여 하는 그의 공동-agonism 제안 비 물질로 pMHC 단지의 높은 수준을 제시에 주 작동 근 pMHC의 한정 된 수량을 인식 해야 vivo에서 세포 응답입니다. 총 세포 표면 MHC 클래스 I 레벨14 바이러스 성 감염 및 종양15downregulated 많습니다. 이 면역 회피 전략 감소 주 작동 근 pMHC 프레 젠 테이 션, 하지만 또한 공동 주 작동 근 pMHC의 양을 줄여 나 T 세포 활성화 향상에 사용할 수 있는. 또한, 높은 세포는 MHC의 표면 식 수준 나 분자 HLA-C와 상관 관계를 향상 된 에이즈 제어16, 총 MHC 클래스에 대 한 중요 한 역할을 제안 나 T 세포 활성화에 식 표시 되었습니다을 클래스. Co agonism의 생리 적인 중요성에도 불구 하 고 그것의 분자 메커니즘은 아직도 불완전 하 게 이해 된다. 이것은 주로 실험적으로 제시 공동 주 작동 근 pMHC의 금액을 제어 하는 주 작동 근 pMHC 상수를 유지 하면서 기술적도 전에입니다.
우리는 실험 개발 시스템 조사 공동 agonism 인간 MHC 표현 하 여 인간 CD8 + T 세포 활성화 동안에 종류 I 분자 하나의 polypeptide로 미리 결정 된 펩타이드를 제시 (단일 체인 MHC-난 그림 1A) xenogeneic 셀에 9,10선. 단일 체인 (sc) 주 작동 근 pMHC 햄스터 파생 된 T-렉스 조 셀 라인 항생물질 진압; 표현에 항생물질을 유도할 수 있는 발기인의 통제 표현 했다 항생물질과 항생물질 (그림 1BC)의 추가 후 높은 사우스 캐롤라이나 주 작동 근 pMHC 식의 부재에 사우스 캐롤라이나 주 작동 근 pMHC의 매우 낮은 "새" 식 수 있습니다. 사우스 캐롤라이나 주 작동 근 pMHC 표현 T-렉스 조 셀은 다음 물질로, 공동 주 작동 근 sc pMHC와 supertransfected-constitutively 활성 발기인 (그림 1BC)의 통제 나. 이 실험 시스템의 사용을 사용 하 여 비 물질로 pMHC의 높은 레벨의 유무에서 CD8 + T 세포 응답 주 작동 근 pMHC 비교할 수 있었습니다. 펩타이드와 MHC부터 비판적으로,-나 무거운 체인 covalently는 scMHC에 연결-난 포맷,이 제시 하는 미리 결정 된 펩 티 드 MHC 분자에 돌연변이의 소개. ScMHC의 사용-난 기술 따라서 특별히 주 작동 근 또는 공동 주 작동 근 pMHC의 TCR 또는 CD8-바인딩 속성 조절 있었습니다.
CD8 + T 세포 활성화에 공동 agonism 순화 MHC를 사용 하 여 관찰 되었습니다-난 단지 주 작동 근 공동 주 작동 근 펩 티 드 heterodimers11,의 형태로 제시17 또는 제시에 양자 도트12,13. APC에 주 작동 근 pMHC 인식의 맥락에서 CD8 + T 세포 활성화에 공동 agonism에 초기 작품 APCs TAP2 불충분 한 세포 선을 사용. 탭 바인딩과 그물에 세포질에서 펩 티 드 전송에 필요한 이며 탭 부족 심각 하 게 사용할 수 있는 MHC 클래스-바인딩 펩 티 드의 풀을 감소. 펩 티 드의 부재, MHC의 초기 복잡 한 클래스 나 무거운 사슬과 β2-microglobulin는 안정, 매우 낮은 MHC의 결과로-난 세포 표면 표현. 처음에, T 세포 항 원 탭 충분-결핍 마우스 RMA와 RMA S 셀 라인, 로드와 자극된의 비교 각각, APCs, 공개 하지 않았다 공동 agonism에 대 한 어떤 증거 마우스 T 세포 활성화18동안. 그러나,이 실험 시스템의 사용 비 물질로 자기 pMHC 독립적으로 제시 하는 주 작동 근 pMHC의 양 정밀 하 게 제어를 허용 하지 않았다. 또한, 이러한 두 셀 라인 조절 T 세포 활성화, T 셀 co-stimulatory 또는 억제 수용 체에 ligands과 같은 다른 분자 또는 접착 분자의 표현에도 달라질 수 있습니다.
그 후, 우리는 비 물질로 pMHC의 유무에 주 작동 근 pMHC의 고정 된 금액의 프레 젠 테이 션을 허용 하도록 외 인 펩 티 드와 TAP2 불충분 한 RMA S 셀을 로드 하기 위한 프로토콜을 개발 했다. 이것은 다음을 통해 달성 되었다: 안정 빈 MHC를 낮은 온도 (28 ° C, 대신 평소 37 ° C)에서 TAP2 불충분 한 RMA-S의 외피 세포 종류 I 무거운 체인/β2 microglobulin 단지19; 세 주 작동 근 펩타이드;와 28 ° C에 외피 외 인 성 물질로 비 펩타이드;의 유무에서 28 ° C에 외피 그리고 빈 MHC의 세포 표면 표현 줄이기 위해 37 ° C에서 보육 클래스 난 단지8,9. 이 실험 설정의 사용 비 물질로 pMHC의 존재 향상 마우스 thymocytes, 순진한 주변 CD8 + T 세포 및 Ctl8의 활성화 된 밝혔다. Mechanistically, 비 물질로 pMHC의 존재 주 작동 근 pMHC의 부재에도 T 세포: APC 면역 냅 CD8 채용을 일으킬 수 있다 고 비 물질로 pMHC CD8 coreceptor7,8TCR 상호 작용을 향상 시킬 수 있습니다. 그러나,이 실험 시스템 허용 하지 않는 것 MHC 클래스 TCR 또는 CD8 바인딩 변경 수정으로 활성화 증진 중재에 주 작동 근 및 공동 주 작동 근 pMHC TCR와 CD8 coreceptor 바인딩의 상대적 기여를 테스트 제시 펩 티 드에 모든 MHC 분자를 영향을 줍니다. 우리는 따라서 내가이 문제를 극복 하기 위해 체인 기술을 단일 MHC 클래스를 사용 합니다.
내가 포맷 단일 체인 (sc) MHC 클래스 치료 전략에 대 한 항 원 pMHC 프레 젠 테이 션을 향상 TCR 및 NK 세포 수용 체 활성화의 메커니즘에 대 한 근본적인 질문에 대답 하 고20,21 작동 하기 전에 사용 되었습니다. . scMHC-펩타이드, β2-microglobulin와 MHC의 구성-난 무거운 체인 두 유연한 떠들고/글리신이 풍부한 링커 (그림 1A)에 의해 가입, 여러 가지 다른 링커 시퀀스 되었습니다 개발 하 고 테스트22. scMHC-복잡 한 꼭지에 독립적으로 접을 수 있으며 기존의 pMHC 복잡 한 어셈블리20에 필요한 단백질을 보호자. scMHC-올바르게,22 얼룩이 나 란 특정 항 체를 사용 하 여 결정 하 고 엑스레이 결정학23sc 구조를 해결 하 여 접어 표시 되었습니다. 기본 scMHC-내가 디자인 낮은 선호도 펩 티 드24,25의 바인딩 개선 하도록 수정 되었습니다.
인간의 scMHC 사용 하 여가이 프로토콜에 설명 합니다-활성화 복제 인간의 CTL 중 공동 agonism 조사를 합니까. 프로토콜은 인간의 CTL 클론 B 형 간염 바이러스 (HBV)의 피토 프에 대 한 특정 최적화 되었습니다. HBV는 전세계, 심각한 의료 부담 350 백만 사람들 HBV와 만성 HBV 감염 감염 된 간세포 암 (HCC)의 개발 이어질 수 있다. HCC 셀이 HBV 감염에서 결과 일반적으로 HBV 파생 epitopes를 제시할 수 있습니다 그리고 특정 인간 T 세포에 의해 인식 될 수 있다. HBV와 HCC 클리어런스 인간 T 세포 응답26, 의존 하지만 HCC 환자가 자주 T 세포 소모 및 감소 된 T 세포 응답27에서 고통. HBV의 T 세포로 HBV 관련 TCR의 소개는 만성 HBV 감염28을 제거 하는 잠재적인 immunotherapy 전략으로 시도 되었습니다. 그러나, 그것은 알 경우이 방법은 표면 MHC의 낮은 수준으로 인해 임상 설정에서 효과가 있을 것입니다-내가 인간의 hepatocytes29에. 따라서, coagonism의 메커니즘을 이해 제공할 수 있습니다 대체 관점, HBV의 immunotherapy에 대 한 가능성이 공동 agonism 중재 하는 T 세포 응답을 유도 하기 위해 내 생 적인 pMHC의 프레 젠 테이 션을 강화 하 여. 프로토콜에 인간의 공동 agonism 연구에 대 한 모든 필요한 단계를 커버: 주 작동 근 및 공동 주 작동 근 sc pMHC, 안정적인 T-렉스 조 셀 라인의 세대, HBV-특정 인간 CTL CD8 + T 세포 선 및 CTL 활성화 문화 T-렉스 조 세포의 transfection cytokine 생산 및 degranulation T-렉스 조 셀에 대 한 응답에서을 측정 하는 실험. 비록 우리가 sc MHC를 사용 하 여 초점 종류 I 조사 공동 agonism HBV T 세포 활성화 동안에 기술, 그 제시 방법을 쉽게 적용할 수 T 세포 활성화의 다른 측면에 대 한 연구에 대 한 알려진된 pMHC 인간 T 세포 시스템에 주목 해야 합니다-난 특이성입니다.
이 프로토콜 사용 하 여 인간 CD8 + CTL 선 관련 된 HBV 파생 된 펩 티 드 E183-91 (FLLTRILTI: "E183")30 HLA A2에 제시. sc HLA 분자 인간 β2-microglobulin에서 신호 시퀀스의 구성, 관심, 글리신/떠들고 링커, 인간의 β2 microglobulin, 글리신/떠들고 링커 및 무거운 체인은 상업적으로 수 A2의 HLA A2 바인딩 펩 티 드 합성 (그림 1A ). 플라스 미드 주 작동 근 E183 펩타이드, 또는 coagonist HIV 개 그 (SLYNTVATL)31 펩 티 드 scA2 구문 인코딩 요청 시 저자에서 사용할 수 있습니다. 사용 하 여 사이트 감독 mutagenesis 펩 티 드 순서를 변경할 수 있습니다. 항생물질을 유도할 수 있는 벡터 pcDNA5/에 주 작동 근 단일 체인 HLA A2 E183 펩 티 드 (sc E183 HLA A2)와 표현에 사용 되었다. 항생물질 진압는 pcDNA5의 존재/플라스 미드에 관심; 단백질의 매우 낮은, "새" 식이 허용 높은 식 항생물질 (그림 1BC)의 추가 의해 유도 될 수 있다. 항생물질을 유도할 수 있는 식 시스템의 사용에는 세포 표면 주 작동 근 pMHC 식의 양 제어할 수 있습니다. 제정 식 플라스 미드 pcDNA3.1 coagonist scA2 개 그 펩 티 드 (sc 개 그 HLA A2)와 표현에 사용 되었다. 항생물질 통제 식 (T-렉스) 조 셀 선 (햄스터 셀, 아무 내 인 성 인간 MHC) 길 항 제와 공동 주 작동 근 sc HLA A2 구조를 표현 하기 위해 사용 되었다. 이 실험적인 시스템 pMHC 프레 젠 테이 션 (그림 1C) 정밀 하 게 제어할 수 있습니다: 없음 pMHC 프레 젠 테이 션 (untransfected T-렉스), 공동 주 작동 근 pMHC 프레 젠 테이 션 (제정 sc 개 그 HLA A2 식)의 높은 금액을, 낮은 양의 주 작동 근 pMHC 프레 젠 테이 션 (sc E183 HLA A2 부재에 항생물질의), 주 작동 근 pMHC 프레 젠 테이 션 (항생물질의 사우스 캐롤라이나 E183 HLA A2)의 높은 금액을, 낮은 양의 주 작동 근 pMHC 프레 젠 테이 션과 공동 주 작동 근 pMHC의 높은 식 (sc E183 HLA A2에는 항생물질, 및 제정 sc 개 그 HLA A2 식의 부재). 이 실험 시스템의 사용 주 작동 근과 coagonist pMHC의 세포 표면 금액의 정밀 하 게 제어할 수 있습니다.
프로토콜
참고: 모든 단계 포함 라이브, 고정 되지 않은 셀의 사용 biosafety 후드에서 수행 해야 하 고 어떤 유해 폐기물 보건 및 안전 법규에 따라 폐기 해야 합니다.
1. 조 세포 Transfection 및 안정 조 셀 라인의 생성
-
조 셀 transfection
참고: polyethylenimine (페이)를 사용 하 여 조 세포 transfection이이 섹션에 설명 합니다. 그러나, 다른 방법은 사용할 수 있습니다, 조 셀은 비교적 transfect 상용 지질 transfection 시 약을 사용 하 여 쉽게.- 문화 조 세포 완전 한 F12 (cF12, 항생물질 진압의 식을 유지 하기와 5 %FBS, 100 U/mL 페니실린, 100 μ g/mL 스 10 µ g/mL blasticidin 보충 F12). 통로 셀 매 3-4 일 1:10 비율.
- Transfection, 전에 어느 날 조 세포 현 탁 액을 준비 합니다. 세척 조 PBS T75 플라스 크, T25 플라스 크에 대 한 5 mL PBS에 대 한 pbs (10 mL)을 사용 하 여 플라스 크에 세포. 0.05% 추가 Trypsin/0.02% EDTA는 플라스 크에 PBS (T75 플라스 크, T25 플라스 크 1 l 2 l)에서 실 온 (RT)에서 5-10 분 동안 품 어 고. 가벼운 현미경을 사용 하 여, 확인 셀을 분리 했으면 trypsinization 플라스 크 (8 mL T75 플라스 크, T25 플라스 크에 대 한 4 mL에 대 한)에 cF12를 추가 하 여 중지 합니다.
- 15 mL 튜브, 및 4 ° C 또는 실시간 제거 상쾌한에 5 분 동안 300-400 x g 에서 원심 분리기 조 세포 현 탁 액을 전송 하 고 다시 cF12 T75 플라스 크, T25 플라스 크 5 mL (10 mL)에 일시 중단는 hemocytometer를 사용 하 여 계산.
- 60000-100000 조 셀/mL로 세포 농도 조정 합니다. 6 잘 플레이트에 잘 당 조 세포 현 탁 액 (300000-500, 000 조 셀)의 5 mL를 추가 합니다. 37 ° C, 5% CO2에서 밤새 품 어.
- Transfection는 하루에 1.5 mL 튜브에 혈 청 자유로운 F12 매체 또는 낮은 혈 청 미디어의 400 μ를 추가 합니다. 미디어의 400 μ에 플라스 미드의 3 μ g를 추가 합니다. Pipetting으로 혼합. PEI의 6 μ g 추가 (1 mg/mL 페이 솔루션의 6 μ) 미디어/DNA 혼합, 및 10에 대 한 즉시와 동 s.
- 10-15 분 RT에서 미디어/DNA/페이 믹스를 품 어. 이 부 화 하는 동안 조 셀 미디어를 6 잘 플레이트에서 신선한 cF12 미디어의 5 mL 바꿉니다.
- 조 셀 미디어/DNA/페이 솔루션을 추가 합니다. 우물을 통해 고르게 dropwise 솔루션을 추가 합니다. 37 ° C, 5% CO2에서 밤새 품 어.
-
안정적인 조 셀 라인의 세대
- Transfection, 후에 1 일 우물에서 미디어를 제거 하 고 각 우물에 적절 한 선택 항생제를 포함 하는 cF12의 5 mL를 추가 합니다. PcDNA5TO 기반 플라스 미드 및 pcDNA3 기반 플라스 미드에 대 한 1 mg/mL geneticin 0.3 mg/mL hygromycin를 사용 합니다.
- 24 h에 90 %confluency 보다는 더 셀 범위 게시 transfection, 세포 trypsinize.
- 웰 스 잘 당 1 mL의 PBS로 세척, PBS에 0.05% trypsin/0.02% EDTA의 1 mL를 추가 하 고 가벼운 현미경 실시간 사용에 5-10 분 동안 품 어, 셀을 분리 했으면 잘 당 cF12의 3-4 mL를 추가 하 여 trypsinization 중지 확인.
- 15 mL 튜브, 및 4 ° C 또는 실시간 제거는 상쾌한에 5 분 동안 300-400 x g 에서 원심 분리기 조 세포 현 탁 액을 전송 하 고 다시 cF12의 10 mL에 일시 중단. 6 잘 플레이트에 잘 당 세포 현 탁 액 5 mL를 추가 합니다. Transfected 세포의 수율을 최대화 하기 위해 두 개의 우물을 사용 합니다.
- 37 ° C, 5% CO2에서 6 잘 플레이트를 품 어. 가벼운 현미경을 사용 하 여 저항 하는 식민지의 성장과 세포 죽음을 모니터링 합니다. 미디어를 제거 하 고 4-5 일 후, 또는 중요 한 세포 죽음은 관찰 하는 경우 적절 한 항생제를 포함 하는 신선한 미디어 바꿉니다.
- 일단 설명 대로 70% 합류 이상 저항 셀 범위 셀 trypsinize 1.2.2 단계에서 고 확장 T25 플라스 크를 전송. 항생제 선택 1-2 주 걸립니다.
- 항생제 내성 조 셀 T25 플라스 크에 합류 70-80%에 도달, 항 체 세포 표면 표현 관심의 구조를 확인 하려면 얼룩 수행 합니다. 1.2.2 단계에서 설명한 대로 항 체 얼룩이 지기 전에 1 일 셀 trypsinize 및 200, 000 셀/ml, 셀 농도 조정 하 고 12 잘 플레이트 세포 현 탁 액 1 mL를 추가. 항생물질을 유도할 수 있는 구조 테스트, 항생물질의 50-60 ng/mL를 추가 합니다. 37 ° C, 5% CO2에서 밤새 품 어.
- 셀 스 크레이 퍼를 사용 하 여 우물의 바닥에서 조 세포를 분리. 이 메서드는 분해 분열 때문에 피토 프 손상의 위험을 줄일 수 trypsinization, 하는 것이 좋습니다.
- FACS 튜브를 조 셀을 포함 하는 미디어의 1 mL를 전송 합니다. 300-400 x g, 5 분 다시 중단 100 μ에 안티-HLA 항 체 FWB에 희석의 4 ° C에 아래로 회전 합니다. 얼음에 4 ° C에서 30 분을 품 어. 이 얼룩 총 A2 셀 표면 식 레벨, 감지 안티-A2 항 체와 TCR 같은 항 체 특정 a 2에 대 한 주 작동 근 pMHC 감지 하 E183 펩 티 드 복잡 한에서 수행-난 세포 표면 식 수준.
- 후 긍정적인 세포, MHC 식, FACS 종류를 확인 하 고 transgene 손실을 줄이기 위해 항생제를 가진 매체에서 정렬된 셀을 유지. 조 셀 주 작동 근 pMHC 표현, 단일 셀 정렬 것이 좋습니다, 비교 주 작동 근와 공동 주 작동 근 pMHC와 supertransfection 없이 pMHC 식 되도록. 2-3 주는 조 세포 성장 단일 셀 정렬 다음 필요 합니다.
2. HBV-특정 CTL 문화
-
HBV-특정 인간 CTL 다시 자극을 위해 모이 통으로 PBMCs의 준비
참고: A2 E183 특정 CTL 클론에 대 한 해 동된 PBMCs, 보다는 오히려 갓 격리 된 PBMCs, 다시 자극 최상의 결과 제공.
주의: 혈액 기부에 대 한 자원 봉사자를 모집 하기 전에 필요한 모든 윤리적인 승인의 얻을. 이 작품을 위해 PBMC 누스 IRB 승인 프로토콜 아래 건강 한 지원자에서 수집 되었다. 동의 모든 기증자 로부터 얻은 것입니다. 혈액 품 어진 질병의 전송의 위험을 줄이기 위해 인간의 피를 작업할 때 모든 필요한 예방 조치를 따르십시오.- 시작 하기 전에, 19-20 ° C에서 원심 분리기 온도 설정 하 고 미리 실시간 밀도 그라데이션 (예: Ficoll) 따뜻한
- 50 mL 튜브에 방 온도 밀도 기울기의 15 mL를 추가 합니다. 19-20 ° c.에 5 분에 대 한 400 x g 에서 원심 분리기 이것은 아무 밀도 그라데이션 튜브 측에 확인 하입니다.
- Venipuncture 통해 건강 자원 봉사 기증자 로부터 20 mL의 혈액을 수집 합니다. 50 mL 튜브에 혈액의 20 ml PBS의 15 mL를 추가 합니다. 아래로 pipetting으로 혼합.
- 천천히, 혈액 단계 2.1.2에서에서 밀도 기울기의 15 mL 위에 PBS에 희석의 35 mL를 추가 합니다. 혈액 및 밀도 그라데이션 혼합 하지 않습니다 다는 것을 확인 하십시오. 19 ° C, 브레이크 20 분 1200 x g 에서 튜브를 원심.
- 플라즈마 층의 약 70%를 제거 합니다. 조심 스럽게 발음 PBMC (분명 밀도 그라디언트 레이어 위에 흐린 레이어) 포함 된 레이어는 파스퇴르를 사용 하 여 플라스틱 및 새로운 50 mL 튜브에.
- 50 mL 전체 볼륨을 얻으려면 PBMCs를 PBS를 추가 합니다. 10 분은 신중 하 게 상쾌한 진공 흡 인기 및 멸 균 유리 파스퇴르 피 펫을 사용 하 여 제거 또는 decanting, 4 ° C, 300-400 x g 에서 튜브를 원심.
- 다시 50 ml PBS의 셀을 일시 중단 합니다. 10 분은 신중 하 게 상쾌한 진공 흡 인기 및 멸 균 유리 파스퇴르 피 펫을 사용 하 여 제거 또는 decanting, 4 ° C, 300 x g 에서 튜브를 원심.
- 다시 셀 완전 한 인간 T 세포 미디어 (혈 청 자유로운 미디어 2% 인간의 혈 청으로 보충)의 2 개 mL를 일시 중단 합니다. Hemocytometer를 사용 하 여 셀을 계산 합니다. 이 프로토콜을 사용 하는 혈액의 1 mL 당 106 PBMCs x 1-2 평균 제공 합니다.
-
CTL 다시 자극 피더 세포로 PBMCs를 사용 하 여
- PBMCs 후속 자극에 대 한 응답에서 확산을 억제 하기 위해 30 Gy에서 비추는
주의: 확인 하십시오 적절 한 교육 및 실험실 준수 안전 요구를 irradiator를 사용 하는 경우. - 다시 2 x 10⁶ 셀/mL에서 완전 한 인간 T 세포 미디어에 비친된 PBMCs를 일시 중단 합니다. Cytokines와 lectin Phaseolus vulgaris (PHA)에서 PBMC 서 스 펜 션으로 2 배 농도에서 CTL 다시 자극에 대 한 추가 합니다. 마지막 cytokine와 PHA 농도: 20 U/mL 재조합 인간 일리노이-2, 10 ng/mL 재조합 일리노이-7, 10 ng/mL 재조합 인간 IL-15와 1.5 mg/mL PHA.
- 37 ° C 물 욕조에 냉동된 CTL 유리병 녹여 완전 한 인간 T 세포 미디어의 10 mL 15 mL 튜브에 해 동된 세포를 전송 합니다. 5 분은 신중 하 게 상쾌한 진공 흡 인기 및 멸 균 유리 파스퇴르 피 펫을 사용 하 여 제거 또는 decanting, 4 ° C에서 300-400 x g 에 아래로 회전 합니다.
- 다시 완전 한 인간 T 세포 미디어의 2 mL에 Ctl을 일시 중단 합니다. Hemocytometer를 사용 하 여 셀을 계산 합니다. 106 셀/mL의 세포 농도를 완전 한 인간 T 세포 미디어를 추가 합니다.
- 24 잘 접시에 추가 조사 PBMCs의 0.5 mL (106 셀) 2 x cytokines PHA (2.2.2 단계), 및 잘 당 Ctl (0.5 x 10⁶ 셀)의 0.5 mL. 사용 하는 우물의 수는 Ctl 또는 사용할 수 있는 PBMCs의 총 수에 따라 달라 집니다. 37 ° C, 5% CO2에서 품 어.
- 후 4-5 일 때 CTL 폭발 되 고 미디어 된다 황색, 6 잘 플레이트에 문화를 전송 하 고 완전 한 인간 T 세포 미디어 20 U/mL 일리노이-2와 10 ng/mL 일리노이-7, 10 ng/mL IL-15 (PHA)의 4 mL와 함께 초기 1 mL 볼륨을 보충.
- 2-3 일 후 T75 플라스 크에 문화를 전송 하 고 완전 한 인간 T 세포 cytokines (단계 2.2.2, 아니 PHA) 미디어의 40 mL를 추가 하 고 수직 위치에서 문화.
- 유지 Ctl 1-2 x 10⁶ 셀/mL의 농도에서 cytokines (단계 2.2.2, 아니 PHA)으로 보충 하는 신선한 미디어를 추가 하 여 볼륨에서 기존 문화 볼륨의 동등한 매일에. Ctl 7-14 일 후에 다시 자극 실험을 위해 사용할 수 있습니다.
- PBMCs 후속 자극에 대 한 응답에서 확산을 억제 하기 위해 30 Gy에서 비추는
3. T 세포 활성화 실험
참고: 전형적인 실험 필요로 여러 가지 다른 T-RExCHO 라인: untransfected T-렉스 조 세포 (부정적인 제어), T-렉스 조 세포 표현 비 물질로 pMHC만 (scA2-개 그, 부정적인 컨트롤), T-렉스 조 세포 표현 낮은 양의 주 작동 근 pMHC-나 ( scA2-항생물질, 실험 샘플 없이 환경을), T-렉스 조 세포 주 작동 근 pMHC의 낮은 금액와 높은 양의 비 물질로 공동 주 작동 근 pMHC (scA2 환경 및 scA2-개 그, 항생물질, 실험 샘플 없이), 및 T-렉스 조 세포 주 작동 근 pMHC의 높은 금액을 표현-나 항생물질, 긍정적인 통제와 scA2-환경을), 그림 1 cD와같이.
-
조 셀 항 원 제시 세포로 도금
- T75 플라스 크, 1.1.1 단계에서 설명한 대로에 문화 조 셀. 70-90% 합류에 셀을 사용 하 여 최상의 결과 위해. T 세포 활성화 하기 전에 1 일 실험, 1.1.2 섹션에 설명 된 대로 셀을 trypsinize. Trypsinization, 후 세포 현 탁 액 15 mL 튜브, 4 ° C 또는 RT 5 분에 대 한 400 x g 에서 원심 분리기로 전송, 상쾌한 pipetting 또는 decanting 제거.
- 다시 cF12의 5 mL에 셀 펠 릿을 일시 중단 합니다. 조 셀은 hemocytometer를 사용 하 여 계산 합니다.
- CF12를 사용 하 여 2 x 10⁵/mL을 셀 농도 조정 합니다. 50-60 ng/mL는 주 작동 근에 항생물질의만 주 작동 근 pMHC의 높은 금액을 유도 하기 위해 샘플 추가-난 긍정적인 컨트롤 (그림 1C)로. 조 pipetting 또는 도금 하기 전에 vortexing 혼합 그래서 확인 셀 15 mL 튜브에 정착 됩니다.
- T 세포 활성화의 분석 결과 대 한 U-하단 96 잘 접시에 잘 당 조 세포 현 탁 액의 100 μ를 추가 하 고 조 셀 라인 당 triplicates를 사용 하 여. 조 셀 안티-MHC 얼룩, 12 잘 플레이트 세포 현 탁 액 1 mL를 추가 고 셀 라인 당 triplicates를 사용 합니다. 37 ° C, 5% CO2에서 밤새 품 어.
-
T 세포 활성화 분석 결과
참고: 이 T 세포 활성화 분석 결과 T 세포 degranulation (CD107a 얼룩, 세포 독성 T 세포의 측정) 및 cytokine 생산의 동시 정량화를 허용 한다.- 실험 전날 Ctl 셀 400 x g 5 분 동안 4 ° C에서 원심 hemocytometer를 사용 하 여 계산 하 고 다시 완전 한 인간 T 세포 미디어 cytokines 또는 PHA 없이 106 셀/mL에서 세포를 일시 중단. 37 ° C, 5% CO2에서 품 어. 우리가이 단계 없이 항 원의 낮은 금액에 대 한 응답에서 최대 활성화를 관찰해 서이 나머지 단계의 목적은 CTL 감도 줄이는 것입니다.
- 400 x g 5 분, 4 ° c에서 원심 T 세포 실험 당일 decanting 또는 pipetting는 상쾌한을 제거 하 고 다시 2 mL (cytokines 또는 PHA) 없이 완전 한 혈 청 자유로운 미디어에 셀을 일시 중단 합니다. 라이브 T 세포는 hemocytometer를 사용 하 여 계산 하 고 106 라이브 셀/ml (cytokines 또는 PHA) 없이 완전 한 인간 T 세포 미디어를 사용 하 여 T 세포 농도 조정 합니다.
- 1: 100 희석 (2.5 μ g/mL의 최종 농도)에 반대로 인간 CD107a 항 체를 추가, brefeldin A 1:1000 희석 (1 μ g/mL의 최종 농도)에 추가 합니다.
- 유리 피 펫 파스퇴르 발음 하거나 접시를 터치 하 여 96 잘 접시의 조 세포에서 미디어를 제거 합니다. 잘, 당 200 μ T 세포 현 탁 액 (0.2 x 10⁶ 세포) 포함 하 안티-CD107a 및 brefeldin A. 공동 문화 T 세포의 3-4 h 조 셀을 추가 합니다.
- 공동 문화의 끝에, T 세포 표면 항 원 얼룩 수행 합니다. 96 잘 접시 300-400 x g, 4 ° C에서 5 분 아래로 회전 하 고 발음 또는 터치는 상쾌한을 제거 합니다. PBS (흐름 워시 버퍼, FWB)에 0.5 %BSA 세포 표면 항 원 얼룩 잘 당 50 μ에서 CD3의 2.5 μ와 CD8 항 체의 2.5 μ를 추가 합니다. 어둠 속에서 30 분 동안 얼음에 샘플을 품 어.
- 잘 당 FWB의 150 μ를 추가 하 여 샘플을 씻으십시오. 96 잘 접시 300-400 x g, 4 ° C에서 5 분 아래로 회전 하 고 발음 또는 터치는 상쾌한을 제거 합니다.
- 고정/permeabilization 키트를 사용 하 여 고정/permeabilization 단계를 수행 합니다. 잘 당 (고정/permeabilization kit)에서 고정/permeabilization 솔루션의 100 µ L를 추가, pipetting으로. 20 분 동안 얼음에 품 어.
- 300-400 x g 와 5 분, 4 ° C 원심 고 발음 또는 터치는 상쾌한을 제거 합니다. 파 마/워시 버퍼 x 1의 200 μ 추가 (10 파 마/워시 재고 버퍼 사용 하기 키트 전에 배 희석) 음 당. 이 단계를 반복 합니다.
- 다시 0.3 μ g/mL에서 안티-IFN-γ 항 체를 포함 하는 1 x 파 마/워시 버퍼의 50 μ에 셀 펠 릿을 일시 중단 합니다. 어둠 속에서 30 분 동안 얼음에 품 어.
- 1 x 파 마/워시 버퍼의 150 μ를 추가 합니다. 5 분 동안 4 ° C에 대 한 300-400 x g 에서 centrifuge 고 발음 또는 터치는 상쾌한을 제거 합니다. 파 마/워시 버퍼, x 1의 200 μ 300-400 x g 5 분, 4 ° C에서 원심 발음 또는 터치는 상쾌한 제거 추가 합니다.
- 다시 FWB의 200 μ에 각 샘플을 일시 중단 합니다. 흐름 cytometric 분석을 진행 합니다.
-
조 셀 MHC 종류 I 얼룩
참고: scMHC를 확인 하는 것이 중요-난 세포 표면 수준 각 실험에 사용 하는 셀에 셀 라인 transgene 식을 잃을 수 있습니다. T 세포 자극에 대 한 96 잘 접시를 준비할 때 3.1.4 섹션에 설명 된 대로 12 잘 플레이트 조 셀, 얼룩이 지기에 대 한 설정.- 셀 스 크레이 퍼를 사용 하 여 우물의 바닥에서 조 세포를 분리. 이 메서드는 분해 분열 때문에 피토 프 손상의 위험을 줄일 수 trypsinization, 하는 것이 좋습니다.
- FACS 튜브를 조 셀을 포함 하는 미디어의 1 mL를 전송 합니다. 300-400 x g 5 분 다시 중단 100 μ에 안티-HLA 항 체 FWB에 희석의 4 ° C에서에 아래로 회전 합니다. 얼음에 4 ° C에서 30 분 동안 품 어.
- 이 얼룩 총 A2 셀 표면 식 레벨, 감지 안티-A2 항 체와 TCR 같은 항 체 특정 a 2에 대 한 복잡 한 E183 펩 티 드32 주 작동 근 pMHC 감지 하 수행-난 세포 표면 식 수준.
- 각 조 샘플 하 FWB의 1 mL를 추가, 300-400 x g, 4 ° C, 5 분에서 아래로 회전 하 고 다시 FWB의 0.3 ml에서 샘플을 중단. 교류 cytometry 분석 진행.
결과
MHC 종류 I 여기에서 사용 하는 기술 sc MHC 클래스의 세포 표면 식의 정확 하 게 제어할 수 있습니다 알려진, covalently 연결 된 펩 티 드, T 세포 활성화를 유도 하는 것으로 나. 우리는 설계 xenogeneic APC 시스템 (그림 1A, B, C) 공동 주 작동 근 pMHC (그림 1D, E)의 유무에서 주 작동 근 pMHC의 낮은 레벨의 프레 젠 테이 션을 허용 하는 생성. 비판적, E183 HLA A2 공동 주 작동 근 sc 개 그-HLA-A2 (그림 1E)의 공동 식으로 변경 되지 주 작동 근 sc의 프레 젠 테이 션을 표시 하는 TCR-같은 항 체 특정 HLA A2 제시 E183 펩 티 드에 대 한 사용 했습니다. 그러나, 그것은 TCR 같은 항 체를 특정 E183 HLA A2를 HLA A2 제시 개 그 펩 티 드 (그림 1E)에 몇 가지 바인딩 표시 주목 해야 합니다. TCR 및 coreceptor와의 상호 작용 인간 T 세포에서 서로 다른 특이성에 대 한 분자 요구 사항 조사를 다른 펩 티 드 또는 MHC 분자를 사용 하 여 비슷한 설계 항 원 제시 세포 시스템을 구성할 수 있습니다.
우리는 이러한 조작된 APCs는 E183 HLA A2 특정 인간 CD8 + T 세포의 클론을 자극 사용. 3 부정적인 컨트롤 사용 되었다: T 세포만, untransfected T-렉스 조 셀 및 공동 주 작동 근 sc 개 그-HLA-A2 잠재적인 T에 대 한 테스트의 높은 금액을 표현 하는 T-렉스 조 셀 T-렉스 조 셀 (untransfected T-렉스 조에 어떤 분자에 의해 활성화 세포 T의 세포에 비해 세포), 그리고 사우스 캐롤라이나-개 그-HLA A2 (T-렉스 조 셀 sc-개 그-HLA-a 2의 untransfected T-렉스 조 셀에 비해 높은 수준의 표현)에 의해 T 세포 활성화에 대 한. Untransfected T-렉스 조 셀 이나 T-렉스 조 셀 sc 개 그-HLA A2 표현 않았다 유도 하지 활성화 E183 HLA A2 특정 CD8 + CTL 클론의 IFN-γ 생산과 식 degranulation 마커 CD107a의 T 세포의 측정으로 측정 하 여 결정 세포 독성 (그림 2AB) 주 작동 근 sc E183-HLA-A2, 긍정적인 통제, 유도 매우 IFN-γ 생산 효율과 degranulation (그림 2AB), 사용 활성화 sc HLA A2 구문 특정 TCR에 의해 인식 될 수 있는 시연의 높은 레벨의 표현 T는 휴대 effector 기능입니다. Sc E183 HLA A2의 저급의 식 유도 IFN-γ 생산과 degranulation, 저수준 그리고이 공동 주 작동 근 sc 개 그-HLA-A2 (그림 2AB)의 존재에 의해 강화 되었다. 그것은 매우 높은 비율 CD107a + T 세포의 항 원 pMHC (그림 2B), T 세포의 유도 위한 주 작동 근 pMHC 양을 상대적으로 낮은 요구의 이전 보고서와 일치의 낮은 수준에 대 한 응답에도 관찰 했다 주목 해야 합니다. 세포 독성33. 단일 셀 기준 degranulation 나타내는 CD107a MFI 더 나은 동적 범위를 (그림 2B)를 제공 합니다. 사용 되는 T 세포 활성화 분석 결과 수의 두 가지 주요 이펙터 기능 동시 정량화: cytokine 생산 및 세포 독성, 그리고 좋은 동적 범위와 매우 민감한 판독을 제공 합니다.
우리는 공동 주 작동 근 pMHC TCR 바인딩을 공동 주 작동 근 pMHC 종속 활성화 향상에 필요한 인지 테스트를 단일 체인 기술을 사용 합니다. 우리이 돌연변이 HLA A234TCR 바인딩 폐지 하 보고 되었다 V152E 돌연변이 만들려고 글루탐산을 HLA A2 펩 티 드 바인딩 그루브 (그림 3B)의 가장자리에 위치 152 valine 돌연변이. V152E 돌연변이 주 작동 근 sc E183 HLA A2에이 돌연변이 도입 하 고 T-렉스 조 세포에 돌연변이 주 작동 근 sc 구조를 표현 하 여 사용 E183 HLA A2 CTL 클론 TCR 바인딩 폐지 수 하는 경우 다음 테스트. 야생 타입, 하지만 하지 V152E, 사우스 캐롤라이나 E183 HLA A2 E183 HLA A2 특정 CTL 클론 사용 (그림 3A)의 활성화를 유도 한다. 내가 별도로 사용, 돌연변이의 효과 TCR와 복잡 한, pMHC 간의 정확한 분자 상호 작용에 따라 달라 집니다이 사이 다를 것 이다 각 개별 TCR/T 세포 복제에 대 한 테스트 필요가 MHC 클래스에 어떤 TCR 바인딩 돌연변이 주의 되어야 한다 다른 TCRs입니다. 예를 들어 8 개의 돌연변이 테스트, 중 이전 TCR 바인딩 돌연변이 또는 돌연변이 HLA A2에 펩 티 드 바인딩 abrogating 없이 TCR 바인딩을 방해 예측 보고. 이들의 V152E E183 전용 T 세포 클론의 활성화 폐지 유일한 돌연변이10을 사용 하는. 우리는 다음 공동 주 작동 근 sc 개 그-HLA-a 2에 V152E 돌연변이 소개 하 고 공동 WT 또는 V152E 사우스 캐롤라이나 개 그 HLA A2 주 작동 근 sc E183 HLA A2의 낮은 수준으로 표현. WT 및 V152E sc 개 그 HLA A2 향상 IFN-γ 생산과 degranulation (그림 3CD), 제안 하는 TCR 바인딩을 공동 주 작동 근 pMHC 공동 주 작동 근 pMHC 종속 CD8 + T 세포 활성화 향상을 위한 필요 하지 않습니다. 단일 체인 MHC 종류 I 기술, 여기에 제시 된 대로, TCR/coreceptor 나 알려진된 펩타이드와 MHC 클래스에 바인딩 또는 T 세포 항 원 인식 및 활성화에 대 한 분자 요구 사항 조사를 수정 하는 데 사용 수 있습니다.
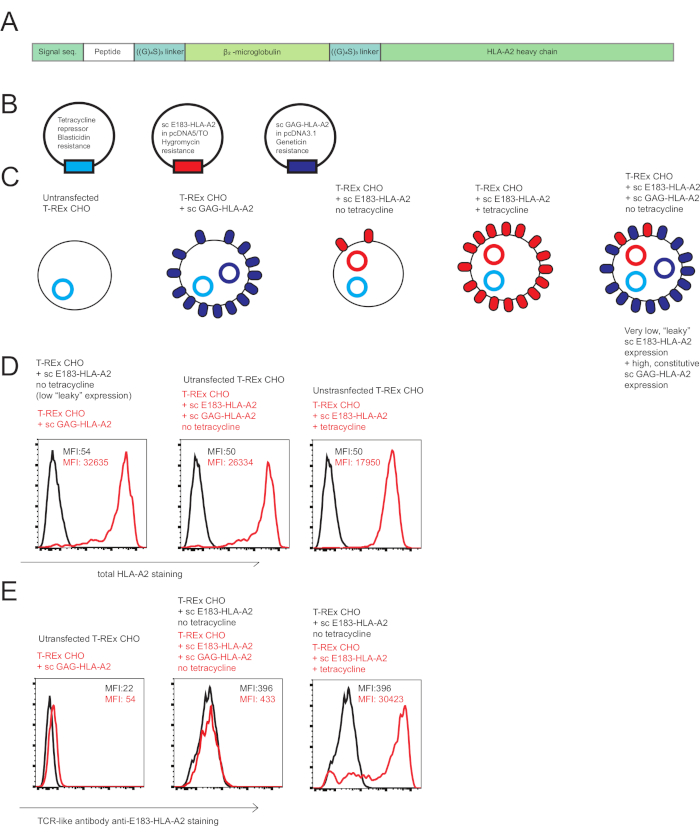
그림 1: 단일 체인 인간 CD8 + T 세포 활성화에 공동 주 작동 근을 조사 하는 데 사용 HLA A2 구성. (A) 회로도 퓨즈 인간 β2 microglobulin, 선택, 유연한 글리신-떠들고 링커 (GGGGSGGGGS GGGGS), 인간 β2 microglobulin, 유연의 펩 티 드에서에서 covalently 신호 시퀀스의 구성 된 scHLA A2 구문 글리신-떠들고 링커 그리고 HLA A2 무거운 체인. 조작된 항 공동-agonism 인간 CD8 + T 세포 활성화에 조사 하는 세포를 생성 하는 데 사용 하는 플라스 미드의 (B) 회로도: 항생물질 진압, 주 작동 근 E183 HLA A2 항생물질을 유도할 수 있는 발기인의 통제 사우스 캐롤라이나 비 물질로 공동 주 작동 근 개 그 HLA A2 constitutively 활성 발기인의 통제. (C) 회로도 설계 항 원 세포 co agonism 조사 하는 데 사용: T-렉스 조 셀 (아니 인간의 MHC 식), T-렉스 조 세포 constitutively의 상부 sc 개 그 HLA A2 (비 물질로 공동 주 작동 근 pMHC), 표현 T-렉스 조 세포 항생물질 (주 작동 근 펩 티 드의 낮은 수준)의 부재에 sc E183 HLA A2의 저급 "새"를 표현, sc E183 HLA A2 항생물질 (주 작동 근 펩 티 드의 높은 수준), 존재의 상부를 표현 하는 T-렉스 조 셀 T-렉스 조 세포 sc E183 HLA A2의 낮은 수준 및 높은 수준의 sc 개 그 HLA A2 (주 작동 근 펩 티 드의 낮은 수준)와 공동 주 작동 근 펩 티 드의 높은 수준의 표현. (D) 조작된 항 원 제시 안티 HLA A2 항 체를 사용 하 여 셀 라인의 표면 얼룩 세포. 표시 된 숫자는 MFI 라이브 셀 게이트에서 MHC 얼룩에 대 한 값을 나타냅니다. 5 독립 실험 (E) 조작된 원 TCR 같은 항 체 특정 HLA A2 제시 E183 펩 티 드에 대 한를 사용 하 여 셀 라인을 제시의 세포 표면 얼룩의 데이터입니다. 표시 된 숫자는 MFI 라이브 셀 게이트에서 MHC 얼룩에 대 한 값을 나타냅니다. 5 독립적인 실험의 데이터입니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
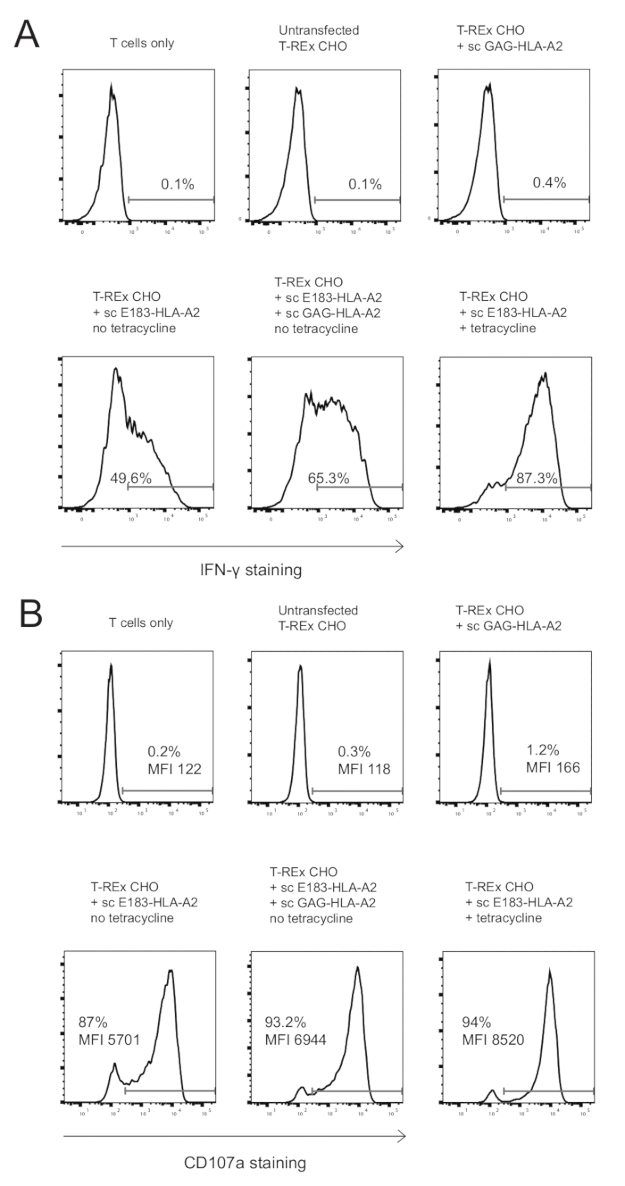
그림 2: 공동 주 작동 근 pMHC의 존재 향상 된 cytokine 생산 및 degranulation E183 HLA A2 특정 인간 CD8 + CTL 클론의. (A) 세포내 IFN-γ 항 원 제시 세포를 설계 3 h 자극으로 제시 된 후 HLA A2 특정 인간 CD8 + CTL 클론의 얼룩. 표시 된 숫자는 IFN-γ 얼룩에 대 한 백분율 긍정적인을 나타냅니다. 3 독립적인 실험의 데이터를 각각 기술 triplicates 수행. (B) 세포 표면 CD107a 후는 표시와 함께 3 h 자극 설계 세포 항 원 HLA A2 특정 인간 CD8 + CTL 클론의 얼룩. 표시 된 숫자는 CD107a 얼룩에 대 한 긍정적인 비율 또는 CD8 + T 세포 인구에 대 한 CD107a MFI를 나타냅니다. 3 독립적인 실험의 데이터를 각각 기술 triplicates 수행. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
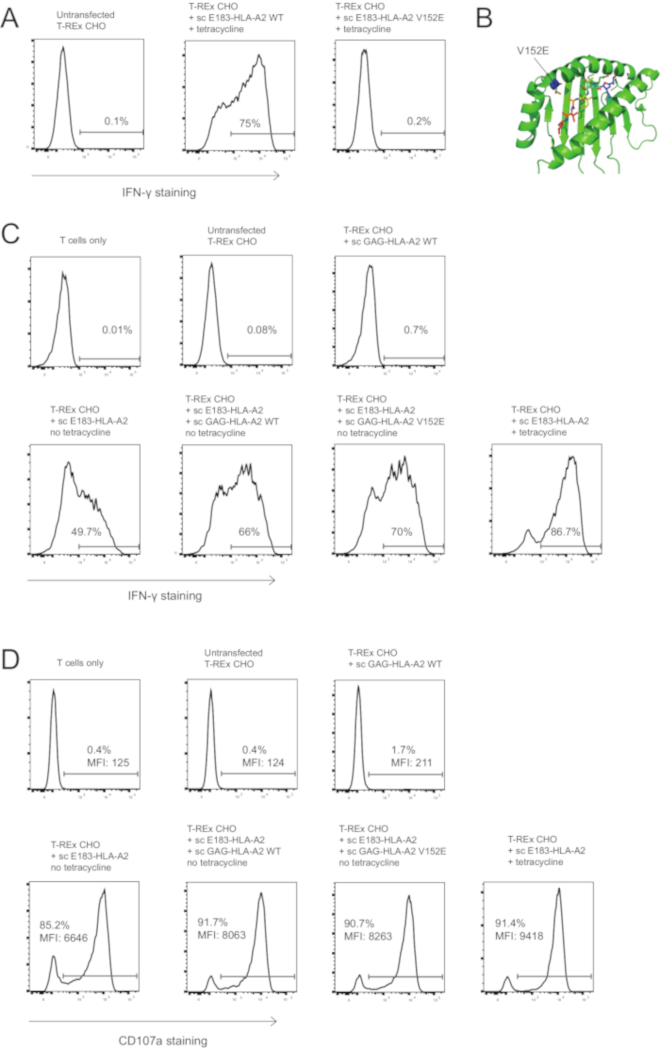
그림 3: 공동 주 작동 근-중재 T 세포 활성화 향상 공동 주 작동 근 pMHC 복잡 한 TCR 바인딩이 필요 하지 않습니다. (A) sc E183 HLA A2 V152E 돌연변이 말살 E183 HLA A2 특정 인간 CD8 + CTL 클론의 활성화. WT 또는 V152E 돌연변이 sc E183 HLA A2의 높은 수준 (항생물질 유도)를 표현 하는 T-렉스 조 셀 E183 HLA A2 특정 인간 CD8 + CTL 클론 3 h를 자극을 사용 했다. T 세포 활성화는 세포내 IFN-γ 얼룩을 사용 하 여 정량 했다. 표시 된 숫자는 IFN-γ 얼룩에 대 한 백분율 긍정적인을 나타냅니다. 3 독립적인 실험의 데이터를 각각 기술 triplicates 수행. (B) HLA A2의 펩 티 드 바인딩 groove 내 V152E 돌연변이의 위치입니다. (C) 복잡 한 sc 개 그 HLA A2 공동 주 작동 근 pMHC에 V152E 돌연변이 공동 agonist 종속 활성화 향상을 폐지 하지 않습니다. 세포내 IFN-γ 얼룩 HLA A2 특정 인간 CD8 + CTL 클론의 4 h 자극으로 제시 된 후 세포 항 원 설계. 표시 된 숫자는 IFN-γ 얼룩에 대 한 백분율 긍정적인을 나타냅니다. 3 독립적인 실험의 데이터를 각각 기술 triplicates 수행. (D) 복잡 한 sc 개 그 HLA A2 공동 주 작동 근 pMHC에 V152E 돌연변이 공동 agonist 종속 활성화 향상을 폐지 하지 않습니다. 표면 CD107a 얼룩 HLA A2 특정 인간 CD8 + CTL 클론의 후는 표시와 함께 3 h 자극 설계 항 원 제시 세포 세포. 표시 된 숫자는 CD107a 얼룩에 대 한 긍정적인 비율 또는 CD8 + T 세포 인구에 대 한 CD107a MFI를 나타냅니다. 3 독립적인 실험의 데이터를 각각 기술 triplicates 수행. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
토론
제시 프로토콜 인간 CD8 + T 세포 활성화 동안에 분자 상호 작용의 수사를 위한 강력한 도구를 제공합니다. 인간 T 세포 활성화 동안 공동 agonism의 조사에 대 한 중요 한 단계가입니다 제어할 수 있도록 동일한 주 작동 근 pMHC 프레 젠 테이 션 또는 공동 주 작동 근 pMHC 식 없이 APCs에 주 작동 근 pMHC 셀 표면 식. 실험 시스템에서 이것은 주 작동 근 pMHC, supertransfection는 공동 주 작동 근 pMHC 구조 및 주 작동 근 pMHC 정량화 TCR 같은 항 체10, 를 사용 하 여 다음의 낮은 금액을 표현 하는 단일 셀 복제를 사용 하 여 달성 32. 주 작동 근 sc pMHC 식은 시간이 지남에 변경할 수 있습니다, 그것은 TCR 같은 항 체를 사용 하 여 각 실험에 사용 하는 APCs에 주 작동 근 pMHC 표면 식 계량에 중요 한. 아무 특정 TCR 같은 항 체는 사용할 수 있는 경우 주 작동 근 scMHC-나 형광 성 단백질 융해로 표현 될 수 있습니다 및 셀 표면 표현 수 있습니다 다음 측정할 수 총 내부 반사 형광 현미경 검사 법 등 민감한 현미경 메서드를 사용 하 여 35 , 36. 또한, 셀 표면 공동 주 작동 근 pMHC의 메 틸 화-종속 및-독립적인 CMV 발기인37의 침묵으로 인해 시간이 지남에 따라 감소 표현과 함께 항 체 얼룩이 지 고 교류 cytometry 분석를 사용 하 여 모니터링 한다 반복 FACS-정렬 필요할 때입니다. 우리 sc pMHC 식의 상대적으로 한정 된 손실을 최대 5 주 조 셀 교양 있다. 알려진된 sc MHC 식에 포함 된 셀의 신뢰할 수 있는 주식 수 있도록 선택/정렬 후 곧 조 세포를 동결 하는 것이 좋습니다.
장비의 가용성에 따라 또는 특정 연구 목적에 제시 프로토콜의 여러 단계를 수정할 수 있습니다. 예를 들어 PBMC 확산 잠재적인 수 저해 (3.2.1 단계) 사용 하는 감마 (또는 x) 필요 하지 않은 다른 방법 irradiator, 미토마이신 C38치료 등. 3.3.1 단계에서 근 근이 셀 금속 chelators39 를 포함 하는 비 효소 세포 분리 버퍼를 사용할 수 있습니다. 또한, 시스템을 제시 하는 항 원 인간의 CTL 클론 표현 다른 TCRs 조 셀 익스프레스 햄스터 MHC 종류 I 분자, 그리고 비록이 여기 공부 CTL 라인에 대 한 관련 더 적합 하 게 수정할 수 있습니다 (그림 2A , 그림 3A, 우리가 관찰 untransfected 조 세포 T 세포 응답 없음), 다른 인간의 TCRs 일부 xenoreactivity을 보여줄 지도 모른다 가능성이 있다. 그 경우, 햄스터 MHC 종류 I 식 햄스터 β2-microglubulin를 노크 하 여 감소 될 수 있다 또는 CRISPR/Cas9;를 사용 하 여 탭 또는 인간의 APC 선 β2-microglubulin CRISPR/Cas9-중재 또는 탭을 밖으로 노크 후 사용할 수 있습니다.
여기에 제시 된 실험 시스템에 미리 정의 된 펩 티 드를 제시 하는 MHC 분자와 TCR와 CD8 상호 작용의 정확한 제어할 수 있습니다. 예를 들어 우리는 이전 표시 폐지 CD8 바인딩40 coagonist pMHC 돌연변이 murine 및 인간 CD8 + T 세포9,10, coagonist-중재 활성화 증진 제거 반면 TCR abrogating 공동 주 작동 근 pMHC와의 상호 작용이 했다 coagonist 중재 활성화 향상10에 영향을 주지 않습니다. 그러나, 단일 체인 MHC 구문 사용 하 여 몇 가지 제한이 있다. 예, 그것은 시간 이다 고이 사우스 캐롤라이나 MHC와 다른 펩 티 드, 그리고 후속 transfections 셀 정렬 인코딩 여러 플라스 미드의 생성을 수반으로이 실험 시스템을 사용 하 여 시퀀스 여러 공동 주 작동 근 펩 티 드를 테스트 하려면 노동 소비. 이전, 우리 마우스 T 세포 활성화8,9, 여러 공동 주 작동 근 펩 티 드를 테스트 murine 탭 불충분 한 셀 라인 RMA-S를 사용 했지만이 방법은 탭-불충분 한 인간의 T2 셀 선10, 가장 가능성이 때문에 탭 독립적인 펩 티 드41의 프리젠테이션. 우리의 실험 시스템의 또 다른 한계는 그것이 공동 주 작동 근 pMHC T 세포 활성화를 실행 하는 데 필요한 중요 한 결정을 위해 공동 주 작동 근 pMHC 분자의 크기를 변경 하는 빠른 방법을 제공 하지 않습니다. 또한, 사용 되는 항생물질을 유도할 수 있는 시스템 허용 하지 않는 주 작동 근의 적정 단일 세포 수준에서 pMHC 수량 항생물질 농도 변경 하 여 다양 한 항생물질 농도 HLA A2 긍정적인 셀의 비율 변경으로 셀 당 기준 HLA A2 수준 보다. 우리는 현재 조사 하 고 다른 접근 사용 지원된 지질 bilayers42, 이전 공동 agonism murine CD4 + T 세포 활성화4 동안 조사 하는 데 사용 하는 또는에 주 작동 근 pMHC의 제시 고정된 금액을 비즈는 공동 주 작동 근 pMHC의 변화량의 존재입니다. UV 쪼갤 펩 티 드 기술4,43와 함께에서 사용 하면 이러한 대체 실험 시스템 여러 공동 주 작동 근 펩 티 드 시퀀스의 다른 양의 공동 주 작동 근 pMHC 빠른 테스트 허용 해야 .
Sc MHC 기술 될 수 있습니다 또한 인간 또는 murine CD4 T 세포 co agonism의 조사에 적용 가능한 단일 체인 MHC 종류 II 분자 제시 미리 결정 포유류 세포 표면44에 펩 티 드 성공적으로 표현. 또한, sc MHC 기술 사용 하 여 HLA. 같은 비 고전 MHC 분자의 조사를 확장할 수 있습니다. Sc HLA-E, 설명 하고있다 그리고 그 식 인간 T 세포 활성화45를 억제 하기 위해 표시 되었습니다. 관심의 또 다른 비 고전 MHC 분자는 CD1, 펩 티 드46대신 지질을 선물 한다. 세포 표면에 표현 하 고 관련 지질 ligands47바인딩할 CD1 무거운 사슬 및 β2 microglobulin의 구성 된 Sc 구조 표시 되었습니다. 단일 체인 MHC 기술 T와 NK 세포 활성화 동안 분자 상호 작용을 조사 하기 위한 연구 도구로 큰 잠재력이 있다.
공개 사항
저자 아무 경쟁 관심사를 선언합니다.
감사의 글
이 연구는 그것의 R571-002-012-592 P.A.M., 국립 연구 재단 Investigatorship R571-000-272-281 P.A.M 만들기에 의해 N.R.J.G.에는 CBRG/0064/2014에서 싱가포르의 보건의 국립 의학 연구 위원회에 의해 지원 되었다 ., 그리고 A.B. 싱가포르 변환 연구 (별) 탐정 수상 (NMRC/스타/013/2012) 우리는 전문가 셀 정렬에 싱가포르 국립 대학 면역학 프로그램 흐름 핵심 시설에서 박사 폴 허 친 슨과 씨 테오 Guo Hui에 감사. 우리는 엘리야 첸에 원고의 중요 한 독서에 대 한 감사입니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Aim-V (무혈청 매체) | Gibco | 12055091 | |
| Blasticidin | Gibco | R21001 | |
| Cytofix/Cytoperm (고정/permealibisation 키트) | BD | 554714 | |
| F12 | Gibco | 10565-018 | |
| 소 태아 혈청 (FBS) | HyClone | SH3007103 | |
| Geneticin | Gibco | ||
| GolgiPlug (Brefeldin A) | BD | 555029 | |
| 인간 혈청 | Sigma-Aldrich | H4522 | |
| Hygromycin | Gibco | 10687010 | |
| Phaseolus vulgaris의 렉틴(PHA) | Sigma-Aldrich | L4144 | |
| Opti-MEM (저혈청 매체) | Bibco | 31985070 | |
| 10x PBS | Vivantis | PB0344 – 1L | |
| 페니실린/스트렙토마이신 | HyClone | SV30010 | |
| 폴리에틸렌이민(PEI) | 시그마-알드리치 | 408727 | |
| 재조합 인간 IL2 | R& D 시스템 | 202-IL | |
| 재조합 인간 IL7 | R& D Systems | 207-IL | |
| 재조합 인간 IL15 | R& D Systems | 247-ILB | |
| 테트라사이클린 | Sigma-Aldrich | T7660 | |
| T-REx CHO 세포주 | Thermo Fisher Scientific | R71807 | |
| 10 x Trypsin/EDTA | Gibco 15400054 | ||
| 항체 | |||
| CD3 | BD | 347347 | 클론 SK7, RRID:AB_400287 |
| CD8α | BD | 563795 | 클론 RPA-T8, RRID:AB_2722501 |
| CD107a | BD | 566261 | 클론 H4A3, RRID:AB_2739639 |
| HLA-A2 | eBioscience | 17-9876-41 | 클론 BB7.2, RRID:AB_11151522 |
| IFN-&감마; | eBioscience | 12-7319-41 | 클론 4S. B3, RRID:AB_1311250 |
참고문헌
- Gascoigne, N. R. Do T cells need endogenous peptides for activation? Nature Reviews. Immunology. 8 (11), 895-900 (2008).
- Gascoigne, N. R., Zal, T., Yachi, P. P., Hoerter, J. A. Co-receptors and recognition of self at the immunological synapse. Current Topics in Microbiology and Immunology. 340, 171-189 (2010).
- Krogsgaard, M., Juang, J., Davis, M. M. A role for "self" in T-cell activation. Seminars in Immunology. 19 (4), 236-244 (2007).
- Krogsgaard, M., et al. Agonist/endogenous peptide-MHC heterodimers drive T cell activation and sensitivity. Nature. 434 (7030), 238-243 (2005).
- Ebert, P. J., Jiang, S., Xie, J., Li, Q. J., Davis, M. M. An endogenous positively selecting peptide enhances mature T cell responses and becomes an autoantigen in the absence of microRNA miR-181a. Nature Immunology. 10 (11), 1162-1169 (2009).
- Lo, W. L., et al. An endogenous peptide positively selects and augments the activation and survival of peripheral CD4+ T cells. Nature Immunology. 10 (11), 1155-1161 (2009).
- Yachi, P. P., Ampudia, J., Gascoigne, N. R., Zal, T. Nonstimulatory peptides contribute to antigen-induced CD8-T cell receptor interaction at the immunological synapse. Nature Immunology. 6 (8), 785-792 (2005).
- Yachi, P. P., Lotz, C., Ampudia, J., Gascoigne, N. R. T cell activation enhancement by endogenous pMHC acts for both weak and strong agonists but varies with differentiation state. The Journal of Experimental Medicine. 204 (11), 2747-2757 (2007).
- Hoerter, J. A., et al. Coreceptor affinity for MHC defines peptide specificity requirements for TCR interaction with coagonist peptide-MHC. The Journal of Experimental Medicine. 210 (9), 1807-1821 (2013).
- Zhao, X., et al. Nonstimulatory peptide-MHC enhances human T-cell antigen-specific responses by amplifying proximal TCR signaling. Nature Communications. 9 (1), 2716(2018).
- Juang, J., et al. Peptide-MHC heterodimers show that thymic positive selection requires a more restricted set of self-peptides than negative selection. The Journal of Experimental Medicine. 207 (6), 1223-1234 (2010).
- Anikeeva, N., et al. Quantum dot/peptide-MHC biosensors reveal strong CD8-dependent cooperation between self and viral antigens that augment the T cell response. Proceedings of the National Academy of Sciences of the United States of America. 103 (45), 16846-16851 (2006).
- Anikeeva, N., Gakamsky, D., Scholler, J., Sykulev, Y. Evidence that the density of self peptide-MHC ligands regulates T-cell receptor signaling. PloS One. 7 (8), e41466(2012).
- Schuren, A. B., Costa, A. I., Wiertz, E. J. Recent advances in viral evasion of the MHC Class I processing pathway. Current Opinion in Immunology. 40, 43-50 (2016).
- Bubenik, J. MHC class I down regulation, tumour escape from immune surveillance and design of therapeutic strategies. Folia Biologica. 51 (1), 1-2 (2005).
- Apps, R., et al. Influence of HLA-C expression level on HIV control. Science. 340 (6128), New York, N.Y. 87-91 (2013).
- Cebecauer, M., et al. CD8+ cytotoxic T lymphocyte activation by soluble major histocompatibility complex-peptide dimers. The Journal of Biological Chemistry. 280 (25), 23820-23828 (2005).
- Sporri, R., Reis e Sousa, C. Self peptide/MHC class I complexes have a negligible effect on the response of some CD8+ T cells to foreign antigen. European Journal of Immunology. 32 (11), 3161-3170 (2002).
- Ljunggren, H. G., et al. Empty MHC class I molecules come out in the cold. Nature. 346 (6283), 476-480 (1990).
- Kotsiou, E., Brzostek, J., Gould, K. G. Properties and applications of single-chain major histocompatibility complex class I molecules. Antioxidants & Redox Signaling. 15 (3), 645-655 (2011).
- Hansen, T. H., Connolly, J. M., Gould, K. G., Fremont, D. H. Basic and translational applications of engineered MHC class I proteins. Trends in Immunology. 31 (10), 363-369 (2010).
- Yu, Y. Y., Netuschil, N., Lybarger, L., Connolly, J. M., Hansen, T. H. Cutting edge: single-chain trimers of MHC class I molecules form stable structures that potently stimulate antigen-specific T cells and B cells. Journal of Immunology. 168 (7), Baltimore, Md. 3145-3149 (2002).
- Mitaksov, V., et al. Structural engineering of pMHC reagents for T cell vaccines and diagnostics. Chemistry & Biology. 14 (8), 909-922 (2007).
- Truscott, S. M., et al. Disulfide bond engineering to trap peptides in the MHC class I binding groove. Journal of Immunology. 178 (10), Baltimore, Md. 6280-6289 (2007).
- Truscott, S. M., et al. Human major histocompatibility complex (MHC) class I molecules with disulfide traps secure disease-related antigenic peptides and exclude competitor peptides. The Journal of Biological Chemistry. 283 (12), 7480-7490 (2008).
- Bertoletti, A., Ferrari, C. Innate and adaptive immune responses in chronic hepatitis B virus infections: towards restoration of immune control of viral infection. Postgraduate Medical Journal. 89 (1051), 294-304 (2013).
- Boni, C., et al. Characterization of hepatitis B virus (HBV)-specific T-cell dysfunction in chronic HBV infection. Journal of Virology. 81 (8), 4215-4225 (2007).
- Gehring, A. J., et al. Engineering virus-specific T cells that target HBV infected hepatocytes and hepatocellular carcinoma cell lines. Journal of Hepatology. 55 (1), 103-110 (2011).
- Gehring, A. J., et al. The level of viral antigen presented by hepatocytes influences CD8 T-cell function. Journal of Virology. 81 (6), 2940-2949 (2007).
- Bertoni, R., et al. Human histocompatibility leukocyte antigen-binding supermotifs predict broadly cross-reactive cytotoxic T lymphocyte responses in patients with acute hepatitis. The Journal of Clinical Investigation. 100 (3), 503-513 (1997).
- Goulder, P. J., et al. Patterns of immunodominance in HIV-1-specific cytotoxic T lymphocyte responses in two human histocompatibility leukocyte antigens (HLA)-identical siblings with HLA-A*0201 are influenced by epitope mutation. The Journal of Experimental Medicine. 185 (8), 1423-1433 (1997).
- Sastry, K. S., et al. Targeting hepatitis B virus-infected cells with a T-cell receptor-like antibody. Journal of Virology. 85 (5), 1935-1942 (2011).
- vanden Berg, H. A., et al. Cellular-level versus receptor-level response threshold hierarchies in T-cell activation. Frontiers in Immunology. 4, 250(2013).
- Moots, R. J., Matsui, M., Pazmany, L., McMichael, A. J., Frelinger, J. A. A cluster of mutations in HLA-A2 alpha 2 helix abolishes peptide recognition by T cells. Immunogenetics. 34 (3), 141-148 (1991).
- Crites, T. J., Chen, L., Varma, R. A TIRF microscopy technique for real-time, simultaneous imaging of the TCR and its associated signaling proteins. Journal of Visualized Experiments. (61), (2012).
- Axmann, M., Schutz, G. J., Huppa, J. B. Single Molecule Fluorescence Microscopy on Planar Supported Bilayers. Journal of Visualized Experiments. (105), e53158(2015).
- Mariati,, Koh, E. Y., Yeo, J. H., Ho, S. C., Yang, Y. Toward stable gene expression in CHO cells. Bioengineered. 5 (5), 340-345 (2014).
- Matsushita, S., Tanaka, Y., Matsuoka, T., Nakashima, T. Clonal expansion of freshly isolated CD4T cells by randomized peptides and identification of peptide ligands using combinatorial peptide libraries. European Journal of Immunology. 31 (8), 2395-2402 (2001).
- Heng, B. C., Cowan, C. M., Basu, S. Comparison of enzymatic and non-enzymatic means of dissociating adherent monolayers of mesenchymal stem cells. Biological Procedures Online. 11, 161-169 (2009).
- Smith, K., et al. Sensory adaptation in naive peripheral CD4 T cells. The Journal of Experimental Medicine. 194 (9), 1253-1261 (2001).
- Wei, M. L., Cresswell, P. HLA-A2 molecules in an antigen-processing mutant cell contain signal sequence-derived peptides. Nature. 356 (6368), 443-446 (1992).
- Vardhana, S., Dustin, M. Supported Planar Bilayers for the Formation of Study of Immunological Synapses and Kinapse. Journal of Visualized Experiments. (19), (2008).
- Bakker, A. H., et al. Conditional MHC class I ligands and peptide exchange technology for the human MHC gene products HLA-A1, -A3, -A11, and -B7. Proceedings of the National Academy of Sciences of the United States of America. 105 (10), 3825-3830 (2008).
- Rhode, P. R., et al. Single-chain MHC class II molecules induce T cell activation and apoptosis. Journal of Immunology. 157 (11), Baltimore, Md. 4885-4891 (1996).
- Crew, M. D., Cannon, M. J., Phanavanh, B., Garcia-Borges, C. N. An HLA-E single chain trimer inhibits human NK cell reactivity towards porcine cells. Molecular Immunology. 42 (10), 1205-1214 (2005).
- Van Kaer, L., Wu, L., Joyce, S. Mechanisms and Consequences of Antigen Presentation by CD1. Trends in Immunology. 37 (11), 738-754 (2016).
- Im, J. S., et al. Direct measurement of antigen binding properties of CD1 proteins using fluorescent lipid probes. The Journal of Biological Chemistry. 279 (1), 299-310 (2004).
재인쇄 및 허가
