이 프로토콜은 펄스 SILAC를 사용한 노화 및 비분열 세포의 대사 표지, 비표적 질량 분석법 분석 및 단백질 반감기의 간소화된 계산을 위한 워크플로우를 설명합니다.
이 논문에서
요약
초록
중추 신경계에 노인 세포의 축적이 알츠하이머 및 파킨슨 병과 같은 신경 퇴행성 장애에 기여한다는 증거가 있습니다. 세포 노화는 일반적으로 치명적이지 않은 스트레스에 대한 노출에 반응하여 발생하는 영구적 인 세포 주기 정지 상태입니다. 그러나, 다른 비분할 세포와 마찬가지로, 노년기 세포는 대사적으로 활성으로 남아 있으며, 독특한 전사 및 번역 요구와 세포내 및 분비된 프로테옴의 광범위한 변화를 필요로 하는 많은 기능을 수행한다. 노화 동안 단백질 합성과 붕괴율이 어떻게 변하는지 이해하면 세포 노화의 기본 메커니즘을 조명하고 노화 세포에 의해 악화 된 질병에 대한 잠재적 인 치료 방법을 찾을 수 있습니다. 이 논문은 질량 분광법과 조합하여 세포 배양물(pSILAC)에서 아미노산에 의한 펄스 안정한 동위원소 표지를 사용하여 비분할 세포에서 단백질 반감기의 프로테옴 스케일 평가 방법을 기술한다. pSILAC는 아미노산의 안정한 무거운 동위원소 함유 버전을 갖는 세포의 대사 표지를 포함한다. 현대 질량 분광법 접근법과 결합하여, pSILAC는 복잡한 혼합물에서 수백 또는 수천 개의 단백질의 단백질 회전율을 측정할 수 있게 합니다. 대사 표지 후, 단백질의 턴오버 역학은 질량 분광법에 의해 검출된 펩티드에서 무거운 동위원소의 상대적 농축에 기초하여 결정될 수 있다. 이 프로토콜에서는 노인성 섬유아세포 배양물 및 유사하게 정지된 정지 섬유아세포의 생성뿐만 아니라 예상되는 단백질 회전율의 커버리지를 최대화하는 단순화된 단일 시점 pSILAC 라벨링 시간 과정에 대한 워크플로우가 설명됩니다. 또한, pSILAC 질량 분광법 데이터의 분석 및 스프레드 시트를 사용하여 단백질 분해 속도의 사용자 친화적 인 계산을위한 파이프 라인이 제시됩니다. 이 프로토콜의 적용은 노화 세포를 넘어 뉴런과 같은 모든 비분할 배양 세포로 확장될 수 있다.
서론
노화는 먼저 복제 고갈에 도달한 후 배양된 일차 세포에 의해 나타나는 무기한 성장 정지 상태로서확인되었다 1. 그 이후로 노화는 유전 독성, 미토콘드리아 및 발암 유발 스트레스를 포함한 수많은 세포 모욕에 대한 반응으로 발생할 수 있음이 밝혀졌습니다2. 노화 는 종양 억제 및 상처 치유와 같은 몇 가지 생리학적으로 중요한 역할을 하지만, 노화 동안 노화 세포의 축적은 여러 신경 퇴행성 상태4,5,6를포함하여 건강에 해로운 영향을 미치는 호스트와 관련이 있습니다3. 세포 노화 는 뉴런 7,8,9,10, 성상세포(11), 미세아교세포(12), 및 희소돌기아교세포 전구체(13)를 포함하는 다수의 뇌 세포 유형에서 발생하며, 신경변성 및 인지 기능 장애에 기여한다. 알츠하이머 병 14의 특징 중 하나 인 아밀로이드 베타 올리고머는 신경 노화13,15,16을 가속화하는 것으로 나타났습니다. 노화 세포의 증가 된 유병률은 또한 파킨슨 병17, 특히 환경 스트레스 요인11,18에서 발생합니다. 중요하게도, 전임상 모델에서 노인성 세포의 선택적 제거는 수명을 연장하고 다수의 연령 관련 질환(3,5,12)을 완화시키고, 인지 결핍(8,11,12,13)을 개선시킨다. 따라서 노화 세포는 많은 연령 관련 상태의 치료를 위한 유망한 치료 표적으로서 등장하였다.
노화 세포의 해로운 효과의 대부분은 국소 염증, 혈관 형성, 세포외 기질의 파괴 및 주변 조직에서의 노화의 전파를 일으킬 수있는 노화 세포에 의해 분비되는 생리 활성 분자의 복잡한 혼합물 인 노화 관련 분비 표현형 (SASP)에 의해 유발됩니다 19,20,21 . SASP는 또한 세포 주기 정지 상태 동안 상당한 전사 및 번역 노력을 필요로 하기 때문에 노화의 흥미로운 생물학적 현상을 나타낸다. 실제로, 노년기 세포는 단백질 합성을 감소시켜야 하는 리보솜 생물발생 22,23,24의 감소를 나타내는 것으로 나타났다. 대신, 노화 세포는 일부 단백질, 특히 SASP 인자를 견고하게 번역하고 주변 조직25의 신진 대사에 영향을 미칩니다. 따라서, 영구적인 세포 주기 정지를 겪는 노화 세포가 어떻게 단백질 항상성을 계속 유지하면서 동시에 SASP 인자 및 다른 선택된 단백질을 견고하게 발현하는지를 이해하는 데 상당한 관심이 있다.
이 방법은 세포 배양물(pSILAC)에서 아미노산에 의한 질량 분광법 및 펄스 안정한 동위원소 표지를 사용하여 프로테옴 전체 규모로 노인성 세포에서 단백질의 반감기를 전역적으로 측정하는 방법을 설명합니다. 전통적인 SILAC에서, 배양된 세포는 단백질 풍부도의 하류 분석을 위해 아미노산의 무겁고 가벼운 비방사성 동위원소로 완전히 대사적으로 표지된다. 이 방법은 배양된 섬유아세포(26)의 SASP에서 풍부 변화를 포괄적으로 그리고 정량적으로 평가하기 위해 이전에 적용되었다. pSILAC에서, 세포는 가벼운 동위원소로 사전 표지된 다음, 하나 이상의 시간 간격으로 수확되는 무거운 동위원소의 펄스로 유사하게 대사적으로 표지된다. 기존의 경질 동위원소와 관련하여 무거운 동위원소의 혼입 속도는 상대적 단백질 회전율을 계산하는 데 사용됩니다. 일반적으로, 아르기닌 및 리신의 동위원소는 트립신이 이들 잔기에서 절단되기 때문에 사용된다; 따라서, 표준 소화로부터의 모든 펩티드는 잠재적으로 무거운 표지를 함유할 것이다. 무거운 라이신 또는 아르기닌의 존재 또는 부재에 의해서만 상이한 펩티드 쌍은 화학적으로 동일하며 질량 분광계에 의해 분화되고 정량화 될 수있다. 질량 분광분석법 분석 후, 펩티드는 생성된 펩티드 동위원소 표지의 존재 또는 부재에 기초하여 새롭게 합성되거나 기존에 존재하는 것으로 확인될 수 있다. 이어서, 단백질 턴오버 속도는 주어진 단백질에 대한 무거운 (13C-15N) 대 경량 (12C-14N) 펩티드의 비율을 지수 성장 또는 붕괴에 대한 운동 모델27,28에적합시킴으로써 결정될 수 있다. pSILAC는 단백질 회전율 29,30,31,32의 여러 비교에 사용되어 왔으며 현재 단백질 반감기 측정을위한 가장 포괄적이고 높은 처리량 방법입니다.
이 프로토콜은 배양물에서 유사하게 성장-정지된 정지 세포와 병행하여 노화 세포의 제조를 상세히 기술하고, 이어서 pSILAC로 대사 표지를 부착한다. 그런 다음 세포를 수확하고, 용해물로 균질화하고, 질량 분광법 수집 및 분석을 위해 처리한다. 질량 분광법에서 얻은 데이터는 스프레드 시트에서 수행 된 단일 시점 및 반감기 계산을 사용하는 단순화 된 정량적 방법을 사용하여 단백질 반감기를 결정하는 데 사용됩니다. 이 접근법을 사용하여, 단백질 반감기의 추정치는 단백질 합성 또는 턴오버의 차단제를 사용하는 프로토콜보다 교란되지 않은 세포 조건에 더 확실한 포괄적이고 정량적인 방식으로 측정될 수 있다.
프로토콜
1. 이온화 방사선(IR)에 노출됨으로써 노화된 정지 세포 및 세포의 제조
참고: 세포 노화 및 정지는 다른 곳에서 상세히 설명된 바와 같이 여러 방법을 사용하여 유도될 수 있다(33,34,35). 노화 및 정지를 유도하기 위해 사용되는 자극은 관심 있는 세포 유형 및 조사중인 생물학적 질문에 의존할 수 있다. 본 연구에 사용된 세포는 상업적으로 입수가능하다.
- 인간 이배체 IMR-90 섬유아세포(∼1 x 10⁶ 세포)를 냉동으로부터 해동하고, 이를 10% 태아 소 혈청(FBS)이 보충된 DMEM 20 mL(표 1)에 150 mm 플레이트 상에 플레이트화한다.
- 생리적 산소 조건(3% O2, 5%CO2, 37°C)에서 세포를 성장시키고, 퀴센트 및 노인성 세포에 대한 충분한 반복실험이 확립될 때까지 배양물을 10% FBS 함유 배지에서 확장시킨다(조건당 적어도 3-5번의 반복실험이 권장됨).
참고: 생리적(3%) 산소로 세포를 배양하는 것은 일차 인간 섬유아세포 세포에 이상적이지만, 다른 세포 유형에 적합한 배양 조건은 다를 수 있으며 사례별로 결정되어야 합니다. - 증식하는 세포를 이온화 방사선(IR)의 15 회색 (Gy)에 노출시킴으로써 노화 세포를 생성한다.
참고: 방사선 노출의 강도는 세포 유형에 따라 달라질 수 있습니다. 15 Gy가 여기에 사용되지만, 10 Gy는 또한 섬유 아세포에 일반적으로 사용되는 방사선 선량입니다. 단핵구와 같은 다른 세포는 5 Gy만큼 낮은 용량을 요구할 수 있다. 투여량은 일반적으로 노화 유도에 대한 생존력을 칭량함으로써 경험적으로 결정된다.- 세포를 10% FBS를 함유하는 배지에서 IR에 40%-60% 합류로 노출시킨다.
- IR 노출 후 10 % FBS를 함유 한 신선한 배지로 변경하십시오.
- 배지 (20 mL, 10 % FBS 함유)를 8 일 동안 2 일마다 변경하십시오.
참고: IR 처리된 세포는 성장을 중단하기 전에 배양물에서 확장되기 때문에 세포는 더 낮은 컨플루언시에서 IR에 노출됩니다. 이 실험에서, 세포는 노화의 확립 동안 분열된 세포가 아니었고, 그들이 더 합류하게 되었지만, 그들은 여전히 수확 시에 노화 세포 마커를 나타내었다. 섬유 아세포에서 노화 표현형은 7-10 일 이내에 발생합니다.
- 플레이팅된 증식 세포 상의 배지를 0.2% FBS(혈청 기아)를 함유하는 배지로 변경함으로써 정동작 조절 세포를 생성한다(표 1).
- 계속 성장하는 세포는 노화 세포가 IR에 노출된 후 4일째까지 10% FBS를 함유하는 배지에서 정지 조절에 사용될 것이며, 필요할 때 분할한다.
- IR 후 4일째에, 정지 세포의 배지를 0.2% FBS를 함유하는 배지 20 mL로 변경하고(표 1), 또 다른 6일 동안 계속 성장시키고, 2일마다 배지를 변경한다.
참고 : 0.2 % FBS를 함유 한 배지에서도 섬유 아세포는 다소 계속 자라며 수확이 끝날 때까지 합류하는 것처럼 보일 수 있습니다. 엄지 손가락의 규칙으로, 그들이 노인 세포 배양의 그것과 유사한 confluency에 도달했을 때 정지 세포를 수집하는 것을 목표로하십시오.
2. 펄스 SILAC 및 용해물의 수확을위한 세포의 라벨링
- 노화 및 정지 세포 (12 플레이트) 둘 다의 배지를 SILAC Light (표 1)로 변경하고 2 일 동안 성장시킨다.
참고: 이 라벨링은 13C및 15N의 자연적 풍부도가 낮기 때문에 배경 소음을 줄이는 데 도움이 됩니다. 이 단계는 시약 제한 조건에서 건너 뛸 수 있지만 새로운 단백질 합성의 약간의 과대 평가가 발생합니다. - 대사 표지를 위해 배지를 SILAC DMEM(표 1)으로 교체합니다.
참고: SILAC DMEM 배지는 대사 표지를 위해 아르기닌과 라이신의 순전히 가볍거나 무거운 동위원소를 함유하도록 특별히 제조되었습니다. 이들은 하위단계 2.2.1 또는 2.2.2에서 표준 DMEM 제형으로 치환되어서는 안 된다.- 3개의 노쇠 플레이트와 3개의 정동작 플레이트의 경우, 배지를 30mL의 SILAC 라이트(표 1)로 교체하고 배지를 교체하지 않고 3일 동안 성장시킨다.
- 최소 3개의 노화 플레이트와 3개의 정동작 플레이트의 경우, 배지를 30mL의 SILAC 헤비(표 1)로 교체하고 배지를 교체하지 않고 3일 동안 성장시킨다.
참고: 이 시점에서 추가 3일 동안 레이블을 붙이지 않고 즉시 라이트 라벨이 붙은 셀을 수확할 수 있는 옵션이 있습니다. 단일 시점의 경우, 배치 효과를 최소화하기 위해 이 프로토콜에서 행해지는 것과 동일한 기간 동안 무겁고 가벼운 표지된 세포를 라벨링하는 것이 바람직하다.
- 미리 가온된 트립신 시약 5 mL를 각 디쉬에 첨가하여 배양 플레이트로부터 세포를 분리하고, 37°C에서 5분 동안 인큐베이션한다.
- 분리된 세포를 배양에 사용된 동일한 배지(SILAC Light 또는 SILAC Heavy)의 5 mL에 총 부피 10 mL로 재현탁시킨다.
- 용해물의 추출 및 노화 마커의 검증을 위해 세포를 수확하십시오.
- 각 현탁액에 대해, 분취량 0.6 x 10 6 세포를6 -웰 디쉬에 0.2% FBS를 함유하는 배지 2 mL에 넣고 (2개의 디쉬, 하나는 SILAC 라이트 배양 세포용이고 다른 하나는 SILAC 헤비 배양 세포용) 37°C에서 밤새 인큐베이션한다.
참고: 이들 플레이트(서브 단계 2.5.1)는 노화 관련 β-갈락토시다제(SA-βGal) 활성의 검출을 위해 사용될 것이다(단계 3.1). - 각 현탁액에 대해, 세포의 분취량 1 x 10⁶을 마이크로원심분리 튜브에 넣고 탁상 원심분리기에서 1분 동안 최고 속도로 스핀다운한다. 상청액을 제거하고 펠렛을 페놀 1 mL에 재현탁시키고; 이 단계에서, RNA는 페놀 공급 업체의 매뉴얼에 기재된 바와 같이 완전히 정제되거나 -80°C에서 장기간 저장될 수 있다.
주의: 페놀은 부식성이 있으므로 장갑과 실험실 코트가 달린 후드에서만 취급해야 합니다.
참고: 추출된 RNA는 역전사(RT)를 사용한 SASP 인자를 코딩하는 mRNA의 검출에 사용될 것이며, 그 후 실시간 정량적 (q) PCR(RT-qPCR) 분석(단계 3.2)이 뒤따를 것이다. 노화 유도를 위한 또 다른 신뢰할 수 있는 검정은 증식하는 세포의 존재를 나타내는 5-에티닐 디히드록시우리딘 (EdU) 혼입에 대한 시험이다. 증식의 부재는 정지 및 노화를 확인하는 데 사용될 수 있습니다. - 나머지 세포를 얼음으로 옮기고 300 x g 및 4°C에서 스핀다운한다.
- 각 현탁액에 대해, 분취량 0.6 x 10 6 세포를6 -웰 디쉬에 0.2% FBS를 함유하는 배지 2 mL에 넣고 (2개의 디쉬, 하나는 SILAC 라이트 배양 세포용이고 다른 하나는 SILAC 헤비 배양 세포용) 37°C에서 밤새 인큐베이션한다.
- 상층액을 제거하고 차가운 PBS 1 mL에 세포를 두 번 세척하여 배지에서 태아 소 혈청에서 배지 / 트립신 및 외인성 단백질 오염을 제거하십시오.
- 세포를 다시 스핀 다운하고, 상층액을 제거하고, 용해를 진행한다.
- 세포 펠렛을 150 μL의 갓 제조된 8 M 우레아 50 mM 중탄산암모늄 용해 완충액 (표 1)에 재현탁시키고, 위아래로 피펫팅하여 혼합한다.
- 용해물을 물 초음파 처리기에서 2.5 분 동안 초음파 처리하고 4 °C의 중간 전력에서 30 초 켜기 / 끄십시오.
- 용해물을 예열된 95°C 열 블록으로 옮기고 4분 동안 변성시킨다.
- 용해물을 아래로 회전; 용해물은 이제 -80°C에서 저장되거나 정량화를 위해 즉시 사용될 수 있다.
- 용해 완충액에서 각 용해물에 대해 1:10 희석액의 30 μL 스톡을 만든다.
- ddH2O. 용해물에 희석된 1/10x 용해 완충액에서 제조된 표준 곡선을 사용하여 BCA 어세이 키트로 단백질 농도를 측정하면 이제 -80°C에서 무기한으로 저장할 수 있다.
3. 노화 관련 β-갈락토시다제(SA-βGal) 활성 및 노화 관련 mRNA의 RT-qPCR 분석에 의한 노화의 검증
참고: 이러한 단계의 출발 물질은 2.5 단계에서 수집됩니다.
- 2.5.1 하위단계에서 설정된 6-웰 플레이트로부터 시작하여, 제조자의 프로토콜에 따라 노화 β-갈락토시다제 염색 키트를 사용하여 SA-βGal 활성에 대한 세포를 분석한다. 앞서 설명한 바와 같이 색상이 활성화된 밝은 필드 아래에서 염색을 시각화합니다(36).
참고: SA-βGal은 노화 대조군 조건과 정동작 대조군 조건에서 양성 세포(가시적 파란색)의 백분율을 비교하여 정량화됩니다. 노화의 성공적인 확인을 위해 세포의 최소 70%가 SA-βGal 양성이어야 한다. 정동작 조절 세포는 SA-βGal에 대해 10% 미만 양성이어야 한다. - 페놀 현탁액으로부터 RNA를 추출하고(하위단계 2.5.2), SASP 인자(IL6, CXCL8, IL1B), 세포 주기 마커(CDKN2A/p16, CDKN1A/p21) 및 노화의 다른 지표(LMNB1 및 PCNA의 손실)를 코딩하는 mRNA의 증가된 수준에 대해 RT-qPCR을 사용하여 분석한다.
참고: RNA는 불안정하므로 프로토콜에 달리 명시되지 않는 한 RNase-free 장비, 신선한 장갑 및 얼음 위에서 처리해야 합니다.- 페놀 현탁액으로부터 시작하여, 페놀 1 mL 당 200 μL의 클로로포름을 첨가하고, 4°C에서 15분 동안 12,000 x g 에서 스핀다운시킨다.
- 수성상을 조심스럽게 제거하고 1:1 부피의 이소프로판올, 15 μg의 글리코겐 공침전제를 첨가한 다음, 4°C에서 10분 동안 인큐베이션하여 RNA를 침전시켰다.
- 인큐베이션 후, 4°C에서 20분 동안 12,000 x g 에서 원심분리하여 RNA를 펠릿화한 다음, 사용된 페놀 1 부피와 동일한 75% EtOH로 세척하였다. RNA를 뉴클레아제가 없는 증류수 50 μL에 재현탁시키고; RNA는 -80°C에서 무기한으로 저장될 수 있다.
- RNA 샘플에, 38 μL의 뉴클레아제가 없는 증류수, 10 μL의 10x DNAse 반응 완충액, 및 2 μL의 DNase I을 첨가한 다음, 혼합하였다.
참고: 3.2.3 단계 미만의 모든 시약에 샘플과 동일한 분포를 위한 처리를 위한 샘플 수를 곱한 값의 공통 혼합을 생성하는 것이 가장 좋은 방법입니다. - DNase I 처리된 RNA 샘플을 30분 동안 37°C에서 인큐베이션한다.
- 1 부피의 페놀 / 클로로포름 / 이소 아밀 알코올 (25 : 24 : 1) 혼합물을 사용하여 5 분 동안 탁상 원심 분리기에서 최대 속도로 볼텍싱 및 방사하여 샘플에서 DNase를 제거하십시오. RNA는 수성상에 함유될 것이다.
- 3.2.2 및 3.2.3 하위단계를 반복하여 RNA를 침전시킨다. 20 μL의 뉴클레아제 프리 증류수에 재현탁; RNA는 -80°C에서 무기한으로 저장될 수 있다.
- 0.5-1.0 μg의 정제된 RNA를 200 U의 역전사효소, 100 pMol 랜덤 프라이머, 및 10 mM의 dNTP 믹스와 함께 역전사효소와 함께 공급된 1x 반응 완충액에서 인큐베이션함으로써 정제된 RNA로부터 cDNA를 생성하는 단계; 25°C에서 10분 동안 인큐베이션한 다음, 50°C에서 30분 동안, 85°C에서 5분 동안 최종 불활성화 단계를 거친다.
- 실시간 정량적 (q) PCR 분석을 사용하여 정지 대조군 및 노인성 세포로부터의 RT 단계 (서브 단계 3.2.3)로부터의 cDNA를 분석하여 다른 곳에서 기술된 바와 같이 노화와 함께 증가 (CDKN2A/p16, CDKN1A/p21, IL1B, IL6 및 CXCL8 mRNAs) 또는 감소된 것으로 알려진 mRNA 마커의 수준을 평가한다. 하우스키핑 단백질 β액틴을 코딩하는 ACTB mRNA는 종종 입력 물질의 차이를 정상화하기에 좋은 mRNA이다. 사용된 프라이머는 표 2에 있다.
참고: 상대적 RT-qPCR 분석은 표적 프라이머 쌍과 기준 프라이머 쌍 사이의 동일한 결합 효율의 가정에 의존한다. 이러한 가정들은 다른 곳(37)에서 상술된 바와 같이 새로운 프라이머 세트에 대해 시험되어야 한다. 추가적으로, 참조 마커는 비교되는 세포 유형 사이에서 일정해야 하며, 노쇠 세포에 대한 몇 가지 추가적인 옵션이 이전에 확인되었다(38).
4. 용액 내 트립신 소화
참고: 이 시점부터는 질량 분광법 분석 중에 불순물로 인한 간섭을 방지하기 위해 질량 분광법 등급 버퍼, 용매 및 화학 물질을 사용하는 것이 중요합니다. 모든 완충액은 물 및 아세토니트릴을 포함한 액체 크로마토그래피 탠덤 질량 분광법 분석에 적합한 성분으로 구성되어야 합니다. 적합한 화학 물질 및 용매 목록은 재료 표를 참조하십시오.
- 각 단백질 샘플의 분취량 50 μg을 새로운 튜브에 넣고 용해 버퍼로 동일한 부피로 가져옵니다.
- 각 샘플에 DTT를 20 mM의 최종 농도로 첨가하여 디술피드 결합을 감소시킨다.
- 샘플을 진탕하면서 30분 동안 37°C에서 인큐베이션하고, 이어서 샘플을 실온(RT, ∼10분)에서 냉각시킨다.
- 요오도아세트아미드를 최종 농도 40 mM로 첨가하여 이전 단계에서 환원되었던 술프히드릴기를 비가역적으로 알킬화시킨다. 샘플을 어둠 속에서 RT에서 30분 동안 인큐베이션한다.
- 각 샘플을 50 mM 중탄산암모늄으로 구성된 완충액으로 1 M 우레아 이하로 희석한다. pH 스트립 상에 소량의 샘플을 피펫팅하여 pH가 대략 8인지 여부를 확인한다.
- 시작 단백질 50 μg에 대해 각 샘플에 트립신 1 μg을 첨가하거나, 다른 단백질 양을 소화하는 경우 1:50 트립신 : 단백질 비율, 질량별로. 예를 들어, 3 μg의 트립신이 150 μg의 단백질의 소화를 위해 첨가될 것이다.
- 샘플을 진탕하면서 37°C에서 하룻밤 동안 인큐베이션하여 단백질을 펩티드로 소화시킨다.
- 포름산을 각 샘플의 부피 기준으로 1%로 첨가하여 단백질 소화를 켄칭한다.
참고: 여기에서 실험을 일시 중지할 수 있습니다. 샘플을 -80°C에서 동결시키고 필요한 경우 추후 날짜에 다음 단계를 계속한다.
5. 고체상 추출(SPE)을 이용한 시료 정리
참고: 이 고체상 추출 프로토콜에는 고상 추출 카트리지와 진공 매니폴드 설정이 필요합니다. 다른 동등한 고체상 추출 (SPE) 프로토콜은 질량 분광법 분석 전에 연구자의 재량에 따라 수행 될 수 있습니다.
- 고상 추출 카트리지를 진공 매니폴드에 놓고 각 샘플에 대해 하나의 추출 카트리지를 사용하여 SPE를 준비합니다.
참고: SPE 프로토콜에 사용할 흡착제의 양에 대한 제조업체의 지침을 참조하십시오. 50μg의 펩티드 샘플의 경우 10mg 흡착제 카트리지를 사용하는 것이 좋습니다. - 800 μL의 SPE 용출 완충액(표 1)을 첨가하여 각 SPE 카트리지를 컨디셔닝하고 진공 흡입을 사용하여 카트리지를 통해 용매를 그립니다.
- 5.2단계를 반복합니다.
- 800μL의 SPE 세척 버퍼(표 1)를 추가하여 각 카트리지를 평형화하고 진공 흡입을 사용하여 카트리지를 통해 버퍼를 그립니다.
- 5.4단계를 두 번 더 반복하여 총 세 번 반복합니다.
- 펩티드 샘플을 SPE 카트리지에 로드하고 진공 흡입을 사용하여 카트리지를 통해 샘플을 그립니다.
참고: 이 시점에서 펩티드는 카트리지 내부의 흡착제에 결합됩니다. - SPE 세척 버퍼로 각 카트리지를 세척하고 진공 흡입을 사용하여 카트리지를 통해 버퍼를 그립니다.
- 5.7 단계를 두 번 더 반복하여 총 세 번 세척하십시오.
- 용출 단계 전에 각 카트리지 아래의 진공 매니폴드 내에 수집 튜브를 배치하여 수집 튜브와 카트리지 사이의 정렬을 신중하게 보장합니다.
- 펩티드를 용출시키려면, 800μL의 SPE 용출 완충액을 각 카트리지에 첨가하고, 펩티드를 진공 흡입으로 수집 튜브에 용출시킨다.
- 400 μL의 SPE 용출 버퍼로 5.10단계를 반복합니다.
- 펩티드 샘플을 진공 매니폴드로부터 제거하고 진공 농축기에서 완전히 건조시킨다(건조는 대략 3시간 소요된다).
참고: 여기에서 실험을 일시 중지할 수 있습니다. 샘플을 -80°C에서 동결시키고 필요한 경우 나중에 계속한다.
6. 데이터 의존적 획득(DDA) 질량 분광법 분석
- 펩티드 샘플을 물에 0.2% 포름산으로 구성된 완충액에 400 ng/μL의 농도로 재현탁시킨다.
- 펩티드의 재가용화를 돕기 위해, 샘플을 5분 동안 와류시킨다. 그런 다음 샘플을 수조 초음파 처리기에서 5 분 동안 초음파 처리하십시오.
- 임의의 불용성 물질을 4°C에서 15분 동안 15,000 x g 에서 샘플을 원심분리하여 펠릿화한다. 펩티드 상청액을 MS 바이알 내로 옮긴다.
- 선택한 인덱싱된 체류 시간(iRT) 펩티드 표준을 부피별로 1:30 iRT:샘플의 농도로 각 샘플에 추가합니다.
- 액체 크로마토그래피 탠덤 질량 분광분석법(LC-MS/MS) 분석을 사용하여 프로테오믹 분석을 위해 샘플을 제출합니다.
- 질량 분광법 시설에 의한 비표적 분석에 권장되는 LC-MS/MS 설정을 사용하십시오. 분석을 위한 실시예 설정은 나노 유동 모드에서 나노 액체 크로마토그래피 시스템에 결합된 Orbitrap 질량 분광계에 대한 분석을 위해 구성된 도 3에 도시되어 있다. 예제 프로토콜은 다음과 같습니다.
- 각 샘플의 1μg(5μL)을 트랩 컬럼(길이 1cm x 직경 100μm)에 로딩하고 로딩 용매(표 1)로 5분 동안 10μL/min의 유속으로 세척합니다.
- 샘플을 400nL/min의 유량으로 분석 컬럼(길이 50cm x 직경 100μm)에 로드합니다.
- 펩티드를 5% 내지 35% 유기 용매에 이르는 유기 용매 (0.2% 포름산 및 99.8% 아세토니트릴) 및 무기 용매 (99.8% 물 중 0.2% 포름산)로 90분에 걸쳐 선형 구배로 떼어낸다.
- HCD 단편화(정규화된 충돌 에너지 27%)를 사용하여 MS1 측량 스캔(60,000 분해능, 3e6 AGC 타겟, 100ms 최대 누적 시간 및 400-1,600 m/z 질량 범위)의 연속 사이클을 통해 데이터 종속 모드에서 질량 분석기 데이터를 획득한 후 20개의 데이터 종속 MS2 스캔(15,000 분해능, 1e5 AGC 타겟, 25ms 최대 주입 시간 및 1.6 m/z 폭 격리 윈도우)을 획득합니다.
- MS가 모든 샘플을 획득한 후, 펩티드 피크 영역의 확인 및 정량화를 위한 질량 분광법 프로테오믹스 분석 소프트웨어 도구로 원시 질량 분광법 파일을 가져옵니다.
참고: 이 실험에서 펩티드 및 단백질의 동정을 위해, 마스코트 데이터베이스 검색 도구는 검토된 UniProt 인간 프로테옴 서열 데이터베이스(Proteome ID: UP000005640)와 함께 사용되었다. 마스코트에는 다음 검색 매개 변수가 지정되었습니다.- 정량 : SILAC K + 8 R + 10 [MD] 효소 : 트립신 / p 고정 변형 : 카바 미도 메틸 (C)
- 가변 변형: 아세틸 (단백질 N항), Gln->pyro-Glu (N항 Q), 산화 (M), 라벨: 13C(6)15N(2) (K), 라벨:13C(6)15N(4) (R)
- 펩티드 질량 포용력: 10 ppm
- 단편 질량 허용 오차: 0.08 Da
- 최대 누락 된 절단 : 2
- 지정되지 않은 모든 매개 변수가 기본값이었습니다.
- 프로테옴 정량 소프트웨어 도구에서 무겁고 가벼운 펩티드에 대한 펩티드 피크 영역을 정량화한다. 이 실험에서 피크 영역의 정량화를 위해 무료 및 오픈 소스 Skyline 소프트웨어 플랫폼이39,40을 사용했습니다. 단백질 반감기의 추정을 위해 무겁고 가벼운 펩티드 피크 영역을 수출한다.
7. 단백질 반감기의 계산
- SILAC 분석 통합 문서(표 3)를 1) 원시 데이터 라는 첫 번째 시트에 열고 UniProt ID, 유전자 이름, 무거운 피크 영역 및 밝은 피크 영역을 표시된 열에 붙여 넣습니다(SH = Senescent-Heavy, SL = Senescent-Light, CH = Control(quiescent)-Heavy, CL = Control (quiescent)-Light).
- 시트 2-4를 열고 UniProt ID 및 Gene 컬럼이 분석으로부터 확인된 단백질의 수와 일치하는지 확인한다(이들 실험은 841개의 단백질을 확인함). 나머지 열은 확인 된 단백질을 덮기 위해 드래그 된 후 자동으로 데이터로 채워집니다.
- 4) 분석이라는 네 번째 시트를 열고 열 G와 H가 표본이 범위를 벗어났다는 것을 나타내는 행을 제거하고 제거합니다. 범위 내에서 읽는 행을 유지합니다. 다섯 번째 시트의 화산 플롯이 자동으로 채워집니다.
결과
이 프로토콜은 pSILAC 및 최소 시점을 사용하여 노화 및 비분할, 정동작 대조군 세포 사이의 단백질 반감기를 전역적으로 비교하는 방법을 설명합니다. 이 프로토콜은 배양물에서 노화 및 정지 세포의 생성, 3 일 동안 아르기닌과 라이신의 안정한 동위원소를 가진 세포의 대사 표지, 질량 분광법에 의한 무겁고 가벼운 펩티드 동위원소의 상대적 풍부도를 정량화하고, 스프레드 시트 공식을 사용하여 단백질 반감기를 간단하고 접근 가능한 계산에 대해 자세히 설명합니다 (그림 1). 이 방법은 매우 유연하며 수많은 세포 유형 및 조건에 적응할 수 있습니다.
이 프로토콜에 대한 노화 세포 생성의 일환으로 노화 검증의 두 가지 방법이 사용됩니다 : 현미경으로 시각화 된 SA-βGal 양성 세포와 RT-qPCR 분석을 사용하여 정량화 된 노화 마커의 수준 증가. 노인성 마커의 측정은 유효한 것으로 간주되는 두 세포 집단의 비교를 위해 정지 세포와 노인성 세포 사이의 명확한 구별을 산출해야합니다. SA-βGal 활성의 경우, 노화 세포는 파란색으로 나타나야 하지만 정동작 대조군 세포는 색이 없거나 거의 나타나지 않아야 합니다(그림 2A). 이 분석은 양성, 청색 염색된 세포를 총 세포 수의 백분율로 계수한 다음, 정동작 대조군과 노인성 세포 사이의 백분율 양성률을 비교함으로써 정량화될 수 있다. 이 프로토콜이 두 세포 상태의 비교를 위해 동시에 수행되는 것이 중요합니다. SA-βGal 활성은 염색 용액의 pH에 의존하므로 결과는 분석마다 크게 다를 수 있으므로 정성적 측정으로 간주되어야합니다.
노화 마커의 RT-qPCR 분석은 대부분의 노화 모델에서 SASP 인자 (IL6, CXCL8, IL1B) 및 세포 주기 억제제 (CDKN2A / p16, CDKN1A / p21)를 코딩하는 mRNA의 높은 수준을 보여줍니다. 세포 유형, 배양 조건 및 노화 유도제 41,42에 기초하여 약간의 변동이 예상되지만, 대부분의 노화 세포는 정지 대조군 세포에 비해 IL6, CXCL8 및 CDKN1A/p21 mRNA의 5배 이상 더 높은 수준을 나타낸다; 반대로, 증식 마커를 코딩하는 LMNB1 및 PCNA mRNA의 수준은 정지 세포와 비교하여 노인성 세포에서 낮거나 부재해야 한다(도 2B). 종합하면, SA-βGal 양성의 상당한 비율 및 노화 관련 mRNA 마커의 패널의 예상되는 발현은 실험에서 노화의 유도를 확인하기에 충분하다.
질량 분광분석을위한 단백질 샘플 처리는 용액 내 소화 (2 일) 및 고체상 추출 (4-6 h)으로 구성됩니다. 표적화되지 않은 프로테오믹 분석을 수행하기 위해, 생성된 펩티드는 데이터 의존적 획득(DDA)을 이용한 LC-MS/MS 분석을 위해 제출된다. Orbitrap 기기에서는 질량 분광법 기기 소프트웨어 방법 편집기에서 DDA 방법을 지정할 수 있습니다. 본 연구에 사용된 질량분석기 설정은 도 3A에 도시되어 있다. 액체 크로마토그래피 설정은 방법 편집기 내에서 지정할 수도 있습니다. 이 연구를 위해, 유기 상 증가와 함께 90분 선형 구배(아세토니트릴)가 사용되었다(도 3B). 성공적인 획득 후, 총 이온 전류(TIC)는 방법의 선형 구배 부분 동안 강렬한 신호를 포함해야 한다(그림 3C). 이 프로토콜은 Orbitrap 장비의 예제 프로토콜을 설명하지만 단백질 반감기의 계산은 DDA 모드에서 수집 된 질량 분광계에서 얻은 데이터에 대해 수행 할 수 있으며 여러 유형의 장비 (예 : Orbitraps 및 비행 시간 계측기) 및 공급 업체에서 사용할 수 있습니다. 수집 설정은 사용 된 장비의 유형 및 구성에 따라 고유하며 질량 분광법 시설에서 제안하는 설정을 사용하는 것이 좋습니다. 이 방법은 비 DDA 방법 (SRM, PRM, DIA)과도 호환되며, 무겁고 가벼운 피크에 대한 정량적 크로마토그래피 피크 영역을 원시 데이터 파일에서 추출하여 스프레드 시트 공식에 입력 할 수있는 한 가능합니다.
원시 질량 분광법 파일은 펩티드와 단백질을 식별하기 위해 사용 가능한 많은 프로테오믹 데이터베이스 검색 도구 중 하나를 사용하여 검색됩니다. 예를 들어,이 연구는 마스코트43 검색 엔진을 활용했습니다. 무겁고 가벼운 펩티드의 정량화를 위한 크로마토그래피 피크 영역을 얻기 위해, 데이터베이스 검색 결과는 스카이라인39,40과 같은 크로마토그래피 피크 영역을 할 수 있는 프로테오믹 소프트웨어로 임포트된다. 펩티드의 추출된 이온 크로마토그램(도 4)을 조사하면 무겁고 가벼운 펩티드 신호의 상대적 비율을 알 수 있을 것이다. 노화 세포에서 경질 펩티드 신호에 비해 무거운 펩티드 신호의 낮은 비율은 더 느린 단백질 턴오버 속도를 나타내고(도 4A), 빛에 비해 더 높은 무거운 펩티드 신호는 더 빠른 단백질 턴오버 속도를 나타낸다(도 4B). 표지되지 않은 샘플은 무거운 펩티드 신호가 거의 또는 전혀 나타나지 않아야 한다. 표지되지 않은 샘플에서 겉보기 무거운 펩티드 신호는 배경 잡음으로 간주되며 최종 계산 중에 뺄 것입니다. 모든 처리 및 라벨링 조건에 대한 가볍고 무거운 펩티드에 대한 크로마토그래피 피크 영역의 정량화는 단백질 회전율 및 통계 분석의 후속 계산을 위해 수출되어야 한다.
단일 시점 분석을 사용하여 단백질 반감기의 정량화를 수행하기가 간단하며 스프레드 시트에서 편리하게 수행 할 수 있습니다. 표 3에서, 질량 분광분석으로부터 확인된 695개의 단백질에 대한 반감기를 계산하였다. 샘플의 각 단백질에 대한 단백질 수준의 무겁고 가벼운 동위원소 풍부도 ( 1) Raw Data 시트에 대한 입력)에서 시작하여 백분율 무거운 동위 원소 (Ratio, R이라고 함)가 2) 비율 H |이라는 제목의 시트에서 자동으로 계산됩니다. H + L. 이 단계에서, 무거운 표지된 샘플로부터의 R은 비표지된 샘플로부터 R을 뺀 것에 의해 정규화되어 정동작 및 노화 삼중산물에 대한 최종 R을 생성한다. 표지되지 않은 샘플은 외인성으로 첨가 된 무거운 동위원소를 가져서는 안되기 때문에 배경 신호를 제거하는 데 사용됩니다. R로부터,kdeg (회전율)는 다음 공식을 사용하여 계산된다:
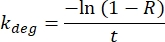
반감기 (H, 일 단위)는 다음 공식을 사용하여 정동작 대조군 및 노인성 삼중항 ( 3) 반감기 (일)라는 제목의 시트)에서 각 단백질에 대해 결정된다.

그런 다음 이러한 반감기는 정동작 및 노화 삼중항 중에서 평균화되어 p-값뿐만 아니라 각 단백질에 대한 정동작 및 노화 평균 반감기를 생성합니다. 그런 다음 계산된 반감기가 음수인 값에 대해 필터링되며, 이는 가벼운 레이블이 지정된 셀(배경)의 무거운 신호가 헤비 레이블이 지정된 셀의 무거운 신호보다 클 때 발생합니다. 이 필터링은 841 개의 707 개의 단백질이 여기에 제시된 결과에 대해 유효한 반감기로 확인되었습니다.
반감기는 정지 대조군 세포 (log2FC )에 대한 노화의 로그 2 비율로보고되고 화산 플롯에 플롯됩니다 (그림 5). 예를 들어, 5) 분석 시트를 살펴보면, 응고 II 트롬빈 수용체(F2R) 단백질은 0.51일의 정동작 세포(컬럼 B)에서 반감기를 가지며, 1.07일의 노화 세포(컬럼 C)에서 반감기가 0.001의 p-값을 갖는 ∼1.06(컬럼 D)의 log2FC를 산출함을 알 수 있다.
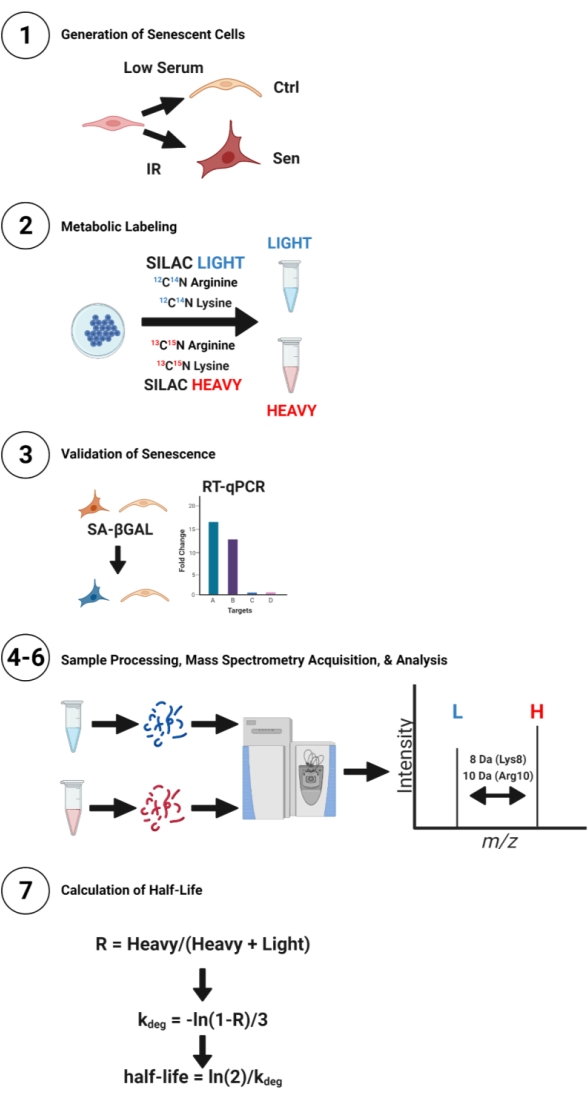
그림 1: 노화 및 정동작 제어 셀에 대한 pSILAC 워크플로우 다이어그램. 인간 IMR-90 섬유아세포를 단백질 반감기의 비교를 위해 정동작(저혈청) 또는 노인성(IR) 세포 배양물을 제조하는데 사용하였다. 이어서, 세포를 3일 동안 동위원소 아르기닌 및 리신으로 SILAC 라이트 또는 SILAC 헤비 배지로 표지하였다. 용해물을 세포로부터 추출하고, 소화시키고, 탈염하고, 질량 분광법을 사용하여 분석하였다. 무거운 펩티드 및 경질 펩티드 동위원소 피크는 각각 새로 합성된 펩티드 및 기존에 상응한다. 반감기는 지수 붕괴에 대한 방정식을 사용하여 계산되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
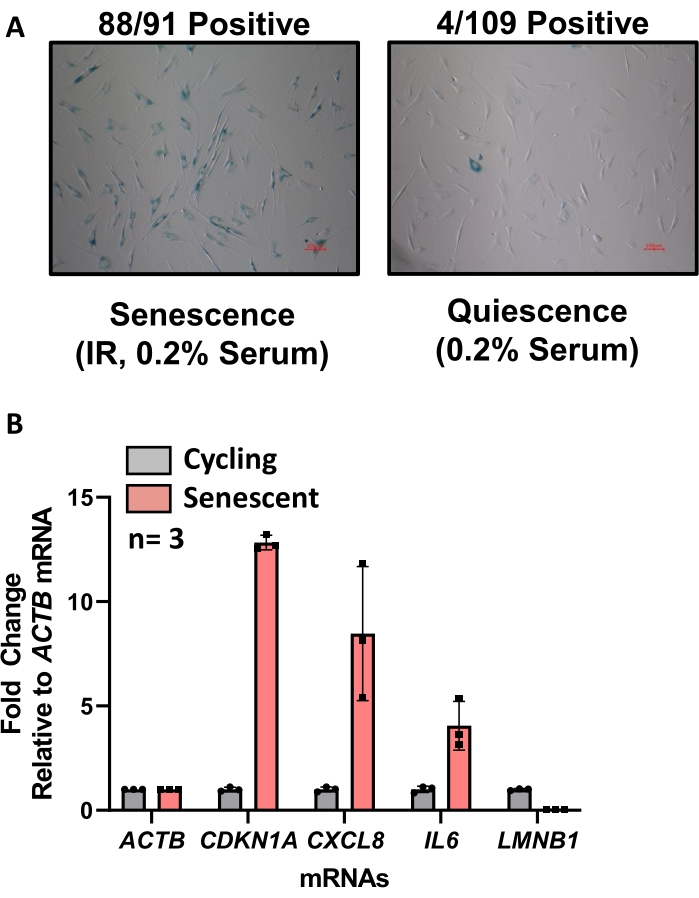
그림 2: SA-βGal 및 RT-qPCR 분석을 사용하여 노인성 표현형의 검증. (A) Senescent 및 정동작 세포는 수확 시에 6-웰 플레이트에 재플레이팅되고 SA-βGal 염색 키트를 사용하여 SA-βGal에 대해 염색된다. 세포 몸의 파란색은 노화에 양성입니다. 이미지는 밝은 필드에서 10x 배율, 빨간색의 크기 마커로 채색됩니다. (b) 관련없는 실험에서 노화 세포 (적색)와 사이클링 세포 (회색)를 비교하는 RT-qPCR 분석. CDKN1A/p21, CXCL8 및 IL6 mRNA의 수준의 증가는 LMNB1 mRNA 수준의 감소와 마찬가지로 노화를 나타낸다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
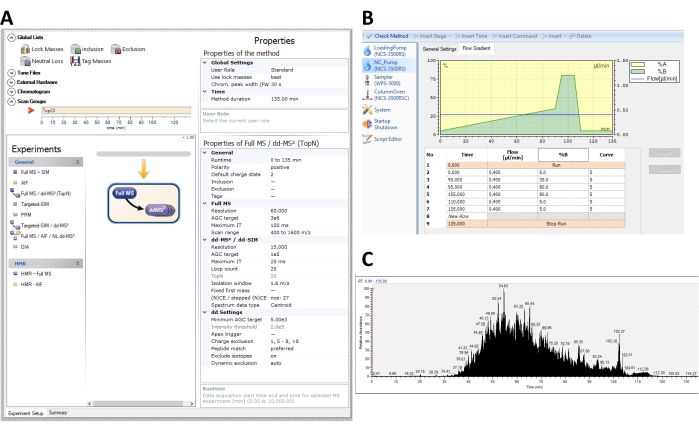
그림 3: Q-Exactive HF 오비랩 질량분석기에서 pSILAC 배양물의 데이터 의존적 수집(DDA) 스캔 및 액체 크로마토그래피 구배를 위한 대표적인 방법. (A) pSILAC 실험에서 전체 세포 용해물의 데이터 의존적 분석을 위한 계측기 소프트웨어의 권장 기기 설정. (b) 액체 크로마토그래피 유동 구배 방법 설정의 예. 펩티드는 5% 내지 35% 완충액 B (0.2% 포름산 및 99.8% 아세토니트릴)의 범위의 90분 선형 구배에 걸쳐 용출되고, 이어서 80% 완충액 B로 10분 세척하고, 5% 완충액 B로 25분간 평형화시킨다. (C) 명시된 설정으로 획득된 IMR-90 섬유아세포 펩티드의 질량 분광분석법 획득의 대표적인 총 이온 크로마토그램(TIC). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
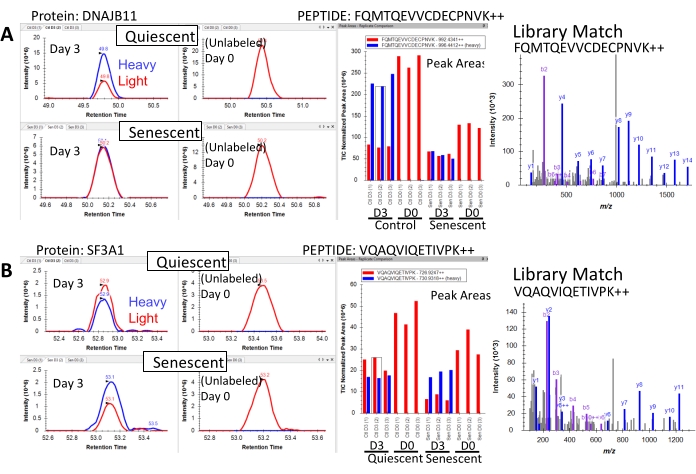
도 4: 노화 동안 변화된 턴오버를 갖는 펩티드의 대표적인 추출된 이온 크로마토그램 . (A) 노화 및 비노화 세포에서 단백질 DnaJ 상동체 B 구성원 11(DNAJB11)로부터의 펩티드 FQMTQEVVCDECPNVK++의 크로마토그래피 피크 영역. SILAC의 3일 후, 노화 세포는 경질 펩티드(적색)에 비해 무거운 동위원소 함유 펩티드(청색)의 피크 면적의 감소에 의해 나타난 바와 같이, 정동작(non-senescent) 세포와 비교하여 이 펩티드 내로 덜 무거운 동위원소를 통합하는데, 이는 이 펩티드가 노화 세포에서 턴오버를 감소시켰다는 것을 나타낸다. (b) 노화 및 비노화 세포에서 단백질 스플라이싱 인자 3a 서브유닛 1 (SF3A1)로부터의 펩티드 VQAQVIQETIVPK++의 크로마토그래피 피크 영역. SILAC의 3일 후, 노화 세포는 경질 펩티드(적색)에 비해 무거운 동위원소 함유 펩티드(청색)의 피크 면적의 감소에 의해 나타난 바와 같이, 정동작(non-senescent) 세포와 비교하여 이 펩티드 내로 더 높은 비율의 무거운 동위원소를 통합하는데, 이는 이 펩티드가 노화 세포에서 턴오버를 증가시켰다는 것을 나타낸다. 표지되지 않은 (Day 0) 조건은 예상한 바와 같이 두 펩티드 모두에 대한 무거운 동위원소의 혼입이 없음을 보여준다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
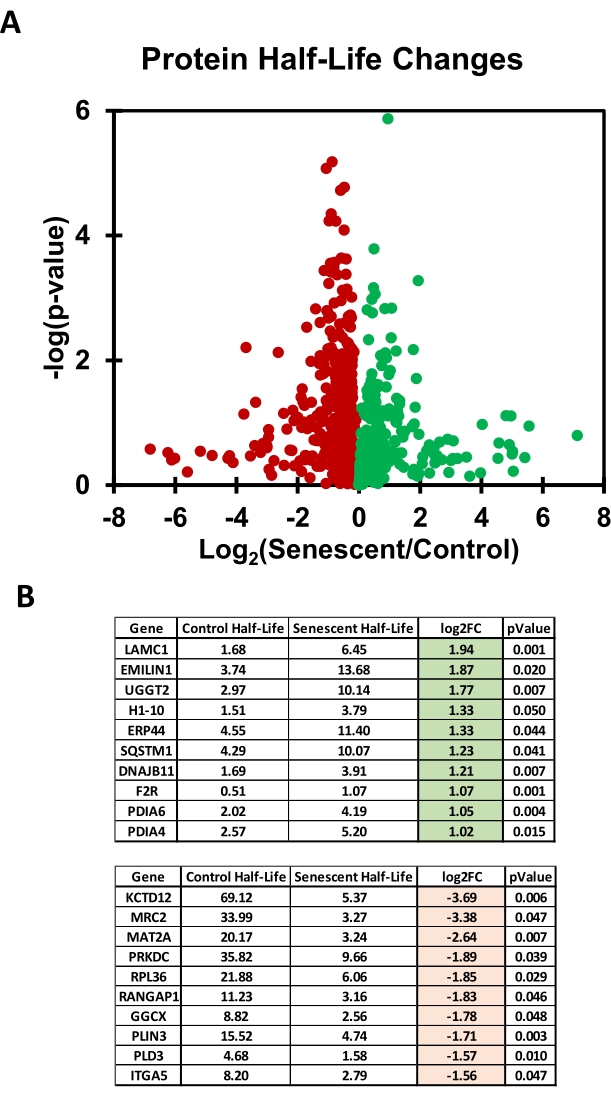
도 5: pSILAC 표지로부터 결정된 노화 및 정동작 세포에서의 단백질 반감기의 비교. (a) 확인된 695개의 단백질 각각에 대한 노화/대조군(quiescent)의 로그2 비율을 표시하는 화산 플롯; 이 실험에서, 경량 및 중질 라벨링 배지는 글루코스와 페놀 레드를 함유하지 않았다. (B) 정지 세포 대 노인성 세포에서 반감기가 가장 많이 증가하거나 감소한 상위 10개 단백질을 보여주는 표(각각 왼쪽 및 오른쪽). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
표 1: 이 프로토콜에 사용되는 미디어 및 버퍼. 이 테이블을 다운로드하려면 여기를 클릭하십시오.
표 2: 이 프로토콜에 사용된 RT-qPCR 프라이머. 이 테이블을 다운로드하려면 여기를 클릭하십시오.
표 3: 단백질 반감기, 접이식 변화 및 t-테스트 계산을 위한 SILAC 분석 통합 문서. 이 테이블을 다운로드하려면 여기를 클릭하십시오.
토론
pSILAC는 여러 세포 조건에서 단백질 회전율의 글로벌 정량화를 가능하게 하는 강력한 기술입니다. 이 논문은 노화 및 정동작 세포의 준비, SILAC 라벨링 및 수확, 궁극적으로 DDA 질량 분광법을 사용한 분석을 포함하여 노화 및 정지 세포 사이의 글로벌 단백질 반감기를 비교하기 위해 pSILAC의 사용에 대해 자세히 설명합니다. 추가적으로, 노화 관련 단백질을 코딩하는 mRNA의 패널의 SA-βGal 및 RT-qPCR 분석을 사용하여 노화 표현형의 검증을 위한 두 단계 검정이 기술된다. 기술된 두 가지 접근법을 통한 노화의 검증 외에도, 프로테오믹 수준에서 노화 및 정지 세포 사이의 공지된 노화 마커의 변화를 조사함으로써 질량 분광법 분석에 이어 노화의 세 번째 검증을 수행할 수 있다. 상승될 것으로 예상되는 노화-관련 단백질은 p16, p21, 및 BCL2를 포함하며, 다른 것들 중에서도, 다른 곳에서 기술된44,45. 상기 기술된 프로토콜에서, 이온화 방사선은 정지 세포에 대한 노화 및 혈청 기아의 유도를 위해 사용되었다. 노화의 유도를 위해, 이용 가능한 여러 가지 옵션이 있으며, 그들 중 실질적인 이질성이41,42,46이다. 현재 "가장 생리적"으로 간주되는 노화 방법은 없으므로 노인성 유도제의 선택은 주로 실험의 맥락에 기반합니다. 그러나 노화에 대한 일반적인 현상을 진술하는 것을 목표로하는 실험은 적어도 두 개의 다른 노화 유도제를 사용하는 것이 좋습니다. 노화 패러다임의 범위를 논의하는 것은이 논문의 범위를 벗어나지 만, 노화를 유도하는 몇 가지 일반적인 방법에는 DNA 손상 유발 (IR, 독소루비신, 복제 고갈), 발암 단백질 발현 (HRAS, BRAF) 및 미토콘드리아 기능 파괴2가 포함됩니다.
노화 유도제의 선택 이외에, 대조군 세포의 선택은 똑같이 중요한 고려 사항이다. 노인성 세포는 정의에 따라 무기한 성장 정지하에 있으므로 다른 성장 정지 세포와의 비교가 종종 선택됩니다. pSILAC의 경우, 세포 주기 정지된 세포는 복제되지 않고 따라서 단백질 반감기 계산(47)에 사용하기가 더 쉽기 때문에 일반적으로 바람직하다. 그러나, 배양된 세포는 종종 일부 분열 세포를 보유할 것이기 때문에, 세포 주기 정지를 유도하기 위해 사용되는 방법들이 여전히 증식하고 있는 세포로부터의 오류를 최소화하기 위해 가능한 한 동질적인 반응으로서 생산을 정지시키는 것이 중요하다. pSILAC를 사용하여 사이클링 세포에 대한 단백질 분해 속도를 계산하려면 단백질이 딸 세포(27)로 희석되는 속도를 보상하기 위한 추가적인 계산이 필요하다. 그러나 정동작 성장 정지 자체는 합병증이없는 것은 아닙니다. 세포 주기 정지를 위한 두 가지 일반적인 방법이 있다: 혈청 박탈과 접촉 억제(48). 모든 세포가 접촉 억제를 통해 정지될 수 있는 것은 아니지만, 일부 섬유아세포는 배양49일의 며칠 후에 정지를 입증하는 것으로 나타났다. 이 방법은 노인성 세포의 비교에 더 일반적으로 사용되기 때문에 혈청 박탈을 사용했지만, 정확한 비교를 위해 노인 세포가 유사하게 혈청 박탈 될 것을 요구한다. 혈청은 mTOR 복합체를 활성화시키고, 따라서 혈청 박탈은 세포 주기 정지(50) 이외에 세포에 대한 몇 가지 하류 효과를 갖는다. 주목할 만하게, 노년기 세포는 혈청 박탈 또는 mTOR 억제시 감소된 SASP를 나타내는 것으로 나타났다51,52.
pSILAC에서 고려해야 할 또 다른 중요한 점은 테스트 할 시간 포인트의 수입니다. 이 프로토콜은 단일 시점 (경량 또는 무거운 표지의 3 일)에서 세포를 수집하여 결과 분석을 실질적으로 단순화합니다. 시점의 선택은 실험의 목적을 기반으로해야합니다. 글로벌 분석의 경우 3 일 동안 대부분의 단백질을 포획 할 것으로 예상되지만 3 일 이내에 완전히 회전하는 단기 단백질의 반감기 (모든 빛 신호가 손실됨)는이 시점에서 측정 할 수 없습니다. 반대로, 3 일 동안 회전율이 거의없는 수명이 긴 단백질은 정량화하기가 어렵고 종종 매우 큰 반감기 (주 순서로)를 갖는 것으로 나타나며, 이는 일반적으로 매우 적은 신호 축적의 결과 일뿐입니다. 더 짧고 긴 시점에서, 새로 합성된 단백질의 백분율 대 무거운 펩티드 및 경질 펩티드 신호의 비율에서의 비선형 관계로 인해, 반감기의 정량화는 추가적인 라벨링 시점들을 추가함으로써 개선될 수 있었다. 이 프로토콜에서와 같이 두 세포 상태 간의 상대적 비교를 위해, 대략적인 반감기로 충분할 수 있지만, 정량적 정확도를 향상시키기 위해 추가적인 시간점을 사용할 수 있다.
이 프로토콜은 단백질 회전율의 비표적 DDA 기반 분석을 수행하는 방법을 설명합니다. 그러나, 단백질 턴오버 계산은 일반적으로 무겁고 가벼운 펩티드 쌍의 상대적 풍부도를 유도할 수 있는 임의의 획득 스킴에 적용될 수 있다. 예를 들어, 데이터 독립적 획득(DIA/SWATH)과 같은 MS2-기반 방법들이 또한 성공적으로 회전율(53)의 계산을 위해 적용될 수 있다. 추가적으로, 이 프로토콜에 기술된 것 이외의 계측 및 소프트웨어 파이프라인은 DDA 분석, 단백질 식별 및 단백질 정량화를 수행하는 데 사용될 수 있다. Skyline과 같은 단백질 정량 소프트웨어 플랫폼을 사용하여 펩티드 피크 영역을 추출하는 경우 문서 작업 공간에서 추출 된 이온 크로마토 그램을 수동으로 검사하고 잘못 통합 된 피크와 비 정량적 피크를 식별하고 그에 따라 문서를 큐레이팅하는 것이 좋습니다. 광범위한 튜토리얼 컬렉션은 스카이 라인 (skyline.ms)에 대한 온라인으로 제공됩니다.
pSILAC는 우수한 멀티플렉싱(프로테옴 커버리지) 및 처리량으로 인해 배양된 세포에서 단백질 반감기의 글로벌 정량화를 위한 가장 이상적인 방법 중 하나를 나타낸다. pSILAC는 합성 또는 분해의 직접적인 속도를 제공하지 않지만, 가볍고 무거운 신호의 변화는 인자의 합류로 인한 것이기 때문에, pSILAC는 조건과 상이한 세포 유형 사이의 비교에 매우 유용하다. 낮은 처리량 방법은 종종 두 가지 유형으로 나뉩니다 : 1) 사이클로헥시미드로 세포를 처리하여 부패를 모니터링하기 위해 첨가 후 시간 간격으로 단백질 합성 및 수확을 차단하거나, 2) 단백질 붕괴 억제제로 세포를 처리하고 단백질 축적을 모니터링하여 단백질 붕괴율을 추론합니다. 두 방법의 한계는 그러한 치료가 필연적으로 세포 생리학에 상당한 변화를 일으킬 것이라는 것입니다. 대조적으로, pSILAC는 실질적인 개입을 필요로하지 않으며 동위원소 아미노산이 그들의 비 동위원소 대응물과 단 하나의 중성자에 의해서만 다르기 때문에 이론적으로 세포 생리학에 검출 가능한 영향을 미치지 않습니다. 따라서, pSILAC에 대해 여기에 기술된 방법은 비분할 세포에서 가장 생리적인 단백질 반감기의 글로벌 측정을 위한 간단한 프로토콜을 나타낸다.
단백질 회전율의 변화는 노화, 연령 관련 질병, 신경 변성 및 장수54,55와 밀접한 관련이 있습니다. 이 프로토콜은 노화 세포에서 단백질 회전율을 측정하기 위해 세포 배양물에서 아미노산의 안정한 동위원소 표지를 사용하여 이러한 관계를 조사하는 방법을 설명합니다. 그러나, 마우스와 같은 전체 유기체에서 생체 내에서 노화 및 신경 변성의 맥락에서 연구를 수행하기 위해 수많은 유사한 방법이 존재한다. 실제로,이 연구는 연령 관련 질병 56,57,58,59의 맥락에서 단백질 회전율을 측정하는 것이 중요하다는 것을 강조했습니다.
이 연구에서, 소포체에 상주하는 리보솜 단백질과 단백질은 각각 노년기 세포에서 반감기가 감소하고 증가한 두 가지 범주의 단백질로 두드러졌다. 확실한 결론을 내리기 위해서는 정상 상태 수준의 추가 분석이 필요하지만, 이러한 결과는 노쇠한 세포가 리보솜 단백질의 반감기 감소를 통해 번역을 고유하게 조절할 수 있음을 시사합니다. 앞으로, 마우스 모델 에서 생체 내에서 세포 노화와 신경변성 사이의 관계를 연구하기 위해 안정한 동위원소 표지 접근법을 적용하는 것은 이러한 프로토콜에 의해 설명된 동위원소 표지 접근법의 유망한 확장이 될 것이다.
공개 사항
저자는 공개가 없습니다.
감사의 글
이 연구는 NIH (National Institutes of Health)와 IRP (Intramural Research Program), National Institute on Aging (NIA)의 지원을 받았습니다. N.B.는 Longevity Impetus Grants와 Office of Dietary Supplements (ODS) Scholars Program의 지원을 받았습니다. 그림 1은 BioRender.com 로 작성되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 아세토니트릴(LC-MS 등급) | Grainger | AH015 | |
| Ammonium Bicarbonate | Millipore-Sigma | 9830 | |
| Antibiotic-Antimycotic (100x) | ThermoFisher | 15240062 | |
| BCA Assay Kit | ThermoFisher | 23227 | |
| Dithiothreotol (DTT) | Sigma | D9779 | |
| DMEM, 고포도당, HEPES | ThermoFisher | 12430112 | |
| dNTP Mix | ThermoFisher | R0191 | |
| Fetal Bovine Serum, 인증, 열 비활성화 | ThermoFisher | 10082147 | |
| Formic Acid | Sigma | 27001 | |
| Gammacel 40 Exactor | Best Theratronics | 세포용 세슘 조사기 | |
| GlycoBlue | ThermoFisher | AM2238 | |
| 요오드아세트아미드(IAA) | Sigma | I1149 | 감광성 |
| IMR-90 일차 폐 섬유아세포 | ATCC | CCL-186 | |
| iRT 키트(인덱스 머무름 시간) | Biognosys | Ki-3002-2 | 인덱스 머무름 시간 펩타이드 표준 |
| 이소프로판올 | ThermoFisher | 423835000 | |
| 마스코트 | 매트릭스 사이언 | 스Mascot Daemon 2.8 | 단백질체 데이터베이스 검색 소프트웨어 |
| Maxima Reverse Transcritase (200 U/µ L) | ThermoFisher | EP0742 | |
| MEM 비필수 아미노산 용액(100x) | ThermoFisher | 11140050 | |
| 나노 LC 시스템 | ThermoFisher | ULTIM3000RSLCNANO | |
| Oasis HLB 고체상 추출 Cartirdges | Waters | 186000383 | |
| Orbitrap 질량분석기 | ThermoFisher | Q Exactive HF Orbitrap | |
| 페놀/클로로포름/이소아밀 알코올 (25:24:1), 100 mM EDTA, pH 8.0 | ThermoFisher | 327110025 | |
| 인산염 완충 식염수(PBS) | ThermoFisher | 10010023 | |
| Pierce SILAC 단백질 정량 분석 키트(트립신) -DMEM | ThermoFisher | A33972 | |
| QuantStudio 6 Real-Time PCR 시스템 | ThermoFisher | ||
| 랜덤 헥사머 프라이머 | ThermoFisher | SO142 | |
| 노화 &베타;-갈락토시다아제 염색 키트 | 세포 신호 | 9860 | |
| Skyline | University of Washington | Skyline-Daily v21.2.1.424 | 무료 및 오픈 소스 qantiative 단백질체학 소프트웨어. |
| www.skyline.ms Sonicator 수조 | Branson | CPX-952-516R | |
| TRIzol 시약 | ThermoFisher | 15596018 | 텍스트에서 페놀이라고 함; 위험한 |
| TRYPle Express | ThermoFisher | 12605010 | |
| Trypsin (시퀀싱 등급) | Promega | V5113 | |
| TURBO Dnase (2U/ uL) | ThermoFisher | AM2238 | |
| 요소 | ThermoFisher | 29700 | |
| 물(LC-MS 등급) | Grainger | AH365 |
참고문헌
- Hayflick, L. The cell biology of aging. Journal of Investigative Dermatology. 73 (1), 8-14 (1979).
- Gorgoulis, V., et al. Cellular senescence: Defining a path forward. Cell. 179 (4), 813-827 (2019).
- Borghesan, M., Hoogaars, W. M. H., Varela-Eirin, M., Talma, N., Demaria, M. A senescence-centric view of aging: Implications for longevity and disease. Trends in Cell Biology. 30 (10), 777-791 (2020).
- Martinez-Cue, C., Rueda, N. Cellular senescence in neurodegenerative diseases. Frontiers in Cellular Neuroscience. 14, 16(2020).
- Wissler Gerdes, E. O., et al. Cellular senescence in aging and age-related diseases: Implications for neurodegenerative diseases. International Review of Neurobiology. 155, 203-234 (2020).
- Baker, D. J., Petersen, R. C. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. Journal of Clinical Investigation. 128 (4), 1208-1216 (2018).
- Musi, N., et al. Tau protein aggregation is associated with cellular senescence in the brain. Aging Cell. 17 (6), 12840(2018).
- Ogrodnik, M., et al. Obesity-induced cellular senescence drives anxiety and impairs neurogenesis. Cell Metabolism. 29 (5), 1061-1077 (2019).
- Chow, H. M., et al. Age-related hyperinsulinemia leads to insulin resistance in neurons and cell-cycle-induced senescence. Nature Neuroscience. 22 (11), 1806-1819 (2019).
- Dehkordi, S. K., et al. Profiling senescent cells in human brains reveals neurons with CDKN2D/p19 and tau neuropathology. Nature Aging. 1, 1107-1116 (2021).
- Chinta, S. J., et al. Cellular senescence is induced by the environmental neurotoxin paraquat and contributes to neuropathology linked to Parkinson's disease. Cell Reports. 22 (4), 930-940 (2018).
- Bussian, T. J., et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline. Nature. 562 (7728), 578-582 (2018).
- Zhang, P., et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nature Neuroscience. 22 (5), 719-728 (2019).
- Selkoe, D. J., Hardy, J. The amyloid hypothesis of Alzheimer's disease at 25 years. EMBO Molecular Medicine. 8 (6), 595-608 (2016).
- Wei, Z., et al. Amyloid beta protein aggravates neuronal senescence and cognitive deficits in 5xfad mouse model of Alzheimer's disease. Chinese Medical Journal (England). 129 (15), 1835-1844 (2016).
- He, N., et al. Amyloid-beta(1-42) oligomer accelerates senescence in adult hippocampal neural stem/progenitor cells via formylpeptide receptor 2. Cell Death & Disease. 4 (11), 924(2013).
- van Dijk, K. D., et al. Changes in endolysosomal enzyme activities in cerebrospinal fluid of patients with Parkinson's disease. Movement Disorders: Offical Journal of Movement Disorder Society. 28 (6), 747-754 (2013).
- Chinta, S. J., et al. Environmental stress, ageing and glial cell senescence: a novel mechanistic link to Parkinson's disease. Journal of Internal Medicine. 273 (5), 429-436 (2013).
- Coppe, J. P., et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor. PLoS Biology. 6 (12), 2853-2868 (2008).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Patholology. 5, 99-118 (2010).
- Acosta, J. C., et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nature Cell Biology. 15 (8), 978-990 (2013).
- Payea, M. J., Anerillas, C., Tharakan, R., Gorospe, M. Translational control during cellular senescence. Molecular and Cellular Biology. 41 (2), 00512(2021).
- Nishimura, K., et al. Perturbation of ribosome biogenesis drives cells into senescence through 5S RNP-mediated p53 activation. Cell Reports. 10 (8), 1310-1323 (2015).
- Lessard, F., et al. Senescence-associated ribosome biogenesis defects contributes to cell cycle arrest through the Rb pathway. Nature Cell Biology. 20 (7), 789-799 (2018).
- Xu, M., et al. Senolytics improve physical function and increase lifespan in old age. Nature Medicine. 24 (8), 1246-1256 (2018).
- Wiley, C. D., et al. SILAC Analysis reveals increased secretion of hemostasis-related factors by senescent cells. Cell Reports. 28 (13), 3329-3337 (2019).
- Schwanhausser, B., et al. Global quantification of mammalian gene expression control. Nature. 473 (7347), 337-342 (2011).
- Doherty, M. K., Hammond, D. E., Clague, M. J., Gaskell, S. J., Beynon, R. J. Turnover of the human proteome: determination of protein intracellular stability by dynamic SILAC. Journal of Proteome Research. 8 (1), 104-112 (2009).
- Riba, A., et al. Protein synthesis rates and ribosome occupancies reveal determinants of translation elongation rates. Proceedings of the National Academy of Sciences of the United States of America. 116 (30), 15023-15032 (2019).
- Mathieson, T., et al. Systematic analysis of protein turnover in primary cells. Nature Communications. 9 (1), 689(2018).
- Liu, T. Y., et al. Time-resolved proteomics extends ribosome profiling-based measurements of protein synthesis dynamics. Cell Systems. 4 (6), 636-644 (2017).
- Welle, K. A., et al. Time-resolved analysis of proteome dynamics by tandem mass tags and stable isotope labeling in cell culture (TMT-SILAC) hyperplexing. Molecular & Cellular Proteomics: MCP. 15 (12), 3551-3563 (2016).
- Neri, F., Basisty, N., Desprez, P. Y., Campisi, J., Schilling, B. Quantitative proteomic analysis of the senescence-associated secretory phenotype by data-independent acquisition. Current Protocols. 1 (2), 32(2021).
- Hernandez-Segura, A., Brandenburg, S., Demaria, M. Induction and validation of cellular senescence in primary human cells. Journal of Visualized Experiments: JoVE. (136), e57782(2018).
- Noren Hooten, N., Evans, M. K. Techniques to Induce and quantify cellular senescence. Journal of Visualized Experiments: JoVE. (123), e55533(2017).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-βgal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Hernandez-Segura, A., Rubingh, R., Demaria, M. Identification of stable senescence-associated reference genes. Aging Cell. 18 (2), 12911(2019).
- MacLean, B., et al. Skyline: an open source document editor for creating and analyzing targeted proteomics experiments. Bioinformatics. 26 (7), 966-968 (2010).
- Pino, L. K., et al. The Skyline ecosystem: Informatics for quantitative mass spectrometry proteomics. Mass Spectrometry Reviews. 39 (3), 229-244 (2020).
- Casella, G., et al. Transcriptome signature of cellular senescence. Nucleic Acids Research. 47 (14), 7294-7305 (2019).
- Basisty, N., et al. A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biology. 18 (1), 3000599(2020).
- Perkins, D. N., Pappin, D. J., Creasy, D. M., Cottrell, J. S. Probability-based protein identification by searching sequence databases using mass spectrometry data. Electrophoresis. 20 (18), 3551-3567 (1999).
- Hernandez-Segura, A., Nehme, J., Demaria, M. Hallmarks of cellular senescence. Trends in Cell Biology. 28 (6), 436-453 (2018).
- Kohli, J., et al. Algorithmic assessment of cellular senescence in experimental and clinical specimens. Nature Protocols. 16 (5), 2471-2498 (2021).
- Hernandez-Segura, A., et al. Unmasking transcriptional heterogeneity in senescent cells. Current Biology: CB. 27 (17), 2652-2660 (2017).
- Swovick, K., et al. Interspecies differences in proteome turnover kinetics are correlated with life spans and energetic demands. Molecular & Cellular Proteomics: MCP. 20, 100041(2021).
- Marescal, O., Cheeseman, I. M. Cellular mechanisms and regulation of quiescence. Developmental Cell. 55 (3), 259-271 (2020).
- Lacorazza, H. D. Cellular Quiescence. , Springer, Humana Press. New York. (2018).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
- Herranz, N., et al. mTOR regulates MAPKAPK2 translation to control the senescence-associated secretory phenotype. Nature Cell Biology. 17 (9), 1205-1217 (2015).
- Laberge, R. M., et al. MTOR regulates the pro-tumorigenic senescence-associated secretory phenotype by promoting IL1A translation. Nature Cell Biology. 17 (8), 1049-1061 (2015).
- Pino, L. K., Baeza, J., Lauman, R., Schilling, B., Garcia, B. A. Improved SILAC quantification with data-independent acquisition to investigate Bortezomib-induced protein degradation. Journal of Proteome Research. 20 (4), 1918-1927 (2021).
- Basisty, N., Meyer, J. G., Schilling, B. Protein turnover in aging and longevity. Proteomics. 18 (5-6), 1700108(2018).
- Basisty, N., Holtz, A., Schilling, B. Accumulation of "Old Proteins" and the critical need for MS-based protein turnover measurements in aging and longevity. Proteomics. 20 (5-6), 1800403(2020).
- Basisty, N., et al. Mitochondrial-targeted catalase is good for the old mouse proteome, but not for the young: 'reverse' antagonistic pleiotropy. Aging Cell. 15 (4), 634-645 (2016).
- Dai, D. F., et al. Altered proteome turnover and remodeling by short-term caloric restriction or rapamycin rejuvenate the aging heart. Aging Cell. 13 (3), 529-539 (2014).
- Karunadharma, P. P., et al. Subacute calorie restriction and rapamycin discordantly alter mouse liver proteome homeostasis and reverse aging effects. Aging Cell. 14 (4), 547-557 (2015).
- Basisty, N. B., et al. Stable isotope labeling reveals novel insights into ubiquitin-mediated protein aggregation with age, calorie restriction, and rapamycin treatment. The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences. 73 (5), 561-570 (2018).
재인쇄 및 허가
