조산(37주 분만)은 최적이 아닌 예방 및 치료 옵션이 있는 긴급한 글로벌 건강 문제< 있습니다. 우리는 상행 질 세균 감염으로 인한 조산의 마우스 모델을 제시하고 그 결과 신생아 이환율과 사망률을 분석하는 방법을 간략하게 설명합니다.
이 논문에서
요약
초록
조산은 예방 요법이 제한되어 있는 전 세계적으로 신생아 사망률과 이환율의 주요 원인으로 계속 남아 있습니다. 임상적으로 절실히 필요합니다.
혁신적인 개입의 번역을 위한 관련성 있고 재현 가능한 동물 모델
현실이 되기 위해. 조산의 다양한 마우스 모델이 존재합니다. 그러나 그들은 신경병리학적 변화와
상행 감염 및 조산의 특징적인 후유증인 폐 손상. 우리는 우리가 아는 한, 질에서 올라가는 살아있는 박테리아에 의해 조산을 유도한 후 이러한 신생아 이환율이 존재하는 인간 시나리오를 모방하는 유일한 모델을 특성화했습니다. 이 논문은 대 장균 의 생물발광 균주의 질내 투여를 보여주고 면역조직화학 및 조직학 기술을 사용하여 신경병리학적 결과 및 폐 손상의 평가를 자세히 설명합니다.
서론
조산(PTB, 분만 < 37주)은 전 세계적으로 신생아 사망률의 주요 원인입니다 1,2. 전체 출생의 11%를 차지하는 이 질병은 잘 이해되지 않은 복잡한 병인을 지닌 주요 글로벌 건강 문제입니다 3,4,5. PTB의 신생아 생존자는 뇌성마비, 기관지폐 이형성증(BPD)과 같은 호흡기 질환, 괴사성 소장결장염(NEC)과 같은 위장 장애를 포함한 불리한 신경 발달 결과를 경험할 수 있습니다6,7,8. 따라서 PTB에 기여하는 생물학적 경로를 다루고 혁신적인 개입을 개발하기 위해 임상적으로 관련성이 있고 재현 가능한 동물 모델이 시급히 필요합니다.
탈락막 노화, 산모-태아 내약성 붕괴, 스트레스, 짧은 자궁경부 길이 또는 자궁경부 손상과 같은 자발적 PTB의 기저에 있는 여러 가지 가능한 메커니즘이 있습니다9. 그러나 자발적인 PTB의 최소 40%는 미생물 감염과 관련이 있는 것으로 보고되었습니다10,11. 질관에서 자궁경부를 통해 자궁으로 올라가는 미생물은 양수에서 분리된 미생물과 질 미생물군에 상주하는 미생물 사이의 상관관계로 인해 일반적인 감염 경로로 가설이 세워지고 널리 받아들여지고 있습니다 12,13,14. 종종 조산과 관련된 미생물에는 마이코플라스마, 우레아플라스마, 푸소박테리움 및 연쇄상 구균 종이 포함되며 대부분의 경우는 다균입니다15,16.
마우스는 종종 PTB를 모델링하는 데 사용되며, 가장 일반적인 접근 방식은 분만을 시작하는 데 필요한 염증 수준을 유도하기 위해 자궁 내, 복강 내 또는 양막 내 경로를 통해 전달될 수 있는 박테리아 독소 지질다당류(LPS)의 투여입니다17. 그러나 LPS는 살아있는 미생물 감염을 모델링하지 않으며, 중요한 것은 LPS가 태아 사망을 유도하기 때문에 이러한 모델에서 신생아 결과를 측정할 수 없다는 것입니다18. 최근 몇 년 동안 상승성 질 세균 감염의 동물 모델이 개발되었지만 조산과 관련 신생아 결과를 모두 요약하는 것은 어려운 일이었습니다19,20,21,22,23,24.
우리 그룹은 인간 PTB25의 병태생리학을 요약하는 상승성 질 세균 감염, 조산 및 신생아 이환율의 새로운 모델을 확립했습니다. 여기에서는 병원성 대 장균 (E. 대장균) 인간 신생아 수막염과 관련된 균주. 이 모델은 상행 감염의 병태생리학을 탐구할 수 있는 독특한 기회를 제공할 뿐만 아니라 신생아 결과를 개선하는 데 있어 조산 개입의 효과를 평가할 수 있는 수단을 제공합니다.
프로토콜
절차는 동물 과학 절차법(1986) 및 ARRIVE 지침에 따라 영국 내무부 라이센스(PAD4E6357)에 따라 수행되었습니다. 온도(19-23°C), 습도(~55%) 및 12시간의 빛/암흑 주기를 엄격하게 제어했습니다. 처녀 암컷 C57BL/6 Tyrc-2J 마우스(6-12주)를 16-18시간 동안 밤새 시간 짝짓기를 했습니다. 교미 플러그의 증거는 배아일(E) 0.5로 지정되었습니다.
병원성 대장균 O18:K1(A192PP)26, A192(DSM. No. 10719)27은 선충 공생체 Photorhabdus Luminescens ATCC29999(Hb 균주)에서 유래하고 카나마이신 내성 카세트(Km2)28를 포함하는 럭스 오페론(luxCDABE)을 포함하도록 변형되었습니다. 이 균주는 영국 정부 위험 병원체 자문 위원회(ACDP)에 의해 위험 그룹 2로 분류됩니다. 생물학적 제제를 취급하고 폐기할 때 적절한 개인 보호 장비(PPE)를 착용하고 현지 지침을 따르십시오.
1. 상행 질 세균 감염의 마우스 모델
- 대장균 배양액의 준비
- 분말을 증류수(dH2O)에 녹여 20% 용액을 만들고 오토클레이브를 만들어 Luria-Bertani(LB) 국물을 준비합니다. LB가 실온으로 냉각되면 50μg/mL 카나마이신을 첨가합니다. 4°C에서 최대 1주일 동안 보관하십시오.
- 멸균 인산염 완충 식염수(PBS)에 고체를 용해시켜 20% Pluronic 겔 F127 용액을 준비합니다. Vortex를 사용하여 밤새 4°C에서 혼합하고 교반합니다.
- 항생제 처리된 LB 국물 10mL를 멸균 30mL 범용 용기에 넣습니다. -80°C 보관에서 대 장균 의 냉동 글리세롤 스톡을 제거합니다. 멸균 피펫 팁을 사용하여 대 장균의 냉동 글리세롤 스톡을 긁어내어 팁 끝을 가볍게 코팅하고 팁을 LB 국물에 직접 배출합니다. 범용 용기를 파라필름으로 고정하고 생물학적 위험으로 표시한 다음 37°C에서 밤새 (200rpm) 궤도 셰이커에 넣습니다.
- 다음날 아침, 박테리아 배양액을 1:100(배양액 0.1mL + 신선한 LB 국물 9.9mL)으로 희석하고 1.5-3시간(37°C에서 200rpm) 동안 궤도 셰이커에 되돌려 600nm에서 흡광도를 측정하여 배양액의 성장을 정기적으로 확인합니다. 배양액 100μL를 투명하고 바닥이 평평한 96웰 플레이트에 이중으로 피펫팅합니다. 경로 길이 보정이 활성화된 분광 광도계에서 흡광도를 측정합니다. 0.5에서 0.7 사이의 OD600 은 성장의 중간 로그 단계를 나타냅니다.
- OD600 0.5-0.7에 도달하면(~108-9 콜로니 형성 단위[CFU]), 박테리아 배양에서 100μL를 제거하고 멸균 PBS 900μL로 희석합니다. 14,000 × g 에서 1분 동안 원심분리하여 박테리아 펠릿을 세척하고 LB 국물을 제거합니다. 상청액을 제거하고 박테리아 펠릿을 멸균 PBS에 재현탁한 다음 멸균 PBS에서 1:10,000(102-3 CFU)로 희석합니다.
- 폐기 전에 박테리아에 노출된 모든 팁과 용기를 소독하십시오.
- 마취
- E16.5에서 이소플루란(유도의 경우 5%, 산소 유지의 경우 1.5%)을 흡입하여 임신한 마우스를 마취합니다. 마취의 흐름을 전달한 다음 동물을 노즈콘으로 옮기고 암컷을 엎드린 자세로 눕힙니다. 발가락 꼬집기 반사가 없어 마취를 확인하고 이소플루란을 시술에 필요한 최소 비율로 유지합니다.
주의: 이소플루란은 눈과 피부를 자극하고 중추신경계에 독성을 주는 물질입니다. 적절한 PPE를 착용하십시오. 항상 청소 시스템을 사용하십시오. - 멸균 200μL 피펫 팁을 사용하여 20μL의 중로그상 대장균 (멸균 PBS에 재현탁된 1 × 10²-3 CFU) 또는 멸균 PBS(비히클 대조군)를 질에 투여합니다(그림 1). 신선한 멸균 200μL 피펫 팁을 사용하여 20μL의 20% Pluronic 겔 F127 겔을 질에 전달하여 박테리아 누출을 방지합니다. 멸균 거즈를 사용하여 퀴닌 분말을 입구에 두드려 쥐가 박테리아 현탁액을 청소하는 것을 방지합니다. 치료 날짜와 시간을 기록하십시오.
참고: 사용된 CFU는 원하는 표현형(살아있는 새끼를 사용한 조산)을 달성하기 위한 적정 실험을 기반으로 했습니다. CFU는 LB 한천 플레이트(29)에 연속 희석 및 도금을 수행함으로써 결정될 수 있다. - 개별 환기 케이지(IVC)에 동물을 단독으로 가두어 케이지를 수용실로 되돌리기 전에 마취에서 회복할 수 있도록 합니다. 케이지를 생물학적 위험으로 명확하게 표시하십시오. 정상적인 행동이 재개될 때까지 동물을 모니터링하십시오.
참고: 이 절차는 5분 이상 걸리지 않아야 하며 동물은 빠르게 회복되어야 합니다(2-5분 이내).
- E16.5에서 이소플루란(유도의 경우 5%, 산소 유지의 경우 1.5%)을 흡입하여 임신한 마우스를 마취합니다. 마취의 흐름을 전달한 다음 동물을 노즈콘으로 옮기고 암컷을 엎드린 자세로 눕힙니다. 발가락 꼬집기 반사가 없어 마취를 확인하고 이소플루란을 시술에 필요한 최소 비율로 유지합니다.
- 임신 결과 측정
- 각 케이지 외부에 하나의 카메라를 부착하여 CCTV를 설치하여 쥐의 분만 및 강아지 분만의 징후를 모니터링합니다. 분만까지 걸린 시간을 대 장균 또는 PBS의 질내 투여 시점(단계 1.2.2)부터 첫 번째 강아지의 분만까지의 시간으로 기록합니다.
- 분만 시 살아있는/죽은 새끼의 수를 기록하고 새끼당 생존율을 계산합니다. 매일 댐과 새끼를 관찰하여 출생 후 최대 7일까지 새끼의 생존을 기록하고 댐의 회복을 보장합니다. 이 기간 동안 강아지의 체중 및 길이와 같은 다른 측정을 수행하십시오.
알림: 분만의 신호에는 그루밍 증가, 원을 그리며 회전, 뒷다리 스트레칭 및 발차기 등이 포함됩니다. 이것은 살아있는 박테리아 감염이기 때문에 댐은 시간이 지남에 따라 증상이 나타납니다(보통 치료 후 24시간). 암컷은 감염에서 회복되어야 하지만 분만 후에도 여전히 감염 증상을 보이거나, 둥지를 짓지 않았거나, 첫날 이내에 새끼에게 먹이를 주지 않은 경우 스케줄 1 방법(예: 농도 상승의 CO2 에 노출 및 자궁경부 탈구로 인한 사망 확인)을 사용하여 동물을 인도적으로 희생시킵니다.
- 생물발광 이미징
- 박테리아 접종 후, 아래에 설명된 대로 감염 확산을 추적하기 위해 24시간 및 48시간에 암컷을 이미지화합니다. 마취 없이 출생 후 날(P)0부터 P14까지 새끼를 이미지화합니다.
- 이미징 소프트웨어를 연 후 초기화를 클릭하고 카메라가 작동 온도에 도달할 때까지 기다립니다(온도 막대가 녹색으로 바뀌고 "잠금"됨). 발광 이미징 확인란을 선택하고 여기 필터 가 차단 으로 설정되어 있고 방출 필터가 열기로 설정되어 있는지 확인합니다.
- 이소플루란(유도의 경우 5%, 산소 유지의 경우 1.5%)을 흡입하여 성인 여성을 마취합니다. 생쥐에 대한 마취를 유지하면서 생물발광 이미징 기계(가열 단계 포함)에서 동물을 바로 누운 자세로 눕힙니다. 자동 노출 시간을 선택하거나 노출 시간을 수동으로 설정합니다(노출 범위: 1분 - 5분). 영상 촬영 후 동물을 수용실로 돌려보내 마취에서 회복하기 위해 동물을 우리로 돌려보냅니다.
- 광자 방사를 정량적으로 측정하려면 마우스 이미지에서 관심 영역(ROI)을 선택하고 스테라디안당 센티미터 제곱당 초당 광자(광자∙(second-cm2)-1∙sr-1))를 기록합니다.
2. 태아 및 신생아 조직 분석
- 주산기 조직 수집
- E18.5에서 증가하는 CO2 농도에 노출되고 자궁경부 탈구로 인한 사망을 확인하여 댐을 희생하고 자궁을 제거하기 위해 미니 개복술을 수행합니다. 그런 다음 가위를 사용하여 자궁을 절개합니다.
- 양수를 채취하는 경우 양막을 작게 절개하고 파스퇴르 피펫이나 바늘 없는 주사기를 사용하여 양수를 채취하십시오.
- 겸자를 사용하여 한 손으로 태반이 부착된 지점에서 자궁 바깥쪽을 잡고 다른 손에는 구부러진 겸자를 사용하여 조직을 분리하여 태반을 자궁 내벽에서 부드럽게 분리하고 태아를 조심스럽게 안내합니다. 다시 말하지만, 양손에 집게를 들고 태반을 부드럽게 누르고 태반과 만나는 지점에서 막을 잡고 뽑습니다(깨끗하게 벗겨지도록 함).
- 이제 조직이 분리되었으므로 필요한 임신 조직(예: 자궁, 태반, 태아막, 자궁경부 및 질)을 수집하고 태아 조직(예: 뇌, 폐 및 장)을 해부합니다.
- 드라이아이스 또는 액체 질소에서 조직을 즉시 급속 동결하거나 파라포름알데히드(PFA, PBS에서 4%)로 조직을 고정합니다.
- 급속 냉동 조직을 -80°C에서 보관하고 조직을 24-48시간 동안 고정합니다. 그런 다음 4°C에서 30% 자당에 보관합니다.
주의: PFA는 가연성이며 눈, 피부 및 호흡기 자극을 유발할 수 있습니다. 생물안전 캐비닛에 4% 용액을 준비하고 취급 시 적절한 PPE를 착용하십시오.
- 산후 조직 수집
- P7에서 이소플루란(유도의 경우 5%, 산소 유지의 경우 1.5%)을 사용하여 새끼를 마취합니다.
- 우심방을 절개하여 출혈 및 조직 관류를 수행하고 PBS 10mL를 좌심실에 주입합니다. 멸균 가위와 겸자를 사용하여 시체의 목을 베고 뇌와 폐를 제거합니다. 위에서 설명한 대로 조직을 처리하고 보관합니다.
참고: 산모 및 태아 급속 냉동 조직은 qPCR, ELISA 및 웨스턴 블롯에 의해 염증 및 기타 매개체에 대해 분석할 수 있습니다. 이러한 기술에 대한 프로토콜은 시약 제조업체 또는 다른 간행물 25,30,31에서 쉽게 구할 수 있습니다.
- 태아 및 신생아 뇌의 냉동 절편
- 칼날을 사용하여 소뇌를 제거하여 평평한 표면을 만들고 드라이아이스 위에 조직을 얼립니다. 최적 절단 온도(OCT) 화합물을 사용하여 냉동 조직을 시편 홀더에 장착하고 OCT의 얇은 층으로 조직을 덮습니다. 동결시키십시오(1-2분).
- -20°C로 설정된 극저온 조절기를 사용하여 레버가 잠겨 있는지 확인하고 시편 홀더를 로드합니다. 조직 위치를 미세하게 조정하고 제자리에 고정합니다. 조직을 다듬고 뇌량의 융합에서 마이크로슬라이드에서 조직 절편을 수집하기 시작하여 즉시 드라이아이스에서 절편을 얼립니다. 각 조직의 50개의 연속 40μm 절편을 절단합니다.
주의 : 날카로운 칼날을 조심하십시오. - 냉동 절편을 -80°C의 마이크로슬라이드에 보관합니다.
- 면역조직화학
참고: 아래 프로토콜은 성상세포(신경아교 섬유산성 단백질; GFAP), 미세아교세포(동종이식 염증 인자 1; IBA-1) 및 호중구(림프구 항원 6 계열 구성원 G; Ly6G)를 사용합니다. 항체 정보는 표 1.- 뇌당 400μm 간격으로 5개의 섹션을 선택하면 뇌의 다양한 깊이에서 다양한 뇌 영역을 평가할 수 있습니다. dH2O 한 방울로 냉동 절편을 재수화하고 두 개의 미세한 브러시를 사용하여 조직을 펴고 펼칩니다. 팬 아래에서 20-30분 동안 티슈를 말립니다. 소수성(PAP) 펜을 사용하여 조직을 만지지 않고 조심스럽게 조직 주위를 그립니다.
- 1일째에 50mL 큐벳 1개(슬라이드 용량 15개)에 대해 50mL의 0.1M 인산염 완충액(PB) 50mL에 5.4mL의 포름알데히드를 첨가하여 4% 포름알데히드(FA)를 준비합니다. 슬라이드를 FA에 5분 동안 담가 냉동절편을 고정하고 슬라이드에 접착하고 항원을 고정시킵니다.
주의: FA는 가연성이며 눈, 피부 및 호흡기 자극을 유발할 수 있습니다. 생물안전 캐비닛에 4% 용액을 준비하고 취급 시 적절한 PPE를 착용하십시오. - 0.1 M PB 400 mL에 0.4 g의 BSA를 첨가하여 0.1% 소 알부민 혈청 (BSA)을 준비합니다. 절편을 0.1M PB에 담가 2회 세척한 다음 BSA에서 1회 세척합니다(세척당 ~3초). 슬라이드 저장
필요할 때까지 BSA를 함유한 큐벳. - 티슈 페이퍼를 dH2O로 적셔 습도 챔버를 준비하고 이를 챔버에 넣고 과도한 물을 배출합니다.
- 5% 염소 혈청(0.1M PB 1mL에 염소 혈청 50μL)을 준비합니다. 티슈 페이퍼로 조직 절편 주변의 슬라이드를 조심스럽게 건조시켜 PAP 펜 테두리가 손상되지 않았는지 확인한 다음 조직 절편당 50μL의 용액을 도포합니다. 습도 챔버에서 30분 동안 배양합니다.
- 깨끗한 티슈 페이퍼에 슬라이드를 두드려 혈청을 제거하고 BSA로 희석된 1차 항체를 추가합니다(항체 및 희석액은 표 1에 나와 있음). 4 °C에서밤새 배양합니다.
- 2일째에, 2차 항체를 마우스 혈청 ( 표 1 참조) 에서 37 °C에서 30분 동안 배양하고, BSA (1:100 희석액) (예를 들어, 5 mL BSA + 100 μL 마우스 혈청 + 50 μL 2차 항체)에 첨가한다.
- 슬라이드를 BSA에 담그고(~3초) 2회 세척한 다음 0.1M PB에 한 번 세척합니다. BSA가 포함된 큐벳에 슬라이드를 잡고 각 조직 절편 주변의 경계를 두드려 건조시킵니다. 조직 절편당 50μL의 2차 항체 용액을 도포하고 습도 챔버에서 1시간 동안 배양합니다.
- 0.1M PB 1mL에 10μL의 A와 10μL의 B를 첨가하여 아비딘 비오틴 복합체(ABC)(0.1% 희석)를 준비합니다. 슬라이드를 BSA에 2회 담그고 0.1M PB에 한 번 담근 다음 슬라이드를 0.1M PB가 들어 있는 큐벳에 넣습니다. 슬라이드를 두드려 건조시키고 슬라이드당 50μL의 ABC 용액을 도포한 다음 습도 챔버에서 1시간 동안 배양합니다.
- 디아미노벤지딘(DAB) 용액을 준비합니다. 큐벳당 25mg의 DAB를 계량하고 50mL의 10mM PB에 녹인 다음 4번 여과지로 여과합니다.
주의: DAB는 생식 세포 돌연변이 유발성 및 발암성이 있는 건강 위험입니다. 적절한 PPE를 착용하고 안전하게 폐기하십시오. - 슬라이드를 10mM PB로 3 x 3초 세척하고 10mM PB가 들어 있는 큐벳에 넣습니다. 용액을 신선한 큐벳(큐벳당 16.7μL의 H2O2)에 붓기 전에 DAB 용액에 과산화수소(H2O2)를 첨가하십시오. 슬라이드를 DAB 큐벳으로 옮기고 현미경으로 염색 강도를 지속적으로 확인하면서 ~3분(최대 5분) 동안 그대로 둡니다.
주의: H2O2 는 눈, 피부 및 목을 자극할 수 있습니다. 적절한 PPE를 착용하십시오. - 슬라이드를 10mM PB에서 한 번, dH2O에서 2회 세척하고(3초) 슬라이드를 건조시킵니다. 건식 슬라이드를 자일렌에 3회 담급니다. 커버슬립에 DPX 장착 매체 한 방울을 바르고 기포가 생기지 않도록 주의하면서 조직 절편 위에 놓습니다.
주의 : 자일렌과 DPX는 가연성이며 눈, 피부 및 호흡기 자극을 유발할 수 있습니다. 생물 안전 캐비닛에서 취급하고 취급 시 항상 장갑을 착용하십시오.
- Nissl 염색
- 1일째에 dH2O에서 조직을 재수화하고 퍼뜨리고, 0.1M PB 50mL에 5.4mL의 FA를 첨가하여 4% FA를 준비하고 즉시 사용하십시오. 슬라이드를 4% FA에서 밤새 배양합니다.
- 2일차에 슬라이드를 4% FA에서 70% 에탄올(EtOH)으로 옮기고 밤새 배양합니다.
- 밀폐된 50mL 원추형 튜브에 40mL의 100% EtOH에 4g의 Cresyl Violet을 용해시켜 Nissl 염색을 준비합니다. 15분 동안 뒤집고 360mL의 따뜻한 dH2O에 용액을 첨가하고 교반판에서 20분 동안 혼합합니다. 사용하기 전에 용액을 여과하십시오.
- 3일째에 표 2에 설명된 염색 절차를 따르고 DPX로 조직 절편을 커버슬립합니다.
- 말단 데옥시뉴클레오티딜 트랜스퍼라제 dUTP 닉 말단 라벨링(TUNEL)
- dH2O에서 조직을 재수화하고 퍼뜨린 다음 슬라이드를 4% FA에서 5분 동안 배양합니다. 슬라이드를 H2O2 및 메탄올 (CH3OH) 용액 (1 : 10)으로 옮기고 15 분 동안 배양합니다. 슬라이드를 0.1M PB에서 2 x 3초 동안 세척하고 0.1M PB가 들어 있는 큐벳에 넣습니다.
- 제조업체의 지침에 따라 얼음 위에 TUNEL 용액을 준비하십시오. 용액을 슬라이드(조직 절편당 50μL)에 추가하고 37 °C의 습도 챔버에서 2시간 동안 배양합니다.
- 1시간 배양 후, 단계 2.4.9에 설명된 대로 ABC 용액을 준비하고 실온에서 배양합니다.
- 2시간 후, 슬라이드를 TUNEL STOP 용액(300mM NaCl, 30mM 구연산나트륨)에 10분 동안 옮기고 슬라이드를 담가 10mM PBS 용액에 3 x 3초 세척합니다. 슬라이드를 ABC 용액에서 1시간 동안 배양합니다.
- 황산코발트(dH2O 100mL에 무수 CoSO4 1.55g) 및 염화니켈 육수화물(dH2O100mL에 NiCl2·6H2O 2.38g)을 준비합니다. DAB Co-Ni 용액(10 mM PB + 25 mg DAB + 1 mL/100 mL Co + 1 mL/100 mL Ni)을 준비합니다. 진공 상태에서 용액을 여과하고 어둠 속에 보관하십시오. DAB 용액을 큐벳에 붓기 직전에 큐벳 50mL당 H2O2 16.7μL를 첨가합니다.
- 1시간 후, 슬라이드를 DAB 큐벳으로 옮기고 실온에서 ~3분 동안 배양하면서 염색 강도를 지속적으로 확인합니다. 슬라이드를 10mM PB가 포함된 큐벳으로 이동하여 반응을 중지합니다. dH2O에 2 x 3 초를 담가 세척하고 DPX로 덮개 슬립하기 전에 조직 절편을 건조시킵니다.
- 헤마트실린 및 에오신 염색(H&E)
- dH2O에서 조직을 재수화하고 펴고 절편을 자연 건조시킵니다.
- 슬라이드를 헤마트실린에 2분 동안 담그십시오.
주의: 헤마톡실린은 눈과 피부에 자극을 줄 수 있습니다. 적절한 PPE를 착용하십시오. - 흐르는 수돗물에 슬라이드를 5분 동안 헹구고 산성 알코올로 1초 동안 탈색한 다음 수돗물로 헹굽니다.
- 0.5% 에오신(95% EtOH 300mL에 용해된 1.5g)에 30초 동안 대조염색.
주의: 에오신은 가연성이며 눈과 피부에 자극을 줄 수 있습니다. 생물 안전 캐비닛에서 용액을 준비하고 적절한 PPE를 착용하십시오. - 조직 절편을 EtOH의 구배로 탈수합니다: 50%, 70%, 95%, 마지막으로 100% EtOH를 각각 3분 동안 탈수합니다. 슬라이드를 자일렌에 2 x 5분 동안 옮깁니다. DPX가 있는 커버슬립.
3. 신경병리학 및 폐 손상에 대한 조직학 및 면역조직화학 평가
참고: 평가는 피질, 梨狀피질, 외부 캡슐, 선조체, 해마 및 시상 영역에서 수행할 수 있습니다(그림 2). E18.5 뇌의 경우 세포의 분화가 아직 완료되지 않았고 신경교세포가 모든 뇌 영역으로 이동하지 않았기 때문에 뇌량도 포함될 수 있습니다. 평가자는 치료 그룹에 대해 눈이 멀어야 합니다.
- TUNEL+ 세포 사멸
- 기존 현미경을 사용하여 모든 뇌 영역에서 20배 배율로 양측으로 TUNEL 염색에 대해 양성인 세포를 계산합니다(그림 2).
- 뇌 영역당 무작위로 선택된 3개의 광학 필드를 평가하고 뇌 영역당 평균 세포 수를 계산합니다.
- Nissl 형태 평가
- 컬러 카메라를 사용하여 1배 배율로 전체 조직 이미지를 캡처하고 TIFF 파일 또는 기타 원하는 형식으로 저장합니다. 추가 분석을 위해 이미지를 ImageJ로 가져옵니다.
- 관심 있는 뇌 영역(예: 피질 및 해마)의 개요를 설명하고 자유형 도구를 사용하여 측정합니다(그림 2).
- 조직 측정값을 얻으려면 공식을 적용하십시오: (mm2 × 400 μm) = 부피 × 100 (개정32).
- 미세아교세포 분급 지수
- 0.049mm x 0.049mm 정사각형 그리드 기능이 있는 현미경을 사용하여 40배 배율로 그리드 내의 IBA-1+ 세포 본체 수(C)와 그리드선을 가로지르는 평균 가지 수(B)를 계산합니다. 그림 2에 표시된 각 뇌 영역에 대해 무작위로 선택된 세 개의 필드(그림 3 참조)에서 이 작업을 수행합니다.
- 공식(B2/ C)을 사용하여 미세아교세포 분급 지수를 계산합니다.
- GFAP 염색 강도에 대한 광학 광도
- 참조된 소프트웨어(재료 표)와 40배 배율의 컬러 카메라를 사용하여 뇌 영역당 무작위로 선택된 3개의 필드를 캡처합니다(그림 2). Ctrl+H 를 눌러 평균 및 표준 편차(SD)를 표시하는 히스토그램을 얻습니다. 스프레드시트에 평균 값과 SD 값을 기록합니다. 주변 유리의 제어 이미지만(즉, 조직 없음)를 캡처하고 이전과 같이 평균 및 SD 값을 기록합니다.
- 다음 공식을 사용하여 스프레드시트에서 광학 광도 값(OLV)을 계산합니다.
OLV = (유리의 평균 − 유리의 표준 편차) − ([이미지당 평균 − 이미지당 표준 편차]의 평균)
참고: 예를 들어:
주변 유리
평균 ± SD = 143.5 ± 8.56
뇌 영역(예: 피질)
1. 136.7 ± 10.6
2. 140.6 ± 10.4
3. 137.4 ± 11.3
OLV = (143.5 - 8.56) - ([136.7 - 10.6], [140.6 - 10.4], [137.4 - 11.3]의 평균)
OLV = 134.94 - 127.47
OLV = 7.47 - 지역별, 동물별, 실험군별로 각 값을 평균화합니다.
- 폐 형태 평가
- H&E 섹션을 40배 배율(슬라이드당 3개의 광학 필드, 필드당 공역 측정)으로 캡처하고, TIFF(또는 이에 상응하는 것)로 저장하고, 이미지를 ImageJ로 가져옵니다. 전체 폐 섹션을 대표하는 필드를 무작위로 선택합니다.
- 자유형 도구를 사용하여 공역의 윤곽을 그리고 측정값을 기록합니다(그림 4A). 필드당 3개의 공역의 평균을 찾은 다음 섹션당 3개의 필드 사이, 궁극적으로 샘플당 3개의 섹션 사이를 찾습니다.
- 폐의 호중구 유입
- 컬러 카메라를 사용하여 폐 조직 절편당 3회 배율의 40배 샘플 이미지를 캡처하고 원본 파일을 TIFF 파일 또는 기타 원하는 형식으로 저장합니다. 이미지를 ImageJ로 가져오고 동일한 폐의 세 필드에서 개별 호중구를 수동으로 계산합니다. 폐당 호중구의 평균을 계산합니다.
결과
이 프로토콜은 상행 질 감염의 마우스 모델을 제시하고 신생아 신경병리학 및 호흡 결과를 평가하는 방법을 설명합니다. 상행 질 감염을 유도하는 절차는 신속해야 하며(5분 이내) 마우스는 몇 분 이내에 회복되어야 합니다. 댐은 약 24시간25 후에 감염 증상이 나타났습니다. 여기에는 느린 움직임, 제공 및 구부정한 자세가 포함됩니다. 감염된 마우스의 대략적인 평균 분만 시간은 대장균 투여 후 40.3시간(PBS 대조군 평균 52.7시간)이었으며, E19.5에서 PBS 대조군의 만기 분만과 비교하여 E18.5에서 발생했습니다31. 새끼당 살아있는 새끼의 비율은 감염으로 감소했으며(100%에서 71.4%로) 출생 후 7일 동안의 생존율도 감소했습니다(그림 5)25. 생물발광 박테리아를 사용하면 이미징을 통해 댐과 새끼의 감염 확산을 추적할 수 있습니다. 박테리아는 투여 후 18시간 이내에 자궁, 태아막, 태반 및 일부 태아에서 관찰되었으며(그림 6), qPCR 및 ELISA로 측정한 염증 매개체는 뇌, 폐 및 장과 같은 주산기 새끼 조직뿐만 아니라 이러한 조직에서 상향 조절되었습니다 25,29,31.
형태학, 세포 사멸, 미세아교세포 활성화 및 성상세포 활성화 평가와 같은 일련의 신경병리학 평가가 조직학 및 면역조직화학을 사용하여 태아와 신생아에 대해 수행되었습니다 25,31,33. 폐 조직도 평가할 수 있습니다(그림 4 및 그림 7). TUNEL에 대한 양성 염색은 세포 사멸의 후기 단계인 DNA 분해를 시사합니다34. 우리는 임신 중 대장균 감염에 노출된 새끼의 뇌에서 피질, 梨狀피질, 외부 캡슐, 해마 및 시상에서 TUNEL 염색이 크게 증가하는 것을 볼 수 있습니다(그림 8A,B)31. 뇌의 상주 면역 세포인 IBA-1 표지 미세아교세포는 형태학적 상태에 따라 분류될 수 있으며, 이에 따라 파급 효과는 휴식 표현형을 암시하는 반면, 활성화된 세포와 식세포 세포는 아메바이드 또는 모양이 둥글게 됩니다35. 따라서 미세아교세포를 정량화하는 대신 상태의 지표로서 표현형을 평가하는 전략을 제시합니다. PBS 그룹에 비해 대장균 새끼의 외부 피질과 선조체에서 IBA1+ 파급 효과가 증가하는 것을 볼 수 있습니다(그림 8C,D)31. 염증 및 신경학적 손상과 관련될 수 있는 GFAP 표지 반응성 성상세포는 대장균 새끼의 수형 피질과 외부 캡슐에서 증가했습니다(그림 8E,F)31,36,37. Nissl 염색은 뇌 구조에 대한 총체적인 형태학적 변화를 평가할 수 있습니다. 크레실 바이올렛은 뉴런에 대한 표준 조직학적 염색이며 추가 핵 RNA 과립과 세포 핵을 모두 표지합니다. 대장균 그룹에서는 피질의 두께가 감소하는 것을 볼 수 있습니다(그림 9)31. 유사하게, 세포의 핵과 세포질을 각각 염색하는 H&E는 폐 형태의 평가를 가능하게 합니다(그림 4)31. 우리는 대장균에 노출된 마우스의 공역이 증가하고 염증의 징후인 Ly6G+ 호중구의 수가 증가하는 것을 볼 수 있습니다(그림 7)31.
데이터 분석의 경우 데이터가 정규 분포인 경우 대응되지 않은 t-테스트로 전달 시간을 분석했습니다. 살아 태어난 새끼에 대한 백분율 데이터의 경우, 먼저 비율 분포(0에서 1 범위로 제한됨)를 정규 분포로 변환하기 위해 아크사인 제곱근 변환이 필요했으며, 이는 t-검정을 수행할 수 있는 요구 사항 중 하나입니다. 강아지 생존율은 Log-rank(Mantel-Cox) 테스트로 분석되었습니다. 조직학 및 면역조직화학의 경우 데이터 유형과 정규 분포 여부에 따라 Mann-Whitney U 테스트 또는 Welsh 보정을 사용한 다중 t 테스트가 사용되었습니다. 충분한 통계적 검정력을 위해 치료 그룹당 최소 5개의 댐을 사용하는 것이 좋습니다.
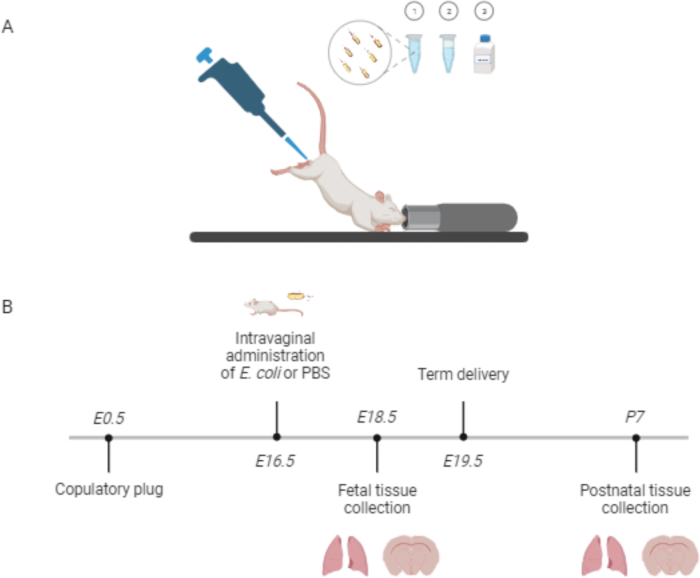
그림 1: 대장균 의 질내 투여 및 마우스의 조산 및 신생아 이환율을 유도하기 위한 치료 일정. (A) 대장균 [1]에 이어 20% Pluronic 겔 F127[2]을 멸균 200μL 피펫 팁을 사용하여 마우스 질에 투여합니다. 퀴닌 분말이 입구에 첨가됩니다[3]. (B) 대장균 은 배아기 16.5일에 질로 전달됩니다. 폐 및 뇌와 같은 조직은 태아 또는 신생아 기간 동안 수집할 수 있습니다. 약어: EN = 배아일 N; PN = 출생 후 N일; PBS = 인산염 완충 식염수. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
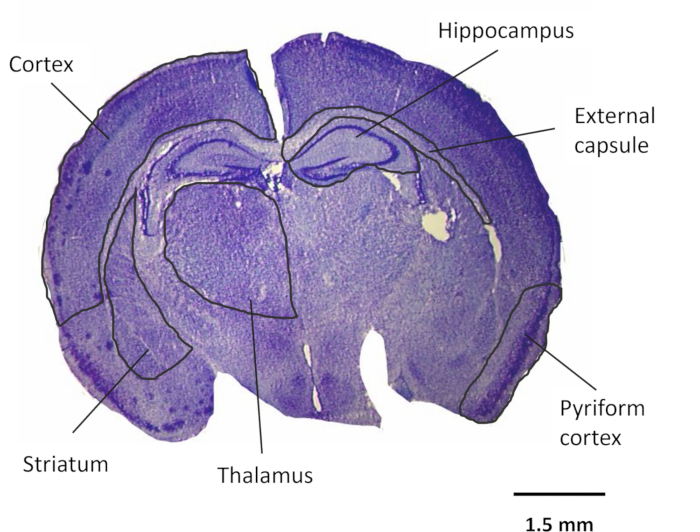
그림 2: 신경병리학에 대해 평가된 뇌 영역. 신생아 강아지 뇌의 Nissl 염색의 예와 신경병리학에 대해 평가할 수 있는 영역. 모든 뇌 영역은 TUNEL, IBA-1 및 GFAP에 대해 평가할 수 있습니다. 우리는 Nissl을 사용하여 피질과 해마 형태를 평가하기로 결정했습니다. 배율: 1x. 스케일 바 = 1.5mm. 약어: TUNEL = 말단 데옥시뉴클레오티딜 트랜스퍼라제 dUTP 닉 말단 라벨링; IBA-1 = 동종이식 염증 인자 1; GFAP = 신경교 섬유성 산성 단백질. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
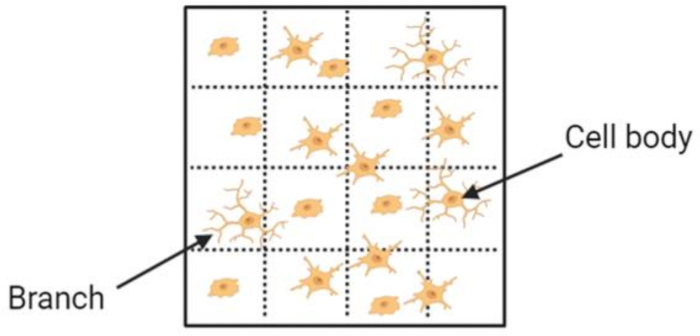
그림 3: 양성 IBA-1 염색 및 파급 지수 평가. IBA-1+ 세포의 파급 지수를 정량화하려면 그리드 내의 세포 본체 수와 수평 및 수직 격자선을 가로지르는 평균 가지 수를 계산합니다. 약어: IBA-1 = 동종이식 염증 인자 1. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
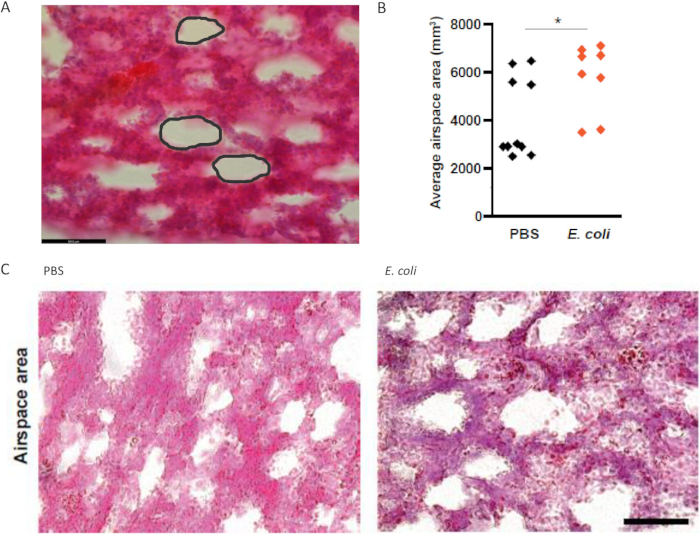
그림 4: 강아지 폐의 공대 측정(H&E 염색). (A) 공역의 윤곽을 그리고 ImageJ의 자유형 도구를 사용하여 측정합니다. (B) PBS에 비해 대장균 에 노출된 새끼에서 평균 공역 면적이 증가합니다. (C) 자궁 내에서 PBS 및 대장균에 노출된 새끼 폐의 대표적인 H&E 이미지. 배율: 40x. 스케일 바 = 59.5 μm. 약어: H = 헤마트실린; E = 에오신. n = 2 4 새끼. *p < 0.05. 이 그림은 Boyle et al.31에서 채택되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
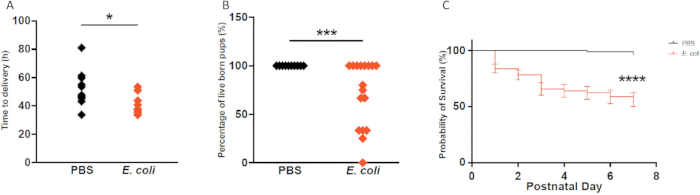
그림 5: 질내 대장균이 분만 시간 및 강아지 생존에 미치는 영향. (A) 대장균이 있는 경우 분만 시간이 단축됩니다. (B) 대장균에 노출된 새끼에서 살아서 태어난 새끼의 비율이 현저히 감소하고 (C) 새끼 생존율이 감소합니다. 분만 시간: n = 그룹당 8-10 배; 살아있는 새끼: n = 그룹당 10-17마리; 강아지 생존: n = 그룹당 10-12마리. *p < 0.05, ***p < 0.001. 이 그림은 Boyle et al.31에서 채택되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
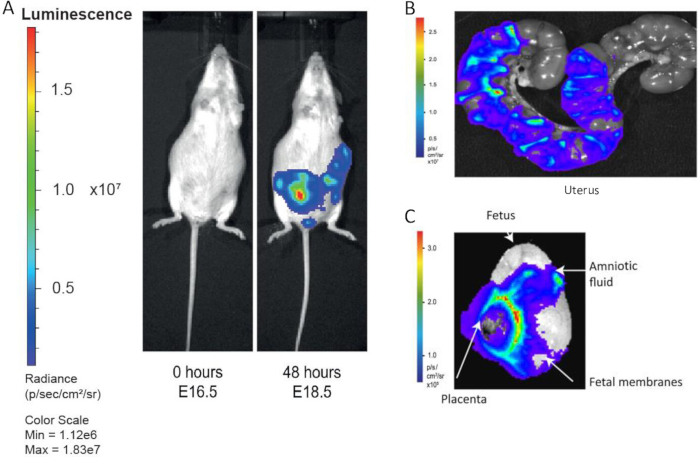
그림 6: 대장균 확산을 모니터링하기 위한 생물발광 이미징. (A) 생물발광성 대장균 은 48시간 이내에 질에서 자궁뿔로 상승합니다. (B) 해부된 자궁뿔은 18시간 이내에 대장균 감염을 나타내며, (C) 태반과 태아막도 마찬가지입니다. 이 수치는 Suff et al.25 및 Boyle et al.31에서 채택되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
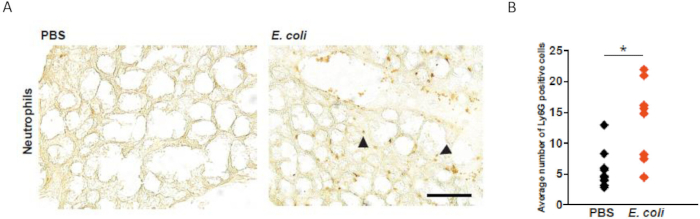
그림 7: 태아 폐의 호중구에 대한 Ly6G 염색. (A) PBS 및 대장균에 노출된 태아에서 호중구 유입을 평가하기 위한 Ly6G(양성: 화살촉)에 대한 염색. (B) 대장균 태아에서 Ly6G+ 세포의 평균 수가 유의하게 증가합니다. 배율: 40x. 스케일 바 = 59.5 μm. n = 그룹당 5 리터에서 10. *p < 0.05. 약어: Ly6G = 림프구 항원 6 복합체 유전자좌 G6D. 이 그림은 Boyle et al.31에서 채택되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
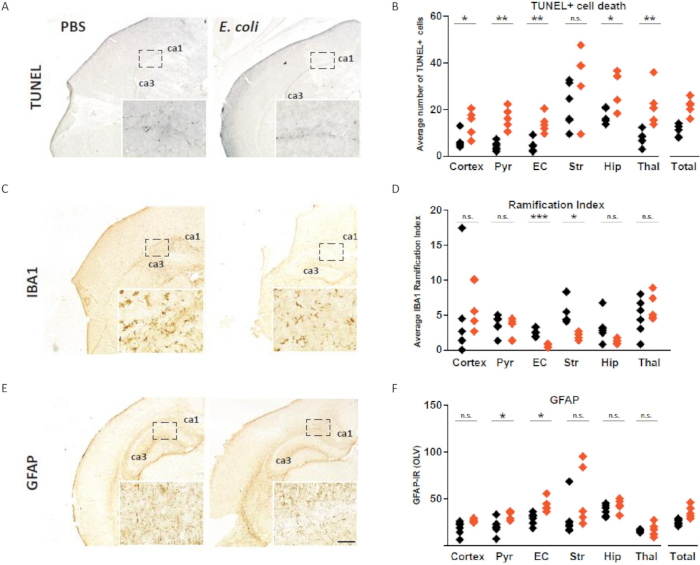
그림 8: TUNEL, IBA1 및 GFAP 염색의 예. (A) PBS 또는 대 장균에 노출된 출생 후 새끼 뇌의 세포 사멸에 대한 TUNEL 염색. (B) TUNEL+ 세포의 평균 수는 피질, 수피, 외낭, 해마 및 시상에서 증가합니다. (C) PBS 및 대 장균 그룹의 미세아교세포에 대한 IBA1 면역조직화학. (D) 미세아교세포 활성화의 척도로서 분급 지수는 대 장균 새끼의 외부 캡슐과 선조체에서 증가합니다. (E) 성상세포에 대한 GFAP 염색, (F) 대 장균 새끼의 수형 피질 및 외부 캡슐에서 증가합니다. 스케일 바 = 59.5 μm. 약어: GFAP = 신경교 섬유성 산성 단백질; TUNEL = 말단 데옥시뉴클레오티딜 트랜스퍼라제 dUTP 닉 말단 표지; Pyr = pyriform 피질; EC = 외부 캡슐; Str = 선조체; 엉덩이 = 해마; 탈 = 시상; 합계 = 모든 지역; CA = 코누 암모니스; OLV = 광학 광도 값. 면역조직화학 분석: 그룹당 5마리에서 n = 5-7. *p < 0.05, **p < 0.01, ***p < 0.001, n.s. - 유의하지 않음. 이 그림은 Boyle et al.31에서 채택되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
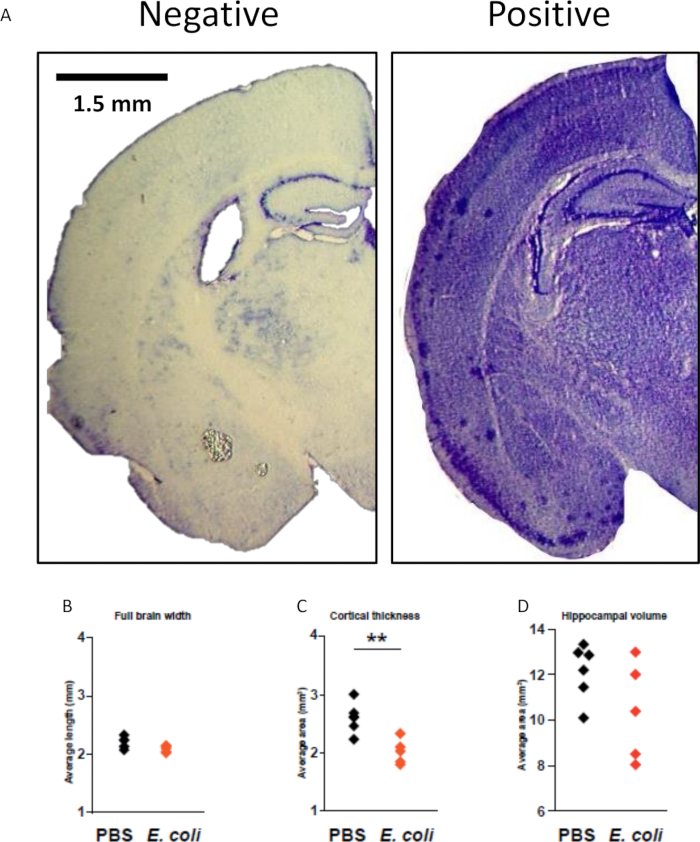
그림 9: 양성 및 음성 Nissl 염색 및 형태 평가의 예. (A) 조직 구조 및 형태를 평가하기 위한 출생 후 새끼 뇌의 Nissl 염색. (B) 뇌 너비에는 영향을 미치지 않지만 (C) 대 장균에 노출된 새끼의 피질 두께가 감소합니다. (D) 해마 부피에는 차이가 없습니다. 배율: 1x. 스케일 바 = 1.5mm. n = 그룹당 5마리의 7-5개. **p < 0.01. 이 그림은 Boyle et al.31에서 채택되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 1차 항체 | 희석 | 2차 항체/희석 | 희석 |
| 토끼 항-GFAP | 1:6000 | 염소 안티 토끼 | 1:100 |
| 토끼 항-IBA1 | 1:1000 | 염소 안티 쥐 | 1:100 |
| 마우스 안티 Ly6G | 1:1000 | 염소 안티 토끼 | 1:100 |
표 1: 면역조직화학에 대한 항체.
| 걸음 | 시약 | 시간(분) |
| 1 | NISSL 스테인 | 10 |
| 2 | 신선한 증류수 | 2 |
| 3 | 신선한 증류수 | 2 |
| 4 | 70% 에토오 | 2 |
| 5 | 90% EtOH | 2 |
| 6 | 96% EtOH | 2 |
| 7 | 96% EtOH 및 3-5 방울 빙초산 | 2-5 (지속적으로 확인) |
| 8 | 100% 에트로오 | 2 |
| 9 | 이소프로파놀 | 2 |
| 10 | 자일렌 | 2 |
| 11 | 자일렌 | 2 |
| 12 | 자일렌 | 2 |
표 2: Nissl 절차.
토론
여기에서는 박테리아 질 상승을 통한 조산 및 신생아 이환율의 새로운 마우스 모델의 유도에 대해 설명합니다. 대장균 K1은 신생아 패혈증과 수막염의 일반적인 원인이며 산모에서 태아로 수직으로 전염되기 때문에 선택했습니다 38,39,40. 이 모델의 성공의 열쇠는 질에서 박테리아 현탁액이 누출되는 것을 방지하여 감염이 확립되고 자궁으로 올라갈 수 있도록 하는 Pluronic 감열성 젤을 사용하는 것입니다. 이 모델은 패혈증 분리주에서 유래한 살아있는 박테리아를 사용하므로 댐을 면밀히 모니터링하는 것이 중요합니다27. 동물이 움직이거나 먹기를 거부하거나 새끼를 돌보지 않는 경우(예: 둥지 및 먹이를 주는 것을 소홀히 하는 경우) 즉시 인도적으로 희생해야 합니다.
대부분 감염과 관련된 증상은 분만 후 24시간 이내에 사라집니다. 또한 대장균 및 기타 박테리아 균주의 혈청형에 따라 임신 기간, 감염/염증 정도 및 신생아 결과에 다양한 영향을 미친다는 점을 인식하는 것이 중요합니다. 원하는 표현형에 필요한 최소 농도를 결정하고 고통을 예방하기 위해 엄격한 인도적 종점을 설정하기 위해 새로운 박테리아 혈청형/균주를 사용할 때 다양한 CFU로 예비 용량 실험을 수행하는 것이 좋습니다. 살아있는 병원체를 전달할 때는 극도의 주의를 기울여야 합니다. 문헌이 상승 감염을 모델링할 때 이러한 유기체의 적절한 사용을 안내할 수 있도록 하십시오.
마우스 계통도 면역 체계가 다르기 때문에 중요합니다. 예를 들어, 이 모델에 사용된 타이밍과 CFU는 C57BL/6 마우스에서 수행될 때 동일한 결과를 갖지 않습니다. 우리는 시간 경과 실험에서 CD-1, BALB/c 및 C57BL/6에 비해 이 균주에서 훨씬 더 많은 감염이 나타났기 때문에 C57BL/6 Tyrc-2J 마우스를 사용하기로 선택했습니다. 또한, 검은 털이 생물발광 신호를 소멸시킨다는 증거가 있으며, 이는 이 모델29에서 유용한 측정 가능한 결과입니다. 박테리아 투여를 위한 최적의 임신일은 병원체 및 마우스 균주에 따라 다를 수도 있습니다. 전임상 PTB 모델에는 엄청난 이질성이 있습니다. 따라서 재현 가능한 결과를 개발하기 위해 이러한 변수를 고려하는 것이 중요합니다17.
또 다른 고려 사항은 동물이 마취에 노출되는 시간입니다. 임신 중 과도한 노출은 새끼의 신경독성과 관련이 있으므로 마취 하에서 보내는 시간을 최소한(예: 최대 5분)로 유지하고 항상 동일한 환경에 노출되고 비히클 물질로 처리된 대조군을 포함하는 것이 필수적입니다 41,42,43. 이 모델에 유용한 추가 대조군에는 치료되지 않은 Pluronic 겔만의 질 내 전달 및 마취만이 포함됩니다.
면역조직화학은 다양한 단백질과 세포를 식별하기 위한 실험 도구로 널리 사용되며 뇌의 구조와 연결성을 특성화하는 데 사용할 수 있습니다. 여기에서는 신경염증 및 신경 손상과 관련된 중추 신경계의 핵심 세포를 분석하는 방법을 설명합니다. 또한 뇌 및 폐 형태를 측정하는 데 유용한 세포 세포사멸 및 조직학적 염색을 평가하는 방법을 제시합니다. 이러한 프로토콜의 성공을 보장하기 위한 중요한 고려 사항은 PAP 펜을 신중하게 사용하는 것에서 시작됩니다. PAP 펜이 조직에 닿으면 염색이 실패하지만 매개변수가 너무 넓으면 절편이 밤새 건조될 수 있습니다. 마찬가지로, 습도 챔버는 섹션이 건조되지 않도록 축축하게 유지되어야 합니다.
Nissl 염색을 수행할 때 빙초산 단계가 가장 중요합니다. 섹션은 지속적으로 확인해야 합니다. 뇌의 주요 구조가 보이게 되면 반응을 멈추기 위해 섹션을 즉시 EtOH로 이동해야 합니다. 인간 미숙아 및 기타 동물 모델에서 피질 두께 감소와 해마 부피 감소가 보고되었지만 다른 영역에서는 형태 변화에 대해 평가할 수 있었기 때문에 피질과 해마를 평가하기로 결정했습니다 44,45,46,47. DAB 염색의 개발에도 세심한 주의를 기울여야 합니다. 이는 시간을 정하고 실험 간에 일관되게 유지되어야 합니다.
데이터 분석은 종종 주관적인 것으로 간주되는 결과를 정량화하기 어렵기 때문에 면역조직화학의 가장 일반적인 한계입니다. GFAP 분석은 컴퓨터 지원 광학 광도 측정을 사용하여 수행되지만 일관되지 않은 염색은 이러한 측정에 영향을 미칠 수 있습니다. 또한 뇌 및 폐 형태 평가에는 관찰자의 판단에 의존하는 수동 자유형 측정이 포함됩니다. 불일치를 피하기 위해 이러한 평가를 짧은 시간 내에 두 번 반복합니다. 편향을 더욱 줄이려면 평가자가 치료 그룹에 대해 눈이 멀게 하는 것이 중요합니다. 낮은 면역 반응성도 제한 요인이 될 수 있습니다. 신호가 부족하면 관심 항원이 없거나 프로토콜 실패 때문일 수 있습니다. 이 문제를 해결하기 위해 가능한 경우 양성 대조군 역할을 할 수 있는 조직 샘플을 포함하고 신호가 낮거나 부재할 때 염색 절차를 반복하여 이것이 실험 오류의 결과가 아닌지 확인합니다.
설명된 프로토콜 외에도 산모, 태아 및 신생아 조직의 면역학적 분석은 qPCR 및 ELISA에 의해 수행될 수 있습니다. 우리는 감염에 노출된 동물에서 염증성 mRNA 및 단백질 수치가 증가하는 것을 관찰했습니다 25,31,48. 우리는 조직학적으로 입증하는 신생아 신경병리가 태아의 뇌, 폐 및 장 염증의 결과일 수 있다는 가설을 세웁니다25,31. 우리가 수행한 다른 신경병리학 평가에는 수초화를 조사하기 위한 미엘린 염기성 단백질(MBP)과 신경핵을 염색하기 위한 NeuN이 포함됩니다25,31. 이에 더하여, 호중구 및 미세아교세포에 대한 다른 마커를 평가하여 자궁 내 감염에 노출된 후 이들 세포의 표현형과 거동을 더 잘 이해할 수 있습니다 49,50. 또한 자손에 대한 장기적인 영향을 결정하기 위해 행동 테스트를 수행할 수 있습니다.
이 모델에는 제한이 없습니다. 예를 들어, 우리는 새끼 사이와 내에서나 병리학의 변화를 볼 수 있습니다. 이는 감염 확산을 통제할 수 없는 살아있는 박테리아를 사용한 결과일 수 있습니다. 결과적으로, 자궁 뿔로의 상행 감염의 패턴과 범위는 다양하며 종종 비대칭입니다. 또 다른 한계는 대장균의 병원성으로, 때때로 댐이 너무 건강이 나빠져 새끼를 돌볼 수 없게 될 수 있습니다. 쥐는 또한 인간과 같이 태아기가 아닌 출생 후에 폐포 형성이 일어나기 때문에 폐 손상의 가장 좋은 모델이 아닙니다51. 샘플을 수집할 때 폐 조직을 팽창시키지 못했는데, 이는 결과에 영향을 미칠 수 있었습니다. 그러나 우리의 결과는 신생아 BPD 동물 모델에서 관찰된 변화와 일치합니다52,53.
이 모델은 박테리아 감염이 질에서 자궁으로 올라가 조기 분만을 자극하는 가정된 인간 상태를 요약합니다. 이 모델의 초기 출판 이후 다른 사람들이 유사한 모델을 복제하거나 생산하여 이 방법론의 재현성과 관련성을 더욱 강조했습니다19,54. 결정적으로, 이 모델은 다른 모델이 실패한 미숙아가 경험하는 일반적인 이환율을 보여줍니다. 이는 신생아 패혈증과 특별히 관련된 박테리아 균주의 사용 때문일 수 있습니다. 동물 모델에서 조산을 유도하는 데 가장 일반적으로 사용되는 LPS는 새끼에게 치명적이므로 신생아 결과를 측정할 수 없습니다18. 상승 감염의 다른 모델도 살아남은 새끼를 생산하거나 신생아 이환율을 입증하는 데 어려움을 겪었습니다 19,20,21,22,23,24,55,56. 우리가 설명하는 것과 같은 임상적으로 관련된 동물 모델은 조산의 병태생리학을 이해하고 신생아 결과를 개선할 혁신적인 개입을 개발하는 데 기본입니다.
공개 사항
저자는 관련 공개가 없습니다.
감사의 글
대장균 K1 A192PP-luxABCDE는 유니버시티 칼리지 런던의 피터 테일러 교수로부터 친절하게 선물되었습니다. 그림 1 과 그림 3 은 BioRender.com 년에 작성되었습니다. 이 연구는 Wellcome Clinical Research Career Development Fellowship 222970/Z/21/Z(NS), Action Medical Research 및 Borne 보조금 GN2647(NS, SNW 및 DP)의 지원을 받았습니다. 및 여성 복지 보조금 RG2365(A.K.B., N.S., M.H., S.N.W. 및 D.P.).
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 반-GFAP, 토끼 | 애질런트 테크놀로지스 | Z033429-2 | |
| 항염증 IBA1, 토끼 및 nbsp; | 와코 | 019-19741 | |
| 안티-Ly6G, 마우스 | 바이오레전드 | 127601 | |
| AVT-혼 184 3CCD 카메라 | 소니 | ||
| 비오틴-16-DUTP | 머크 | 11093070910 | |
| 붕규산 유리 직사각형 커버슬립 | 피셔스티언 | 12363128 | |
| 크레실 바이올렛 아세테이트 | 서모피셔 사이언티픽 | 405760100 | |
| 크라이오스탯 CM1900 | 라이카 | ||
| 유리 커벳 & nbsp; | 머크 | BR472700 | |
| 디아미노벤지딘 (DAB) | 제네론 | 40480004-3 | |
| 해부용 겸자, 스테인리스 스틸, 10cm, 톱니, 곡선 | 월드 프리시전 인스트루먼츠 Ltd | 15915 | |
| 해부 겸자, 스테인리스 스틸, 10cm, 톱니 모양, 직선 | 월드 프리시전 인스트루먼츠 Ltd | 15914 | |
| 해부 가위, 길이 10cm, 직선 | 월드 프리시전 인스트루먼츠 Ltd | 14393 | |
| DPX | 머크 | 100579 | |
| 이오신 | 시그마-올드리치 | HT110116 | |
| 포름알데히드 용액 4% 완충 | 머크 | 100496 | |
| 염소 항토끼 IgG 항체(H+L), 비오티닐화 | 벡터 연구소 | BP-9100-50 | |
| 염소 항쥐 IgG 항체(H+L), 비오티닐화 | 벡터 연구소 | BA-9400-1.5 | |
| 그래프패드 프리즘 v.8 | 그래프패드 소프트웨어 | ||
| H2O2 | 시그마-올드리치 | 7722-84-1 | |
| 헤마톡실린 | 시그마-올드리치 | MHS16 | |
| 이미지J | 국립보건원(NIH) | ||
| 이소플루란 (IsoFlo) | 조에티스 | 50019100 | |
| IVIS 루미나 II 생체 내 영상 시스템/리빙 이미지 소프트웨어 | 퍼킨 엘머/리비티 | ||
| 마이크로슬라이드 | VWR | ISO8037/I | |
| Optimas 6.51 | 미디어 사이버네틱스 주식회사 | ||
| 파라포름알데히드 | 시그마-올드리치 | 158127 | |
| 인산염 완충식염수(PBS) | 써모 피셔 사이언티픽 (라이프 테크놀로지스) | 14190094 | |
| 플루로닉 F-127 | 시그마-올드리치 | P2443 | |
| 퀴닌 | 과학 실험실 용품 | Q0132 | |
| ReadyProbes 소수성 장벽 자궁경부암 | 서모 피셔 사이언티픽 | R3777 | |
| 수산화나트륨 | 허니웰 | S8045 | |
| 인산나트륨 단염기 무수성 | 피셔스티언 | BP329-1 | |
| 자당 | 머크 | S9378 | |
| 말단 전이라제 | 머크 | 3333574001 | |
| 벡타스테인 ABC-HRP 키트, 페록시다제 | 벡터 연구소 | PK-4000 | |
| 자일렌(조직학적 등급) | 시그마-올드리치 | 534056 |
참고문헌
- WHO. WHO: recommended definitions, terminology and format for statistical tables related to the perinatal period and use of a new certificate for cause of perinatal deaths. Modifications recommended by FIGO as amended October 14, 1976. Acta Obstet Gynecol Scand. 56 (3), 247-253 (1977).
- Liu, L., et al. Global, regional, and national causes of under-5 mortality in 2000–15: an updated systematic analysis with implications for the sustainable development goals. Lancet. 388 (10063), 3027-3035 (2016).
- Chawanpaiboon, S., et al. regional, and national estimates of levels of preterm birth in 2014: a systematic review and modelling analysis. Lancet Glob Health. 7 (1), e37-e46 (2019).
- Unicef. Levels and trends in child mortality report 2017. , Unicef. (2017).
- Blencowe, H., et al. National, regional, and worldwide estimates of preterm birth rates in the year 2010 with time trends since 1990 for selected countries: a systematic analysis and implications. Lancet. 379 (9832), 2162-2172 (2012).
- Jung, E., et al. The fetal inflammatory response syndrome: the origins of a concept, pathophysiology, diagnosis, and obstetrical implications. Semin Fetal Neonatal Med. 25 (4), 101146(2020).
- Humberg, A., et al. Preterm birth and sustained inflammation: consequences for the neonate. Semin Immunopathol. 42 (4), 451-468 (2020).
- Boyle, A. K., Rinaldi, S. F., Norman, J. E., Stock, S. J. Preterm birth: inflammation, fetal injury and treatment strategies. J Reprod Immunol. 119, 62-66 (2017).
- Romero, R., Dey, S. K., Fisher, S. J. Preterm labor: one syndrome, many causes. Science. 345 (6198), 760-765 (2014).
- Goldenberg, R. L., Culhane, J. F., Iams, J. D., Romero, R. Epidemiology and causes of preterm birth. Lancet. 371 (9606), 75-84 (2008).
- Jones, H. E., et al. Differing prevalence and diversity of bacterial species in fetal membranes from very preterm and term labor. PLoS One. 4 (12), e8205(2009).
- Cobo, T., et al. Characterization of vaginal microbiota in women with preterm labor with intra-amniotic inflammation. Sci Rep. 9 (1), 18963(2019).
- Romero, R., et al. Microbial invasion of the amniotic cavity in patients with suspected cervical incompetence: prevalence and clinical significance. Am J Obstet Gynecol. 167 (4 Pt 1), 1086-1091 (1992).
- Mendz, G. L., Kaakoush, N. O., Quinlivan, J. A. Bacterial aetiological agents of intra-amniotic infections and preterm birth in pregnant women. Front Cell Infect Microbiol. 3, 58(2013).
- DiGiulio, D. B., et al. Prevalence and diversity of microbes in the amniotic fluid, the fetal inflammatory response, and pregnancy outcome in women with preterm pre-labor rupture of membranes. Am J Reprod Immunol. 64 (1), 38-57 (2010).
- DiGiulio, D. B. Diversity of microbes in amniotic fluid. Semin Fetal Neonatal Med. 17 (1), 2-11 (2012).
- Miller, F. A., Sacco, A., David, A. L., Boyle, A. K. Interventions for infection and inflammation-induced preterm birth: a preclinical systematic review. Reprod Sci. , (2022).
- Migale, R., et al. Specific lipopolysaccharide serotypes induce differential maternal and neonatal inflammatory responses in a murine model of preterm labor. Am J Pathol. 185 (9), 2390-2401 (2015).
- Spencer, N. R., et al. Development of a mouse model of ascending infection and preterm birth. PLoS One. 16 (12), e0260370(2021).
- Pavlidis, I., et al. Cervical epithelial damage promotes Ureaplasma parvum ascending infection, intrauterine inflammation and preterm birth induction in mice. Nat Commun. 11 (1), 199(2020).
- Vornhagen, J., et al. Group B streptococcus exploits vaginal epithelial exfoliation for ascending infection. J Clin Invest. 128 (5), 1985-1999 (2018).
- Bernardini, R., et al. Neonatal protection and preterm birth reduction following maternal group B streptococcus vaccination in a mouse model. J Matern Fetal Neonatal Med. 30 (23), 2844-2850 (2017).
- Tantengco, O. A. G., et al. Modeling ascending Ureaplasma parvum infection through the female reproductive tract using vagina-cervix-decidua-organ-on-a-chip and feto-maternal interface-organ-on-a-chip. Faseb J. 36 (10), e22551(2022).
- Randis, T. M., et al. Group B streptococcus β-hemolysin/cytolysin breaches maternal-fetal barriers to cause preterm birth and intrauterine fetal demise in vivo. J Infect Dis. 210 (2), 265-273 (2014).
- Suff, N., et al. Ascending vaginal infection using bioluminescent bacteria evokes intrauterine inflammation, preterm birth, and neonatal brain injury in pregnant mice. Am J Pathol. 188 (10), 2164-2176 (2018).
- Mushtaq, N., Redpath, M. B., Luzio, J. P., Taylor, P. W. Treatment of experimental Escherichia coli infection with recombinant bacteriophage-derived capsule depolymerase. J Antimicrob Chemother. 56 (1), 160-165 (2005).
- Achtman, M., et al. Six widespread bacterial clones among Escherichia coli K1 isolates. Infect Immun. 39 (1), 315-335 (1983).
- Winson, M. K., et al. Engineering the luxCDABE genes from Photorhabdus luminescens to provide a bioluminescent reporter for constitutive and promoter probe plasmids and mini-Tn5 constructs. FEMS Microbiol Lett. 163 (2), 193-202 (1998).
- Suff, N. The use of cervical gene therapy for the prevention of infection-related preterm birth [Ph. D. Thesis]. , University College London. (2017).
- Boyle, A. K., Rinaldi, S. F., Rossi, A. G., Saunders, P. T. K., Norman, J. E. Repurposing simvastatin as a therapy for preterm labor: evidence from preclinical models. Faseb J. 33 (2), 2743-2758 (2019).
- Boyle, A. K., et al. Ascending vaginal infection in mice induces preterm birth and neonatal morbidity. Am J Pathol. 195 (5), 891-906 (2025).
- Kendall, G. S., Robertson, N. J., Iwata, O., Peebles, D., Raivich, G. N-methyl-isobutyl-amiloride ameliorates brain injury when commenced before hypoxia ischemia in neonatal mice. Pediatr Res. 59 (2), 227-231 (2006).
- Rocha-Ferreira, E., et al. Curcumin: novel treatment in neonatal hypoxic-ischemic brain injury. Front Physiol. 10, 1351(2019).
- Kyrylkova, K., Kyryachenko, S., Leid, M., Kioussi, C. Detection of apoptosis by TUNEL assay. Methods Mol Biol. 887, 41-47 (2012).
- Lier, J., Streit, W. J., Bechmann, I. Beyond activation: characterizing microglial functional phenotypes. Cells. 10 (9), (2021).
- Schmidt-Kastner, R., Wietasch, K., Weigel, H., Eysel, U. T. Immunohistochemical staining for glial fibrillary acidic protein (GFAP) after deafferentation or ischemic infarction in rat visual system: features of reactive and damaged astrocytes. Int J Dev Neurosci. 11 (2), 157-174 (1993).
- Pekny, M., Pekna, M. Astrocyte reactivity and reactive astrogliosis: costs and benefits. Physiol Rev. 94 (4), 1077-1098 (2014).
- Witcomb, L. A., Collins, J. W., McCarthy, A. J., Frankel, G., Taylor, P. W. Bioluminescent imaging reveals novel patterns of colonization and invasion in systemic Escherichia coli K1 experimental infection in the neonatal rat. Infect Immun. 83 (12), 4528-4540 (2015).
- Obata-Yasuoka, M., Ba-Thein, W., Tsukamoto, T., Yoshikawa, H., Hayashi, H. Vaginal Escherichia coli share common virulence factor profiles, serotypes and phylogeny with other extraintestinal E. coli. Microbiology (Reading). 148 (Pt 9), 2745-2752 (2002).
- Bonacorsi, S., Bingen, E. Molecular epidemiology of Escherichia coli causing neonatal meningitis. Int J Med Microbiol. 295 (6-7), 373-381 (2005).
- Hartling, L., Liang, Y., Lacaze-Masmonteil, T. Chorioamnionitis as a risk factor for bronchopulmonary dysplasia: a systematic review and meta-analysis. Arch Dis Child Fetal Neonatal Ed. 97 (1), F8-F17 (2012).
- Liang, G., et al. Isoflurane causes greater neurodegeneration than an equivalent exposure of sevoflurane in the developing brain of neonatal mice. Anesthesiology. 112 (6), 1325-1334 (2010).
- Yang, B., et al. Comparison of neurodegeneration and cognitive impairment in neonatal mice exposed to propofol or isoflurane. PLoS One. 9 (6), e99171(2014).
- Schmitz-Koep, B., et al. Decreased cortical thickness mediates the relationship between premature birth and cognitive performance in adulthood. Hum Brain Mapp. 41 (17), 4952-4963 (2020).
- Nagy, Z., Lagercrantz, H., Hutton, C. Effects of preterm birth on cortical thickness measured in adolescence. Cereb Cortex. 21 (2), 300-306 (2011).
- Dimitrova, R., et al. Preterm birth alters the development of cortical microstructure and morphology at term-equivalent age. Neuroimage. 243, 118488(2021).
- Dada, T., et al. Mouse model of intrauterine inflammation: sex-specific differences in long-term neurologic and immune sequelae. Brain Behav Immun. 38, 142-150 (2014).
- Suff, N., et al. Cervical gene delivery of the antimicrobial peptide, human beta-defensin (HBD)-3, in a mouse model of ascending infection-related preterm birth. Front Immunol. 11, 106(2020).
- McKenna, E., et al. Neutrophils: need for standardized nomenclature. Front Immunol. 12, 602963(2021).
- Jurga, A. M., Paleczna, M., Kuter, K. Z. Overview of general and discriminating markers of differential microglia phenotypes. Front Cell Neurosci. 14, 198(2020).
- Jackson, C. M., et al. Pulmonary consequences of prenatal inflammatory exposures: clinical perspective and review of basic immunological mechanisms. Front Immunol. 11, 1285(2020).
- Durrani-Kolarik, S., et al. miR-29b supplementation decreases expression of matrix proteins and improves alveolarization in mice exposed to maternal inflammation and neonatal hyperoxia. Am J Physiol Lung Cell Mol Physiol. 313 (2), L339-L349 (2017).
- Nguyen, L., et al. Sex-differences in LPS-induced neonatal lung injury. Sci Rep. 9 (1), 8514(2019).
- Zhang, Y., Edwards, S. A., House, M. Cerclage prevents ascending intrauterine infection in pregnant mice. Am J Obstet Gynecol. , (2023).
- Kammala, A. K., et al. Extracellular vesicles-mediated recombinant IL-10 protects against ascending infection-associated preterm birth by reducing fetal inflammatory response. Front Immunol. 14, 1196453(2023).
- Tantengco, O. A. G., et al. Inflammatory response elicited by Ureaplasma parvum colonization in human cervical epithelial, stromal, and immune cells. Reproduction. 163 (1), 1-10 (2021).
재인쇄 및 허가
태그
