여기에서 우리는 식물 다양성 구배를 따라 초원 군집의 생태계 기능에 대한 식물 역사와 토양 역사의 독립적이고 상호 작용적인 영향을 연구하기 위해 지상 및 지하의 환경 조건이 통제된 지상 반폐쇄 우주 챔버인 iDiv Ecotron에 설립된 연구를 제시합니다.
방법 논문
JenaTron - 식물의 역사와 토양의 역사가 초원 생태계 기능에 미치는 영향을 연구하는 실험적 접근 방식
이 논문에서
요약
초록
전 세계적으로 생물 다양성이 감소함에 따라 식물 종의 풍부도를 실험적으로 다양화하고 생태계 기능에 미치는 영향을 조사하는 많은 연구가 동기를 부여받았습니다. 이러한 실험은 일반적으로 지상 및 지하 생물 다양성과 육상 생태계의 기능 사이에 긍정적인 관계가 있음을 보여줍니다. 더욱이, 이 관계는 시간이 지남에 따라 강화되는 경향이 있는데, 이는 다양한 식물 군집의 기능이 향상되고 다양성이 낮은 식물 군집의 기능이 감소하는 것으로 보입니다. 다양성이 높은 식물 군집과 낮은 식물 군집에서의 다영양 군집 조립과 생물적 상호 작용의 차이는 소비자 군집 구조와 기능을 변경하고 식물 군집 내 식물 종의 플라스틱 또는 미시적 진화 반응을 유도함으로써 식물 성능에 영향을 미친다는 가설을 세웠습니다. 공동체 역사의 이러한 복잡한 상호 작용을 해결하기 위해 우리는 이러한 효과를 식물과 토양의 역사로 분리했습니다. 식물의 역사는 그들의 공동체에서 경험한 과거의 비생물적 및 생물적 선택 압력에 대한 모든 식물 수준의 반응을 의미하며, 토양의 역사는 다양한 식물 다양성 하에서 식물-토양 상호 작용의 유산으로 개발된 모든 비생물적 및 생물적 토양 특성과 관련이 있습니다. 우리는 지상과 지하의 환경 조건을 제어할 수 있는 육상 반폐쇄 생태계 시설인 에코트론(Ecotron)에서 생물다양성 실험을 진행하여 생물다양성 강화와 생태계 기능 관계의 관계가 토양의 역사, 식물의 역사 또는 이 둘의 조합에 기인하는지 테스트했습니다. 1, 2, 3, 6종의 초원 식물종으로 구성된 식물 다양성 구배를 설정하고 식물 종의 풍부도 수준별 토양 이력 및 식물 이력 처리와 요인적으로 중첩했습니다. 대표적인 결과는 Ecotron 실험에서 표적 처리의 성공적인 확립을 보여주며, 초기 식물 발달 및 최종 식물 성장에 대한 식물 및 토양 이력의 영향을 관찰했습니다. 또한 개별 반응 변수의 데이터 분석을 위한 사례 연구를 제공합니다. 우리는 궁극적으로 중요한 가설을 해결하는 데 필요한 실험적 치료에 대한 다기능 반응을 종합적으로 평가하기 위한 연구 목표와 방법을 간략하게 설명합니다.
서론
지난 30년 동안 생물다양성 손실에 대한 우려가 커지면서 식물 종의 풍부도를 실험적으로 조작하여 생태계 기능에 미치는 영향을 조사하는 데 초점을 맞춘 광범위한 연구가 진행되었습니다 1,2. 실험적 연구는 식물 다양성과 생태계 기능1 사이에 긍정적 인 관계를 보여주었으며, 이는 시간이 지남에 따라 증가하는 경향이 있습니다3 , 4 , 5 , 6 , 7 , 8 , 9 . 이는 최근에 형성된 젊은 군집으로부터 얻은 실험 결과가 생물다양성 손실의 결과를 과소평가하는 한편 더 오래되고 종이 풍부한 생태계를 보존하는 것의 중요성을 강조할 가능성이 있음을 시사한다는 점에서 중요한 발견이다10.
장기간의 실험에서만 관찰할 수 있는 시간에 따른 생물 및 비생물 과정의 변화는 생태계 기능에 대한 생물 다양성의 증폭 효과에 대한 한 가지 가능한 설명입니다. 높은 식물 다양성은 토양 탄소 및 영양 농도의 증가 3,9,11,12,13, 최적화된 자원 상보성 3,8,14, 식물 간의 틈새 분화 향상15, 모든 영양 수준에서 상호주의자의 축적10,16과 관련이 있습니다, 그리고 더 강력한 하향식 조절 메커니즘을 통해 병원체와 초식 동물의 위협 감소 17,18,19. 반대로, 낮은 식물 다양성은 식물 방어에 대한 투자 증가 및 자원 사용의 효율성 저하에 대한 선택적 압력과 관련이 있습니다 10,20,21,22. 종합하면, 다양성이 높은 식물 군집과 낮은 식물 군집에서의 다영양 군집 조립과 생물적 상호작용의 차이는 식물 군집 수준에서 식물 종의 플라스틱 또는 미시적 진화적 변화를 주도할 뿐만 아니라 소비자 군집 구조와 기능을 변화시킴으로써 식물 성능에 영향을 미치는 것으로 가설을 세웠다 23,24,25,26. 공동체 역사의 복잡한 상호 작용을 해결하기 위해 이러한 효과는 식물의 역사와 토양의 역사라는 두 가지 중요한 구성 요소로 분리되었습니다. 식물의 역사는 각각의 군집에서 경험한 과거의 비생물적 및 생물적 선택 압력에 대한 모든 식물의 반응을 의미하는 반면, 토양의 역사는 식물과 토양의 상호 작용의 결과로 발달된 모든 비생물적 및 생물적 토양 특성과 관련이 있습니다 23,24,27,28. 두 가지 구성 요소 모두 장기적인 생물 다양성 효과의 핵심 동인으로 점점 더 인식되고 있습니다 29,30,31.
실험적 현장 연구는 현실적인 환경 조건과 큰 공간 규모에서 토양 및 식물 역사의 장기적 영향에 대한 귀중한 통찰력을 제공합니다32,33. 그러나 현장 실험은 날씨 변동, 자연 교란 및 다른 유기체와의 상호 작용과 같은 통제되지 않은 다양한 외부 요인의 영향을 받습니다. 이와는 대조적으로, 소규모 소우주 실험은 자연 생태계의 복잡성과 역학을 포착하는 데 한계가 있지만 온도, 빛, 물과 같은 비생물적 요인을 정밀하게 제어할 수 있다34. 두 접근법의 장점을 결합하기 위해 1990년대에 '에코트론(Ecotrons)'이라는 새로운 실험 시설이 등장했다(예: 영국 실크우드의 에코트론(Ecotron)34; 프랑스 몽펠리에의 Ecotron35; Ecotron in Hasselt,Belgium 36). Roy et al. (2021)37은 Ecotron을 생태계 샘플을 수용하도록 설계된 복제된 인클로저로 구성된 실험 시설로 정의하여 지상 및 지하 환경 조건을 사실적으로 시뮬레이션하는 동시에 생태계 프로세스의 동시 및 자동 측정을 용이하게 합니다. 따라서 Ecotron은 복잡한 생태계 프로세스, 다영양 상호 작용 및 생태계 기능에 대한 통합 연구를 가능하게 합니다. 그들은 일련의 독립적인 반폐쇄우주 챔버(misocosm chambers)에서 여러 영양 수준의 다양한 지상 및 지하 유기체를 보유할 수 있으며, 이를 통해 지상 및 지하 시스템 모두에서 환경 조건을 정밀하게 제어하고 모니터링할 수 있습니다37,38.
이 연구에서는 iDiv Ecotron38,39에서 "JenaTron 실험"(그림 1 및 그림 2)이라고 하는 실험을 설정하여 식물 종의 풍부도가 다른 군집 내에서 생물 다양성-생태계 기능(BEF) 관계가 토양 역사, 공유 식물 역사 또는 이 둘의 결합된 효과에 의해 조절되는지 여부를 테스트했습니다. iDiv Ecotron은 다영양 생물 다양성 실험을 위해 특별히 설계되었으며, 육상 생태계 38,39,40에서 지상 및 지하 상호 작용에 대한 공동 조사에 중점을 둡니다. 'EcoUnits'(그림 2F, G)라고 하는 24개의 동일한 실험 단위로 구성되며, 각 유닛은 고립된 구획(그림 2K)에 최대 4개의 개별 생태계를 수용할 수 있어 환경 변동성의 영향을 최소화하면서 복잡하고 자연에 가까운 생태계를 구축할 수 있습니다. 한 가지 주요 이점은 통제된 환경 조건 하에서 온전한 토양 단일체(그림 2A-C)를 여러 번 복제할 수 있는 능력으로, 이를 통해 소규모 소우주 실험에서 포착하기 어려운 식물-식물 및 식물-토양 피드백 효과를 포함한 복잡한 생태계 과정을 측정할 수 있습니다 38,39.
유럽에서 반(半)자연 초원은 가장 생물 다양성이 높고 복잡한 육상 생태계 중 하나로, 중요한 생태계 서비스를 제공합니다. 그러나 20세기 초반부터 광범위하게 관리된 이 초원은 토지 이용 변화로 인한 위협이 증가함에 따라 생물다양성 보존 및 연구의 핵심 초점이 되었습니다. 광범위하게 관리되는 초원에서 세계에서 가장 오래 진행된 생물다양성 실험 중 하나는 독일 예나(50.951°N, 11.621°E, 해발 139m, 웹사이트: https://the-jena-experiment.de)에 위치한 Jena Experiment32,33입니다. 2002년에 설립된 이 실험은 초원 식물의 다양성과 생태계 기능 간의 관계를 조사하며, 특히 영양 순환과 영양 상호작용에 초점을 맞춥니다32,33. iDiv Ecotron 내에 JenaTron Experiment를 설치하기 위해 2010년에 시작되어 2021년에 완료된 Jena Experiment의 구성 요소인 Trait-Based Experiment41(TBE)을 활용했습니다. 2022년에는 iDiv Ecotron 내 24개 이상의 식물 군집에 걸쳐 1종에서 6종에 이르는 식물 다양성 구배를 설정하기 위해 TBE의 23개 구획을 선택했습니다. 이 군집은 6 종의 초원 식물로 구성되었으며, 이는 예나 실험의 주요 실험과 겹쳐 3 종의 잔디 종 (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.)과 3 종의 목초 종 (Leucanthemum vulgare agg., Plantago lanceolata L. 및 Ranunculus acris L., 표 1 참조)을 대표합니다 식물 종 구성 및 각 식물 다양성 수준에 대한 복제에 대한 자세한 내용). 반자연적인 유럽 초원에 널리 퍼져 있고 자주 공존하는 이 종들은 시간적 자원 획득 특성도 다르기 때문에 식물 현상학41과 같은 시간적 자원 사용에 대한 포괄적인 연구에 이상적이다. 24개의 식물 구성은 모든 EcoUnit에 무작위로 할당되었으며(그림 1C), 각 EcoUnit은 토양 이력과 식물 이력 처리의 요인 조합을 수용하기 위해 4개의 구획으로 더 세분화되었습니다.
토양의 역사(그림 1A)는 예나 실험에서 총 96개의 토양 기둥을 굴착하여 확립되었습니다. 이 사이트의 토양은 양토 강 퇴적물32,33에서 개발 된 Eutric Fluvisol로 분류 된 영양이 풍부한 범람원 토양입니다. 예나 실험 토양 프로파일 내의 토양 pH, 토양 질감 변화 및 유기물에 대한 자세한 정보는 Lange et al. (2023)9에서 확인할 수 있습니다. 96 개의 모놀리식 중 48 개는 22 개의 TBE 플롯 각각에서 2 개의 모놀리식을 굴착하여 공급되었으며, 단일 재배, 2 종 및 3 종 혼합물을 포함합니다. 또한, 8종의 플롯에서 4개의 거대 돌기둥을 채취했으며, 이는 JenaTron 실험에서 6종의 혼합물로 사용될 것입니다. 이 48개의 토양 기둥(깊이: 0.8m, 직경: 0.5m) 각각은 2010년부터 구획별 거주 공동체를 품고 있어 식물 군집별 토양 역사(+SH)를 나타냅니다. 나머지 48 개의 거대 돌기둥은 2002 년 예나 실험이 시작된 이래로 초목이 없는 4개의 맨땅에서 굴착되어 식물 군집 특이적 토양 역사(-SH)가 없습니다. 4 개의 맨땅 구획에서 각각 12 개의 기둥이 발굴되었습니다. 두 가지 토양 이력 처리(+SH; -SH)는 개별 식물을 6cm 간격으로 두고 동일한 밀도로 TBE의 식물 군집 특정 구성을 반영하는 미리 자란 식물을 심음으로써 두 가지 식물 이력 처리와 요인적으로 결합되었습니다.
식물 역사(그림 1B)는 예나 실험 종 풀에서 선택된 각 식물 종에 대해 두 가지 별개의 종자 공급원을 사용하여 확립되었습니다: 첫 번째 공급원은 2010년 이후 군집 특이적 역사를 경험한 식물에서 수집한 종자로 구성되었으며, 이는 토양 단일체가 발굴된 정확한 TBE(Trait-Based Experiment) 플롯에 해당합니다(+PH). 이 씨앗은 2019년 5월부터 9월까지 종 개화 현상학에 따라 수집되었으며, 종 및 플롯당 최소 5명의 개체가 샘플링되었는지 확인했습니다. 채취 후, 씨앗은 JenaTron 실험이 시작될 때까지 -20°C에서 세척하고 보관했습니다. 두 번째 종자 공급원은 지역 원산지의 종자를 생산하는 상업용 종자 공급업체로부터 얻은 종자로 구성되었습니다. 이 씨앗은 2010년 TBE 플롯을 설정하는 데 사용되었으며, 따라서 예나 실험(-PH) 내에서 군집별 선택 이력이 없는 식물을 나타내며 2010년부터 JenaTron 실험이 시작될 때까지 -20°C에서 보관되었습니다. 6개의 다년생 식물 종의 두 역사는 2022년 2월부터 5월까지 독일 라이프치히에 위치한 iDiv 연구 온실의 4개의 챔버(51.330°N, 12.393°E, 해발 120m)에서 사전 배양되었습니다.
식물 종의 풍부도의 각 수준에서 토양 역사(SH)와 식물 역사(PH)의 계승 조합은 24개의 EcoUnits 내에서 각각 4가지 처리를 수행했습니다: (1) 토양 역사, 식물 역사(+SH/+PH), (2) 토양 역사, 식물 역사(+SH/-PH), (3) 토양 역사가 없음, 식물 역사(-SH/+PH), (4) 토양 역사가 없음, 식물 이력 없음(-SH/-PH; 그림 1C). JenaTron 실험의 주요 목적은 생물 다양성과 생태계 기능 간의 강화 관계가 토양 역사, 식물 역사 또는 둘의 조합 때문인지 여부를 조사하는 것입니다. 우리는 식물과 토양 군집별 역사를 공유하는 식물 군집이 가장 강력한 BEF 관계를 보일 것이라는 가설을 세우는 반면, 토양 역사, 식물 역사 또는 둘 다를 실험적으로 배제하면 식물 다양성과 생태계 기능의 긍정적인 관계에 해로운 영향을 미칠 수 있습니다. 궁극적으로, 토양 또는 식물의 역사가 식물 종의 풍부함과 생태계 기능 사이의 관계를 변화시킨다면, 이는 지역적으로 보존되고 새롭게 복원된 공동체의 보전과 모니터링에 중요한 고려 사항이 될 것입니다.
프로토콜
알림: 모든 프로토콜 단계에서 적절한 개인 보호 장비(예: 헬멧, 장갑, 양복 조끼, 안전화 등)가 제공되는지 확인하십시오.
1. 토양 : 준비, 굴착, 설치
- 토양 공급원, 부지 선택 및 준비(2022년 2월)
- 예나 실험 현장 현장에서 두 개의 토양 공급원을 선택합니다.
- 1, 2, 3, 6종의 식물 다양성 구배를 커버하기 위해 12년 동안 플롯별 커뮤니티를 품고 있는 23개의 TBE 플롯을 선택합니다. 이 플롯을 "식물 군집 특정 토양 역사"(+SH)가 있는 JenaTron 실험 처리로 지정합니다.
- TBE 플롯과 토양 특성(pH, 모래 함량 등)이 동일하지만 2002년 이후 식생 덮개 없이 유지된 4개의 맨땅 플롯을 선택합니다. 이러한 플롯을 "식물 군집 특정 이력이 없는"(-SH) JenaTron 실험 처리로 지정합니다.
- 미니 굴삭기를 사용하여 선택한 모든 구획에서 위쪽 5cm의 토양을 부드럽게 제거하여 토양 이력 처리 전반에 걸쳐 조건을 균등화합니다.
- 예나 실험 현장 현장에서 두 개의 토양 공급원을 선택합니다.
- 토양 모놀리식 굴착 공사 (2022년 3월)
- 각 플롯에 모놀리식 추출 장치를 설정하고, 빈 강철 실린더에 절단 시스템을 장착하고, 추출 장치에 삽입합니다(그림 2A).
- 장치를 켜면 절단 시스템이 외부 실린더 벽 주위로 회전합니다. 이 시스템은 추출 장치가 강철 실린더를 동시에 누르는 토양의 노치를 절단합니다. 동시에 미니 굴착기를 사용하여 강철 실린더 측면에 구덩이를 굴착합니다(그림 2B).
- 강철 실린더가 토양에 완전히 묻히면 측면 구덩이로 올라가 임시 바닥 플레이트를 장착하여 강철 실린더의 하단 가장자리에 있는 모놀리식을 자르고 모놀리식 추출 장치를 사용하여 굴착 구덩이에서 들어 올립니다(그림 2C).
- 강철 실린더에서 절단 시스템을 분해하고 강철 실린더에 임시 상판을 장착하고 미니 굴착기에 부착된 서스펜션을 사용하여 기둥을 들어 올려 거꾸로 뒤집습니다.
- 물 흡입 시스템 설치(2022년 3월)
- 바닥판을 분리하고 흙손으로 약 5cm의 토양층을 제거한 다음 나중에 사용할 수 있도록 보관하십시오.
- 석영 분말에 물 흡입 프로브 링(폴리염화비닐[PVC] 호스로 연결된 양초 8개)을 삽입하고 탈염수(VE)로 촉촉하게 한 다음 강철 실린더 바닥에 이전에 제거한 흙을 다시 채웁니다.
- 물 흡입 프로브 링의 PVC 끝 부분을 바닥 플레이트에 연결하고 이후에 볼트로 고정합니다.
- 미니 굴삭기의 서스펜션이 있는 강철 실린더를 다시 똑바로 세우고, 개별적으로 라벨을 붙이고, 접착 테이프로 실린더 벽의 구멍을 밀봉하고, 운송 중 보호를 위해 실린더를 플라스틱 호일로 감쌉니다.
- 독일 바트 라우슈테트(Bad Lauchstädt)에 있는 헬름홀츠 환경 연구 센터(Helmholtz Center for Environmental Research, UFZ)의 실험 현장 스테이션(51.392°N, 11.876°E, 해발 116m)에 위치한 iDiv Ecotron으로 트럭을 타고 토양 기둥을 운반합니다.
- 토양 센서 설치(2022년 4월)
- 포장을 푼 후 세 가지 깊이(9.5cm, 21.5cm, 43.5cm)의 실린더 벽의 구멍을 사용하여 맞춤형 강철 블레이드를 사용하여 토양 기둥에 센서용 구멍을 수평으로 정밀하게 자릅니다.
- 토양 센서를 구멍에 배치하고, 나무 통나무를 사용하여 올바른 위치로 가져오고, 맞춤형 밀봉 플러그로 구멍을 볼트로 고정합니다.
- EcoUnits에 토양 모놀리식 설치(2022년 4월)
- 하단에서 각 EcoUnit의 기술 및 상단을 조심스럽게 들어 올립니다(그림 2G). 토양 센서가 장착된 손상되지 않은 토양 기둥이 있는 강철 실린더로 하부를 운반합니다.
- 각 강철 실린더를 서스펜션에 부착하고 지게차로 들어 올린 다음 바닥 플레이트에 연결된 흡입 캔들 링에 커넥터를 장착합니다.
- 4개의 토양 모놀리식을 24개 EcoUnits 각각의 하단 용기로 들어 올리고(그림 2F), 2개는 동일한 식물 군집 특이적 토양 이력(+SH)을 가지고 있고 2개는 식물 군집 특이적 토양 이력(-SH)이 없습니다. 접지 용기의 구멍을 통해 토양 센서의 케이블을 연결합니다.
- 강철 실린더를 나사로 하부에 고정한 후 이전에 설치된 커넥터를 통해 각 실린더의 물 흡입 캔들 링을 EcoUnit의 물 흡입 시스템에 연결합니다.
- 지게차를 사용하여 토양 기둥이 장착된 용기를 홀(24m x 24m)로 운반합니다.
- 각 EcoUnit의 기술 및 상부(서브유닛 사이에 내부 벽이 있음[그림 2K])를 하단 부분 위에 조심스럽게 다시 놓습니다.
- 24개의 EcoUnit을 모두 3줄로 정렬하고, 각 행은 4개의 EcoUnit으로 구성된 2개의 그룹으로 구성되어 총 6개의 블록을 형성합니다. 각 행 내의 블록 사이에는 6m, 행 사이에는 8.2m의 중심 간 거리를 확보합니다. 각 블록에서 4개의 식물 다양성 수준(1, 2, 3, 6)을 4개의 EcoUnit에 무작위로 할당하여 가능한 한 모든 EcoUnit에 걸쳐 종의 균등한 분포를 보장합니다.
2. 식물 : 준비 및 재배 설치
- 종 및 종자 재료의 선택
- 예나 실험 종 풀에서 Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg의 6 가지 식물 종을 선택하십시오. (국화과), Plantago lanceolata L. (Plantaginaceae) 및 Ranunculus acris L. (Ranunculaceae).
- 각 종에 대해 두 가지 다른 종자 공급원에서 유래한 종자 재료를 선택합니다.
- 2010년부터 예나 실험의 TBE 플롯에서 자라고 있던 식물의 씨앗을 사용합니다(식물 이력 포함, +PH).
- 2010년 TBE를 시작하는 데 사용된 원래 종자 재료를 지역 종자 생산자(식물 이력 없음, -PH)에서 공급하여 사용합니다.
- 기판 준비(2022년 2월)
- Jena Experiment 현장 부지에서 선택한 각 구획에서 구획별 토양을 수집합니다. 토양을 20L 플라스틱 상자에 채우고 식물 재배에 사용할 때까지 4 °C에서 보관하십시오.
- 4mm 메쉬를 통해 각 구획별 토양을 체로 거릅니다. 체질하기 전에 4개의 맨땅 플롯에서 토양을 혼합하십시오.
- 원치 않는 생물군을 제거하려면 석영 모래를 스테인리스 스틸 용기에 옮기고 건조 오븐에서 200°C에서 4시간 동안 가열합니다.
- 플롯별 토양과 석영 모래를 3:1 비율로 혼합하고 플라스틱 삽(총 n = 152)을 사용하여 토양-모래 혼합물을 다중 냄비 플레이트에 채웁니다.
- 각 멀티포트 플레이트에 개별적으로 라벨을 붙이고 16시간/18°C 및 8시간/12°C의 낮과 밤 주기로 온실에 놓고 60%-70% 상대 습도(RH)의 적당한 습도를 유지합니다.
- 필요에 따라 접시에 물을 주고 토양 종자 은행이 발아할 수 있도록 2주 동안 맨손으로 보관하십시오. 원치 않는 묘목을 제거하기 위해 모든 접시를 두 번 잡초를 제거하십시오.
- 파종 캠페인 (2022년 3월-4월)
- 다음과 같이 종별 발아 시간을 기준으로 파종 순서를 결정합니다.
- 다른 허브보다 2주 먼저 R. acris를 파종하십시오.
- 암퇘지 P. lanceolata 및 L. vulgare 는 잔디 A. odoratum, D. glomerata 및 H. lanatus보다 1주일 앞서 있습니다.
- R. acris를 제외한 모든 종을 화분당 2개 또는 3개의 씨앗이 있는 다중 화분 플레이트의 플롯별 토양-모래 기질(3:1)에 직접 파종합니다. 성공적인 발아 후 스프링 스틸 핀셋을 사용하여 모든 종을 단일 묘목으로 얇게 만듭니다.
- 지베렐릭 산 용액(1000mg)으로 적신 여과지의 페트리 접시에 R . acris 씨앗을 전처리합니다. L−1)을 사용하여 휴면 상태를 끊습니다(그림 2D). 씨앗을 24시간 동안 배양합니다.
- 발아할 때까지 R. acris 씨앗을 탈염수(VE)에 적신 여과지로 옮깁니다. 씨앗이 radicle 단계에 도달하면 스프링 강철 핀셋을 사용하여 준비된 멀티포트 플레이트의 플롯별 토양-모래 기질(3:1)에 묘목을 찔러넣습니다.
- 필요에 따라 모든 식물 개체에 탈이온수를 공급하고 iDiv Ecotron으로 운반할 때까지 온실에 보관합니다(그림 2E-H).
- 다음과 같이 종별 발아 시간을 기준으로 파종 순서를 결정합니다.
- 식재 캠페인 (2022년 5월)
- 다음과 같은 특성을 가진 모든 토양 모놀리식에 대한 개별 식재 계획을 설계합니다.
- 식물 군집 내에서 종당 균형 잡힌 수의 개체를 보장합니다.
- 각 식물 개체와 이웃 식물 사이에 6cm의 거리를 유지하십시오.
- EcoUnits 전체에서 심기 패턴을 무작위화하되 하위 단위 내에서는 일정하게 유지합니다.
- 맞춤형 심기 스텐실을 사용하여 토양 기둥에서 각 식물 개체의 정확한 위치를 표시하십시오. 표시를 위해 다른 색상의 플라스틱 이쑤시개를 사용하여 각 종에 특정 색상을 지정하십시오. 마킹 후 스텐실을 제거합니다(그림 2I).
- 직경 4cm의 구근 파종기를 사용하여 일주일 이내에 모든 토양 기둥에 미리 자란 식물을 심습니다 (총 5280 개의 식물 개체; 그림 2J).
- 다음과 같은 특성을 가진 모든 토양 모놀리식에 대한 개별 식재 계획을 설계합니다.
3. 실험 과정
- 3주 설립 단계(2022년 5월):
- 초기 파종 후 2주 이내에 파종 캠페인에서 살아남지 못한 모든 개체를 교체합니다(n = 124 [2.35%]).
- 조명을 켜고 조명 체계를 16/8시간 낮과 밤 주기로 설정합니다. 실험 시작 시 늦봄과 여름의 지역별 낮 길이를 복제하려면 한 시간 동안 조명을 100%에서 75% 강도로 어둡게 한 다음 다음 시간에 걸쳐 0%로 어둡게 하여 황혼을 시뮬레이션합니다(100% 강도: ~370μmol/(m²·s)). 이 어둡게 하는 패턴을 반대로 하여 새벽을 시뮬레이션합니다.
- 토양 수분 측정 키트를 사용하여 상부 토양 수분을 부피의 20%(± 3%)로 균등화합니다.
- 각 소단위에 대해 12시간마다 초기 관개를 450mL로 설정합니다.
- 공기 및 토양 센서를 연결하여 실험 전반에 걸쳐 온도와 습도를 모니터링합니다.
- 실험 단계(2022년 6월-10월)
- 자연적인 계절에 따라 8월부터 10월까지 2주마다 낮 길이를 한 시간씩 줄여 늦여름부터 가을까지의 지역적 낮 길이를 고려합니다.
- 초기 관개를 7월에는 12시간마다 650mL로, 8월에는 12시간마다 750mL로 늘려 식물의 물 수요에 맞게 조정합니다.
- 자엽 단계에서 핀셋을 사용하여 원치 않는 묘목을 지속적으로 제거하여 식물 밀도를 유지하면서 토양 구조에 대한 방해를 최소화합니다.
- 광범위하게 관리되는 초원에 대한 표준 관리에 따라 토양 표면에서 3cm 높이의 식물을 가위로 자르고 지상 바이오 매스를 두 번 수확합니다.
결과
생물 다양성과 생태계 기능 관계에 대한 식물과 토양의 역사가 독립적이고 상호 작용적인 영향을 테스트하는 데 있어 이 접근 방식의 효과에 대한 초기 통찰력을 제공하기 위해 먼저 치료 효과가 빠르게 가시화되는 JenaTron 실험의 3주 확립 단계 이후 두 개의 대표적인 EcoUnits의 사진을 평가했습니다(그림 3). 식물 군집 높이와 색상에 대한 처리별 차이 외에도(그림 3A) R . acris의 개화시기에 대한 처리별 차이를 추가로 인식했습니다. 특히, 식물 이력이 없는 씨앗에서 자란 식물은 예나 실험의 군집 특이적 식물 이력을 가진 씨앗에서 자란 식물보다 꽃이 더 일찍 발병하는 것으로 나타났습니다(그림 3B).
iDiv Ecotron에 새로 설립된 군집이 원래 현장 군집을 정확하게 반영하는지 평가하기 위해 JenaTron 실험과 TBE 플롯 간의 최종 식물 발달 지표로 종별 식물 높이의 비교 분석을 수행했습니다. JenaTron 실험에서 식물 높이는 2022년 7월 첫 수확 캠페인 종료 직전에 24개 군집 및 처리 조합 각각에서 식물 종당 3명의 개체당 가장 높은 식물 잎의 평균값으로 결정되었습니다. TBE에서는 2012년 7월에 식물 종 및 구획당 3개 개체의 가장 높은 식물 잎의 평균값으로 식물 높이를 결정했습니다. iDiv Ecotron의 식물 높이 측정은 Jena Experiment 필드 플롯의 측정과 강한 상관 관계를 보여줍니다(보충 그림 1).
데이터 분석을 위한 사례 연구를 추가로 제공하기 위해 iDiv Ecotron의 식물 높이를 더 자세히 조사했습니다. 우리는 종 및 군집 수준 분석에 중점을 두고 식물의 역사, 토양의 역사 및 식물 다양성이 식물 성장에 영향을 미치는지 여부를 테스트했습니다. 이를 위해 선형 혼합 효과 모델(LMM)을 사용하고 ANOVA(I형 제곱합, 자세한 ANOVA 결과는 보충 표 1 참조)를 통해 결과를 요약했습니다. 플롯 수준에서 반응 변수는 평균 식물 식물 높이와 식물 높이의 변동 계수(CV = sd/mean 100)였습니다. 고정 효과에는 식물 다양성(숫자), 식물 및 토양 이력 처리 및 상호 작용이 포함되었습니다. 무작위 효과에는 Ecotron 홀 블록 내에 중첩된 EcoUnit이 포함되었습니다. 종 수준에서는 종과 식물 다양성 및 역사 처리와의 상호 작용을 고정된 용어로 추가로 포함했습니다. 데이터 변환(식물 높이에 대한 로그 및 높이에 대한 제곱근(CV))을 통해 모델 가정이 충족되도록 했습니다. 분석은 R(Version4.3.1)42 및 LMM용 nlme 패키지(43)를 사용하여 수행되었습니다. 결과는 식물 높이에서 상당한 종 차이를 보여주었으며 풀이 forbs보다 키가 큰 것으로 나타났습니다(그림 4, 보충 그림 2). 모든 종에서 토양 역사는 식물 높이에 긍정적인 영향을 미쳤지만(F(1,66) = 11.11, P = 0.001), 식물의 역사와 다양성은 각각 유의한 영향을 미치지 않았습니다(F(1,66) = 0.22, P = 0.64 및 F(1,17) = 1.52, P = 0.23). 그림 4). 군집 수준에서는 식물의 다양성이 높이에 영향을 미치지 않았다(F(1,17) = 0.01, P = 0.91; 그림 5A) 그러나 군집 내에서 식물 높이 CV가 유의하게 증가했다 (F (1,17) = 14.29, P = 0.002; 그림 5B). 식물 또는 토양 이력의 유의미한 영향은 식물 높이 CV (F (1,68) = 0.55; P = 0.46; F(1,68) = 0.09, P = 0.76; 그림 5). 데이터와 R 스크립트를 Jena Experiment 데이터베이스(https://doi.org/10.25829/QN9R-J839)에 업로드했습니다.

그림 1: JenaTron 실험의 설정. (A) 토양 역사(SH)는 예나 실험(JE)에서 96개의 온전한 토양 기둥을 굴착하여 확립되었으며, 그 중 절반(n = 48)은 12년 동안 구획별 군락이 있는 23개의 구획에서 얻었고(+SH), 나머지 절반(n = 48)은 2002년 예나 실험이 시작된 이래 식생이 없는 4개의 맨땅 구획에서 얻었습니다(-SH). (B) 식물의 역사(PH)는 6가지 식물 종 각각에 대해 2개의 종자 공급원을 사용하여 확립되었습니다: 예나 실험(Jena Experiment)에서 거대 돌기둥이 발굴된 동일한 구획에서 2010년부터 자란 식물에서 수집한 씨앗과 2010년에 이 군락을 파종하는 데 사용된 원래 씨앗(-PH). (C) 식물 이력과 토양 이력은 서로 다른 식물 다양성 수준(1, 2, 3 및 6)에서 각 구성에 대해 독립적으로 교차되어 iDiv Ecotron의 각 EcoUnit에서 (1) +SH/+PH, (2) +SH/-PH, (3) -SH/+PH 및 (4) -SH/-PH의 4가지 처리가 이루어졌습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.

그림 2: 독일 바트 라우슈테트(Bad Lauchstädt)에 있는 헬름홀츠 환경 연구 센터(UFZ)의 연구 스테이션에 있는 iDiv Ecotron. (A) 현장의 토양 모놀리식 굴착 장비, (B) 현장의 토양 모놀리식 굴착, (C) 현장의 굴착 구덩이, (D) 온실의 지베렐릭산 용액으로 적신 여과지의 페트리 접시에서 Ranunculus acris 종자 재료 준비, (E) 온실의 멀티포트 플레이트에 플롯별 토양 기질이 있는 식물의 사전 재배, (F) iDiv Ecotron 홀의 EcoUnit, (G) 기술 장비(Eisenhauer et al. (2019)23 및 Schmidt et al. (2021)38에서 각색)을 갖춘 하나의 실험 단위("EcoUnit")의 개략적인 묘사, (H) iDiv Ecotron으로 운송된 후 JenaTron 실험에 심을 모든 개체가 있는 플레이트, (I) 식재 스텐실로 만든 토양 모놀리식에 모든 식물 개체의 심기 위치에 대한 종별 표시, (J) 구근 파종기를 사용하여 토양 모놀리식에 식물 개체 심기, (K) 내부 벽이 있는 EcoUnit의 4개 lysimeter. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.

그림 3: 24개 EcoUnit의 두 대표자로, 각각 식물 및 토양 역사의 모든 처리 조합에서 하나의 군집을 보유하고 있습니다. (A) 3종 혼합물(A. odoratum, H. lanatus 및 P. lanceolata)이 있는 EcoUnit은 군집 식생 높이와 색상에 대한 처리 특이적 차이를 가지고 있습니다. (B) R. acris의 단일 재배를 가진 EcoUnit은 개화시기에 따라 식물 역사에 따른 차이를 나타냅니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
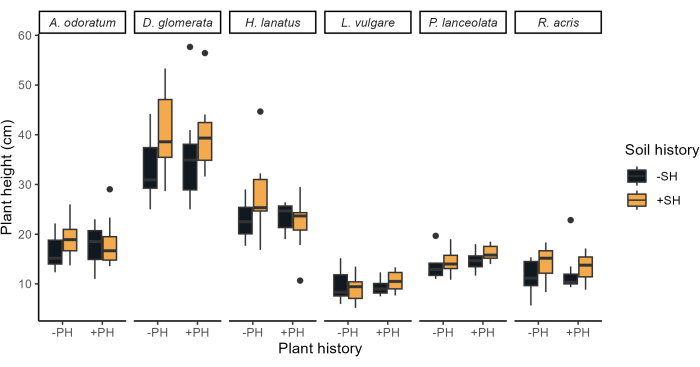
그림 4: 2022년 7월 첫 수확 전 6개 초원 식물 종의 식물 높이(cm)에 대한 식물 및 토양 역사의 영향. 종은 기능 그룹 내에서 알파벳순으로 나열됩니다(풀, 그 뒤에 forbs). 식물 이력 처리(+PH/-PH)는 x축에 있고 토양 이력(+SH/-SH)은 상자 그림에서 색상으로 구분(노란색/검은색)됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
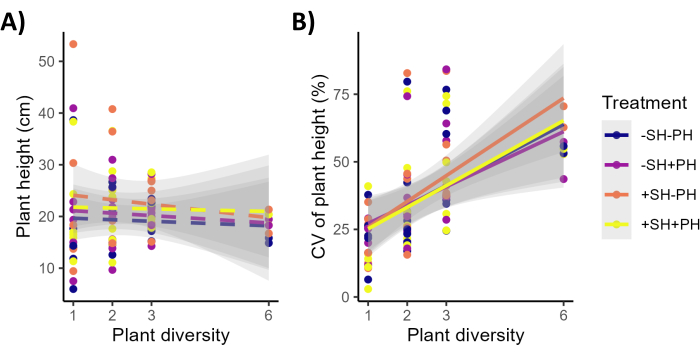
그림 5: 종 풍부도가 군집 평균과 식물 높이의 변화에 미치는 영향. (A) 군집 평균. (B) 식물 높이의 변화. (+PH/-PH)는 식물의 역사, (+SH/-SH)는 토양의 역사입니다. 식물 높이 변화(CV)는 소단위별로 표시됩니다. 점선은 중요하지 않음을 나타내고 실선은 식물 다양성에 큰 영향을 나타냅니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
표 1 JenaTron 실험의 식물 군집. 선택된 모든 식물 종의 단일 배양(n = 6); 2 종 혼합물 (n = 9); 3 종 혼합물 (n = 7) 모두 다른 조성물; 및 6 종 혼합물의 두 개의 동일한 반복 실험 (n = 2). 이 표를 다운로드하려면 여기를 클릭하십시오.
보충 그림 1 : 종의 평균 식물 높이. (A) JenaTron 실험 플롯(2022년 7월) 및 필드 (B) TBE 플롯(2012년 7월)에서 종의 평균 식물 높이. 식물 이력 및 토양 이력이 있는 처리의 데이터만 패널 A에 포함되었습니다. JenaTron 실험의 식물 높이와 필드 플롯 사이에는 상당한 상관 관계가 있습니다(Pearson 상관 r(49) = 0.45, p = 0.0008). 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 2: 식물 및 토양 역사 처리가 서로 다른 수준의 식물 다양성(SR)에서 6가지 식물 종의 식물 높이(cm)에 미치는 영향. 범례 기호 +PH 및 -PH는 식물 이력이 있거나 없는 처리를 나타내고, +SH 및 -SH는 각각 토양 이력이 있거나 없는 처리를 나타냅니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 1: 분산 분석은 종 수준과 플롯 수준 모두에서 식물 높이에 대한 식물 다양성(종 풍부도, SR), 토양 이력(SH) 및 식물 이력(PH)의 영향을 평가하는 선형 혼합 효과 모델의 결과입니다. F-값과 p-값은 각 항에 대해 보고됩니다. 참고: numDF와 denDF는 각 모델 항에 대한 분자와 분모 자유도를 나타냅니다. 0.05< p-값은 식물 높이에 통계적으로 유의미한 영향을 미친다는 것을 시사합니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 2: 지상 및 지하 측정, 응답 변수 및 방법. JenaTron Experiment에서 수행된 지상 및 지하 측정, 반응 변수 및 방법의 스펙트럼은 식물 역사와 토양 역사가 전체 생태계의 BEF 관계에 미치는 독립적이고 상호 작용적인 효과를 연구합니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
JenaTron Experiment를 통해 Jena Experiment field site32,33에 대한 보완적인 실험 접근 방식을 제공하여 BEF 관계에 대한 기계론적 이해를 향상시킵니다. 현장 실험을 통해 토양 역사와 식물 역사가 현실적인 환경 조건에서 생태계 기능에 미치는 장기적인 영향을 연구할 수 있으며, 수년에 걸쳐 반복적으로 측정할 수 있는 크고 방해받지 않는 플롯을 사용할 수 있습니다. 최대 60종의 단일배양에서 잘 확립된 식물 다양성 구배를 따라 대규모 종 풀에서 무작위로 선택된 식물 종의 조합은 종 특이적 효과를 가능한 한 많이 배제함으로써 다양성 효과를 식별하는 데 도움이 됩니다32,33. 그러나 예나 실험(Jena Experiment)의 일환으로 'ΔBEF 실험(ΔBEF Experiment)'을 명시적으로 언급하는 현장 실험(자세한 내용은 Vogel et al. (2019)29 참조)은 토양 역사와 식물의 역사를 서로 완전히 독립적으로 조사하는 데 한계가 있으며, 날씨 변화, 자연 교란, 다른 유기체와의 상호 작용과 같은 다양한 외부 요인의 잠재적 영향으로부터 자유롭다.29. 이 시점에서 Ecotron 실험을 사용하는 보완적 접근 방식이 BEF 연구의 초점이 됩니다. 에코트론(Ecotron) 실험은 소수의 종 또는 단 하나의 종만을 연구하는 소규모의 단기 소우주 실험 사이의 중요한 연결 고리를 나타내며, 따라서 현장 실험이나 실제 세계의 높은 복잡성을 줄여준다34,38. 따라서 에코트론 실험의 주요 목적은 자연의 복잡성을 완전히 모방하는 것이 아니라 단순하지만 생물학적으로 의미 있는 생태계를 만드는 것입니다. 이를 통해 현실 세계에서 발생하는 많은 생물학적 과정과 상호 작용을 더 잘 이해할 수 있습니다34,37. 더욱이, 에코트론(Ecotron)의 폐쇄형 시스템은 플럭스(fluxs)와 프로세스(process)를 연구할 수 있게 해주는데, 이는 종종 이 분야에서 쉽게 연구할 수 없다35.
이전 연구에서는 실험 기법의 다양한 변형이 활용되어 iDiv Ecotron 시설의 상당한 적응성을 강조했습니다. 예를 들어, 2018년에 수행된 "곤충 아마겟돈" 실험44은 지상의 내부 벽과 지하 해부를 강철 실린더로 제거하여 EcoUnits를 재구성하는 것과 관련이 있습니다. 대신, 지하 용기는 토양과 모래의 혼합물로 완전히 채워져 EcoUnit 당 1.5m2 의 토양 표면적에 걸쳐 12 종의 유럽 식물 종으로 구성된 초원 공동체의 설립을 용이하게했습니다. 이 실험적 설계를 통해 지상 무척추동물의 두 가지 뚜렷한 풍부도를 도입할 수 있었으며, 이를 통해 연구자들은 무척추동물 바이오매스 감소가 중부 유럽 초원 생태계 내의 생태계 기능 및 서비스에 미치는 영향을 조사할 수 있었습니다. 또 다른 예시는 2020년에 수행된 "EcoLux" 실험으로, 이 실험은 야간 빛 공해가 식물 다양성 및 성과45 및 토양 군집 및 기능에 미치는 영향46 에 미치는 영향을 조사하기 위해 광 체제의 변형을 보여주었습니다. 앞으로 추가 수정의 가능성은 여전히 상당합니다. 2026년으로 예정된 'ResCUE' 실험은 극한 기후26에서 식물 다양성과 생태계 안정성 사이의 관계를 조사하는 것을 목표로 한다. 이 실험은 iDiv Ecotron에 설정된 초원 식물 다양성의 구배에 걸쳐 강수량 감소와 온도 상승을 시뮬레이션하여 자연 환경에서 복제하기 어려운 환경 조건인 표준화된 고온 가뭄을 구현합니다. 이 연구는 통제된 기후 극한 현상26에 대응하여 여러 생태계 기능의 저항과 회복을 평가하는 데 중점을 둘 것입니다.
그러나 현장 실험과 소규모 소우주 실험을 연결하기 위해 에코트론 시설을 사용하는 것은 여전히 상대적으로 작은 공간 규모, 적은 복제 횟수, 낮은 생물학적 복잡성 및 자연적인 기후 변동성의 표현 부족과 같은 한계를 수반합니다37. 또한 iDiv Ecotron 시설은 겨울과 같은 모든 종류의 기후 시나리오를 시뮬레이션할 수 없기 때문에 여러 세대에 걸쳐 현실적인 연간 주기로 개별 식물을 연구하는 데 제한이 있습니다. 따라서, 앞서 언급한 바와 같이, 에코트론 연구를 다른 실험 접근법의 결과와 함께 궁극적으로 고려되어야 하는 보완적인 연구 접근법으로 간주하는 것이 매우 중요하다37. 그럼에도 불구하고, iDiv Ecotron 시설은 통제된 환경 조건 하에서 온전한 토양 단일체를 연구하고, 서로 다른 식물 군집 특이력을 가진 식물을 서로 다른 식물 군집 특이적 역사를 가진 토양과 직교 교배하고, 현장 조건에서 달성하기 어려운 식물 다양성 구배를 따라 생태계 기능에 미치는 영향을 연구할 수 있는 독특한 기회를 제공합니다23, 35. 또한 이 기술을 사용하면 통제된 환경 조건 하에서 지상 및 지하 모두에서 식물 전체를 연구할 수 있지만 이는 현장에서 쉽게 달성할 수 없습니다. 마지막으로, JenaTron 실험에서는 (파종된 것이 아닌) 심은 식물 군집이 확립되어 각 종이 동일한 비율로 표현된 동일한 총 식물 밀도를 보장했습니다. 대조적으로, 파종된 군집에서는 종들이 종종 다른 속도로 형성되며, 일부 목표 종은 완전히 정착하지 못하거나 매우 낮은 풍부도로 남을 수 있습니다.
제시된 프로토콜의 재현성을 보장하려면 실행 중에 몇 가지 중요한 단계를 세심하게 고려해야 합니다. (1) 토양 모놀리식 굴착: iDiv Ecotron 시설의 주요 장점 중 하나는 통제된 환경 조건 하에서 온전한 토양 모놀리식의 상당한 수의 복제를 설정할 수 있다는 것입니다. 토양 모놀리식의 무결성을 보장하려면 토양 모놀리식 추출을 위한 최적의 현장 조건을 유지하는 것이 필수적입니다. 특히, 과도한 토양 수분은 토양 기둥의 다짐으로 이어질 수 있으며, 너무 건조하거나 얼어붙은 토양은 균열을 형성할 수 있습니다. 이러한 요인으로 인해 거대 돌기둥이 손상된 경우 폐기해야 하므로 굴착 과정을 반복해야 합니다. (2) 종 선택: 설명된 프로토콜은 TBE의 6가지 초원 식물 종을 사용하며, 이는 주요 실험과의 중복, 풀과 식물의 균형 잡힌 표현, 다양한 자원 사용 전략(예: 식물 현상학)을 연구할 수 있는 가능성을 기반으로 선택되었습니다41. 생물다양성 실험의 경우 6종은 종 수가 적으며, 다른 형질 조합을 가진 다른 종을 선택하면 다른 실험 결과가 나올 수 있으므로 신중하게 고려해야 합니다. (3) 식물 밀도 및 모든 종의 동일한 비율 : JenaTron 실험 설정의 주목할만한 장점은 식물 군집이 동일한 총 식물 밀도로 형성되고 각 종이 동일한 수의 개체로 표현된다는 것입니다. 일관된 식물 밀도와 동일한 재배 비율을 보장하는 것은 개별 종의 차등 설립과 관련된 교란 효과를 방지하기 때문에 실험 재현성에 매우 중요합니다. 따라서 실험 설계를 보존하고 신뢰할 수 있는 결과를 보장하기 위해서는 플랜트 밀도를 정밀하게 제어하는 것이 필수적입니다.
앞서 언급한 가장 중요한 단계를 고려하는 데 특별히 중점을 두고 프로토콜에 따라 JenaTron 실험을 시작한 후, 식물 군집의 높이, 색상 및 개화 시기에 대한 눈에 띄는 처리 효과가 빠르게 나타났습니다. JenaTron과 TBE 사이의 종별 식물 높이에 대한 후속 비교 분석은 iDiv Ecotron에 확립된 군집이 실제로 해당 분야의 원래 군집과 유사하다는 것을 분명히 확인했습니다. 데이터 분석을 위한 사례 연구를 추가로 제공하기 위해 JenaTron 실험에서 식물 높이를 더 자세히 분석했습니다. JenaTron의 종별 식물 높이를 분석한 결과 모든 대상 종의 성공적인 확립이 확인되었으며 종과 작용 그룹 간에 상당한 차이가 나타났습니다. 이 결과는 예나 실험47에서 풀이 다른 작용기보다 키가 더 크게 자라는 것으로 알려져 있기 때문에 예상된 결과입니다. 토양 역사의 유의미한 긍정적 효과는 여러 종에 걸쳐 감지되었으며, 이는 이전의 토양 조건이 Ecotron의 식물 성장에 영향을 미쳤음을 나타내며, 이는 이전에 식물 군집(다양성 수준과 무관)을 품고 있던 토양의 긍정적인 피드백 효과와 식물이 없는 토양의 부정적인 피드백에 의해 주도될 수 있음을 나타냅니다. 토양 역사의 생물적 특성과 비생물적 특성은 서로 다른 것으로 나타나며, 식물 키가 빛을 얻기 위해 경쟁하는 능력에 중요한 역할을 하고 따라서 탄소 획득을 위한 중요한 특성이기 때문에 식물 군집 특이적 역사가 있는 토양의 식물보다 유리한 결과를 제공한다48. 대조적으로, 평균 식물 높이에 대한 식물 군집별 식물 이력의 유의미한 영향은 발견되지 않았으며, 이는 토양 특성이 Ecotron의 환경 조건 하에서 종자 공급원보다 더 큰 영향을 미칠 수 있음을 시사합니다. 그러나 이 가설은 JenaTron 실험에서 측정된 수많은 생태계 기능을 조사하여 총체적인 방식으로 테스트해야 합니다.
종별 분석이나 군집별 분석은 종의 풍부함이 평균 식물 높이에 영향을 미친다는 증거를 제공하지 않았으며, 이는 더 강한 광 경쟁으로 인해 식물 높이가 높을수록 식물 높이가 증가했다는 현장 실험49 47,50과 대조를 이룹니다. 더 다양한 군집에 있는 종 간의 더 큰 상보성은 더 높은 식물 밀도로 이어질 수 있으며51 잠재적으로 식물 높이 성장52을 추가로 향상시킬 수 있습니다. 따라서 JenaTron 실험에서 식물 높이에 대한 식물 다양성 영향의 부족은 식물 밀도에 생물 다양성에 따른 변동이 없기 때문일 수 있으며, 이는 현실 세계에서 다양성에 의존하는 개별 식물 성능에 대한 이 메커니즘의 잠재적 중요성을 나타냅니다52. 그럼에도 불구하고, 종의 풍부함은 식물 높이 CV에 상당한 영향을 미쳤으며, 이는 식물 다양성이 식생의 구조적 복잡성을 증가시킨다는 것을 시사하며, 다양성을 더 복잡한 지상 캐노피와 연결하는 연구와 일치합니다 49,50,52,53,54.
종합하면, 결과는 JenaTron Experiment의 표적 치료법이 성공적으로 확립되었음을 확인시켜주며, 유의미한 치료 효과의 빠른 발현을 통해 우리 접근법의 효과에 대한 첫 번째 통찰력을 제공합니다(그림 3, 그림 4 및 그림 5). 또한, 종별 식물 높이에 대한 비교 분석은 iDiv Ecotron에 새로 형성된 군집이 원래의 현장 관측과 실제로 유사하다는 것을 나타냅니다. 식물 높이에 대한 상세한 분석은 단일 반응 변수의 데이터 분석 및 시각화를 위한 사례 연구 역할을 합니다. 그러나 이 사례 연구는 시간이 지남에 따라 생물다양성과 생태계 기능 간의 강화 관계가 토양 역사, 식물 역사 또는 둘 다의 조합 때문인지 여부에 관계없이 중요한 가설을 전체적으로 다루는 데 있어 단일 반응 변수에 초점을 맞추는 것의 한계를 강조합니다. 이는 식물의 역사와 토양의 역사가 BEF 관계에 미치는 독립적이고 상호작용적인 효과를 조사하기 위한 우리의 긴밀한 협력적 접근 방식의 중요성을 강조한다23. 예나 실험 연구단(FOR 5000)의 11개 하위 프로젝트는 예나트론 실험에서 긴밀하게 협력하여 미생물학, 화학 생태학, 현상학, 근위 감지, 유전학, 후성 유전학, 토양 생태학 및 먹이 그물 모델링과 같은 다양한 연구 분야에 걸쳐 광범위한 반응 변수를 측정했습니다. 이러한 통합적 노력은 (1) 여러 영양 수준 및 생태계 기능에 대한 토양 역사 효과와 식물 역사 효과를 분리하고, (2) 모든 수준의 식물 종 풍부도에서 식물 종 특이적 및 상호 작용 특이적 효과를 조사하고, (3) BEF 관계의 기본 메커니즘을 탐구하는 것을 목표로 합니다23(보충 표 249, 50,55,56,57,58 ,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
공개 사항
저자는 공개할 내용이 없습니다.
감사의 글
L. Boockmann, T. Meier, N. Naderi 및 L.-M에게 특별한 감사를 드립니다. Walter는 JenaTron 실험이 진행되는 동안 연구 보조원으로 도움을 주었습니다. 예나 실험에서 토양 모놀리식 굴착 기간 동안 전문적이고 따뜻한 협력을 해주신 Umwelt-Geräte-Technik GmbH (UGT)의 모든 직원들에게 깊은 감사를 드립니다. 우리는 또한 C. Lauterwasser, H.-C.에게 감사를 표하고 싶습니다. Schulz, R. Widuwils는 토양 모놀리식 굴착에서 UGT를 지원했습니다. 예나 실험(Jena Experiment)의 기술 스태프인 S. Eismann, F. Freter, G. Kratzsch, U. Köber, K. Kunze, H. Scheffler가 현장에서 지원해 주고 iDiv Ecotron에서 파종 캠페인을 벌이는 동안 성실한 도움을 준 것에 대해 많은 감사를 드립니다. 우리는 바트 라우슈테트(Bad Lauchstädt)에 있는 헬름홀츠 환경 연구 센터(Helmholtz Centre for Environmental Research, UFZ)의 연구 스테이션의 I. Merbach와 기술 직원, 특히 O. Bednorz와 K. Kirsch에게 중요한 지원을 해준 것에 대해 감사한다. 우리는 A.Q. Barth와 R. Altmann이 iDiv 온실에서 훌륭한 협력을 해준 것에 대해 감사를 표하고 싶습니다. 관리, 조직 및 실험실 작업에 없어서는 안 될 도움을 준 S. Haenzel, A. Lochner 및 A. Zeuner에게 깊은 감사를 드립니다. 우리는 예나트론 실험의 개념화, 설계 및 실현에 중요한 기여를 한 메르카토르 펠로우인 J. Cavender-Bares, F. Isbell, L. Mommer, K. Mueller와 긴밀한 협력자인 B. Schmid와 주요 연구자인 U. Brose, H. Schielzeth, N. van Dam, W.W. Weisser, C. Wirth 및 J. Wolf에게 감사를 표합니다. 마지막으로, 재정 지원(FOR 5000)을 해준 독일연구재단(DFG)과 독일통합생물다양성연구센터(iDiv, 독일연구재단[DFG-FZT 118, 202548816]), 라이프치히 대학, 프리드리히 쉴러 예나 대학, 예나 막스 플랑크 생물지구화학 연구소에 재정 및 물류 지원을 해준 것에 감사를 표한다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 구근 화분 ( 직경 4cm) | 켄트 & 스토 | 철물점 | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883& gad_ source=1& gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE |
| 커넥터 흡입 캔들 | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 재배 트레이 ( 배수구 없음) | 분재 쇼핑 | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| 탈염수 (VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| 덕트 테이프 | T-Rex | 철물점 | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930& gad_source=1& gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| 플라스틱 상자 (20 L) | Auer Packaging | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1& gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| 여과지(직경 150mm) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| 지게차 | hirsch | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| Gibberellic acid ( 90%) | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| 측정 용기 ( 3000 mL) | Hü Nersdorff | 철물점 | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ |
| 측정 용기 ( 5000 mL) | Hü Nersdorff | 철물점 | https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ |
| 금속 체 (4mm 메쉬 크기) | 블라우-메틀 | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| 미니 굴착기 | 제플린 고양이 | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| 박격포 통 ( 90 L) | Gripline | 철물점 | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| 멀티포트 플레이트 (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| 페트리 접시 (직경 150mm) | Labsolute | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| 심기 스텐실 (맞춤형) | UFZ | n.a. | 독일 라이프치히에 있는 Helmholtz Centre for Environmental Research(UFZ)의 작업장에서 제조한 심기 스텐실, 특히 iDiv Ecotron 금속 실린더 심기를 위해 제조되었습니다. |
| 플라스틱 호일 | Cargo Point | 철물점 | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ |
| 플라스틱 삽 | Hü Nersdorff | 철물점 | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ |
| 압력 분무기 (1500 mL) | Bü rkle | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| 석영 분말 | Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/> StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| 석영 모래 HQS (0.3 - 0.8 mm 크기) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| 씰 플러그 | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 종자 재료 | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| 토양 수분 측정 키트(ML3 ThetaKit) | Delta-T Devices | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| 토양 모놀리식 추출 장치 | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 토양 센서 ( SMT-100) | 트루브너 GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| 스프링 스틸 핀셋 (105mm) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| 스테인레스 스틸 블레이드 (맞춤형) | UFZ | n.a. | Helmholtz Centre for Environmental Research (UFZ)의 작업장에서 제조 한 스테인레스 스틸 블레이드, Bad Lauchst ä dt, 독일, 특히 iDiv Ecotron 금속 실린더에 토양 센서를 삽입하기 위한 용도. |
| 스테인레스 스틸 실린더 | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 스틱 라벨 (12cm x 2cm) | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| 서스펜션 | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 임시 상단/하단 플레이트 | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 이쑤시개 | Bü roshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096a8aa& storeType=B2C& lkz= 1131602& obt=20& kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8& gad_source=1& gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 Iwo-CRoCfWsQAvD_BwE |
| 흙손 | Kaufmann | 철물점 | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. google.alwayson_assortment.bod. pla.868482949.79838688391.& wt _cc1=868482949& wt_cc2=798386 88391& wt_cc3=377419910580& wt _cc4=& wt_cc6=7940328& wt_cc7= 566& gad_source=1& gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB |
| Truck | 유럽카 | n.a.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = cpc& utm_campaign& utm_term& gad_source=1& gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB& gclsrc=aw.ds& 차량 유형=TR& pickupLocation=ZJSC04 & 하차 위치=ZJSC04& pickupYe ar=2024& pickupMonth=12& 픽업 일=11& dropoffYear=2024& dropoff 월=12& dropoffDay=18& 픽업 시간=10& 픽업분=00& 하차 시간=18& dropoffMinute=00& 드라이버 나이=26& countryOfResidence=DE |
| 핀셋 | Bochem Instrumente | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| 물 흡입 프로브 | Umwelt Gerä te Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| 센서 로그 | Konsta | 철물점 | https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
참고문헌
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
재인쇄 및 허가
태그
