스트롱길로이드 라티(Strongyloides ratti )는 기생 선충으로 실험실 쥐에서 일시적인 감염을 일으켜 조직 이동 및 장 생활 단계를 나타냅니다. 여기에서는 쥐의 기생충 주기 유지와 머리, 폐 및 장의 기생충 정량화를 포함하여 쥐의 실험적 감염을 위한 프로토콜을 제시합니다.
이 논문에서
요약
초록
Strongyloides ratti 는 야생 쥐를 자연적으로 감염시키는 기생 선충입니다. 그러나 대부분의 실험실 쥐 및 쥐 균주는 감염에 완전히 취약합니다. 면역 능력이 있는 BALB/c 및 C57BL/6 마우스는 표준 2형 면역 반응의 맥락에서 한 달 이내에 S. ratti 감염을 종결시키고 재감염에 대해 반내성 상태를 유지합니다. 감염 과정은 세 단계로 나눌 수 있습니다 : (a) 처음 2 일 동안 감염성 3 단계 유충의 조직 이동 단계; (b) 감염 후 3-6일째에 성체 기생충에 털갈이를 하고 장 점막에 침투하는 것을 포함한 초기 장 단계, 감염 후 5-6일째에 번식이 시작됩니다. (c) 기생충이 완전히 제거되는 것으로 끝나는 후기 장 단계. S. ratti 에 대한 생쥐의 실험적 감염을 통해 다양한 감염 부위에서 전체 생애 주기에 걸친 숙주-기생충 상호 작용에 대한 정확한 연구와 기생충이 사용하는 면역 회피 전략을 정확하게 연구할 수 있습니다. 여기에 제시된 프로토콜은 Wistar 쥐의 기생충 유지, 실험실 마우스의 감염, 조직 이동 단계 및 장 단계에서 S. ratti 기생충의 검출 및 정량화를 설명합니다.
서론
토양에서 전염되는 기생충 스트롱길로이드 스터코랄리스(Strongyloides stercoralis)는 소외된 열대성 질병 중 가장 소홀히 여겨지는 질병인 스트롱길로이드증(Strongyloidiasis)을 유발합니다1. 2020년 추정치에 따르면 전 세계적으로 6억 건의 S. stercoralis 감염이 발생한 것으로 추정됩니다2. S. stercoralis에 대한 가설 중심의 실험실 연구는 기생충이 마우스 3,4의 3단계 유충(L3)을 지나 발달할 수 없기 때문에 제한적입니다. 따라서 설치류 특이적 선충인 Strongyloides ratti는 실험실 마우스의 생체 내 감염 연구에 일반적으로 사용됩니다 5,6. S. ratti는 야생 쥐의 자연 기생충이지만 대부분의 실험실 마우스 균주는 감염에 완전히 취약합니다7. 이를 통해 기생충의 다양한 조직과 살아있는 단계에 걸친 숙주-병원체 상호 작용 및 면역 반응을 연구할 수 있습니다.
생쥐에서 S. ratti의 실험실 주기는 세 가지 주요 단계로 나눌 수 있습니다. 보통 1000 내지 2000마리의 정해진 수의 감염성 3단계 유충(iL3)을 피하 주사한 후, 생존한 L3의 대다수(약 90%)는 감염 후 첫 2일 동안 마우스의 머리로 이동하고, 폐에서는 극히 일부(약 10%)만이 회수된다8. S. ratti는 설치류 숙주의 피부에 적극적으로 침투합니다. 실험실에서 iL3가 함유된 물 한 방울을 생쥐의 피부에 놓고 활성 경피 감염을 허용함으로써 이러한 자연 감염 경로를 모방할 수 있습니다9. 그러나 감염 효능이 훨씬 낮고 정확한 감염 용량을 조절할 수 없습니다. S. ratti iL3가 경피적 또는 피하(s.c.) 감염 후 취한 정확한 이동 경로는 아직 알려져 있지 않습니다. 그러나, 감염된 쥐의 신장과 같이 혈액이나 혈액이 잘 공급되는 장기에서는 S. ratti DNA가 검출될 수 없기 때문에8, 1차 이동 경로에는 혈류가 포함되지 않을 수 있다. 그러나 S. ratti는 조직 전체에서 무작위로 이동하지 않습니다. 오히려, 생쥐 3,10 및 랫트11에서 조직학을 사용한 여러 연구나 다양한 조직8에서 채취한 생존 가능한 L3 및 S. ratti 유래 DNA의 정량화는 S. ratti L3가 감염 부위에서 주로 피부와 근육 조직을 통해 머리의 비전두엽 부위로 직접 이동한다는 증거를 제공합니다.
주입된 유충의 약 10%는 조직 이동에서 살아남아 머리 조직에서 유사한 L3 수치를 보이는 C57BL/6 및 BALB/c 마우스에서 머리에 도달합니다12. 유충은 감염 후 3일째(p.i.)까지 삼켜서 장에 도달하는 것으로 생각됩니다. 그들은 소장의 점막에 침투하여 성인 여성 기생충으로 탈피하고 5일에서 6일째까지 단성생식에 의해 번식을 시작합니다.13. 알은 대부분 이미 부화한 1단계 유충(L1)으로 장으로 방출되어 배설물과 함께 분비됩니다. 성인 암컷의 수가 가장 많은 시기는 p.i.14일 6일경에 도달합니다. 흥미롭게도, C57BL/6 마우스는 두 마우스 균주12에서 머리에 조직 이동 L3의 수가 비슷함에도 불구하고 BALB/c 마우스보다 2-5배 더 높은 장 기생충 부담을 보입니다. 첫 주 동안, B 세포와 T 세포가 결핍된 면역 능력이 있는 C57BL/6 마우스와 RAG1 녹아웃(KO) 마우스의 장내 기생충 부담은 비슷했는데, 이는 초기 기생충 통제가 선천성 면역을 통해 매개됨을 시사한다12,15. 마지막 단계에서, 기생충은 면역 능력이 있는 마우스에서 2-4주 p.i. 이내에 장에서 배출됩니다(6에서 검토). RAG1 KO 마우스는 감염을 제거할 수 없으며 최대 1년 동안 소장에서 생존 가능하고 번식할 수 있는 암컷 성체의 수가 적습니다12.
방사선 조사된 L3로 첫 번째 감염 또는 면역이 해결된 후 면역 능력이 있는 C57BL/6 및 BALB/c 마우스는 재감염에 대해 반내성을 보입니다. 초기에 접종된 iL3의 1%만이 머리에 도달하며, 두 번째 감염 시 약 1-5개의 성체 기생충만이 장에서 회수될 수 있다8. 따라서 S. ratti 에 감염된 마우스의 실험실 감염을 사용하면 조직 이동 단계가 있는 장 선충의 전체 수명 주기 동안 선천성 및 적응 면역 체계의 영향을 연구할 수 있는 도구를 제공합니다.
이 원고에서는 Wistar 쥐의 S. ratti 수명 주기 유지, 마우스의 실험적 감염 및 다양한 감염 부위에서의 기생충 부담 정량화에 대한 자세한 설명을 제공합니다. 실험용 마우스의 장뿐만 아니라 머리와 폐 조직에서 S. ratti 기생충 부담을 정확하게 정량화함으로써 이 기생 선충의 조직 이동 또는 장 생활 단계에 대한 특정 면역 효과기의 역할을 해부할 수 있습니다. 야생형 마우스와 특정 면역 효과기 세포, 수용체 또는 관심 매개체가 결핍된 마우스의 면역 반응을 논의 5,6에 자세히 설명된 바와 같이 비교할 수 있습니다.
프로토콜
동물 실험은 독일 동물 복지법에 따라 수행되었으며 실험 프로토콜은 함부르크 주 독일 당국(Behörde für Gesundheit und Verbraucherschutz)의 승인을 받았습니다. 그림 1 은 Wistar 쥐에서 S. ratti의 수명 주기 유지와 실험용 마우스 또는 쥐의 감염을 위한 iL3 생산에 대한 개요를 제공합니다.
1. 전염성 유충의 준비
- 그림 1에 표시된 대로 Baermann 장치를 준비합니다. 클램프로 호스 바닥을 닫고 비스듬한 각도로 티슈 와이프를 체에 놓습니다. 체가 물로 덮일 때까지 미지근한 물(약 35-37°C)을 채웁니다.
- 아래 설명과 같이 준비된 대변-숯 혼합물을 체에 채웁니다(6단계). 혼합물은 물로 완전히 덮어야 합니다.
- Baermann 장치 바로 뒤에 있는 조명을 켭니다. Viable iL3는 와이프를 통해 활발하게 마이그레이션됩니다.
- 30분 후 유충이 클램프 위에 정착하면 클램프를 짧게 열어 50mL 튜브에 모으십시오. 전체 펠릿을 수집하되 부피가 가능한 한 작은지 확인하십시오.
- 50mL 튜브에 1% 페니실린-스트렙토마이신(PBS/Pen-Strep)이 함유된 PBS를 채우고 유충이 4°C에서 30분 동안 중력에 의해 튜브 바닥에 정착하도록 합니다. 피펫으로 상층액을 조심스럽게 제거하고 세척 단계를 3x 반복합니다.
- 세 번째 세척 단계 후 펠릿 크기에 따라 30-50mL PBS/Pen-Strep에 펠릿을 재현탁합니다. 용액 1μL 방울을 현미경 슬라이드로 옮깁니다. iL3가 빠르게 침전되므로 피펫팅 직전에 용액을 교반하십시오.
- 40x 배율의 역 현미경으로 액적을 검사합니다. iL3는 생생하게 움직여야 합니다. 5-10회 반복에서 1μL 액적당 iL3를 계산하고 μL당 평균을 계산합니다.
2. 생쥐의 감염
참고: 준비된 iL3는 iL3 손상을 방지하기 위해 수평으로 보관해야 하는 50mL 튜브에 4°C의 PBS/Pen-Strep에 보관할 수 있습니다. iL3의 생생한 움직임으로 나타나는 체외 생존율은 우리 손에서 최대 1주일 동안 변하지 않습니다. 보관 시간이 다르기 때문에 보관 시간이 다르기 때문에 새로 조제된 iL3와 조제 후 최대 24시간 동안 보관된 iL3를 내부 표준물질로 사용합니다. 이전 iL3 배치에 감염될 수 있습니다. 그러나 하나의 실험 내에서 다른 그룹의 감염에 대해 동일한 iL3 배치를 사용하는 것은 필수입니다. 생쥐의 감염은 가급적이면 두 사람이 해야 하며, 한 사람은 쥐를 잡고 다른 사람은 주사를 놓는 것이 좋습니다.
- 위에서 설명한 바와 같이 Baermann 장치를 사용하여 준비한 PBS/Pen-Strep의 1.7단계에서 설명한 대로 총 1000 iL3(C57BL/6) 또는 2000 iL3(BALB/c)를 포함하는 마우스당 1.5mL 원심분리 튜브 1개를 준비합니다(1단계). iL3가 빠르게 가라앉을 때 피펫팅 단계 사이를 철저히 교반합니다.
- iL3가 실온(RT)에서 20-30분 동안 중력에 의해 안정화되도록 한 다음 튜브에 약 30μL의 iL3 현탁액을 남기고 0.5mL 주사기로 상층액을 최대한 완전히 흡인합니다. 0.5mL 주사기(28G)로 iL3를 재현탁하거나 튜브를 튕겨 남은 현탁액을 흡인합니다.
참고: iL3는 건식 주사기보다 젖은 플라스틱에 달라붙을 가능성이 적습니다. 따라서, 상층액을 제거할 때는 동일한 주사기를 사용하는 것이 유리하다. - 생쥐는 감염을 위해 마취 할 필요가 없습니다. 목덜미로 쥐를 집어 들고 쥐의 뒷발을 잡습니다. 생후 8주 이상, 체중이 20g 이상인 암컷 및 수컷 C57BL/6을 사용하십시오. iL3가 포함된 전체 용액을 평평한 각도로 발판에 피하로 주입합니다. 천공 부위에서 유충 현탁액이 쏟아지지 않도록 주사기를 천천히 집어넣습니다. 액체를 포함하는 아주 작은 돔이 형성됩니다. 이것은 그 자체로 흡수될 것입니다.
참고: 목의 옆구리나 목덜미가 아닌 발바닥으로의 피하 감염은 대변으로 비옥해진 축축한 땅에 살면서 온전한 피부에 활발하게 침투하는 iL3에 의한 자연 감염과 유사합니다. 또한, 제1 배출 림프절(LN)은 슬와골 LN(popliteal LN)으로 정의된다. 이 LN은16에서 볼 수 있듯이 감염에 대한 반응으로 Foxp3+ 조절 T 세포의 확장과 같은 초기(즉, 2일차) 면역학적 변화의 분석에 사용할 수 있습니다.
3. 감염된 마우스의 머리와 폐에서 iL3 계수
- 조직 내 유충 부담을 분석하기 위해 유충 부담의 최고조가 2일차 p.i.8,12이므로 1-3일차에 쥐를 희생합니다. CO2 과다 복용 마약에 의한 안락사를 수행합니다. 각막과 지간반사가 없어진 후 경추 탈구를 수행합니다.
- 복부와 목에 시판되는 소독제를 뿌리고 복부 위의 피부를 가위로 자릅니다. 피부를 뒤로 당겨 전복벽을 드러내고 정중선을 따라 잘라 복막강을 엽니다. 횡격막을 자르고 갈비뼈를 양쪽으로 잘라 흉강에서 폐를 노출시킵니다.
- 24웰 플레이트에 폐엽을 모으고 1mL의 수돗물을 담은 라인으로 나눕니다. 약 4mm 거리에서 접시에 선을 그리거나 인쇄합니다. 선 사이의 거리는 40배 배율로 두 선을 동시에 볼 수 있어야 합니다.
- 폐 전체를 약 0.75cm x 0.75cm의 6개 조각으로 자릅니다.
- 뼈 가위로 머리를 자릅니다. 손가락을 사용하여 피부와 털을 제거합니다. 근육 조직을 가능한 한 적게 제거하도록 노력하십시오.
- 머리 전체(뇌와 뼈 포함)를 눈 뒤의 4/4로 나누고 머리 중앙을 가로질러 세로로 해부합니다( 그림 2C 참조). 전방 및 후방 사분면을 6mL의 수돗물이 들어 있는 선으로 표시된 2웰 플레이트의 우물에 놓습니다. 상처가 아래를 향하도록 티슈를 물에 넣습니다.
참고: 일반적으로 이 접근 방식은 머리 조직 이동 유충의 수를 정확하게 기록합니다. 뇌의 L3 수치에 대한 별도의 분석이 필요한 경우 3.7단계가 포함될 수 있습니다. - 뇌에 대한 별도의 분석이 필요한 경우 손가락을 사용하여 머리에서 피부를 제거합니다. 그런 다음 가위를 사용하여 눈 사이의 두개골을 뚫습니다. 이 절개 부위에서 사용하지 않거나 철저히 청소한 가위로 두개골 시상 상단을 엽니다. 뇌를 드러내려면 핀셋으로 오른쪽과 왼쪽 두개골을 엽니다. 주걱을 사용하여 뇌를 앞쪽에서 위쪽으로 들어 올리고 깨끗한 가위로 신경삭을 자릅니다. 뇌를 제거하고 수돗물이 들어 있는 선으로 표시된 24웰 플레이트로 옮깁니다.
- 플레이트를 37°C의 인큐베이터에 넣습니다. 매시간 (h) 10 번마다 플레이트를 휘젓면서 3 시간 동안 배양하십시오. 배양 후 마지막으로 한 번 소용돌이치고 우물에서 집게로 나머지 조직 부분을 제거하고 조직을 버립니다.
- 우물 바닥에 그려진 선을 따라 이동하여 40배 배율의 도립 현미경으로 우물에 남아 있는 모든 유충을 완전히 계산합니다. 결과의 책임을 증가시키기 위해 같은 날에 조직 이동 유충을 세십시오.
4. 감염된 마우스의 장에서 S. ratti 기생충 계수
- 장내 기생충 부담을 분석하려면 관심 있는 날 p.i.에 마우스를 희생하고 완전한 kinetic을 위해 3-21일 p.i.를 사용하십시오. 소장 내 C57BL/6 및 BALB/c 마우스의 기생충 부담이 최고조에 달하는 시기는 p.i.14일 6일째입니다. CO2 과다 복용 마약에 의한 안락사를 수행합니다. 각막과 지간반사가 없어진 후 경추 탈구를 수행합니다.
- 생쥐의 복부를 소독제에 담그고 복부 위의 피부를 자릅니다. 피부를 뒤로 당겨 전복벽을 드러내고 정중선을 따라 잘라 복막강을 엽니다.
- 위와 근위 십이지장 사이, 결장과 항문 사이를 절단하여 장 전체를 제거합니다( 그림 3B 참조). 손가락으로 장을 부드럽게 당겨 수돗물이 담긴 페트리 접시에 넣습니다.
- 장을 세로로 잘라 수돗물에 10초 이상 세게 흔들어 대변과 점액을 씻어냅니다. 성체 기생충의 극소량과 일부 L1은 씻겨 나가지만 생존 가능한 L4 및 성체 S. ratti 기생충은 야생형(WT) 마우스의 장 점막에 박혀 있으며 이 세척 단계로 제거되지 않습니다.
- 관심이 있는 경우 아래 설명된 대로 장을 더 나눕니다.
- 두 번째 Peyer's patch(약 2-3cm) 후 절개로 십이지장을 분리합니다. 회장을 두 개의 절개로 분리하는데, 하나는 첫 번째에, 다른 하나는 두 번째 Peyer's patch(약 1-2cm)에 있습니다. 십이지장과 회장을 분리한 후 jejunum을 분리하십시오. 이것이 나머지 부분이므로 분리하십시오.
- 기생충 국소화에 대한 매우 정확한 정의를 허용하기 위해 jejunum을 세 개의 동일한 섹션으로 나눕니다. 회장과 결장 사이의 세낭을 분리하십시오. caecum 뒤를 잘라 결장을 분리하십시오. 대부분의 성충은 소장의 1/3에서 발견될 수 있습니다( 그림 3B 참조).
- 세척된 장 부위를 20mL의 수돗물이 들어 있는 50mL 튜브에 옮깁니다. 37°C 인큐베이터에 3시간 동안 수평으로 놓습니다. 매 시간마다 10초 동안 매우 세게 흔듭니다.
- 배양 3 시간 후 물에서 조직을 제거하십시오. 튜브를 RT에 수직으로 놓고 기생충은 30분 안에 중력에 의해 침전됩니다.
- 물이 약 5mL 남을 때까지 상층액을 제거합니다. 세척 단계를 반복하려면 수돗물을 최대 25mL까지 채우십시오. 소장을 분석하려면 이 세척 단계를 한 번 더 반복하여 현미경으로 잘 볼 수 있습니다.
- 가시성이 좋아지면 약 5mL의 물이 남을 때까지 상층액을 흡인하고 머리의 유충 계수에 대해 설명한 대로 선으로 표시된 6웰 플레이트에 있는 마우스 창자당 2개의 웰로 액체를 옮깁니다.
- 우물 바닥에 그려진 선을 따라 이동하여 40배 배율의 도립 현미경으로 성인 여성 기생충을 계산합니다. 희생 당일에 기생충을 세십시오. 기생충을 가능한 한 빨리 세어보세요, 물속에서 장기간 부화하면 죽거나 분해될 수 있습니다.
참고: 4단계 유충과 성충 기생충 외에도 L1은 오후 5일경부터 여기에서 검출될 수 있습니다. 이들은 L4 및 성인 기생충보다 훨씬 작고 훨씬 풍부하며 쉽게 구별할 수 있습니다.
5. Wistar 쥐의 S. ratti 유지 관리
참고: 쥐 감염은 한 사람이 쥐를 잡고 다른 사람이 주사를 놓는 두 사람이 하는 것이 좋습니다. 기생충 주기를 유지하기 위해 4-8주 된 Wistar 쥐가 감염됩니다.
- 앞에서 설명한 대로 Baermann 장치를 사용하여 PBS/Pen-Strep에 2500 iL3를 함유한 쥐당 1.5mL 원심분리 튜브 1개를 준비합니다. 유충이 빨리 정착할 때 피펫팅 단계 사이를 철저히 교반합니다.
- 유충이 20-30분(RT) 동안 중력에 의해 정착하도록 하고 약 200μL의 유충 현탁액이 남을 때까지 0.5mL 주사기(28G)에서 상층액을 흡인합니다.
- 감염의 경우 쥐를 한 사람의 팔 구부러진 곳에 놓고 머리를 부드럽고 조심스럽게 고정하십시오. 다른 사람은 쥐의 옆구리를 부드럽게 잡고 재현탁된 iL3 현탁액을 목덜미주름에 피하로 주입합니다.
6. 숯 문화
- 감염된 쥐를 여러 겹의 셀룰로오스가 들어 있는 우리에 가두고, 감염 후 5일과 12일째부터 깔짚을 줄인다. 여러 층의 셀룰로오스로 깔짚을 교환하는 것은 깔짚에서 대변을 수집하는 것에 비해 대변을 더 쉽게 수집할 수 있도록 하기 위해 수행됩니다
- 오후 6-8일과 13-15일에 쥐를 새 우리로 옮기고 쥐를 새 우리로 옮기고 한 우리에서 50mL 튜브에 모은 후 우리에서 배설물 알갱이를 집어 넣어 오래된 우리에서 모든 배설물을 수집합니다. 면역 반응이 확립되기 전에 2주 동안 p.i. 대변을 수집하면 대변의 유충 부담이 줄어듭니다. 2주 후 p.i. 쥐는 CO2 과다 복용 마취를 통해 안락사됩니다. 각막과 지간반사가 없어진 후 경추 탈구를 수행합니다.
참고: 면역력이 저하된 쥐와 몽골 저빌은 S. ratti 감염을 장기간 유지합니다17,18. S. ratti 감염 중 면역 반응 및 면역 조절을 연구한 결과, 우리는 온전한 숙주 면역의 선택 압력을 유지하기 위해 면역 역량이 있는 숙주의 주기를 유지하기로 결정했습니다. - 수집된 대변 샘플을 사용하여 숯 배양을 준비하면 대변에 존재하는 L1에서 iL3가 발생할 수 있습니다.
- 숯불에 수돗물을 미리 담가둡니다. 숯을 배양에 사용하기 전에 체에 채우고 물이 맑아질 때까지 흐르는 수돗물로 씻으십시오. 숯은 항상 촉촉하게 유지하십시오. 사용하기 전에 최소 24시간 동안 숯을 담그십시오.
- 대변을 미리 담근 활성탄과 약 1:1의 비율로 섞습니다. 혼합물을 대각선으로 그라디언트로 배열하고 평평한 유리 비커에 활성탄을 한 겹 더 덮어 최종 비율 1:2에 도달합니다.
참고: 미리 담근 활성탄으로 대변을 배양하면 자연에서 iL3가 발생하는 습한 토양을 모방하면서 과도한 곰팡이 오염을 방지합니다. - 유리 용기를 투명 필름으로 덮습니다. 공기 순환을 위해 공기 구멍이 있는지 확인하십시오.
- CO2가 없는 약 90% 습도의 25°C에서 6-7일 동안 배양합니다. 배양물을 촉촉하게 유지하기 위해 인큐베이터에 물통이 포함되어 있는지 확인하십시오. 필요한 경우 25°C에서 최대 14일 동안 배양물을 보관하십시오. iL3는 직간접적으로 발생하며19 감염될 때까지 iL3 단계에서 정지 상태를 유지한다.
결과
S. ratti 는 주로 감염 부위에서 머리로 이동하고 나중에는 정확히 정의되지 않은 경로를 통해 장으로 이동합니다. 머리 조직과 장의 정확한 국소화를 조사하기 위해 C57BL/6 마우스는 왼쪽 뒷발 패드에 1000 iL3에 감염되었습니다. 1일차부터 14일차까지 마우스를 희생하고 S. ratti 기생충을 전방 및 후방 두부, 뇌 및 폐(그림 2)와 십이지장, 제주눔, 회장, 대장 및 결장(그림 3)에서 정량화했습니다.
p.i. 1일차에 첫 번째 L3가 머리에 도달하여 균일한 분포를 보였습니다(그림 2A). 또한, p.i. 1일째에 폐에서 작은 부분의 유충이 회수되었습니다(그림 2B). L3 수치는 p.i. 2일째에 눈에 띄게 증가하여 머리에서 평균 174± L3 13, 폐에서 평균 17± 1.7로 나타났습니다. 따라서 L3의 대부분(약 90%)은 머리에서 추출되고 폐에서는 약 10%만 회수됩니다. 대부분의 L3(평균 93± 13.3)는 머리의 앞쪽에 국한되어 있었지만, 약 41± 4.7 L3 유충은 머리의 뒤쪽에, 약 39± 5.8은 뇌에 국한되어 있었다. 이러한 관찰에 따라, 뇌와 뇌척수액에서 L3의 존재는 경피적 감염 후 C57BL/6 마우스에서 24시간 p.i.와 최대 48h p.i.로 보고되었다20. 총 L3 수의 뚜렷한 감소는 2일째 p.i.의 유충 부담에 비해 3일째에 관찰되었으며, 4일째 p.i.에는 머리 조직에서 L3가 채취되지 않았습니다(그림 2A). 따라서, S. ratti 기생충의 도착은 오후 4일째에 장에서 검출되었습니다(그림 3A). 기생충 국소화에 대한 정확한 정의를 허용하기 위해 장을 십이지장, 제주눔, 회장, 대장, 결장과 같은 별개의 분절로 세분화했습니다(그림 3B). p.i. 4일째에, S. ratti 기생충의 대다수는 십이지장과 jejunum의 처음 2/3에 국한되어 있었다(그림 3A). 이 현지화는 오후 6일까지 일관되었습니다. 7일째부터 S. ratti 성체의 대다수는 caecum에 국한되어 9일째까지 지속되었습니다(그림 3A). caecum의 기생충 수는 오후 11일째에는 약 20마리로 떨어졌고 14일째에는 0마리로 떨어졌습니다. 분석된 시점에서는 11일째까지 약 5-11개의 기생충을 제외하고는 나머지 결장에서 상당한 수의 기생충을 회수하지 못했습니다. S. ratti 기생충의 국소화는 오후 4일째에서 오후 9일째로 바뀌었고 성체의 대다수는 오후 7일 이후에 소장에서 배출되었지만, 전체 장에서 추출된 총 숫자는 9일까지 일정하게 유지되었습니다. Viable L1은 정량화되지 않았지만 4일째부터 11일째까지 검출할 수 있으며 6일째에 최고치를 기록했습니다(데이터는 표시되지 않음).

그림 1: 쥐와 생쥐의 S. ratti 생활주기 유지. Wistar 쥐는 2500 iL3로 목덜미 주름에 s.c. 주입됩니다. 6-15일 후, p.i. 그들의 대변을 수집하고, 물에 적신 활성탄과 혼합하고, 그라디언트로 배열하고, 공기 구멍을 포함한 투명 필름으로 덮습니다. 이 배양액은 25 °C와 90 % 습도에서 6-7 일 동안 배양됩니다. iL3는 Baermann 장치를 사용하여 분리되고 PBS/Pen-Strep으로 3배 세척됩니다. 실험용 마우스는 1000 iL3를 뒷발바닥에 피하로 주입합니다. BioRender.com 로 만들어졌습니다. 그림 1 은 BioRender에서 제작되었습니다. 린네만, L. (2024) https://BioRender.com/g80l370. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.

그림 2: 시간 경과에 따른 폐 및 두부 조직의 S. ratti 정량화. C57BL/6 마우스는 뒷발 패드에 1000 iL3를 s.c. 주입하였다. 표시된 시점에서 마우스를 희생시키고 (A) 머리와 (B) 폐에 있는 S. ratti 기생충을 계수했습니다. 각 기호는 개별 마우스의 L3 수를 나타냅니다. 막대 그래프는 평균값을 나타내고 오차 막대는 SEM을 나타냅니다. 그래프는 개별 실험의 결합된 데이터를 보여줍니다. 1일차: 시점별 n=4를 사용한 두 개의 독립적인 실험 및 실험; 2일차: n=4, n=4, n=6, n=3의 4개의 독립적인 실험; 3일차: n=4 및 n=3을 사용한 두 개의 독립적인 실험; 4일차: N=5로 한 번의 실험. (C) 분리에 사용되는 머리의 개별 영역을 보여주는 개략적인 만화. 빨간색 점선은 절개 경로를 나타냅니다. 그림 2C는 BioRender에서 제작되었습니다. 린네만, L. (2024) https://BioRender.com/t83e660. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
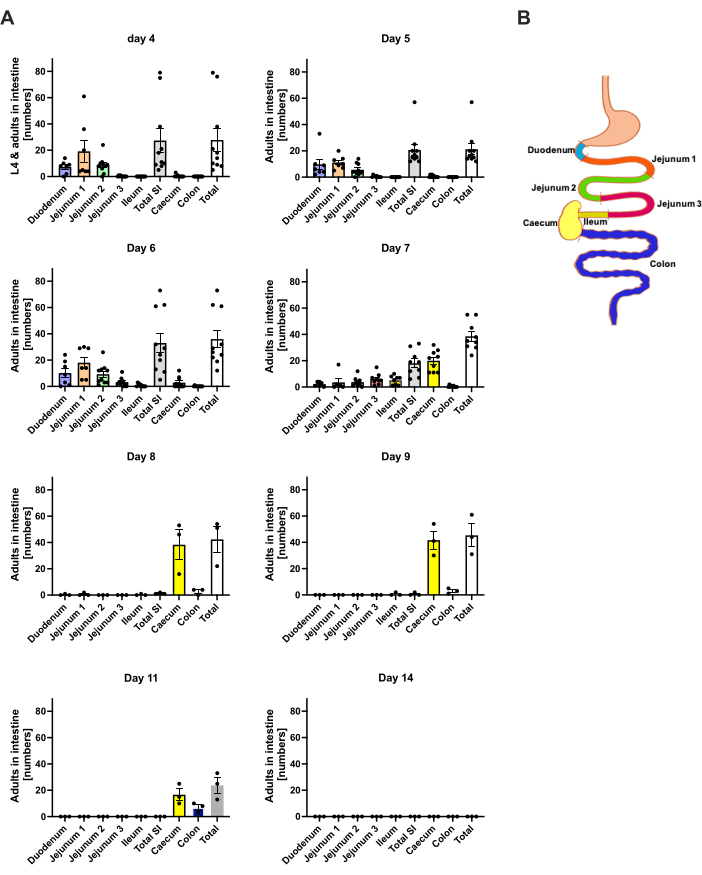
그림 3: 시간 경과에 따른 장 부위의 S. ratti 정량화. 수컷 C57BL/6 마우스는 뒷발 패드에 1000 iL3를 주입했습니다. (A) 표시된 시점에서 마우스를 희생하고, L1을 제외한 S. ratti 기생충은 십이지장, 제주눔 1-3, 회장, 대장 및 결장 영역에서 계수되었습니다. (B) 다양한 장 부위의 개략적 개요. 각 기호는 개별 마우스의 기생충 수를 나타냅니다. 막대 그래프는 평균을 나타내고 오차 막대는 SEM을 나타냅니다. 표시된 것은 개별 실험의 결합된 데이터입니다. 4일차: n=4 및 n=6 마우스를 사용한 두 개의 독립적인 실험; 5일차: n=4 및 n=6을 사용한 두 개의 독립적인 실험; 6일차: n=4 및 n=6을 사용한 두 개의 독립적인 실험; 7일차: n=6 및 n=3을 사용한 두 개의 독립적인 실험; 8일에서 14일: n=3으로 한 번의 실험. SI: 소장. 그림 3B 는 BioRender에서 제작되었습니다. 린네만, L. (2024) https://BioRender.com/h27y297. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
실험용 마우스의 S. ratti 감염은 여러 면역 부위 및 단계에서 기생충 감염에 대한 보호 면역 반응의 특성을 연구하는 데 탁월한 모델입니다. 다양한 KO 마우스 계통과 세포 또는 사이토카인 고갈 모델을 사용하여 급성 기생충 감염 모델에서 특정 면역 세포, 매개체 또는 수용체의 역할을 연구할 수 있습니다. 장뿐만 아니라 머리에 있는 기생충 부담을 정량화할 수 있는 가능성은 기생충의 수명 주기 동안 다양한 조직과 단계에서 면역 세포와 효과기의 역할을 구별할 수 있는 가능성을 제공합니다. 항체 주사를 통한 특정 세포 유형의 고갈은 조직 이동 단계가 완료된 후 고갈 치료가 시작되는 경우 특히 장 면역 반응 중에 그들의 역할을 연구할 수 있습니다. 원하는 경우, 장을 십이지장, 제주눔, 회장, 대장, 결장으로 더 세분화하여 기생충 국소화 또는 제거 동역학의 사소한 변화도 감지할 수 있습니다. 이러한 감염 실험의 실험 간 및 실험 내 변이는 근친 마우스에서도 다소 높으며, 이는 기생충과 숙주의 상호 작용뿐만 아니라 다른 감염 효능을 나타내는 S. ratti L3의 다른 배치에 의해 도입된 변이를 반영한다는 점에 유의해야 합니다( 그림 2 및 그림 3 참조). 변동성을 줄이려면 실험용 마우스의 나이와 성별이 비슷해야 합니다. 더욱이, KO 마우스와 WT 마우스를 비교하는 경우, 독립적인 번식 군체에서 유래한 WT 마우스 대신 리터레이트 대조군을 사용하는 것이 매우 바람직합니다. 그럼에도 불구하고, 충분한 표본 크기가 사용된다면, 특정 효과기에 대해 결핍되거나 유능한 마우스의 기생충 부담을 비교하는 신뢰할 수 있는 결과를 생성할 수 있으며, 이는 S. ratti 에 대한 보호 면역 반응에 관여하는 면역 효과기에 대한 명확한 그림으로 이어집니다( 6에서 검토).
밀접하게 관련된 S. venezuelensis 또는 N. brasiliensis와 같은 다른 선충 감염 모델과 비교하여 S. ratti의 주요 특징은 숙주 내에서 유충의 독특한 이동 경로입니다. 생명 주기가 모두 폐기를 포함하는 N. brasiliensis 및 S. venezuelensis와 달리 21,22,23 S. ratti는 주로 폐를 우회하고 근육과 피부 조직을 통해 머리로 이동합니다 8,12. p.i. 2일차에 살아남은 기생충의 약 10%만이 폐에서 발견됩니다. 한편, 머리에서 S. ratti의 위치는 이전 연구와 마찬가지로 비전두엽 부위에 초점을 맞추고 있습니다8. 이러한 특성으로 인해 S. ratti는 특히 피부와 근육 조직, 그리고 림프절을 배출하는 조직에서 숙주와 기생충의 상호작용을 연구하는 데 유용한 모델이며, 다른 선충 감염 모델에서와 같이 장시간의 폐 침범으로 인해 모호해지거나 복잡해질 수 있는 면역 반응에 대한 연구를 가능하게 합니다. 놀랍게도, S. ratti L3는 뇌척수액20과 뇌에서도 채취되지만(그림 2A), 감염으로 인한 신경학적 증상이나 사망은 비교적 드물고 우리 동물 시설에서 관찰된 적이 없습니다. 향후 연구는 이러한 뇌 국소 기생충이 갇혀 있는지 또는 장으로 가는 경로가 존재하는지 여부를 밝힐 수 있습니다.
Strongyloides 속은 또한 기생 세대24 사이에 자유로운 생존 세대를 형성하는 독특한 능력을 가지고 있습니다. S. ratti의 이러한 자유 생활 단계와 발병에 의한 번식은 형질전환 유충의 생성을 촉진합니다. 자유롭게 생활하는 암컷에 대한 미세 주사를 사용하면 녹색 형광 단백질에 융합된 2W1S와 같은 모델 항원을 발현하는 유충의 생성이 가능했습니다. 성체에 대한 탈피 중에는 항원결정기의 발현이 손실되었지만, 폐 및 폐 배출 종격동 림프절에서 S. ratti 특이적 CD4+ T 세포의 추적 및 특성화가 가능했습니다25. 이 접근법은 기생충 감염 및 항기생충 백신 개발의 맥락에서 CD4+ T 세포 생물학을 연구하기 위한 훌륭한 도구를 제공합니다.
S. ratti는 일반적으로 조직의 이동 및 장 생활 단계를 표시하는 기생충 기생충의 면역학적 연구를 위한 다재다능한 모델 유기체입니다. Human S. stercoralis 감염은 발생하는 자가감염으로 인해 극도의 만성으로 특징지어지며, 이는 면역 억제 숙주에서 과잉 감염 증후군을 유발할 수 있으며, 대부분 이식 후 글루코코르티코이드 요법을 받는 환자입니다26. 자가 감염 및 과잉 감염의 이러한 측면은 마우스에서 모델링하기 어렵다는 점에 유의해야 합니다. S. ratti에 감염된 RAG1 KO나 누드 마우스 5,27은 과잉 감염에 취약하지 않습니다. 주목할 점은, 글루코코르티코스테로이드로 처리한 중증 면역저하 마우스(NOD.Cg-PrkdcscidIl2rgtm1Wjl/SzJ)를 사용하여 S. stercoralis에 의한 과잉 감염의 한 쥐 모델을 확립했으며, 이를 통해 결국 마우스에서 과잉 감염 증후군의 적어도 측면을 분석할 수 있을 것입니다28.
그럼에도 불구하고, 생쥐에서 S. ratti 감염을 활용한 연구는 호산구와 호중구가 조직을 이동하는 유충을 박멸하는 데 중복되지 않는 역할을 한다는 것을 보여주었습니다. 유전자 변형 마우스의 고갈 또는 부재는 머리8의 L3 수치 증가를 초래했습니다. 비만세포와 호염기성 과립구는 조직 이동 단계에서 필수적이었지만, 비만세포와 호염기구 모두 장내 기생충 부담을 조절하는 데 기여했습니다. 이들의 부재는 조직 내 L3 수치에 영향을 미치지 않았지만 6일째 p.i.12,29일에 장내 성체 S. ratti 기생충의 수를 증가시켰습니다. 추가 분석에서는 호염기구 또는 선택적으로 결합 조직 비만 세포가 없기 때문에 WT 동역학으로 감염을 종결할 수 있음이 밝혀졌습니다. 대조적으로, 결합 조직과 점막 비만 세포가 결핍된 마우스는 20주 동안 감염된 상태를 유지했다12. 이러한 발견은 최종 감염 종결에서 점막 비만 세포의 중추적인 역할을 밝혔으며, 기생충 감염 중 점막 비만 세포의 기능을 설명하는 데 있어 이 감염 모델의 가치를 강조했습니다. 특정 면역학적 효과기 세포가 없는 경우 S. ratti 기생충의 장 국소화에 대한 잠재적 변화에 대한 추가 정의는 항기생충 면역에서 기생충 면역의 기능을 훨씬 더 정확하게 정의하는 데 도움이 될 것입니다.
또한, 기생충이 생존을 촉진하기 위해 사용하는 면역 회피 메커니즘이 이 시스템에서 연구될 수 있습니다. S. ratti 감염 시 유발된 Foxp3+ 조절 T 세포의 고갈 또는 효과기 T 세포에 대한 조절 수용체의 결실은 기생충 부담 6일차 및 감염 기간 동안 유충 배출량을 감소시키는 것으로 나타났습니다 15,16,30,31. 또한, 장을 면역회피의 표적이 되는 조직으로, IL-9 매개 비만세포가 활성화되는 것을 면역경로가 억제되는 조직으로 정의할 수 있었다. 마지막으로, IL-33과 같은 조직 유래 알람 사이토카인에 의한 ILC2 매개 면역 개시 메커니즘은 내인성 IL-33의 억제제 및 강화제를 사용하여 연구할 수 있습니다32.
Baermann을 통해 많은 수의 iL3를 분리하는 것은 추가 체외 연구의 가능성을 제시합니다. L3와 면역 세포 또는 잠재적 약물 후보의 공동 배양을 통해 L3 생존력 및 운동성에 미치는 영향을 직접 조사할 수 있습니다. S. ratti 항원 용해물 또는 생존 가능한 L3로 감염된 마우스에서 분리된 세포의 생체 외 복원은 다양한 세포 유형에 걸쳐 사이토카인 생성을 연구할 수 있는 플랫폼을 제공합니다. 마지막으로, L3의 단백질 및 지질 분획은 S. ratti-유래 병원체 관련 분자 패턴 또는 면역 조절 효과기 분자의 식별에 사용될 수 있습니다
기생충 감염은 여전히 전 세계적으로 주요 건강 부담을 안고 있기 때문에 기생충에 의해 유도된 면역 반응과 기생충이 사용하는 회피 메커니즘을 더 자세히 설명하기 위한 연구는 치료 옵션을 개선하고 예방 접종과 같은 예방 전략을 개발하는 데 중추적인 역할을 하고 있습니다. 생쥐의 S. ratti 감염은 급성 감염 모델 중 기생충-숙주 상호 작용에 대한 연구를 위한 다재다능한 모델을 제공합니다.
공개 사항
저자는 이해 상충이 없습니다. 언어 모델 Perplexity AI 2024는 텍스트 초안을 수정하고 공식을 개선하는 데 사용되었습니다.
감사의 글
이 연구는 위르겐 만쇼트 재단(Jürgen Manchot Foundation)과 독일 연구 협회(German Research Association)의 지원을 받았습니다(보조금 BRE 3754/6-1 및 BRE 3754/10-1). 그림 1, 2C 및 3B는 BioRender.com 년에 만들어졌습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 50 ml 튜브 | Sarstedt, N mbrecht, DE | 6,25,47,254 | 50 ml https://www.sarstedt.com/produkte/labor/reagenz-zentrifugenroehren/roehren/produkt/62.547.254/ |
| BD Micro-Fine U100 인슐린 0.5 ml | BD Bioscience | 7468077 | 0.5 ml https://www.bestimed.de/bd-micro-fine-insulinspritze-05-ml-u100-8-mm-100x05ml-324825.html |
| 원심분리 튜브 | Sarstedt, Nü 음브레히트, DE | 72,706 | 1.5 ml https://www.sarstedt.com/produkte/labor/mikro-schraubroehren-reagiergefaesse/reagiergefaesse/produkt/72.706/ |
| Charcoal | Roth | 0998.3 | 5 kg https://www.carlroth.com/de/de/aktivkohle/aktivkohle/p/0998.3 |
| Falcon 6-well Clear Flat Bottom, 미처리 셀 멀티웰 배양 플레이트, 뚜껑 포함, sterile | Corning | 351146 | 6-웰 https://www.corning.com/emea/de/search.html?_cookie=false & searchText=351146& search-initialcatalog =기업+커뮤니케이션& initialResultType=제품 |
| 냉동고 & 냉장고 | Liebherr-Hausgerä 테, 로스토크, DE | ||
| 그라이너 바이오 원 24-웰 플래튼 fü Polystyrol | Fisher Scientific | 10177380 | 24-well https://www.fishersci.de/shop/products/polystyrene-24-well-cell-culture-multiwell-plate/10177380#?keyword=24-well |
| Incidin 프리미엄 물티슈 | Ecolab Healthcare | 100 10 279 | https://www.ecolabhealthcare.de/website/seiten/produkte/flaechendesinfektion/tuecher/incidin_premium_wipes.php |
| 인큐베이터 25°C; C | Heraeus Instruments, Hanau, DE | ||
| 인큐베이터 37° C | Heraeus Instruments, Hanau, DE | ||
| 현미경 | Helmut Hund, Wetzlar, DE | 4 x 객관렌즈, 10 x 접안렌즈 | |
| 파라필름 M | 파라필름 | 11772644 | 4 in. X 125 피트 https://www.fishersci.de/shop/products/parafilm-m-laboratory-wrapping-film-2/11772644 |
| 페니실린/스트렙토마이신(Pen-Strep) | 염소자리 | PS-B | 100x https://www.capricorn-scientific.com/en/shop/penicillin-streptomycin-pen-strep-100x~p1205 |
| ROTI 페어 10x PBS 7.4 | 로스 | 1105.1 | https://www.carlroth.com/de/de/fertigloesungen-tabletten-portionsbeutel/rotifair-10x-pbs-7-4/p/1105.1 |
참고문헌
- Olsen, A., et al. Strongyloidiasis - the most neglected of the neglected tropical diseases. Trans Royal Soc Tropical Med Hygiene. 103 (10), 967-972 (2009).
- Buonfrate, D., et al. The global prevalence of Strongyloides stercoralis infection. Pathogens. 9 (6), 468(2020).
- Dawkins, H. J. S., Grove, D. I. Attempts to establish infections with Strongyloides stercoralis in mice and other laboratory animals. J Helminthol. 56 (1), 23-26 (1982).
- Abraham, D., et al. Strongyloides stercoralis: protective immunity to third-stage larvae inBALB/cByJ mice. Exp Parasitol. 80 (2), 297-307 (1995).
- Breloer, M., Abraham, D. Strongyloides infection in rodents: immune response and immune regulation. Parasitology. 144 (3), 295-315 (2017).
- Breloer, M., Linnemann, L. Strongyloides ratti infection in mice: immune response and immune modulation. Philosophical Trans Royal Society B. 379 (1894), 20220440(2024).
- Dawkins, H. J. S., Grove, D. I., Dunsmore, J. D., Mitchell, G. F. Strongyloides ratti: Susceptibility to infection and resistance to reinfection in inbred strains of mice as assessed by excretion of larvae. Int J Parasitol. 10 (2), 125-129 (1980).
- Ehrens, A., et al. Eosinophils and neutrophils eliminate migrating Strongyloides ratti larvae at the site of infection in the context of extracellular DNA trap formation. Front Immunol. 12, 715766(2021).
- Eschbach, M. L., et al. Strongyloides ratti infection induces transient nematode-specific Th2 response and reciprocal suppression of IFN-γ production in mice. Parasite Immunol. 32 (5), 370-383 (2010).
- Dawkins, H., Muir, G., Grove, D. Histopathological appearances in primary and secondary infections with Strongyloides ratti in mice. Int J Parasitol. 11 (1), 97-103 (1981).
- Tada, I., Mimori, T., Nakai, M. Migration route of Strongyloides ratti in albino rats. Jap J Parasit. 28 (4), 219-227 (1979).
- Reitz, M., et al. Mucosal mast cells are indispensable for the timely termination of Strongyloides ratti infection. Mucosal Immunol. 10 (2), 481-492 (2017).
- Viney, M. E., Lok, J. B. The biology of Strongyloides spp. WormBook. , 1-17 (2018).
- Reitz, M., et al. Interleukin-9 promotes early mast cell-mediated expulsion of Strongyloides ratti but is dispensable for generation of protective memory. Sci Rep. 8 (1), 8636(2018).
- Breloer, M., et al. Cutting edge: The BTLA-HVEM regulatory pathway interferes with protective immunity to intestinal Helminth infection. J Immunol. 194 (4), 1413-1416 (2015).
- Blankenhaus, B., et al. Foxp3+ regulatory T cells delay expulsion of intestinal nematodes by suppression of IL-9-driven mast cell activation in BALB/c but not in C57BL/6 mice. PLoS Pathogens. 10 (2), e1003913(2014).
- Niamatali, S., Nolan, T. J., Schad, G. A. Can Autoinfection be Provoked in the Strongyloides ratt/-infected Gerbil, Meriones unguiculatus. 59 (2), 149-152 (1992).
- Gardner, M. P., Gems, D., Viney, M. E. Extraordinary plasticity in aging in Strongyloides ratti implies a gene-regulatory mechanism of lifespan evolution. Aging Cell. 5 (4), 315-323 (2006).
- Viney, M. E. Developmental switching in the parasitic nematode Strongyloides ratti. Proc Biol Sci. 263 (1367), 201-208 (1996).
- Dawkins, H. J., Thomason, H. J., Grove, D. I. The occurrence of Strongyloides ratti in the tissues of mice after percutaneous infection. J Helminthol. 56 (1), 45-50 (1982).
- Takamure, A. Migration route of Strongyloides venezuelensis in rodents. Int J Parasitol. 25 (8), 907-911 (1995).
- Filbey, K., Bouchery, T., Le Gros, G. The role of ILC 2 in hookworm infection. Parasite Immunol. 40 (2), e12429(2018).
- Allen, J. E., Sutherland, T. E. Host protective roles of type 2 immunity: Parasite killing and tissue repair, flip sides of the same coin. Semin Immunol. 26 (4), 329-340 (2014).
- Dulovic, A., Puller, V., Streit, A. Optimizing culture conditions for free-living stages of the nematode parasite Strongyloides ratti. Exp Parasitol. 168, 25-30 (2016).
- Douglas, B., et al. Transgenic expression of a T cell epitope in Strongyloides ratti reveals that helminth-specific CD4+ T cells constitute both Th2 and Treg populations. PLOS Pathogens. 17 (7), e1009709(2021).
- Vadlamudi, R. S., Chi, D. S., Krishnaswamy, G. Intestinal strongyloidiasis and hyperinfection syndrome. Clin Mol Allergy. 4 (1), 8(2006).
- Viney, M., Kikuchi, T. Strongyloides ratti and S. venezuelensis- rodent models of Strongyloides infection. Parasitology. 144 (3), 285-294 (2017).
- Patton, J. B., et al. Methylprednisolone acetate induces, and Δ7-dafachronic acid suppresses, Strongyloides stercoralis hyperinfection in NSG mice. Proc Natl Acad Sci. 115 (1), 204-209 (2018).
- Reitz, M., Brunn, M. L., Voehringer, D., Breloer, M. Basophils are dispensable for the establishment of protective adaptive immunity against primary and challenge infection with the intestinal helminth parasite Strongyloides ratti. PLOS Neglected Trop Dis. 12 (11), e000699(2018).
- Blankenhaus, B., et al. Strongyloides ratti infection induces expansion of Foxp3+ regulatory T cells that interfere with immune response and parasite clearance in BALB/c Mice. J Immunol. 186 (7), 4295-4305 (2011).
- Hartmann, W., Blankenhaus, B., Brunn, M. L., Meiners, J., Breloer, M. Elucidating different pattern of immunoregulation in BALB/c and C57BL/6 mice and their F1 progeny. Sci Rep. 11 (1), 1536(2021).
- Meiners, J., et al. IL-33 facilitates rapid expulsion of the parasitic nematode Strongyloides ratti from the intestine via ILC2- and IL-9-driven mast cell activation. PLOS Pathogens. 16 (12), e1009121(2020).
재인쇄 및 허가
