이 연구에서 우리는 기형 유발 화학 물질을 식별하기 위한 시험관 내 세포 분석을 제시합니다. 인간 유도만능줄기(iPS) 리포터 세포에서 섬유아세포 성장 인자(FGF)/혈청 반응 인자(SRF) 신호 전달의 역학을 측정하고, 이 신호 전달 경로의 화학적 파괴를 정량화하여 기형 유발 위험을 평가했습니다.
이 논문에서
요약
초록
발달 독성(Devtox)은 일반적으로 동물 모델에서 평가됩니다. 그러나 종간 차이로 인한 위음성, 동물 복지에 대한 윤리적 우려 등 정확성 보장에는 어려움이 있습니다. 따라서 인간 Devtox를 평가하고 이러한 문제를 해결하는 데 도움이 되는 새로운 테스트 시스템이 필요합니다. 우리는 기형 유발 물질이 분자 표적에 관계없이 형태 형성에 필수적인 Devtox 관련 신호 전달 경로를 방해한다는 가설을 세웠습니다. 이 가설을 검증하기 위해 우리는 인간 유도만능줄기(iPS) 세포를 사용하여 섬유아세포 성장 인자(FGF) 리포터 시스템을 개발했습니다. 이 시스템은 화학 물질로 인한 신호 중단을 정량화할 수 있으며, 알려진 기형 유발 및 비 기형 유발 화합물에 대해 83% 의 정확도를 달성합니다. Devtox 신호 활동은 시간이 지남에 따라 변하기 때문에 단일 엔드포인트에서 측정하기보다는 지속적으로 역학을 캡처하는 것이 중요합니다. 실시간 발광 측정 시스템의 사용은 선택 사항이지만 더 적은 노동력으로 시간 분해능을 향상시킵니다. 배양판에 세포를 파종하는 것부터 발광 데이터 획득까지 전체 테스트를 1주일 이내에 완료할 수 있습니다.
서론
일부 화학 물질은 성장 지연, 기형, 기능 결함 및 사망을 포함한 발달 독성(Devtox)을 유발합니다1. Devtox의 평가는 의약품 및 살충제의 안전성을 보장하는 데 필수적입니다2. 현재의 Devtox 분석은 일반적으로 여러 동물 모델에 의존합니다. 그러나 종간 차이로 인해 동물 모델은 결과를 인간에게 외삽할 때 고유한 한계가 있습니다3. 잘 알려진 발달 독성 물질인 탈리도마이드는 입덧을 완화하기 위해 1950년대 후반 임산부에게 처음 처방되었습니다. 설치류에서는 기형 유발성이 관찰되지 않았지만 인간 신생아의 심각한 사지 기형은 전 세계적으로 보고되었습니다. 이 비극은 동물 기반 안전성 테스트의 한계를 부각시켰고 Devtox 테스트 지침을 도입하고 개정하려는 국제적 노력을 촉발시켰습니다4. 또한 동물 복지와 동물 실험에 필요한 상당한 시간과 비용에 대한 우려가 있습니다. 따라서 인간 Devtox를 정확하게 예측할 수 있는 대체 시험관 내 분석이 필요합니다5.
여기에서 우리는 배아 발달에 중요한 신호 전달 경로의 파괴를 기반으로 발달 독성 물질을 평가하기 위한 시험관 내 분석을 제안합니다 6,7,8. 이 분석은 혈청 반응 요소(SRE)의 제어 하에 발광 리포터 유전자인 NanoLuc 루시페라아제(Nluc)를 발현하도록 유전적으로 조작된 인간 유도만능줄기세포(iPSC)를 사용하여 수행됩니다. SRE는 섬유아세포 성장 인자(FGF) 신호 전달 경로의 전사 인자인 혈청 반응 인자(SRF)의 결합 부위입니다. SRF는 여러 리간드의 신호를 통합하고 배아 발달을 포함한 다양한 생물학적 과정에서 필수적인 역할을 하는 200개 이상의 유전자의 발현을 조절합니다9.
이 분석에서 리포터 세포는 테스트 화학 물질에 노출되고 FGF로 자극되어 신호 전달을 활성화하고 화학 물질에 의한 간섭을 증폭시켰습니다. 이 분석의 주요 특징은 발광 강도가 변함에 따라 신호 전달 활동의 역학을 포착하는 것입니다. 신호 전달 활동은 시간이 지남에 따라 달라지기 때문에 단일 시점에서의 종점 측정은 부정확할 수 있습니다10. 실제로, 24시간 동안 7개의 시점에서 측정한 결과 곡선 아래 면적(AUC) 값이 0.837로 향상된 예측 정확도가 나타났습니다.
테스트 화학 물질은 세포 독성 및 용해도에 따라 0.01ng/mL에서 1000μg/mL까지 광범위한 농도로 적용될 수 있습니다. 단일 96웰 플레이트를 시드하는 데 약 1.4 × 10⁴ 개의 세포가 필요합니다. 이 분석의 한계는 기형 유발 화학 물질이 미분화 인간 iPS 세포에서 발현되지 않은 표적을 통해 작용하는 경우 검출되지 않을 수 있다는 것입니다. 또한 이 분석은 기형 유발 대사산물을 포착하지 못할 수 있습니다. 또한 기형 유발 독성의 기본 메커니즘이나 특정 결과에 대한 정보를 제공하지 않습니다.
실시간 발광 모니터링 시스템을 사용하면 시간 분해능이 더욱 향상되고 연속 측정에 필요한 노동력이 줄어들며 배양 플레이트의 반복적인 취급으로 인한 아티팩트가 최소화됩니다. 여기에서는 신호 중단 기반 Devtox 분석을 위한 자세한 프로토콜을 제시합니다. 전체 절차는 1주일 이내에 완료될 수 있습니다. 이 접근 방식은 자동화될 수 있어 화학 스크리닝에 적합하고 동물 실험 감소에 기여합니다.
프로토콜
이 연구에서는 인간 iPS 세포(201B7)를 사용했으며, CRISPR-Cas9 시스템을 사용하여 AAVS1(Adeno-Associated Virus Integration Site 1) 유전자좌에 녹아웃된 혈청 반응 요소(SRE)의 제어 하에 Nluc 유전자를 사용했습니다(그림 1A). 리포터 세포(SRE-Nluc-knocked-in human iPS cells)에 대한 유전자 편집의 세부 사항은 다른 곳에서 보고되었습니다6. 프로토콜은 주로 1) 최대 노출 농도를 결정하기 위한 화학 물질의 세포 독성 분석, 2) 신호 파괴 테스트 및 3) 데이터 분석의 세 단계로 나뉩니다.
배지 증발의 영향을 최소화하려면 96웰 플레이트의 중앙 60웰을 사용하여 모든 세포 배양 실험을 수행하고 가장 바깥쪽 웰과 웰 간 공간에 물을 추가합니다. 증발을 더욱 줄이기 위해 배양하는 동안 가스 투과성 밀봉 필름으로 플레이트를 덮습니다.
1. 세포 준비
- 냉동 육수를 해동한 후 최소 2주 동안 리포터 세포를 배양합니다. 세포를 7일 반복 일정으로 유지하고 분석에 7일째 세포를 사용합니다. 계대일에 파종 밀도를 ~80% 합류로 최적화합니다.
- 10μM ROCK 억제제가 보충된 2mL의 신선한 유지 배지와 함께 ECM으로 코팅된 6웰 플레이트에 2.0 × 10⁵ 세포/웰에서 단일 세포를 시드합니다.
- 24시간 후, 배지를 2mL/웰의 신선한 유지 배지로 교체합니다.
- 72시간에, 효소 기반 해리 시약을 사용하여 세포를 수집하여 단일 세포 현탁액을 얻는다. 10μM ROCK 억제제가 보충된 2mL의 신선한 유지 배지와 함께 ECM 코팅된 6웰 플레이트에서 10 ×10 5 세포/웰로 시드합니다.
- 24시간 후, 배지를 4mL/웰의 신선한 유지 배지로 교체합니다.
- 96시간 후, 효소 기반 해리 시약을 사용하여 단일 세포 현탁액으로 세포를 수집합니다. 리포터 분석에 이 세포를 사용하십시오.
2. 세포독성 분석
- 예비 테스트
- 10μM ROCK 억제제가 보충된 200μL의 신선한 유지 배지와 함께 ECM으로 코팅된 96웰 플레이트에서 2.0 × 10⁴ 세포/웰에서 단일 세포를 시드합니다. 가스 투과성 필름으로 플레이트를 밀봉합니다.
- 24시간 후, 배지를 200μL/웰의 신선한 유지 배지로 교체하고 가스 투과성 필름으로 플레이트를 다시 밀봉합니다.
- 72시간 후, 배지를 100μL/웰의 분석 배지로 교체하고 가스 투과성 필름으로 플레이트를 다시 밀봉합니다.
- 96시간 후, 배지를 100μL/웰의 분석 배지로 교체합니다.
참고: 100% 합류가 달성되지 않으면 분석을 중단하십시오. 성장 속도는 세포주에 따라 다를 수 있으므로 파종 밀도를 최적화하여 분석 당일에 완전한 합류를 보장합니다. - 테스트 화학 물질을 분석 매지에 최대 용해도까지 용해시킵니다.
참고: 디메틸 설폭사이드(DMSO)를 용매로 사용하는 경우 최종 DMSO 농도는 0.1%를 초과해서는 안 됩니다. - 단계 2.1.5의 용액을 사용하여 분석 배지에서 시험 화학물질의 5점, 5배 연속 희석액을 준비합니다.
- 2.1.6단계의 화학 용액을 11μL/웰에 추가합니다. 비히클 대조군의 경우 동일한 DMSO 농도를 포함하는 분석 배지 11μL/웰을 추가합니다.
- 48시간 후, 플레이트를 25°C에서 30분 동안 배양합니다.
- 25°C에서 사전 평형화된 ATP 기반 발광 세포 생존율 분석 시약 111μL/웰을 추가합니다. 블랭크의 경우, 111 μL의 분석 배지와 111 μL의 시약을 포함하는 웰을 준비합니다.
- 마이크로플레이트 셰이커를 사용하여 플레이트를 300rpm에서 2분 동안 흔듭니다.
- 발광 측정을 위해 혼합물 200μL를 검은색 플레이트에 옮깁니다. 플레이트를 25°C에서 10분 동안 배양합니다.
- 발광 강도를 측정하여 세포 수를 추정합니다.
- 다음 공식을 사용하여 세포 생존력을 계산합니다.
세포 생존율(%) = (RLU_sample − RLU_blank) / (RLU_vehicle − RLU_blank) × 100
참고: 세포 생존력에 따라 후속 단계를 결정합니다. 테스트된 모든 농도에서 활력이 >50%인 경우 최대 용해도 농도로 2.2단계로 진행합니다. 생존율이 시험 범위 내에서 50%를 넘으면 생존율>50%의 최고 농도를 사용하여 결정 시험을 진행합니다. 생존율이 모든 농도에서 <50%인 경우 더 낮은 농도에서 시작하여 예비 테스트를 반복합니다.
- 결정 테스트
- 10μM ROCK 억제제가 보충된 200μL의 신선한 유지 배지와 함께 ECM으로 코팅된 96웰 플레이트에서 2.0 × 10⁴ 세포/웰에서 단일 세포를 시드합니다. 가스 투과성 필름으로 플레이트를 밀봉합니다.
- 24시간 후, 배지를 200μL/웰의 신선한 유지 배지로 교체하고 가스 투과성 필름으로 플레이트를 다시 밀봉합니다.
- 72시간 후, 배지를 100μL/웰의 분석 배지로 교체하고 가스 투과성 필름으로 플레이트를 다시 밀봉합니다.
- 96시간 후, 배지를 100μL/웰의 분석 배지로 교체합니다.
참고: 100% 합류가 달성되지 않으면 분석을 중단하십시오. 파종 밀도를 최적화하여 4일째에 완전한 합류를 보장합니다. - 예비 테스트 결과에 따라 테스트 화학 물질을 분석 매지에 용해시킵니다(단계 2.1).
- 2.2.5단계의 용액을 사용하여 분석 배지에서 시험 화학물질의 9점 2배 연속 희석액을 준비합니다.
- 2.2.6단계의 화학 용액을 11μL/웰을 추가합니다. 비히클 대조군의 경우 동일한 DMSO 농도를 포함하는 분석 배지 11μL/웰을 추가합니다.
- 48시간 후, 플레이트를 25°C에서 30분 동안 배양합니다.
- 25°C에서 사전 평형화된 ATP 기반 발광 세포 생존율 분석 시약 111μL/웰을 추가합니다. 블랭크의 경우, 111 μL의 분석 배지와 111 μL의 시약을 포함하는 웰을 준비합니다.
- 마이크로플레이트 셰이커를 사용하여 플레이트를 300rpm에서 2분 동안 흔듭니다.
- 발광 측정을 위해 혼합물 200μL를 검은색 플레이트에 옮깁니다. 플레이트를 25°C에서 10분 동안 배양합니다.
- 발광 강도를 측정하여 세포 수를 추정합니다.
- 다음 공식을 사용하여 세포 생존력을 계산합니다.
세포 생존율(%) = (RLU_sample − RLU_blank) / (RLU_vehicle − RLU_blank) × 100 - 9개 농도의 데이터를 사용하여 용량-반응 곡선을 생성하고 곡선에서 IC50 을 계산합니다.
3. 실시간 리포터 분석(그림 1B)
- 10μM ROCK 억제제가 보충된 200μL의 신선한 유지 배지가 있는 ECM으로 코팅된 96웰 플레이트에 2.0 × 10⁴ 세포/웰에서 단일 세포를 시드합니다. 가스 투과성 필름으로 플레이트를 밀봉합니다.
- 24시간 후, 배지를 200μL/웰의 신선한 유지 배지로 교체하고 가스 투과성 필름으로 플레이트를 다시 밀봉합니다.
- 72시간 후, 배지를 100μL/웰의 분석 배지로 교체하고 가스 투과성 필름으로 플레이트를 다시 밀봉합니다.
- 96시간 후, 배지를 1% 발광 기질을 포함하는 100μL/웰의 분석 배지로 교체합니다.
참고: 100% 합류가 달성되지 않으면 분석을 중단하십시오. 성장 속도는 세포주에 따라 다를 수 있으므로 파종 밀도를 최적화하여 4일째에 완전한 합류를 보장합니다. - 섹션 2에서 결정된 농도로 분석 매지에 테스트 화학 물질을 용해시킵니다.
- 3.5단계에서 준비된 용액에서 시작하여 분석 배지에서 테스트 화학 물질의 8점 2배 연속 희석액을 준비합니다.
- 3.4단계에서 배지 교환 2시간 후, 3.6단계의 화학 용액 11μL/웰을 추가합니다. 비히클 대조군의 경우 동일한 DMSO 농도를 포함하는 분석 배지 11μL/웰을 추가합니다.
- 화학 물질 노출을 시작한 후 1시간 후(단계 3.7), bFGF를 함유한 분석 배지 12μL/웰을 최종 농도 2ng/mL로 첨가합니다.
- 37°C에서 5% CO2 의 가습 분위기에서 실시간 발광 측정 시스템을 사용하여 48시간 동안 발광을 연속적으로 측정합니다.
참고: FGF 추가 지점에서 시간 0을 설정합니다( 그림 1B 참조).
4. 데이터 분석(그림 1C)
- 테스트 그룹을 비히클 컨트롤로 정규화하여 발광 강도의 log2 배 변화(LogFC)를 계산합니다.
로그FC = 로그2(Luc_sample / Luc_vehicle) - 48시간 시계열에 걸쳐 LogFC를 통합하여 테스트 그룹과 차량 대조군의 곡선 간 면적(ABC)을 추정합니다.
- 테스트 화학 물질로 인한 신호 중단의 전반적인 정도를 정량화하기 위한 모든 농도에 대한 ABC 값의 합계입니다.
- 수신기 작동 특성(ROC) 곡선 분석을 수행하여 Devtox 분류의 임계값을 결정합니다.
결과
우리의 경험에 따르면 세포 형태는 분석이 올바르게 수행되었는지 여부를 결정하는 데 유용합니다. 그림 2A 는 화학 물질 노출 직전과 직후의 세포의 일반적인 공초점 현미경 이미지를 보여줍니다. 분석이 끝나면 우물의 거의 전체 표면이 세포로 덮여 있습니다. 그림 2B 는 살아있는/죽은 세포 염색의 이미지를 보여줍니다. 요오드화 프로피듐(PI)으로 염색된 죽은 세포의 수는 화학 물질에 노출된 후 증가합니다. 그러나 세포 생존율은 최소 50%이며 거의 모든 세포가 칼세인-AM으로 염색됩니다.
표 1에는 이전 연구 7,8에서 사용된 테스트 화학 물질이 나열되어 있습니다. 이러한 연구는 인간 iPS 세포에서 FGF 신호의 파괴를 기반으로 Devtox 화학 물질을 향상된 정확도로 구별할 수 있음을 보여줍니다. 주요 발견은 시그널링 활동이 시간이 지남에 따라 동적으로 변하기 때문에 시그널링 활동을 지속적으로 모니터링하는 것이 중요하다는 것입니다. 실시간 발광 측정 시스템을 사용하면 더 적은 측정 노동력으로 훨씬 더 높은 시간 분해능을 얻을 수 있습니다. 여기에서는 실시간 모니터링 시스템을 사용하는 프로토콜에 대해 설명합니다.
그림 3A 는 테스트 화학 물질 없이 동일한 조건에서 6개의 반복 웰에서 48시간 동안의 발광 강도 변화를 보여줍니다. 6개의 곡선이 거의 정렬되어 있어 웰 간 재현성이 우수함을 나타냅니다. 이전 연구에서 24시간 수동 측정에서 명확하게 식별되지는 않았지만 FGF 리간드 추가 직후의 초기 피크와 약 24시간의 두 번째 피크인 두 개의 뚜렷한 피크가 48시간 실시간 측정에서 나타납니다. 그림 3B 는 잘 알려진 발달 독성 물질인 발프로산(VPA)에 노출되었을 때의 발광 강도의 변화를 보여줍니다. VPA는 신경관, 심장 및 사지에 결함을 유발하는 히스톤 탈아세틸라제 억제제입니다¹¹. VPA는 농도 의존적 방식으로 FGF 신호 전달을 방해합니다. 자동화된 실시간 측정 시스템은 수동 측정보다 신호 역학을 더 정확하게 캡처했습니다.
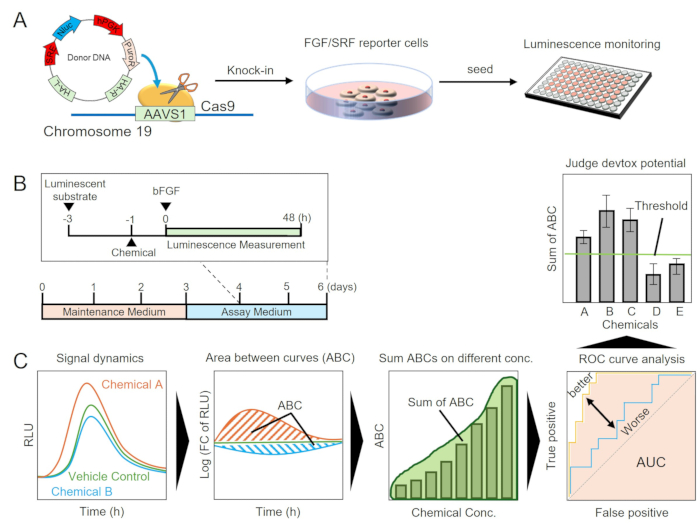
그림 1: FGF/SRF 신호 중단 분석. (A) FGF/SRF 신호 리포터 세포를 생성하기 위한 인간 iPS 세포의 유전 공학. 혈청 반응 요소의 하류에 Nluc, 표적 녹인을 위한 상동 암, 인간 포스포글리세레이트 키나제 프로모터의 제어 하에 퓨로마이신 내성 유전자를 포함하는 플라스미드를 구성했습니다. 퓨로마이신 선택 후, SRE-Nluc 리포터 세포가 확립되었습니다. (B) 분석 일정. 리포터 세포를 96웰 플레이트에 파종하고 전체 표면을 덮도록 4일 동안 성장시켰습니다. 발광 기판과 시험 화학물질은 측정을 시작하기 3시간 및 1시간 전에 각각 첨가되었습니다. FGF 리간드 첨가 시간을 0시간으로 설정하고, 이후 48시간 동안 발광 강도를 지속적으로 측정하였다. ( C) 데이터 분석. 신호 역학은 테스트 화학 물질에 노출된 세포와 노출되지 않은 세포에서 기록되고 화학 물질로 인한 신호 중단의 척도로 곡선 사이의 면적을 추정하기 위해 차량 제어에 정규화되었습니다. 서로 다른 농도에서 각 화학 물질에 대한 ABC 값을 얻고 그 합계를 계산했습니다. 임계값을 결정하기 위해 테스트된 모든 알려진 발달 독성 물질을 사용하여 수신자 작동 특성 곡선 분석을 수행했습니다. 약어: iPS = 유도만능줄기세포; RLU = 상대 조명 단위; AUC = 곡선 아래 면적; FGF = 섬유아세포 성장 인자; SRF = 혈청 반응 인자; SRE = 혈청 반응 요소; HA = 상동 팔; L = 왼쪽; R = 오른쪽; PuroR = 퓨로마이신 내성 유전자; hPGK = 인간 포스포글리세레이트 키나아제; Nluc = 나노룩 루시페라아제; ROC = 수신기 작동 특성; ABC = 곡선 사이의 면적. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
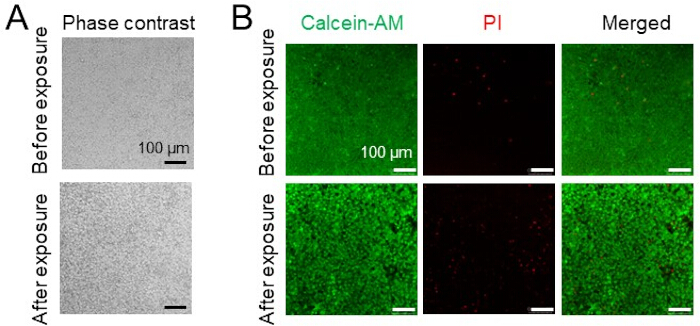
그림 2: 세포 형태 및 살아있는/죽은 세포 염색. (A) 시험 화학 물질에 노출되기 전(4일) 및 후(6일) 세포의 공초점 현미경 이미지. 테스트 후 우물의 거의 전체 표면을 덮고 있는 나머지 세포는 성공적인 테스트 실행의 지표입니다. 분석이 끝날 때 거의 완전한 유정 커버리지가 성공적인 실행을 나타냅니다. (B) 시험 화학 물질에 노출되기 전과 후의 살아있는/죽은 세포 염색. 살아있는 세포는 Calcein-AM으로 녹색으로 염색되었고, 죽은 세포는 요오드화 프로피듐(PI)으로 빨간색으로 염색되었습니다. 칼세인-AM(녹색)으로 염색하고 죽은 세포를 요오드화 프로피듐(PI, 빨간색)으로 염색했습니다. 죽은 세포의 비율은 전체 세포의 50%< 적어야 합니다. 스케일 바 = 100 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
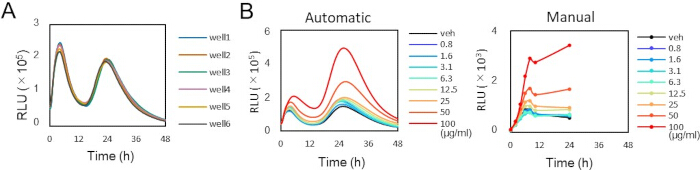
그림 3: 발광 강도 역학의 일반적인 예. (A) 시간 경과 발광은 실시간 발광 측정 시스템을 사용하여 측정된 FGF 리간드 자극 후 발주의 시간 경과를 변화시킵니다. 발광 강도는 48시간 동안 22분마다 모니터링되었습니다. 6개의 색상 선은 서로 다른 웰의 신호를 나타냅니다. (B) 발프로산을 사용한 수동 및 실시간 발광 측정의 비교. 두 가지 측정 방법 모두에서 신호 중단이 관찰된 반면, 실시간 모니터링은 두 번째 피크에서 향상된 신호를 보다 명확하게 포착했습니다. 약어: RLU = 상대 조명 단위; VPA = 발프로산; FGF = 섬유아세포 성장 인자. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오. 이 표를 다운로드하려면 여기를 클릭하십시오.
| 테스트 화학 물질 | 약어 | 카스 아니오. | 동물 연구 (이전 연구) | 체외 연구 (본 연구) | ABC 값의 합계 | 최대 집중 (μg/mL) |
| 올트랜스-레티노산 | 아트라 | 302-79-4 | P | P | 65.9 | 0.0100 |
| 하이드록시우레아 | 후 | 127-07-1 | P | P | 63.3 | 149 |
| 메톡시아세트산 | 마아 | 625-45-6 | P | P | 225 | 683 |
| 메틸 수은 염화물 | 메Hg | 115-09-3 | P | P | 77.7 | 1.20 |
| 메토트렉세이트 하이드레이트 | MTX | 133073-73-1 | P | P | 80.5 | 5.00 |
| 살리실산나트륨 | SA | 54-21-7 | P | P | 38.7 | 666 |
| 발프로산 | VPA | 99-66-1 | P | P | 63.3 | 100 |
| 6-아미노니코틴아미드 | 6-AN | 329-89-5 | P | N | 24.9 | 1.00 |
| 붕산 | 바 | 10043-35-3 | P | N | 24.2 | 250 |
| 5-브로모-2'-데옥시우리딘 | 브르듀 | 59-14-3 | P | P | 83.9 | 50.0 |
| 5,5-디메틸-2,4-옥사졸리딘디온 | DMO | 695-53-4 | P | P | 50.3 | 840 |
| 리튬 클로라이드 | LiCl | 7447-41-8 | P | N | 29.8 | 250 |
| 5-플루오로우라실 | 5-FU | 51-21-8 | P | P | 92.4 | 2.65 |
| 시클로포스파미드 일수화물 | CPA | 6055-19-2 | P | N | 19.1 | 400 |
| 이마티닙 메실레이트 | IMA | 220127-57-1 | P | P | 42.4 | 12.5 |
| 레날리도마이드 | 렌 | 191732-72-6 | P | P | 94.7 | 35.0 |
| 포말리도마이드 | 폼 | 19171-19-8 | P | P | 50.9 | 2.50 |
| 탈리도마이드 | 그쪽으로 | 50-35-1 | P | P | 53.3 | 12.0 |
| 아크릴아미드 | AcA | 79-06-01 | N | N | 37.1 | 454 |
| D-장뇌 | 캠 | 464-49-3 | N | N | 27.5 | 50.0 |
| 디펜히드라민 염산염 | DHM | 147-24-0 | N | P | 68.2 | 262 |
| 디메틸 프탈레이트 | DMP | 131-11-3 | N | N | 24.4 | 100 |
| 페니실린 G 나트륨염 | 펭 | 69-57-8 | N | N | 22.1 | 1000 |
| 사카린 나트륨 | SAC | 82385-42-0 | N | N | 34.0 | 1000 |
| 아세트아미노펜 | APAP | 103-90-2 | N | N | 22.3 | 20.0 |
| 아목시실린 삼수화물 | AMX | 61336-70-7 | N | N | 28.4 | 25.0 |
| 시메티딘 | 센티미터 | 51481-61-9 | N | N | 25.3 | 30.0 |
| 에리스로마이신 | 에리 | 114-07-8 | N | N | 20.0 | 15.0 |
| 히드로클로로티아지드 | HCTZ | 58-93-5 | N | N | 21.9 | 20.0 |
| 설파살라진 | SSZ | 599-79-1 | N | N | 30.8 | 100 |
| 화학 | AUC | 문지방 | 민감 | 특이성 | 정밀 | |
| 30가지 물질 | 0.819 | 37.9 | 0.778 | 0.917 | 0.833 |
표 1: 동물 실험 내에서 분류된 Devtox 및 비Devtox 화학 물질 및 FGF 신호 중단 유무에 관계없이 추정된 결과. 약어: P = 양성(Devtox); N = 음성(비 Devtox).
토론
배아-태아 발달은 신호 네트워크에 의해 엄격하게 조절됩니다12. 이러한 네트워크 내의 피드백은 내부 및 외부 노이즈에 대한 견고성을 제공하지만, 우리는 Devtox 화학 물질이 이러한 버퍼링 이상의 효과를 발휘할 수 있다는 가설을 세웠습니다. 여기에서는 FGF/SRF 신호 전달의 과도한 중단을 기반으로 Devtox 화학 물질을 추정하기 위한 프로토콜을 제시합니다. 이 접근법은 화학 물질의 표적 단백질과 같이 Devtox를 담당하는 분자 메커니즘에 관한 정보를 제공하지 않으며 FGF/SRF 신호 전달에만 초점을 맞춥니다. 그럼에도 불구하고 Devtox 화학물질을 효율적으로 분류하는 것이 가능했으며, 정확도는 83%, AUC는 0.819였다(표 1). 이는 아마도 각 신호 경로가 다른 신호 경로와 밀접하게 연관되어 있고 고밀도 신호 네트워크를 형성하고 이러한 네트워크 내에서 중단되면 FGF/SRF 신호 중단이 발생하기 때문일 수 있습니다.
리포터 셀을 생성할 때 몇 가지 기술적 문제를 해결해야 합니다. Nluc는 반딧불이나 레닐라에서 추출한 기존의 루시페라아제보다 약 100배 더 밝기 때문에 신호 변화를 지속적으로 장기간 모니터링할 수 있습니다13. PEST 서열을 포함하는 Nluc는 신호 전달 활동의 역학을 보다 정확하게 포착하는 데 사용되었습니다. PEST 서열은 단백질 분해를 촉진합니다. Nluc 단백질은 반감기가 6시간 이상으로 안정적이지만 PEST 태그는 유비퀴틴-프로테아좀 경로를 통해 분해를 가속화하여 반감기를 10-30분으로 줄입니다. 또한, 리포터 유전자는 게놈의 "세이프 하버"인 AAVS1 유전자좌에 녹아서 발현이 침묵하지 않고 필수 유전자가 우발적으로 파괴되지 않도록 했습니다14.
테스트 방법을 평가할 때 Devtox 및 비 Devtox에 대한 참조 화학 물질을 선택하는 것이 중요합니다. ECVAM 국제 검증 연구, ICH S5 가이드라인(탈리도마이드 포함) 및 동물 연구 목록에서 참조 화학물질을 선택했습니다7. 우리는 30가지 Devtox 및 비 Devtox 화학 물질을 나열했지만 신뢰할 수 있는 출처의 더 많은 화학 물질을 추가하고 테스트해야 합니다. 따라서 여기에 보고된 ROC 임계값(합계 ABC = 37.9)은 예비적인 것으로 간주되어야 하며 통계적 견고성을 보장하기 위해 더 크고 독립적인 화합물 세트로 검증해야 합니다. 시클로포스파미드(CPA)는 위음성 결과를 보인 세 가지 화학 물질 중 하나였습니다. CPA는 간에서 4-하이드로퍼옥시시클로포스파미드로 수산화되며, CPA와 그 분해 생성물은 기형을 유발합니다15. 우리의 접근 방식을 포함한 시험관 내 분석은 일반적으로 신진대사를 고려하지 않으며 신진대사를 통해 Devtox를 유도하는 화학 물질을 검출할 수 없습니다. 이것은 제안된 접근 방식의 한계입니다. 대사 의존성 위음성(예: CPA) 외에도 디펜히드라민 염산염(DHM)에서도 위양성을 관찰했습니다. 역학적 증거는 DHM과 선천성 기형 사이의 인과 관계를 강력하게 뒷받침하지 않지만 여러 시험관 내 연구에서 DHM을 발달 독성 물질로 분류했습니다. 이것은 우리 분석에서 잘못된 분류에 기여했을 가능성이 있습니다. 반대로, 6-아미노니코틴아미드(6-AN)는 FGF/SRF 신호 전달을 방해하지 않았으므로 잘못 분류되었으며, 이는 발달 독성의 메커니즘이 이 기포자에 의해 포착되지 않은 경로를 통해 진행될 수 있음을 시사합니다. 이러한 예는 위양성과 위음성을 모두 줄이기 위해 추가 발달 신호 전달 경로를 포함하도록 분석 패널을 확장하는 것을 지원합니다.
몇 가지 요인이 이 분석에 큰 영향을 미칩니다. 그러한 요인 중 하나는 분석 전 세포 준비입니다. 이를 최소화하기 위해 세포는 분석에 사용된 세포가 동일한 성장 조건에서 수집되도록 7일 반복 일정으로 유지되었습니다. 세포는 월요일에 파종되고 목요일에 계대되며 일부는 분석에 사용되며 다음 계대를 위해 파종됩니다. 또 다른 요인은 테스트 화학 물질에 노출될 때의 세포 밀도입니다. 분석은 화학 물질 노출 당일 세포가 100% 합류에 도달했을 때만 수행되었습니다. 96웰 플레이트의 가장자리 효과는 잘 알려져 있습니다. 이 분석에서는 가장자리 효과를 피하기 위해 96웰 플레이트의 내부 60웰만 사용되었습니다. 일반적인 고려 사항 외에도 분석 중에 기술적 변동성이 발생할 수 있습니다. 공통적인 문제는 비히클 대조군의 웰 사이에서 일관되지 않은 발광 강도였으며, 이는 고르지 않은 세포 파종 또는 최적이 아닌 세포 품질로 인해 발생했을 수 있습니다. 이러한 변동성을 최소화하고 파종 다음 날 웰 전체에서 균일한 성장을 확인하기 위해 세포를 약 80% 합류로 유지하는 것이 좋습니다. iPSC 파종 밀도를 조정하면 분석 재현성도 향상될 수 있습니다. 또한, 과도한 세포 사멸은 실험 신호와 무관한 비특이적 발광 변동을 유발할 수 있습니다. 따라서 분석 종료 시 세포 형태를 평가하여 측정 중에 세포가 적절한 상태에 있는지 확인하십시오. 수동 분석에서 각 시점에서 인큐베이터에서 플레이트를 제거하면 세포가 온도 및 CO2 수준의 짧은 변화에 노출됩니다. 이러한 환경 변동을 제한하려면 측정을 빠르고 일관되게 수행해야 합니다.
이 분석은 수동으로 수행하거나 실시간 측정 시스템을 사용하여 수행할 수 있습니다. 수동 접근 방식에는 특수 장비가 필요하지 않지만 실시간 측정 시스템을 사용하면 신호 역학을 보다 정확하게 감지할 수 있습니다. 수동 측정에서는 식별되지 않았지만 실시간 측정 시스템은 발광 신호의 두 피크를 명확하게 포착했습니다. 수동 측정에서 야간에 데이터 수집에 12시간의 간격이 발생하여 두 번째 피크가 과소평가되거나 손실되었을 수 있습니다. 이 두 피크는 FGF 신호 전달의 부정적인 피드백과 열적으로 안정적인 FGF 리간드의 존재로 인해 발생할 수 있습니다. 특히, 화학 물질에 의한 FGF 신호 중단은 때때로 첫 번째 피크보다 두 번째 피크에서 더 큰 것으로 나타났습니다(그림 3B).
이 프로토콜은 FGF 신호 중단을 정량적으로 평가하기 위해 인간 iPSC 기반 리포터 분석을 사용하는 Devtox 화학 스크리닝에 대한 유망한 접근 방식을 나타냅니다. 마우스 배아 줄기 세포 검사(mEST)16, Hand1 기반 배아 줄기 세포 검사(Hand1-EST)17 및 ReProGlo18을 포함하여 지난 수십 년 동안 발달 독성에 대한 몇 가지 대체 시험관 내 분석법이 개발되었습니다. 이러한 기존 분석과 비교하여 이 방법은 우수한 예측 정확도를 입증했습니다. 최근 몇 년 동안 비동물 실험 시스템을 구축하기 위한 국제적 노력의 일환으로 인간 배아 줄기 세포나 제브라피쉬 배아를 사용하는 것과 같은 대체 전략이 도입되었습니다. 이러한 접근법은 또한 발달 독성 평가에 대한 높은 예측 정확도를 보고했습니다. 이 분석의 성능을 더욱 향상시키려면 배아 발달과 관련된 추가 신호 전달 경로를 통합하는 것이 도움이 될 수 있습니다. 발달 형태 형성에는 Wnt/β-catenin, BMP/SMAD 및 Hedgehog/GLI 신호 전달과 같은 몇 가지 다른 주요 신호 전달 경로가 있습니다19. 이러한 신호 전달 경로를 평가하는 데 사용되는 리포터 세포의 다양한 조합은 다양한 화학 물질에 대한 보다 포괄적인 평가를 제공할 수 있습니다. iPS 세포의 분화 단계, 예를 들어 3개의 배아층이 형성되는 가장 초기 단계가 이 분석의 검출 감도에 미치는 영향은 향후 연구 주제가 될 것입니다. 향후 연구에서는 설치류 또는 토끼 줄기 세포 시스템을 사용하여 해당 종의 생체 내 데이터 세트와 직접 비교할 수 있는 종 간 검증을 탐색할 수 있으며, 인간 관련성을 극대화하기 위해 인간 iPS 세포에 중점을 둘 수 있습니다.
공개 사항
저자는 공개할 이해 상충이 없습니다.
감사의 글
이 작업은 일본 JSPS[KAKENHI 보조금 번호 23K25021 및 25K03278]의 지원을 받았습니다. 일본 MHLW [프로그램 보조금 번호 23KD1003 및 24KD1003]; KISTEC, 일본; 및 AMED, 일본 [보조금 번호 JP23mk0101252 및 25mk0121314].
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1.5 mL 마이크로 원심분리관 | 패스트진 | FG-MCT015C | 시험 화학 준비 |
| 15mL 원심분리관 | 비올라모 | 1-3500-21 | 세포 배양 |
| 8스트립 PCR 튜브 | 왓슨 | 137-333C | 시험 화학 준비 |
| 96 웰 화이트/클리어 바닥판, TC 표면 | 써모피셔 사이언티브 | 165306 | 세포 배양 및 발광 측정 |
| 검은색 마이크로플레이트 플랫 바텀 96웰 | 아소네 | 3-3321-04 | 세포독성 검사에서 발광 측정을 위한 |
| 숨 쉬기 좀 더 편하게 | 도호 | BERM-2000 | 가스 투과성 밀봉막 |
| 셀타이터-글로우 발광 세포 생존 분석 | 프로메가 | G7572 | 세포독성 검사 |
| 원심분리기 5702 R | 에펜도르프 | 원심 분리 | |
| 클립팁 300, 필터 처리, 멸균, 진열대 | 써모피셔 사이언티브 | 94420513 | |
| 클립팁 50, 필터 처리, 멸균, 랙 | 써모피셔 사이언티브 | 94420253 | |
| Countess 3 FL 자동 셀 카운터 | 인비트로젠 | 세포 세기 | |
| 백작부인 셀 계수실 슬라이드 | 인비트로젠 | C10312 | 세포 세기 |
| 컬처 슈어 DMSO | 후지필름 와코 | 031-24051 | 화학물질용 용매 |
| 컬처슈어 Y-27632 | 후지필름 와코 | 036-24023 | iPSC 시딩을 위한 ROCK 억제제 |
| DMEM/F12 HEPES, 페놀 레드 없음 | 써모피셔 사이언티브 | 11039-021 | iPS 세포 배양용 코팅 |
| F1-클립팁 멀티채널 피펫, 30에서 300 및 마이크로; L | 써모피셔 사이언티브 | 4661180N | |
| F1-ClipTip 멀티채널 피펫, 5에서 50 및 마이크로; L | 써모피셔 사이언티브 | 4661160N | |
| 필터 칩 | 왓슨 | ||
| Geltrex LDEV 자유 저축 성장인자 기저막 기질 | 써모피셔 사이언티브 | A1413202 | iPS 세포 배양용 코팅 |
| 히에나이 매트 01R | 코스모 바이오 | HMAT01R | 세포 배양 작업 중 판 온도 안정성 유지를 위해 |
| 히에나이 튜브 워머 GX01 | 코스모 바이오 | TWGX013 | 실험 중에 중간 온도를 따뜻하게 유지하기 위해 |
| 인간 열 안정 bFGF 재조합 단백질 | 써모피셔 사이언티브 | PHG0367 | 리포터 분석을 위한 FGF 자극 |
| 인간 유도 다능성 줄기세포(iPS) | 201B7 (RCB Cat# HPS0063, RRID: CVCL_A324) | 리켄 BRC 셀 뱅크 | |
| 마이크로플레이트 셰이커 | 타이텍 | 0089532-000 | 세포 적도 검사를 위한 판 흔들기 |
| 멀티플레이트 리더 | 퍼킨엘머 | ARVO X4 | 루미네세기 측정 |
| 나노글로 엔듀라진 생세포 기질 | 프로메가 | N2571 | 발광 기질 |
| PBS (-) | 후지필름 와코 | 166-23555 | 세포 문화 |
| 파라필림 | AS 원 | 65-1681-93 | 도금 도장 보관 |
| 피페토 | 에펜도르프 | ||
| WSL-1563 크로노스HT | ATTO | 3510140 | 실시간 발광 측정 시스템; |
| 저수지 | BMBio | BM-0850-1 | |
| STEMdif APEL2 미디엄 | 스템셀 테크놀로지 | ST-05275 | 분석용 매체 |
| 스템플렉스 미디엄 | 써모피셔 사이언티브 | A3349401 | 유지 매체 |
| 멸균수, 엔도톡신 없는 상태 | 후지필름 와코 | 196-15645 | iPS 세포 배양을 위한 습도 조절 |
| 조직 배양 플레이트 VTC-P6 | 비올라모 | 2-8588-01 | 세포 문화 |
| 트라이플 셀렉트 효소(1X), 페놀 레드 없음 | 써모피셔 사이언티브 | 12563011 | 세포 배양 |
| 발프로산 | 후지필름 와코 | 227-01071 | 시험 화학물질 |
참고문헌
- Gilbert-Barness, E. Teratogenic causes of malformations. Ann Clin Lab Sci. 40 (2), 99-114 (2010).
- DeSesso, J. M. Future of developmental toxicity testing. Curr Opin Toxicol. 3, 1-5 (2017).
- Teixidó, E., Krupp, E., Amberg, A., Czich, A., Scholz, S. Species-specific developmental toxicity in rats and rabbits: Generation of a reference compound list for development of alternative testing approaches. Reprod Toxicol. 76, 93-102 (2018).
- Vargesson, N. Thalidomide-induced teratogenesis: History and mechanisms. Birth Defects Res C Embryo Today. 105 (2), 140-156 (2015).
- van der Laan, J. W., Chapin, R. E., Haenen, B., Jacobs, A. C., Piersma, A. Testing strategies for embryo-fetal toxicity of human pharmaceuticals. Animal models vs. in vitro approaches: A workshop report. Regul Toxicol Pharmacol. 63 (1), 115-123 (2012).
- Kanno, S., et al. Luciferase assay system to monitor fibroblast growth factor signal disruption in human iPSCs. STAR Protoc. 3 (2), 101439(2022).
- Kanno, S., Okubo, Y., Kageyama, T., Yan, L., Fukuda, J. Integrated fibroblast growth factor signal disruptions in human iPS cells for prediction of teratogenic toxicity of chemicals. J Biosci Bioeng. 133 (3), 291-299 (2022).
- Kanno, S., et al. Establishment of a developmental toxicity assay based on human iPSC reporter to detect FGF signal disruption. iScience. 25 (2), 103770(2022).
- Miano, J. M. Role of serum response factor in the pathogenesis of disease. Lab Invest. 90 (9), 1274-1284 (2010).
- Purvis, J. E., Lahav, G. Encoding and decoding cellular information through signaling dynamics. Cell. 152 (5), 945-956 (2013).
- Paradis, F. -H., Hales, B. F. Exposure to valproic acid inhibits chondrogenesis and osteogenesis in mid-organogenesis mouse limbs. Toxicol Sci. 131 (1), 234-241 (2013).
- Bosman, S. L., Sonnen, K. F. Signaling oscillations in embryonic development. Curr Top Dev Biol. 149, 341-372 (2022).
- Hall, M. P., et al. Engineered luciferase reporter from a deep sea shrimp utilizing a novel imidazopyrazinone substrate. ACS Chem Biol. 7 (11), 1848-1857 (2012).
- DeKelver, R. C., et al. Functional genomics, proteomics, and regulatory DNA analysis in isogenic settings using zinc finger nuclease-driven transgenesis into a safe harbor locus in the human genome. Genome Res. 20 (8), 1133-1142 (2010).
- Hales, B. F. Comparison of the mutagenicity and teratogenicity of cyclophosphamide and its active metabolites, 4-hydroxycyclophosphamide, phosphoramide mustard, and acrolein. Cancer Res. 42 (8), 3016-3021 (1982).
- Genschow, E., et al. The ECVAM international validation study on in vitro embryotoxicity tests: Results of the definitive phase and evaluation of prediction models. Altern Lab Anim. 30 (2), 151-176 (2002).
- Suzuki, N., Ando, S., Yamashita, N., Horie, N., Saito, K. Evaluation of novel high-throughput embryonic stem cell tests with new molecular markers for screening embryotoxic chemicals in vitro. Toxicol Sci. 124 (2), 460-471 (2011).
- Uibel, F., et al. ReProGlo: A new stem cell-based reporter assay aimed to predict embryotoxic potential of drugs and chemicals. Reprod Toxicol. 30 (1), 103-112 (2010).
- Sanz-Ezquerro, J. J., Münsterberg, A. E., Stricker, S. Editorial: Signaling pathways in embryonic development. Front Cell Dev Biol. 5, 76(2017).
재인쇄 및 허가
