이 프로토콜은 여러 기억 관련 뇌 영역에 걸쳐 뉴런과 성상교세포로부터 칼슘 신호를 동시에 기록하는 방법을 포괄적으로 설명하며, 학습 및 기억 행동 패러다임에서의 적용 방식을 시연합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
학습 및 기억 행동 중 여러 뇌 영역에 걸친 성상교세포-뉴런 활동을 기록하는 이중 색상 섬유 광도 측정법
이 논문에서
요약
초록
학습과 기억은 분산된 뇌 영역 전반에 걸쳐 뉴런과 성상교세포 간의 협응에 결정적으로 의존합니다. 성상교세포는 시냅스 전달과 신경 흥분성을 조절하여 기억 관련 회로 내 정보의 부호화와 통합에 기여합니다. 성상교세포와 뉴런 간의 내외 상관관계는 기억 및 인지 장애를 이해하는 데 매우 중요합니다. 그러나 기억 행동 중 여러 영역에서 성상세포와 신경 활동을 동시에 모니터링하는 것은 기술적으로 여전히 어렵습니다. 여기서는 여러 기억 관련 영역에서 성상교세포와 뉴런으로부터 칼슘 신호를 동시에 기록할 수 있는 방법을 제시합니다. 이 전략은 세포 유형별 이중 색상 유전자 암호화 칼슘 지표(GECI), 다중 채널 광도 측정 시스템, 동기화된 행동 추적을 결합하여 내측 전전두엽 피질(mPFC), 해마 CA1 영역, 내측 후두피질(MEC)에서 신경 및 성상세포 활동을 실시간으로 모니터링합니다. 대표적인 결과는 객체 인식 과제 중 영역과 세포 유형 간에 칼슘 역학이 조정된 상태를 보여줍니다. 이 방법은 학습 및 기억 과정의 근본적인 성상교세포-뉴런 상호작용을 재현 가능하고 효율적으로 연구할 수 있는 실험적 틀을 제공합니다.
서론
학습과 기억은 정보를 획득, 저장, 회수하는 기본적인 인지 과정으로, 적응 행동 형성에 매우 중요합니다. 이러한 과정들은 공간 탐색, 객체 인식, 맥락적 연관성, 의사결정과 같은 다양한 복잡한 기능을 뒷받침합니다. 또한, 알츠하이머병, 연령 관련 인지 질환, 외상성 뇌손상 등 인지 기능 장애는 기억 형성에 이상을 보입니다 1,2,3. 따라서 학습과 기억의 신경 기초를 포괄적으로 이해하려면 서로 다른 세포 유형 간의 동적 상호작용을 명확히 해야 합니다. 이러한 상호작용은 정보의 부호화 및 검색에서 이 영역들 안팎에서 발생합니다.
전통적으로 기억 형성은 주로 신경 활동에 의해 결정된다고 여겨졌다. 그러나 광범위한 연구를 통해 성상교세포가 정보 부호화, 통합, 검색을 크게 조절한다는 것이 입증되었습니다. 이들은 시냅스 전달을 조절하고, 신경 세포의 흥분성 조절하며, 글리오전달물질을 방출하고, 대사 지원을 제공함으로써 이를 달성합니다. 성상교세포는 뉴런과 동적으로 상호작용하며, 양방향 통신은 통틀어 '성상교세포-뉴런 네트워크'라고 불립니다. 따라서 성상교세포와 뉴런 간의 조정된 상호작용을 이해하는 것은 학습과 기억의 세포 및 네트워크 메커니즘을 이해하는 데 매우 중요합니다.
학습과 기억은 여러 뇌 영역에 걸친 정보가 동적으로 통합되는 데 의존합니다. 성상교세포와 뉴런 간의 상호작용은 국소 미세회로에만 국한되지 않고, 기억과 관련된 분산된 뇌 영역, 예를 들어 내측 전전두엽 피질(mPFC), 해마 CA1 영역, 내측 내감각 피질(MEC) 전반에 걸쳐 확장됩니다. mPFC는 기억 공고화와 장기 기억 조절에 관여하는 것으로 알려져 있습니다; CA1은 일화 기억 부호화 및 재활성화에 중심적인 역할을 합니다; MEC는 공간 및 다중 모드 정보 통합의 허브 역할을 하여 해마-피질 회로12, 13, 14, 15, 16에 필수적인 입력을 제공합니다. 축적된 증거에 따르면 이 영역의 성상교세포는 뉴런과 조정된 영역 간 역학에 참여하며, 학습과 기억 중 정보 흐름과 상태 전이에서 핵심적인 역할을 한다17,18.
기억 처리에서 성상교세포와 뉴런의 시너지 기능에 대한 인식은 증가했지만, 자유롭게 움직이는 동물의 행동 중 여러 기억 관련 뇌 영역에서 성상교세포와 뉴런의 칼슘 활성을 동시에 모니터링하는 데는 여전히 중요한 기술적 도전과제가 남아 있습니다. 2광자 영상은 고해상도 영상을 제공하지만 깊이와 머리 고정에 의해 제한됩니다19,20; 다중 채널 전기생리학은 고시간 해상도 기록을 가능하게 하지만 세포 유형 특이성이 부족하고 성상세포 칼슘 신호를 구별할 수 없습니다. 이에 따라 자유롭게 움직이는 쥐의 여러 기억 관련 뇌 영역에 걸쳐 성상세포 및 신경 칼슘 신호를 동시에 기록할 수 있는 방법이 개발되었습니다. 유전적으로 암호화된 칼슘 지표(GECI)는 Ca2+ 의존적 구조 변화를 통한 세포 내 Ca2+ 역학을 보고하며, 이는 유전적으로 암호화된 형광체의 형광을 조절합니다. 이중 색상 GECI 접근법은 녹색과 빨간색 칼슘 센서와 같은 스펙트럼 분리 가능한 지표와 세포 유형 특이적 프로모터를 활용하여 동일한 뇌 영역 내에서 성상세포와 신경세포 Ca2+ 활동을 동시에 기록할 수 있게 합니다. 세포 유형별 이중 색상 GECI(GCaMP6f 및 jRGECO1a)와 다중 채널 광도 측정 시스템을 결합함으로써, mPFC, CA1, MEC 내 신경세포와 성상교세포의 칼슘 활성을 실시간으로 모니터링할 수 있게 되었습니다. 더 나아가, 새로운 객체 인식(NOR) 과제를 예로 들면, 학습 과제에서 뇌 영역과 세포 유형 간의 칼슘 역학이 조정되어 있음을 입증했습니다. 이 방법은 학습과 기억 중 뇌 영역 전반에 걸쳐 성상교세포-뉴런 군단 활동을 연구하기 위한 재현 가능하고 신뢰할 수 있으며 확장 가능한 프로토콜입니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
모든 동물 실험은 제3군사의과대학 동물 관리 및 이용 위원회(동물 윤리 승인 번호: AMUWEC20230126)의 승인을 받았으며, 동물의 윤리적 대우를 보장하기 위해 제3군사의과대학 실험동물 관리 및 사용 지침에 따라 수행되었습니다. 시약과 사용된 장비는 재료표에 나열되어 있습니다.
실험자의 안전을 보장하기 위해 살아있는 동물과 바이러스 벡터를 대상으로 한 모든 실험 절차는 보호복, 멸균 장갑, 마스크를 착용한 상태에서 수행되었습니다. 모든 기기는 사용 전에 철저히 멸균되었고, 실험 표면은 실험 전후로 70% 에탄올로 세척되었습니다. 남은 자재는 기관 폐기물 처리 규정에 따라 처리되었습니다. 모든 시약과 장비는 피부나 눈과 직접 접촉하지 않도록 취급되었다.
1. 동물 준비 및 바이러스 처리
- 4개월 된 C57BL/6마리 쥐(남녀 모두)를 12시간 밝고 어두운 주기로 키우며, 자유롭게 음식과 물을 섭취할 수 있습니다.
- AAV5-GfaABC1D-GCaMP6f 또는 AAV9-hSyn-jRGECO1a를 0–4°C에서 얼음 위에 해동하여 사용 직전.
- 뽑은 유리 마이크로피펫(팁 직경 15–25 μm)을 주사기에 연결하고 마이크로 인젝션 펌프에 장착합니다.
- 쥐를 멸균된 수술 플랫폼 위에 올려놓고 모든 기구를 70% 에탄올로 소독하세요.
2. 입체 주입 바이러스
참고: 본 연구에서는 2단계 바이러스 주입 전략을 사용했습니다. 현재 실험 조건에서는 이 전략을 신뢰성 있고 안정적으로 구현할 수 있으며, 결과적인 발현 패턴은 예상되는 세포 유형 특이적 프로모터 프로필과 일치합니다.
- 첫 번째 수술: 성상교세포 주사를 위한 AAV5-GfaABC1D-GCaMP6f (역가: 7 ×10 12 vg/mL)
- 챔버에서 3% 이소플루란으로 마취를 유도한 후, 기관에서 승인된 프로토콜에 따라 코 콘 을 통해 0.8%–1.2% 이소플루란으로 마취를 유지합니다.
- 온열 패드를 사용해 체온을 37–38°C로 유지하고, 각막 건조를 방지하기 위해 안과 연고를 바르세요.
- 두피 털을 제거하고 피부를 철저히 소독하세요. 두개골 표면을 드러내기 위해 중앙선을 절단하세요.
- 머리를 입체성 기기에 넣고, 브레그마와 람다 봉합선을 같은 수평면으로 조정한 뒤, 프레임을 추가로 조정하여 양쪽 브레그마에서 2mm 떨어진 지점이 수평이 되도록 합니다.
- 브레그마를 기준점으로 마우스 뇌 아틀라스를 사용해 입체 배치 좌표를 식별합니다.
mPFC: AP +1.8 mm, ML +0.3 mm, DV −3.0 mm
CA1: AP −2.1 mm, ML +1.6 mm, DV −1.2 mm
MEC: AP −4.5 mm, ML −2.9 mm, DV −2.0 mm - 각 부위 위에 0.6mm(직경) 원형 두개골 절개술을 뚫고, 두개골을 열어도 경막을 촉촉하고 온전하게 유지하세요.
- GCaMP6f 바이러스를 5 nL/s로 주사기에 주입한 후 입체 주사기 암에 삽입합니다.
- 피펫을 천천히 내리고, 0.6 nL/s로 150 nL을 주입한 후 8분간 유지한 후 0.1 mm/s로 빼세요. 이 과정을 모든 부위에 반복하세요.
- 절개 부위를 조직 접착제로 봉합하고 바이러스 발현을 위해 2주를 기다려 주세요.
- 2차 수술: 신경세포에 대한 AAV9-hSyn-jRGECO1a (역가: 1 ×10 13 vg/mL) 주사.
참고: 수술은 첫 번째 바이러스 주사 후 14일 후에 시행되었습니다.- 위에서 설명한 대로 마취를 유도하고 유지하세요(2.1.1단계).
- 체온을 유지하고 눈을 보호하세요.
- 두피를 중앙선을 따라 다시 열고 두개골을 평평하게 맞추세요.
참고: 두개골은 브레그마와 람다를 같은 수평면에 정렬하여 수평화했습니다. - 첫 수술 시절개술 창문과 같은 위치에 투명한 조직 이물질이 발견되어 경막이 온전하게 노출되었습니다.
- 브레그마를 기준점으로 좌표를 조정하고, 앞서 설명한 동일한 좌표와 깊이에서 주입을 수행합니다.
- jRGECO1a 바이러스를 5 nL/s로 채우고 주사기를 설치하세요.
- 0.6 nL/s 속도로 150 nL을 주입하고 8분간 유지한 후 천천히 빼세요. 이 절차를 모든 부위에 반복하고 바이러스 발현까지 3주를 두세요.
3. 다중 부위 광도 측정 프로브 삽입
참고: jRGECO1a 주사 직후에 반드시 시행하세요.
- 광섬유 페룰을 입체형 홀더에 장착하세요.
- 섬유(1.25mm 페룰, 200μm 코어, NA 0.39)를 바이러스 주입 깊이보다 100–150 μm 위에 위치시키세요:
중전엽수치: AP +1.8 mm, ML +0.3 mm, DV −2.9 mm
CA1: AP −2.1 mm, ML +1.6 mm, DV −1.1 mm
MEC: AP −4.5 mm, ML −2.9 mm, DV −1.9 mm - 두개골 절개술 부위를 조직 접착제로 밀봉하고 페룰은 치아 시멘트로 고정하세요.
4. 다중 채널 광섬유 광도 측정 기록
참고: 두 가지 칼슘 지표의 안정적이고 완전한 발현을 보장하기 위해, 두 번째 바이러스 주입 후 3주 후에 다중 채널 광섬유 광도측정이 기록을 위해 수행되었습니다.
- 쥐를 섬유 시스템과 경기장에 익숙하게 하여 3일 동안 훈련시키세요.
- 바이러스 발현 3주 후, 3% 이소플루란으로 잠시 마취합니다.
- 번들된 광섬유의 한쪽 끝을 광섬유 광도 측정 시스템에 연결합니다.
- 여기 빛을 두 파장, 470 nm와 560 nm로 설정하세요.
- 획득 주파수를 30Hz로 설정하세요.
- 묶인 광섬유의 반대편 끝에 있는 세 가지 분기를 세 개의 뇌 영역에 연결하세요: 채널 1은 mPFC, 채널 2는 CA1, 채널 3은 MEC로.
- 쥐들을 한 변 길이 50cm의 열린 공간에 놓고 자유롭게 탐색할 수 있게 하세요.
- 10분 후에는 광케이블을 분리하고 쥐들을 다시 집 우리로 데려가세요.
- 새로운 물체 인식 과제 중 섬유 광도 측정 기록
참고: 각 시험 전에 플랫폼과 물체를 75% 에탄올로 깨끗이 청소하세요.- 동일한 물체 두 개를 대각선으로 반대편 사분면에 배치하세요.
- 광섬유 다발을 가벼운 마취 상태로 연결하세요.
- 쥐들이 10분간 물건을 탐색하게 한 후, 섬유를 제거하지 않고 다시 집 우리로 돌려보내세요.
- 쥐를 대상으로 한 새로운 물체 인식 테스트 중 섬유 광도 측정 기록을 수행하세요.
참고: 안정적인 기록 데이터를 위해 움직임 아티팩트가 과도한 경우에는 시험을 제외하세요.- 자극 레이저 조절:
GCaMP6f(성상교세포)에 대해 470nm
jRGECO1a(뉴런)는 560nm입니다. - 30Hz에서 칼슘 신호를 기록하고, 30Hz의 비디오 추적과 동기화합니다. 획득을 시작할 때 비디오 프레임 내(마우스의 시야 밖)에 레이저 다이오드를 위치시켜 시간적 마커로 활용합니다.
- 학습 단계 10분 후에는 한 개의 물체를 새로운 물체로 교체하고 마우스를 다시 놓고 10분간 탐색하며 녹화합니다.
- 세라믹 페룰로 섬유를 분리하고 쥐를 집 우리로 데려가세요.
- 자극 레이저 조절:
5. 데이터 처리 및 분석
참고: 광섬유 광도 측정 기록에서 Ca2⁺ 과도현은 진폭이 잡음 대역 21,22,23의 표준편차의 세 배를 초과할 때만 진짜 신호로 분류할 수 있습니다. 새로운 물체 인식 테스트(NORT) 프로토콜24:D efine 물체 상호작용은 쥐가 물체와 신체적으로 접촉하는 사건으로, 코로 찌르거나 냄새를 맡는 경우입니다. 신호 정량화를 위해, 기준선을 -2에서 -1 초 사이의 평균 신호(t=0 상호작용 시작 시점과 비교)로 정의합니다. 각 객체 상호작용 시작 전 2초부터 4초까지 주변 이벤트 분석 창을 설정하며, 설정된 프로토콜에 따라 설정하세요.
- 형광 추적 결과를 분석 소프트웨어로 가져오세요.
참고: 형광 신호 처리는 표준 광섬유 광도 측정 워크플로우를 따라 독점 분석 소프트웨어를 사용하여 수행되었습니다. 소프트웨어 자체는 오픈 소스가 아니며 공유할 수 없습니다. 광섬유 광도 측정 신호 처리에 관한 일반적인 방법론적 고려사항은 최근 방법론 보고서25를 참조하십시오. - 동기화된 비디오를 사용하여 기준선 보정을 수행하고 NOR 작업 시작 시점에 칼슘 신호를 정렬합니다.
- 지역 간 및 이중 색상 비교를 위해 ΔF/F를 Z-점수로 변환하세요9:
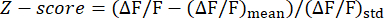
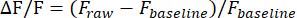
참고:
(ΔF/F)평균: ΔF/F의 평균.
(ΔF/F)STD: ΔF/F의 표준편차.
Fraw: 원시 형광 강도.
F기준선: 기초 형광 강도(미리 정의된 기저선 기간의 평균). - 새로운 물체 탐색과 친숙한 물체 탐색 시 성상교세포 및 신경세포 칼슘 반응에 대한 곡선 아래 면적(AUC)과 같은 지표를 정량화합니다.
6. 기록 후 조직학적 검증
- 반사 사절이 완전히 확인될 때까지 펜토바르비탈 과다복용으로 쥐를 마취하세요.
- 정상 식염수로 심경관류를 시행한 후 4% 파라포름알데히드(PFA)를 투여합니다.
- 뇌를 조심스럽게 해부한 후 4% PFA에 4°C에서 12–24시간 동안 고정하세요.
- 조직이 가라앉을 때까지 뇌를 30% 자당에 4°C의 PBS로 옮기고, 냉동 보호를 위해 조직이 가라앉게 합니다.
- 뇌를 최적의 절단 온도 화합물에 박고 냉동한 뒤, 크라이오스탯을 이용해 40 μm 두께의 코로나 단면을 절단합니다.
- 바이러스 발현과 섬유 위치를 확인하기 위해 면역형광 염색을 수행합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
위에서 설명한 프로토콜을 바탕으로, 4개월 된 C57 마우스의 mPFC, CA1, MEC를 대상으로 이중 색상 다중 사이트 광섬유 기록이 수행되었습니다. 본 연구에서는 두 가지 지표를 순차적으로 도입하기 위해 2단계 바이러스 주입 전략을 도입했습니다. 실험 조건 하에서 이 전략은 신뢰성 있고 안정적으로 구현할 수 있으며, 결과적인 발현 패턴은 예상되는 세포 유형 특이적 프로모터 프로필과 일치합니다.
0일째에는 AAV5-GfaABC1D-GCaMP6f를 세 영역에 주입했고, 14일째에는 AAV9-hSyn-NES-jRGECO1a를 같은 좌표에 주입한 후 즉시 섬유 이식을 시행했습니다(그림 1). 3주간의 바이러스 발현 후, 자유롭게 움직이는 쥐에서 개방 탐사와 새로운 물체 인식 과제 모두에서 성상세포와 신경 칼슘 신호가 동시에 기록되었습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
본 연구에서는 학습 및 기억 관련 행동 중 쥐의 여러 기억 관련 뇌 영역에서 성상산세포와 신경세포 칼슘 활동을 동시에 기록하는 방법이 개발되었습니다. 단일 영역 영상28이나 전기생리학적 기법과 달리, 다중 영역 동기 기록은 분산 기억 네트워크 전반에 걸쳐 조정된 역학을 포착하여 학습및 기억 연구에 강력한 도구가 되었습니다. 세포 유형별 이중 색상 GECI와 다중 채널 광도 측정 시스템 및 행동 연동 획득을 사용하여 뇌 영역과 세포 유형 전반에 걸친 집단 활동을 장기간 안정적으로 기록할 수 있게 합니다. 이 플랫폼은 학습 및 기억 행동에 관여하는 성상교세포-신경 회로 내 다양한 공간 기능 연결성을 매핑할 수 있게 합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자들은 금전적 또는 기타 이해 상충을 선언하지 않습니다.
감사의 글
지아 루 씨는 기술 지원을 제공했으며, Sai Te Xin Si(AI 도구)는 언어 편집 지원을 제공했습니다. 이 연구는 중국 국립자연과학기금(보조금번호 82371485, 82588301, 32400932)과 충칭 자연과학재단(보조금 번호)의 지원을 받았습니다. CSTB2024NSCQ-JQX0024, 2024 NSCQ-MSX1104.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
```html
```
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 75 RN 5uL SYR W/O NEEDLE | Hamilton | 7634-01 | 바이러스 주사를 위한 마이크로파이펫에 연결 |
| AAV5-GfaABC1D-GCaMP6f | Addgene | 52925 | 성상세포 특이적 GCaMP6f 발현 |
| AAV9-hSyn-NES-jRGECO1a | Addgene | 100854 | 뉴런 특이적 적색 시프트 칼슘 지시자 |
| Bepanthen Eye and Nasal Ointment | Bepanthen | MA0008 | 각막 건조 방지 |
| Bundled optical fibers with ceramic sleeves | Inper | BFO-1x3-W1.25 | 이식된 광섬유를 광전계에 연결 |
| Camera | Mind Vision | MV-SUA502C-T | 칼슘 신호와 동기화된 행동 비디오 |
| Dental cement | NISSIN | Super-Bond C&B | 페룰을 두개골에 고정 |
| Ferrule holder | Inper | SCH-1.25 | 광섬유 이식 중 세라믹 페룰 고정 |
| Isoflurane vaporizer & Anesthesia system | RWD Life Science | R510-29 | 마취 유도 및 유지 |
| Multi-channel fiber photometry system | RWD Life Science | R821 | 이중 색 녹화 용 |
| OFRS software | RWD Life Science | 녹화된 칼슘 신호 분석 | |
| Optical fibers | RWD Life Science | R-FOC-BL200C-39N | 목표 뇌 영역에 임플란트 |
| Stereotaxic instrument | RWD Life Science | 68801 | 정확한 바이러스 주사 및 광섬유 이식에 사용 |
| Syringe pump | KD Scientific | 788130 | 바이러스를 제어된 속도로 전달 |
| Tissue glue | 3M Animal Care Products | 1469SB Vetbond | 절개 부위 밀봉 |
참고문헌
- Eichenbaum, H. Memory: Organization and Control. Annu Rev Psychol. 68, 19-45 (2017).
- Kamatham, P. T., Shukla, R., Khatri, D. K., Vora, L. K. Pathogenesis, diagnostics, and therapeutics for Alzheimer’s disease: Breaking the memory barrier. Ageing Res Rev. 101, 102481(2024).
- Graff-Radford, J., et al. New insights into atypical Alzheimer’s disease in the era of biomarkers. Lancet Neurol. 20 (3), 222-234 (2021).
- Araque, A., et al. Gliotransmitters travel in time and space. Neuron. 81 (4), 728-739 (2014).
- Khakh, B. S., Sofroniew, M. V. Diversity of astrocyte functions and phenotypes in neural circuits. Nat Neurosci. 18 (7), 942-952 (2015).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat Neurosci. 14 (10), 1276-1284 (2011).
- Savtchouk, I., Volterra, A. Gliotransmission: Beyond Black-and-White. J Neurosci. 38 (1), 14-25 (2018).
- Perea, G., Navarrete, M., Araque, A. Tripartite synapses: Astrocytes process and control synaptic information. Trends Neurosci. 32 (8), 421-431 (2009).
- Wang, H., et al. Mapping multi-regional functional connectivity of astrocyte-neuronal networks during behaviors. Neurophotonics. 11 (4), 045010(2024).
- Lines, J., Martin, E. D., Kofuji, P., Aguilar, J., Araque, A. Astrocytes modulate sensory-evoked neuronal network activity. Nat Commun. 11 (1), 3689(2020).
- Lines, J., et al. Astrocyte-neuronal network interplay is disrupted in Alzheimer’s disease mice. Glia. 70 (2), 368-378 (2022).
- Brincat, S. L., Miller, E. K. Frequency-specific hippocampal-prefrontal interactions during associative learning. Nat Neurosci. 18 (4), 576-581 (2015).
- DeNardo, L. A., et al. Temporal evolution of cortical ensembles promoting remote memory retrieval. Nat Neurosci. 22 (3), 460-469 (2019).
- Kitamura, T., et al. Engrams and circuits crucial for systems consolidation of a memory. Science. 356 (6333), 73-78 (2017).
- Gonzalo Cogno, S., et al. Minute-scale oscillatory sequences in medial entorhinal cortex. Nature. 625 (7994), 338-344 (2024).
- Roudi, Y., Moser, E. I. Grid cells in an inhibitory network. Nat Neurosci. 17 (5), 639-641 (2014).
- Williamson, M. R., et al. Learning-associated astrocyte ensembles regulate memory recall. Nature. 637 (8045), 478-486 (2025).
- Curreli, S., Bonato, J., Romanzi, S., Panzeri, S., Fellin, T. Complementary encoding of spatial information in hippocampal astrocytes. PLoS Biol. 20 (3), e3001530(2022).
- Oheim, M., Michael, D. J., Geisbauer, M., Madsen, D., Chow, R. H. Principles of two-photon excitation fluorescence microscopy and other nonlinear imaging approaches. Adv Drug Deliv Rev. 58 (7), 788-808 (2006).
- Helmchen, F., Denk, W. Deep tissue two-photon microscopy. Nat Methods. 2 (12), 932-940 (2005).
- Zhang, K., Chen, X. Sensory response in host and engrafted astrocytes of adult brain in vivo. Glia. 65 (12), 1867-1884 (2017).
- Qin, H., et al. A visual-cue-dependent memory circuit for place navigation. Neuron. 99 (1), 47-55.e44 (2018).
- Yao, J., et al. A corticopontine circuit for initiation of urination. Nat Neurosci. 21 (11), 1541-1550 (2018).
- Mirzayi, P., Shobeiri, P., Kalantari, A., Perry, G., Rezaei, N. Optogenetics: Implications for Alzheimer’s disease research and therapy. Mol Brain. 15 (1), 20(2022).
- Simpson, E. H., et al. Lights, fiber, action! A primer on in vivo fiber photometry. Neuron. 112 (5), 718-739 (2024).
- Chen, T. W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 5, 12727(2016).
- Serikov, A., Martsishevska, I., Shin, W., Kim, J. Protocol for in vivo dual-color fiber photometry in the mouse thalamus. STAR Protoc. 5 (2), 102931(2024).
- Gilbert, C. D. Horizontal integration and cortical dynamics. Neuron. 9 (1), 1-13 (1992).
- de Pasquale, F., Corbetta, M., Betti, V., Della Penna, S. Cortical cores in network dynamics. Neuroimage. 180 (Pt B), 370-382 (2018).
- Suthard, R. L., et al. Engram reactivation mimics cellular signatures of fear. Cell Rep. 44 (10), 116409(2025).
- Sandoval, K. C., Rychlik, J., Choe, K. Y. Calcium dynamics in hypothalamic paraventricular oxytocin neurons and astrocytes associated with social and stress stimuli. eNeuro. 12 (5), (2025).
- Srinivasan, R., et al. Ca(2+) signaling in astrocytes from Ip3r2(-/-) mice in brain slices and during startle responses in vivo. Nat Neurosci. 18 (5), 708-717 (2015).
- Spellman, T., et al. Hippocampal-prefrontal input supports spatial encoding in working memory. Nature. 522 (7556), 309-314 (2015).
- Hu, W., et al. Optogenetics sheds new light on tissue engineering and regenerative medicine. Biomaterials. 227, 119546(2020).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541 (7638), 481-487 (2017).
- Shah, D., et al. Astrocyte calcium dysfunction causes early network hyperactivity in Alzheimer’s disease. Cell Rep. 40 (8), 111280(2022).
- Jiménez-Balado, J., Eich, T. S. GABAergic dysfunction, neural network hyperactivity and memory impairments in human aging and Alzheimer’s disease. Semin Cell Dev Biol. 116, 146-159 (2021).
- Lin, R., Guo, Y., Jiang, W., Wang, Y. Advanced technologies for the study of neuronal cross-organ regulation: a narrative review. Adv Technol Neurosci. 1 (2), 166-176 (2024).
- Reitman, M. E., et al. Norepinephrine links astrocytic activity to regulation of cortical state. Nat Neurosci. 26 (4), 579-593 (2023).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
