본 프로토콜은 범암 생물정보학 분석과 대장암에서 면역조직화학적 검증을 결합하여, 공개 다중체학 데이터베이스와 임상 조직 샘플을 사용하여 막 관통 Emp24 단백질 수송 도메인 3의 발현, 예후 유의성, 면역 연관성 및 관련 생물학적 경로를 평가합니다.
연구 논문
범암 생물정보학 분석과 대장암 실험적 검증의 결합: 진단 및 예후 바이오마커로서의 TMED3 연구
* These authors contributed equally
이 논문에서
요약
초록
p24 단백질 계열에 속하는 막관통 Emp24 단백질 수송 도메인 3(TMED3)은 종양 증식, 침윤 및 이동에 관여하는 것으로 밝혀졌습니다. 본 연구는 대장암에서 범암 생물정보학 분석과 면역조직화학(IHC) 검증을 결합하여 여러 암 유형에서 TMED3의 발현 패턴, 예후 유의성, 면역 연관성 및 잠재적 생물학적 기능을 평가하는 것을 목표로 했습니다. 암 게놈 아틀라스, 유전자형-조직 발현, UALCAN, 휴먼 프로틴 아틀라스, cBioPortal 데이터베이스의 다중체학 데이터셋을 분석하여 범암에서 TMED3 발현과 유전적 변이를 조사하였습니다. 면역조직화학을 통해 대장암 조직에서 TMED3 단백질 발현을 평가하였습니다. Kaplan–Meier 생존 분석과 Cox 회귀분석을 통해 TMED3의 예후 가치를 평가하였습니다. 스피어먼 상관관계 분석은 TMED3가 종양 돌연변이 부담, 마이크로새틀라이트 불안정성(MSI), 면역 세포 침윤, 면역 체크포인트와 연관성을 평가하기 위해 수행되었습니다. 대장암에서 TMED3와 관련된 잠재적 생물학적 경로를 조사하기 위해 유전자 집합 풍부화 분석이 수행되었습니다. TMED3 발현은 대부분의 종양 유형에서 높았으며, 부신피질암, 대장선암, 포도막 흑색종에서 불리한 전체 생존율과 질병 특이적 생존율과 관련이 있었습니다. TMED3 유전적 변이의 가장 빈도는 중피종에서 확인되었으며, 증폭이 주요 변이 유형이었다. 또한, TMED3 발현은 신장 명세포암, 위 선암종, 자궁 자궁내막암에서 종양 돌연변이 부담 및 마이크로새틀라이트 불안정성과 유의한 상관관계를 보였습니다. TMED3 발현은 여러 종양에서 면역 침윤 및 면역 체크포인트 발현과도 연관되어 있었습니다. IHC 분석 결과, 정상 대장 조직에 비해 대장암 조직에서 TMED3 발현이 증가했으며, T 단계와의 연관성이 나타났습니다. 기능 풍부 분석 결과, 리보솜, 항원 처리 및 제시, 산화 인산화, 펜토스 인산염과 관련된 경로가 확인되었습니다. 이러한 발견은 TMED3가 대장암 및 기타 종양 유형의 진단 및 예후 평가에 유망한 바이오마커가 될 수 있음을 시사합니다.
서론
막 관통 Emp24 도메인(TMED) 단백질 계열은 진핵세포에서 일반적으로 단량체, 이합체 또는 올리고머 복합체로 존재하는 네 개의 하위 계열(α, β, γ, δ으로 구성되어 있습니다. TMED 계열의 구성원들은 세포 내 소포 수송에 관여하며, 암, 면역 관련 질환, 당뇨병, 신경퇴행성 질환, 비알코올성 지방간 질환, 확장성 심근병증, 뮤신 1 신장 질환(MKD), 쇼그렌 증후군(SS) 등 다양한 인간 질환에 연루된 것으로 알려져 있습니다. 막관통 emp24 도메인 포함 단백질 3(TMED3)은 p24 단백질 계열에 속하며, 인간 2,3번 염색체 15q25.1에 암호화된 고도로 보존된 단일 통과 I 유형 막 관통 단백질입니다. 누적된 증거에 따르면 TMED3는 여러 악성 종양에서 비정상적으로 발현되며, 종양의 시작, 증식, 침습, 전이 및 진행에 관여하고 있습니다. TMED3 발현 증가는 골육종4, 폐편평세포암5, 유방암6, 자궁내막암7, 대장암8에서 보고되었습니다. 실험 연구에 따르면 TMED3 발현 억제는 종양 세포 증식, 전이 능력, 항세포자멸 활성을 억제하여 종양 진행을 억제합니다. 교모세포종에서는 TMED3 과발현이 종양 등급 상승과 예후 저하와 연관되어 있으며, TMED3는 ZBTB7A9의 조절을 통해 교모세포종 진행을 촉진하는 것으로 보고되었습니다. 이전 연구들은 특정 종양 유형에서 TMED3의 생물학적 역할을 탐구했으나, 그 발현 패턴, 예후적 중요성, 범암 전반에 걸친 분자 기능은 아직 체계적으로 규명되지 않았습니다.
다중체학 데이터베이스와 생물정보학 분석의 최근 발전으로 다양한 종양 유형에 걸친 유전자 발현, 예후, 면역 특성 및 분자 변형을 체계적으로 평가할 수 있게 되었습니다. 단일 코호트 연구와 비교할 때, 공개된 데이터베이스를 이용한 통합 범암 분석은 암 전반에 걸쳐 잠재적 바이오마커와 치료 표적을 식별하는 보다 폭넓은 접근법을 제공합니다. 본 연구에서는 암 게놈 아틀라스(TCGA), 유전자형-조직 발현(GTEx), UALCAN, 인간 단백질 아틀라스, cBioPortal 등 공개 다중체학 데이터베이스를 사용하여 TMED3가 여러 암 유형에서 수행하는 포괄적 생물정보학적 분석이 수행되었습니다. 연구는 범암에서 TMED3 발현 패턴, 임상병리학적 특성, 예후 유의성, 면역 관련 연관성 및 잠재적 생물학적 기능을 체계적으로 평가하였습니다. 또한, 대장암 조직에서 면역조직화학적 분석(IHC) 분석을 수행하여 TMED3 단백질 발현과 임상병리학적 특징과의 연관성을 검증하였습니다. 우리의 범암 분석은 후보 바이오마커를 식별하기 위한 선별 전략으로 활용됩니다. 그 후 우리는 대장암(CRC)에 대해 특이적으로 실험적 검증을 수행했습니다. 이 결과는 TMED3가 CRC에서 유망한 예후 바이오마커임을 보여주지만, 다른 암 유형과의 관련성은 추가 조사가 필요합니다.
프로토콜
인간 조직을 이용한 모든 절차는 기관의 생물안전 및 윤리 지침에 따라 인증된 생물학적 안전 캐비닛 내에서 수행되었습니다. 연구 프로토콜은 탕산 중앙병원 연구 윤리 위원회(번호: TZYL/K/2023-16), 그리고 샘플 채취 전에 모든 참가자로부터 서면 동의를 받았습니다.
자료 수집
TCGA 및 GTEx 데이터베이스10,11(TCGA: https://portal.gdc.cancer.gov/; GTEx: https://gtexportal.org/; 2025년 7월 1일 접속). 윌콕슨 랭크-합 검정을 통해 종양과 비정상 조직 간의 TMED3 발현 차이를 분석하였습니다. UCSC Xena에서 다운로드한 전사체/백만분(TPM) 정규화된 RNA 시퀀싱 발현 매트릭스가 후속 분석에 사용되었습니다. 통계 분석 전에 log2(TPM + 1) 변환을 사용하여 표현 값이 조화되었습니다. 이후 TCGA 데이터베이스에서 33종의 종양 유형과 일치하는 정상 조직에 대한 TMED3 발현 데이터를 다운로드하였습니다. Wilcoxon 서명 랭크 검정을 사용하여 종양과 정상 조직 간의 TMED3 발현 차이를 평가하였습니다. 종양과 정상 조직 간의 TMED3 단백질 차별 발현은 UALCAN 데이터베이스12(http://ualcan.path.uab.edu; 2025년 7월 1일 접속)에서 얻어졌습니다. 단백질체학 분석 모듈에 접근하여 "범암 뷰" 옵션을 선택하여 분석하였습니다. 단백질 발현 분석은 UALCAN "Pan-cancer View" 모듈을 통해 제공되는 CPTAC 데이터셋을 기본 플랫폼 설정과 추가 샘플 필터링 없이 사용하여 수행되었습니다.
임상병리학적 특징 분석
TCGA 데이터베이스에 있는 33종의 종양 유형에서 임상 병리학적 정보를 수집하여 TMED3 발현과 병리 단계 간의 관계를 조사하였습니다. 종양 병기는 초기 단계(1–2기)와 진행기(3–4기) 그룹으로 분류되었습니다. 여러 암 유형에서 Wilcoxon 랭크 합 검정을 사용하여 병기 그룹 간 TMED3 발현 차이를 평가하였다.
예후 분석
33종의 종양 유형에서 생존 시간 및 생존 상태 데이터를 수집하여 예후 분석을 수행하였습니다. 정상 사례와 임상 정보가 없는 사례는 제외하였습니다. 누락 값은 각 변수의 누락 정도에 따라 처리되었습니다. TMED3 발현은 중앙값에 따라 고발현군과 저발현군으로 나뉘었습니다. R 통계 분석 소프트웨어(버전 4.2.1)의 생존 패키지(버전 3.2-7)를 사용하여 Cox 비례 위험 회귀분석을 수행하였습니다. 결과는 survminer와 ggplot2 패키지를 사용해 시각화되었습니다. 전체 생존기간(OS)은 진단부터 사망까지의 구간으로 정의되었으며, 질병 특이적 생존율(DSS)은 특정 암에 기인한 진단부터 사망까지의 구간으로 정의되었으며, 악성종양과 관련 없는 사망은 검열된 사건으로 취급되었습니다. 이후 대장선암(COAD)에서 TMED3 발현과 OS, DSS 간의 관계를 평가하기 위해 Kaplan–Meier 생존 분석이 수행되었습니다.
돌연변이 분석
cBioPortal 데이터베이스(www.cbioportal.org; 2025년 7월 5일 접속)는 33가지 암 유형에서 TMED3 유전적 변형의 빈도를 분석하는 데 사용되었습니다13. cBioPortal 웹사이트에 접속하여 "TMED3"를 빠른 검색창에 입력하여 여러 암 유형에 걸친 TMED3의 돌연변이 프로필을 분석했습니다. TMED3의 유전적 변형은 주로 돌연변이, 증폭, 심층 결실, 다중 변이로 이루어졌다. cBioPortal에서 제공하는 기본 범암 연구와 쿼리 설정을 사용하여 추가 필터링 없이 돌연변이 분석을 수행하였습니다.
DNA 메틸화의 상관 분석
DNA 메틸화 분석은 UALCAN 데이터베이스를 사용하여 종양 및 정상 조직에서 TMED3의 프로모터 메틸화 상태를 평가하기 위해 수행되었습니다(https://ualcan.path.uab.edu/; 2025년 7월 5일 접속). TMED3 프로모터 영역의 DNA 메틸화 상태는 TCGA의 Illumina Infinium HumanMethylation450K 플랫폼에서 생성된 Level 3 메틸화 데이터를 사용하여 분석하였습니다. 메틸화 수준은 β 값으로 표현되었으며, β = 메틸화된 프로브 강도 / (메틸화된 프로브 강도 + 비메틸화된 프로브 강도)로 계산되었으며, 값은 0(비메틸화)부터 1(완전 메틸화)까지 다양했습니다. 전사 시작 부위(TSS) 상류 1500 bp 이내에 위치한 CpG 프로브, 여기에는 UALCAN이 정의한 TSS200 및 TSS1500 영역이 분석되어 프로모터 메틸화 상태를 평가하였습니다. UALCAN은 추가 필터링 없이 표적 유전자의 프로모터 영역 내에서 모든 사용 가능한 CpG 프로브를 자동으로 추출했습니다. 범암과 정상 조직에서 메틸화 β 값을 얻었고, 그룹 간 차이를 비교하기 위해 쌍이 없는 2표본 t 검정을 수행하였다. 유의치 임계치는 α = 0.05였으며, P < 0.05는 통계적으로 유의한 것으로 간주되었습니다.
TMED3, 종양 돌연변이 부담, 마이크로위성 불안정성 간의 상호관계 분석
종양 돌연변이 부담(TMB)과 마이크로새틀라이트 불안정성(MSI)을 분석하여 여러 암 유형에서 TMED3 발현과의 연관성을 조사하였습니다. UCSC Xena 데이터베이스에서 균일하게 처리된 범암 데이터셋을 다운로드하였으며(https://xenabrowser.net/; 2025년 7월 5일 접속), TMED3 발현 프로필을 추출하여 후속 분석을 수행하였습니다. MuTect2를 사용해 생성된 TCGA 샘플의 4단계 단순 뉴클레오타이드 변이 데이터는 Genomic Data Commons(GDC) 데이터베이스에서 수집되었습니다 (https://portal.gdc.cancer.gov/)14. TMED3 발현 데이터는 TMB 데이터셋과 통합되었고, 통계 분석 전에 log2(x + 1) 변환을 통해 표현 값을 정규화하였습니다. 개별 종양 유형별 MSI 점수는 이전에 발표된15개 연구에서 수집된 후 동일한 정규화 절차를 거쳐 TMED3 발현 데이터와 통합하였습니다. 범암 데이터셋에서 TMED3 발현과 TMB/MSI 간의 연관성을 Spearman 상관분석으로 평가하였다16,17.
TMED3의 면역 특성 분석
ESTIMATE 알고리즘을 적용하여 여러 종양 유형에 대해 기질 점수, 면역 점수, ESTIMATE 점수를 계산하였습니다. 범암 데이터셋에서 기질 및 면역 침윤 점수는 통계 분석 소프트웨어의 추정 패키지(버전 1.0.13)를 사용하여 생성되었습니다. 고-저-TMED3 발현군 간 기질 점수, 면역 점수, ESTIMATE 점수의 차이를 Wilcoxon 랭크 합 검정을 사용해 평가하였다. 또한, 다양한 암 유형에서 TMED3 발현과 프로그램된 세포사사 단백질 1(PD-1), 프로그램된 죽음 리간드 1(PD-L1), 세포독성 T-림프구 관련 단백질 4(CTLA4) 간의 관계를 조사하기 위해 면역 체크포인트 관련 분석이 수행되었습니다. COAD의 STAR 카운트 발현 데이터와 해당 임상 정보는 TCGA 데이터베이스에서 다운로드하였습니다. TPM 형식의 표현식 행렬을 추출하고 log2(TPM + 1) 변환을 통해 정규화했습니다. 이후 COAD 샘플에서 8개의 면역 체크포인트 관련 유전자의 발현 프로필을 얻었고, TMED3 발현과 면역 체크포인트 마커 간의 상관관계는 스피어먼 상관관계분석을 통해 분석하였다.
약물 민감성 분석
GSCALite 플랫폼을 사용하여 다양한 암 유형에서 TMED3 발현과 항암제 반응성 간의 관계를 조사하기 위해 약물 감도 분석이 수행되었습니다18. COAD 샘플의 3단계 RNA 시퀀싱 데이터와 해당 임상 정보는 TCGA 데이터셋에서 얻었습니다. 각 샘플에 대한 화학요법 반응 예측은 암 약물 민감성 유전체학(GDSC) 데이터베이스(https://www.cancerrxgene.org/)의 데이터를 사용하여 생성되었습니다. 약물 반응 예측은 통계 분석 소프트웨어의 pRRophetic 패키지를 사용하여 수행되었습니다. 추정된 절반 최대 억제 농도(IC50) 값은 기본 설정의 능선 회귀를 사용하여 계산되었으며, 전투 알고리즘을 통한 배치 효과 보정과 조직별 조정 분석을 포함하였다. 복제된 유전자 발현 측정값은 후속 분석 전에 평균을 내어 평균화했습니다.
대장암에서 TMED3의 발현 및 예후
대장 선암에 대한 TMED3 발현 프로필과 이에 대응하는 임상병리학적 데이터는 TCGA 데이터베이스에서 수집되었습니다. 대장암 조직과 일치하지 않는 정상 조직 간의 TMED3 발현 차이는 윌콕슨 랭크 합 검정을 사용해 평가했으며, TMED3 발현과 임상병리학적 특성 간의 연관성은 카이제곱 검정으로 분석하였다. 환자들은 TMED3 발현 중간값에 따라 고발현군과 저발현군으로 계층화되었습니다. 이후 카플란-마이어 생존 분석이 수행되어 두 그룹 간 예후 차이를 비교하였습니다. 대장암에서 TMED3 발현의 예후 유의성을 평가하기 위해 단변량 및 다변량 Cox 비례 위험도 회귀분석을 수행하였습니다. 또한, 시간 의존 수신자 운행특성(ROC) 곡선 분석이 수행되어 1년, 3년, 5년 OS에서 TMED3 발현의 예측 성능을 평가하였다. ROC 분석은 통계 분석 소프트웨어의 timeROC 패키지를 사용해 수행되었고, 그래픽 시각화는 ggplot2 패키지를 사용해 생성되었다.
면역조직화학 분석
탕산 중앙병원에서 총 60개의 대장암 조직 샘플과 20개의 비암 조직이 무작위로 선정되었습니다. 이 연구는 지역 기관 심사 위원회(번호: TZYL/K/2023-16), 그리고 수술 전 모든 환자로부터 서면 동의를 받았습니다. 모든 조직 샘플은 이전에 화학요법이나 면역요법 없이 외과적 절제를 받은 환자들로부터 채취되었습니다. 코호트에는 20세에서 87세 사이의 남성 39명과 여성 21명이 포함되었습니다. 듀크 대학교의 병기 분류 기준에 따르면, 33명은 I+II기, 27명은 III+IV기로 분류되었습니다. 코호트의 병기 분포는 진행된 질병 단계에 대한 잠재적 선택 편향을 초래할 수 있습니다; 따라서 생존 관련 발견은 신중하게 해석되어야 합니다.
파라핀 함침 조직 표본을 4 μm 조각으로 분할한 후 탈파라핀화 및 재수화가 이루어졌습니다. 내인성 과산화효소 활성은 4% H2O2로 소결되었고, 비특이적 결합은 이후 염소 혈청으로 차단되었습니다. 그 후 절편을 4°C에서 1:100 희석된 TMED3 1차 항체와 함께 하룻밤 배큐했습니다. 다음 날에는 양 방제토끼용 IgG 폴리머(PV-6000)를 상온에서 30분간 적용했습니다. 면역반응성은 디아미노벤지딘 염색을 통해 시각화되었고, 절편은 중성 수지로 부착하였다. 조직학적 염색은 고배율 광학 현미경으로 검사되었습니다. 면역염색 강도는 0(음성), 1(약), 2(중등도), 3(강)로 평가되었으며, 양성 종양 세포 비율은 1(1%–25%), 2(26%–50%), 3(51%–75%), 4(76%–100%)로 평가되었습니다. 최종 면역조직화학적 점수는 염색 강도에 양성 종양 세포의 백분율 점수를 곱하여 계산하였습니다. TMED3 발현 수준은 음성/저발현(점수 ≤ 6) 또는 과발현(점수 > 6)으로 분류되었습니다19.
대장암에서 TMED3의 유전자 풍부화 분석
대장암에서 TMED3 발현과 관련된 잠재적 생물학적 기능과 신호 전달 경로를 평가하기 위해 유전자 풍부화 분석이 수행되었습니다. TMED3 발현이 높은 그룹과 낮은 그룹 간의 차별 발현 유전자는 통계 분석 소프트웨어의 DESeq2 패키지를 사용하여 선별되었습니다. TCGA에서 얻은 원시 계수 데이터는 DESeq2에서 구현된 중앙값 비율 정규화 방법으로 정규화되었습니다. 샘플의 50% 이상에서 <10 수인 저발현 유전자는 분석 전에 제외하였다. 차등 발현 유전자는 |log2 (FC)| ≥ 1 1 값과 벤자미니–호흐버그(BH) 다중 검정 보정 후 P< 0.05로 조정되었습니다. 모든 분석 매개변수는 분석의 재현성을 보장하기 위해 고정되었습니다.
이후 교토 유전자 및 유전체 백과사전(KEGG) 유전자 세트(버전 7.5.1)를 기반으로 R의 clusterProfiler 패키지를 사용하여 유전자 집합 풍부화 분석(GSEA)이 수행되었습니다. 고발현군과 저발현군 간의 log2 접수 변화 값에 따라 사전 순위가 매겨진 유전자 목록이 생성되었습니다. 풍부 분석은 1000개의 표현형 순열을 사용하여 수행되었으며, 15–500개의 유전자를 포함하는 유전자 세트가 분석에 포함되었습니다. 정규화 농축 점수(NES) 절대값이 >1, 조정 P < 0.05, 거짓 발견률(FDR) < 0.25인 경로는 유의하게 풍부화된 것으로 간주되었습니다. 파킨슨병 경로의 풍부함은 미토콘드리아 기능 장애 및 산화적 인산화 관련 생물학적 과정과 밀접하게 연관되어 있어 종양 대사 재프로그래밍과 암 진행에도 관여하기 때문에 유지되었습니다.
통계 분석
모든 통계 분석은 통계 분석 소프트웨어를 사용하여 수행되었습니다. 그룹 간 발현 차이는 쌍 표본에 대해 양측 Wilcoxon 랭크 합 검정과 쌍 표본에 대해 Wilcoxon 부호 랭크 검정을 사용하여 평가하였습니다. TMED3 발현과 임상병리학적 변수 간의 연관성을 카이제곱 검정을 사용하여 평가하였다. 생존 분석은 생존 패키지(버전 3.3-1)를 사용하여 수행되었고, 생존 광산 패키지로 Kaplan–Meier 생존 곡선이 생성되었습니다. 그룹 간 생존 결과 차이는 로그-랭크 검정을 사용하여 비교하였다. Cox 비례 위험 회귀 모델을 적용하여 OS와 관련된 예후 인자를 식별하였다. 환자는 TMED3 발현 중위 수준에 따라 고발현 그룹과 저발현 그룹으로 분류되었다. 시간 의존 ROC 분석은 timeROC 패키지를 사용해 수행되었고, 수치는 ggplot2 패키지를 사용해 생성되었습니다. 별도 명시가 없는 한, 통계적 유의성은 양측 P 값 < 0.05로 정의되었습니다.
스피어먼 상관관계 분석은 TMED3 발현과 면역 특성, TMB, MSI 간의 상관관계를 평가하기 위해 수행되었다. 모든 상관관계 분석에는 해당 공개 데이터베이스에서 얻은 정량적 표현 데이터가 사용되었습니다. TCGA RNA 시퀀싱 데이터의 경우, TPM 형식의 발현 값은 해당 분석에 앞서 log2(TPM + 1) 정규화를 통해 변환되었습니다. 임상 또는 분자 데이터가 누락된 샘플은 통계 분석 전에 제외하였습니다. 스피어먼 상관관계 분석은 양측 비모수 검정으로 수행되었습니다. 원시 P 값은 윌콕슨 검정, 스피어먼 상관관계 분석, 생존 분석 등 제한된 비교를 포함하는 분석에 사용되었습니다. 차별 유전자 발현 분석, KEGG 농축 분석, GSEA 등 대규모 고처리량 생물정보학 분석에서는 BH FDR 방법을 사용하여 다중 검사 보정이 수행되었습니다. 조정된 FDR 값 <0.05는 통계적으로 유의한 것으로 간주되었습니다.
결과
범암에서 TMED3의 발현 분석
TCGA 및 GTEx 데이터셋 분석 결과, TMED3 메신 리보핵산(mRNA) 발현이 대부분의 정상 조직과 비교해 유의하게 높았음이 입증되었습니다. 여기에는 부신피질암(ACC), 방광 요로피세포암(BLCA), 유방침윤암(BRCA), 자궁경부 편평세포암 및 자궁경부 선암(CESC), 담관암(CHOL), 대장선암(COAD), 확산성 대형 B세포 림프종(DLBC) 등이 포함됩니다. 식도암(ESCA), 다형성 교모세포종(GBM), 신장 명세포암(KIRC), 신장 유두세포암(KIRP), 뇌 저등급 교세포종(LGG), 간세포암(LIHC), 폐선암(LUAD), 폐편평세포암(LUSC), 난소 혈액성 방광세포암(OV), 췌장 선암종(PAAD), 염색세포종 및 부신경절종(PCPG), 전립선 선암종(PRAD), 직장 선암종(READ), 피부 피부 흑색종(SKCM), 위 선암(STAD), 고환 생식세포 종양(TGCT), 갑상선암(THCA), 흉선종(THYM), 자궁 자궁내막암(UCEC), 자궁암(UCS)이 관찰되었으며, 두경부 편평세포암(HNSC)과 급성 골수성 백혈병(LAML)에서는 발현 감소가 관찰되었습니다(그림 1A). 인접한 정상 조직이 쌍 발현 분석의 대조군으로 사용되었습니다. 쌍 TCGA 분석 결과, BLCA, BRCA, CHOL, COAD, 신장 염색 공포증(KICH), KIRP, KIRC, LIHC, LUAD, LUSC, PRAD, STAD, UCEC 조직에서 정상 조직과 비교해 TMED3 발현이 유의하게 증가함을 확인하였습니다(그림 1B). 또한, UALCAN/임상 단백질체 종양 분석 컨소시엄(CPTAC) 데이터베이스를 이용한 단백질 발현 분석에서는 BRCA, COAD, GBM, KIRC, LIHC, LUAD, LUSC, OV, UCEC 종양 조직에서 TMED3 단백질 수치가 증가한 반면, PAAD에서는 정상 조직에 비해 단백질 발현이 감소하는 것이 관찰되었습니다(그림 1C). 그러나 TMED3 단백질 발현은 정상 조직보다 PAAD에서 낮았습니다. mRNA와 단백질 발현 패턴 간의 이러한 차이는 전사 후 또는 번역 후 조절 메커니즘을 반영할 수 있습니다. 이러한 발견은 TMED3가 여러 암에서 비정상적으로 상향 조절되며, 여러 암에서 진단 및 예후 특성과 연관되어 있을 수 있음을 시사합니다.
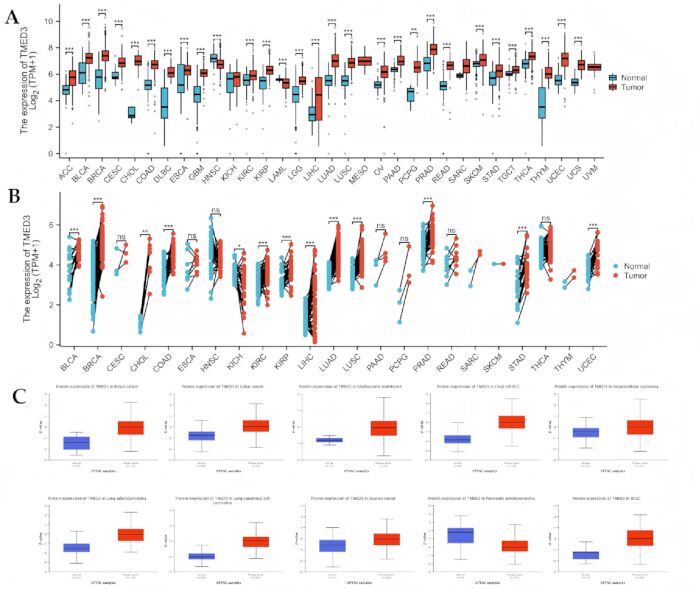
그림 1. 인간 암 전반에 걸친 TMED3 발현 프로필. (A) TCGA 및 GTEx 데이터셋을 기반으로 한 여러 암 유형에서 종양과 정상 조직 간 TMED3 mRNA 발현의 차별. 발현 수준은 log2(TPM + 1)로 표시됩니다. (B) TCGA 데이터셋에서 종양 조직과 인접 정상 조직 간의 TMED3 mRNA 발현 쌍 분석 (C) CPTAC/UALCAN 데이터셋에서 정상 조직과 원발성 종양 간의 TMED3 단백질 발현 차이, 여기에는 유방침습암(BRCA), 대장선암(COAD), 다형성 교모세포종(GBM), 신장 명세포암(KIRC), 간 간세포암(LIHC), 폐선암(LUAD), 폐편평세포암(LUSC), 난소 장액성 낭데노카르시노마(OV), 췌장 선암(PAAD), 자궁 자궁내막암(UCEC) 등이 포함됩니다. 데이터는 박스플롯으로 제시됩니다. 통계적 유의성은 필요에 따라 윌콕슨 순위합 또는 윌콕슨 부호 순위 검정을 사용하여 분석하였습니다. *P < 0.05, **P < 0.01, ***P < 0.001; 중요하지 않다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
임상병리학적 특징 분석
임상 병기 분석 결과, ACC, KIRC, KIRP, LUAD에서 말기 종양(3–4기)에서 TMED3 발현이 초기 종양(1–2기)보다 유의하게 높았음이 입증되었습니다(그림 2). 반면, TMED3 발현은 진행된 UCEC 조직에서 유의하게 감소했습니다. 이러한 발견은 TMED3 발현 증가가 여러 암 유형에서 종양 진행과 연관될 수 있음을 시사합니다.
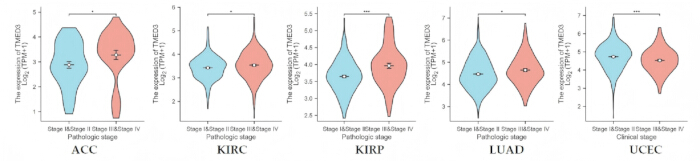
그림 2. TMED3 발현과 여러 암에 걸친 병리학적 단계 간의 연관성. 바이올린 플롯은 부신피질암(ACC), 신장 명세포암(KIRC), 신장 유두세포암(KIRP), 폐선암(LUAD), 자궁내장 자궁내막암(UCEC)에서 초기 종양(1–2기) 및 진행기 종양(III–IV)에서 TMED3 mRNA 발현 수준을 보여줍니다. 발현 수준은 log2(TPM + 1)로 표시됩니다. 통계적 유의성은 윌콕슨 랭크 합 검정을 사용하여 평가하였다. *P < 0.05, ***P < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
예후 분석
Cox 회귀 및 생존 분석 결과, 높은 TMED3 발현이 ACC, COAD, LUAD, UVM(암 부전)에서 OS(개척 수치)가 낮음과 연관됨이 입증되었습니다(그림 3A). DSS 분석 결과, ACC, COAD, GBM, KIRP, UVM에서 TMED3 발현 상승이 불리한 DSS와 유의하게 연관되어 있음을 보여주었습니다(그림 3B). 특히, ACC, COAD, UVM은 TMED3 발현이 높은 환자에서 OS와 DSS 모두에서 일관되게 예후가 좋지 않음을 보였습니다. LUAD, KIRC, LGG 등 선택된 종양 유형에서도 추세 수준의 예후 연관성이 관찰되었습니다. 이러한 발견은 TMED3 발현이 여러 악성 종양에서 예후적 관련성을 가질 수 있음을 시사합니다.
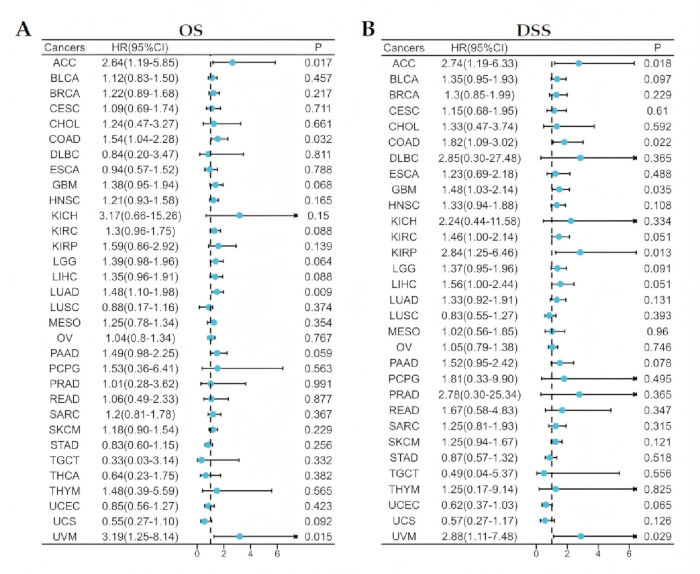
그림 3. 범암 분석에서 TMED3 발현의 예후적 유의성. (A) 여러 암 유형에서 TMED3 발현과 전체 생존율(OS) 간의 연관성을 보여주는 포레스트 플롯. (B) 여러 암 유형에서 TMED3 발현과 질병 특이적 생존율(DSS) 간의 연관성을 보여주는 포레스트 플롯. 위험비(HR)와 95% 신뢰구간(95% CI)은 Cox 비례 위험 회귀분석을 통해 계산하였습니다. HR > 1은 TMED3 발현이 높음으로 예후가 좋지 않음을 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
돌연변이 분석
cBioPortal 데이터베이스를 이용한 유전적 변이 분석에 따르면, 암 전반에 걸친 TMED3 변이는 주로 돌연변이, 증폭, 심부 결실, 그리고 다중 변이로 구성되어 있음을 보여주었습니다(그림 4). TMED3 변이의 가장 빈도는 주로 유전자 증폭에 의해 발생하는 중피종(MESO)에서 관찰되었습니다(2.3%). ESCA는 돌연변이(0.55%), 증폭(1.1%), 심부 결실(0.55%) 등 혼합된 변이 유형을 보였습니다. 반면, LIHC, KICH, THCA, PCPG, CHOL, UVM, LAML, UCS, DLBC, KIRC, TGCT, GBM 데이터셋에서는 탐지 가능한 TMED3 유전적 변이가 확인되지 않았습니다. 이 결과는 TMED3 유전체 변형이 종양 특이적 방식으로 발생하며 암의 이질성에 기여할 수 있음을 시사합니다.
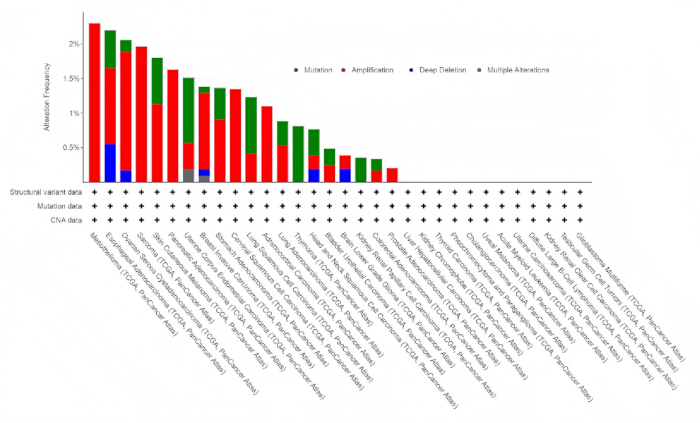
그림 4. 암 전반에 걸친 TMED3의 유전적 변형 지형. cBioPortal 데이터베이스에서 얻은 범암 데이터셋에서 TMED3 유전적 변형의 빈도와 유형. 변이 범주에는 돌연변이, 증폭, 심부 결실, 다중 변이가 포함되었다. y축은 암 유형별 변이 빈도(%)를 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
DNA 메틸화 분석
UALCAN 데이터베이스 분석 결과, BRCA, COAD, ESCA, HNSC, KIRC, KIRP, LIHC, LUAD, PAAD, PRAD 종양 조직에서 TMED3 프로모터 메틸화 수준이 정상 조직에 비해 유의하게 증가한 것으로 나타났습니다(그림 5). 반면, BLCA, TGCT, UCEC 조직에서는 정상 대조군에 비해 TMED3 프로모터 메틸화 수준이 감소하였습니다. 이 결과는 TMED3 프로모터의 이상한 메틸화가 종양 특이적 TMED3 발현 조절에 기여할 수 있음을 시사합니다.
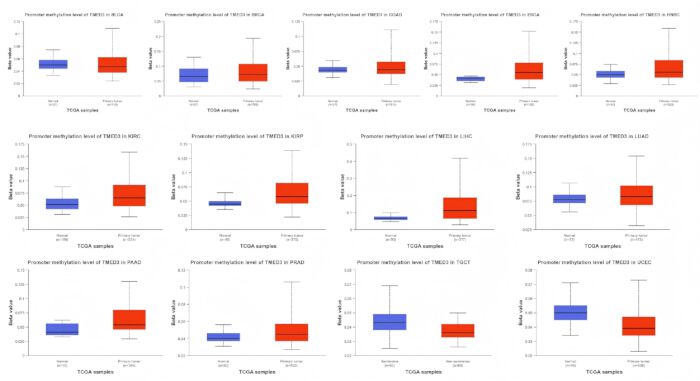
그림 5. 암 전반에 걸친 TMED3 프로모터 메틸화 수준. 방광 요로피암(BLCA), 유방침윤암(BRCA), 대장 선암(COAD), 식도암(ESCA), 두경부 편평세포암(HNSC), 신장 클리어 세포암(KIRC), 신장 유두세포암(KIRP), 간 간세포암(LIHC), 폐선암(LUAD), 췌장 선암(PAAD) 종양 조직과 정상 조직 간 TMED3 프로모터 메틸화 수준 비교 UALCAN에서 얻은 전립선 선암(PRAD), 고환 생식세포 종양(TGCT), 자궁 자궁내막암(UCEC) 데이터셋입니다. 데이터는 박스플롯에서 β 값으로 제시됩니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
TMED3, TMB, MSI 상관관계 분석
Spearman 상관분석 결과, ACC, ESCA, KIRC, LGG, PAAD, STAD, THYM, UCEC 등에서 TMB와 양상관관계가 있는 반면, CESC, LUAD, TGCT에서는 음상관관계가 관찰되었습니다(그림 6A). 또한, TMED3 발현은 DLBC, KIRC, SKCM, STAD, UCEC 내에서 MSI와 양상관관계가 나타났습니다(그림 6B). 특히 TMED3 발현은 KIRC, STAD, UCEC 양쪽에서 TMB와 MSI 모두와 양의 상관관계를 보였으며, 이는 이들 암에서 종양 면역원성과 잠재적 연관성을 시사할 수 있습니다.
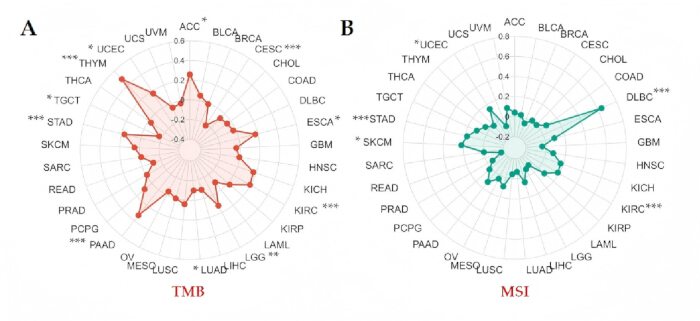
그림 6. 범암 분석에서 TMED3 발현과 종양 돌연변이 부담 및 마이크로새틀라이트 불안정성의 상관관계. (A) 암 전반에 걸친 TMED3 발현과 종양 돌연변이 부담(TMB) 간의 상관관계를 보여주는 레이더 플롯. (B) 암 전반에 걸친 TMED3 발현과 마이크로위성 불안정성(MSI) 간의 상관관계를 보여주는 레이더 플롯. 상관계수는 스피어먼 상관계 분석을 통해 계산되었다. *P < 0.05, **P < 0.01, ***P < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
면역 특성 분석
ESTIMATE 분석은 TMED3 발현이 BCLA, ESCA, LAML, LUAD, LUSC, PAAD, PRAD, SKCM, STAD, THCA, UCEC 내 기질 점수, 면역 점수, ESTIMATE 점수와 음의 상관관계를 보였음을 보여주었습니다(그림 7A). 반면, TMED3 발현과 면역 관련 점수 간의 양의 상관관계는 LGG, LIHC, PCPG에서 관찰되었습니다. ACC, CHOL, DLBC, GBM, KICH, KIRC, KIRP, OV, UCS 등에서는 유의미한 상관관계가 확인되지 않았습니다. 이 발견들은 TMED3가 암 유형에 따라 종양 미세환경과 면역 세포 침윤에 영향을 미칠 수 있음을 시사합니다. 면역 체크포인트 상관관계 분석 결과, TMED3 발현은 BLCA, BRCA, CESC, ESCA, HNSC, LUAD, LUSC, PRAD, SKCM, THCA에서 면역 체크포인트 관련 유전자 CD274(PD-L1), PDCD1(PD-1), CTLA4와 음의 상관관계를 보였다(그림 7B). TMED3 발현과 면역 체크포인트 유전자 간의 양상관관계는 LIHC와 UVM에서 확인되었으나, GBM, KICH, LAML, MESO, OV, PCPG, READ, TGCT에서는 유의미한 연관성이 관찰되지 않았습니다. 이 결과는 TMED3가 특정 암에서 종양 면역 조절 및 면역 체크포인트 신호 전달과 연관될 수 있음을 시사합니다.
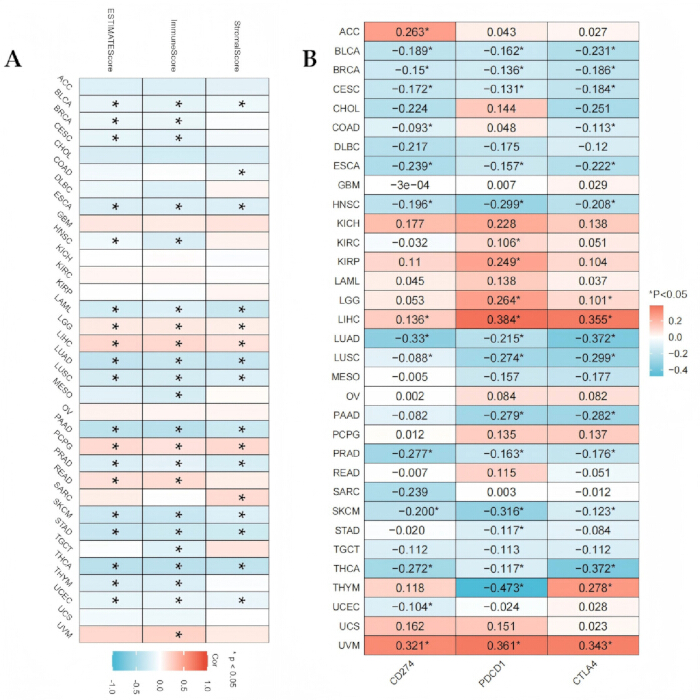
그림 7. TMED3 발현과 종양 면역 특성 간의 연관성. (A) TMED3 발현과 기질 점수, 면역 점수, ESTIMATE 점수 간의 상관관계를 보여주는 히트맵 (ESTIMATE 알고리즘을 사용해 계산됨). (B) TMED3 발현과 면역 체크포인트 관련 유전자(CD274(PD-L1), PDCD1(PD-1), CTLA4 간의 상관관계를 보여주는 열맵. 상관계수는 스피어먼 상관계 분석을 통해 산출되었습니다. 색상 척도는 상관관계 강도를 나타냅니다. *P < 0.05. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
약물 민감성 분석
GDSC 데이터셋을 기반으로 한 GSCALite 플랫폼을 이용한 약물 민감도 분석은 TMED3 발현이 17-AAG, 라파티닙, PD-0325901, RDEA119, 트라메티닙의 절반 최대 억제 농도(IC50) 값과 음의 상관관계를 보였음을 보여주었습니다(그림 8). 이 결과는 TMED3 발현이 높은 종양이 이 항암제들에 대한 민감도를 높일 수 있음을 시사하며, TMED3 발현과 치료 민감성 간의 잠재적 연관성을 시사합니다.
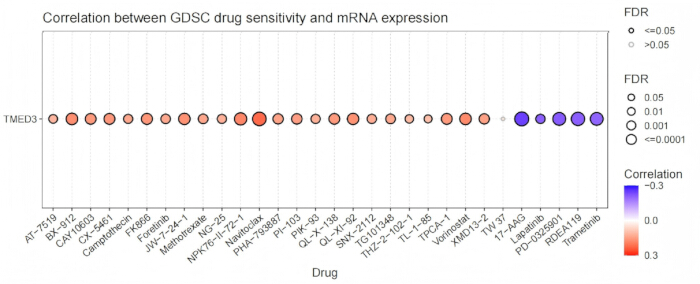
그림 8. TMED3 발현과 항암제 민감성 간의 상관관계. GSCALite 플랫폼을 통해 얻은 암 약물 민감성 게놈학(GDSC) 데이터셋에서 얻은 TMED3 mRNA 발현과 항암제 민감도 간의 상관관계를 보여주는 버블 플롯. 버블 크기는 거짓 발견률(FDR)에 기반한 통계적 유의성을 나타내며, 색상은 상관계수 값을 나타냅니다. 음의 상관관계는 높은 TMED3 발현과 관련된 약물 민감도 증가를 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
대장암에서 TMED3의 발현 및 예후
TMED3 발현 분석은 TCGA 데이터셋에서 정상 대장 조직에 비해 대장암 조직에서 TMED3 mRNA 수치가 유의하게 증가한 것으로 나타났습니다(그림 9A). 인접한 정상 조직을 대조군으로 한 쌍 분석 결과, 대장암 조직에서 TMED3 발현이 상승한 것으로 추가로 확인되었습니다(그림 9B). 전사체학적 결과와 일치하여, UALCAN/CPTAC 데이터셋과 면역조직화학적 염색을 이용한 단백질 발현 분석에서 정상 대장 조직에 비해 대장암 조직에서 TMED3 단백질 발현이 증가하는 것으로 나타났습니다(그림 9C–9E). ROC 곡선 분석 결과 곡선 아래 면적(AUC) 값이 0.869로 나타나, TMED3가 대장암 조직과 정상 조직을 구별하는 데 있어 진단 성능이 우수함을 나타냈다(그림 9F). 임상병리학적 분석은 TMED3 발현이 T 단계와 유의한 연관성을 보인 반면, 연령, 성별, N 단계, TNM 단계와는 유의미한 연관성이 관찰되지 않음을 추가로 보여주었습니다(표 1). 이러한 발견은 대장암에서 TMED3의 진단적 중요성을 뒷받침합니다.
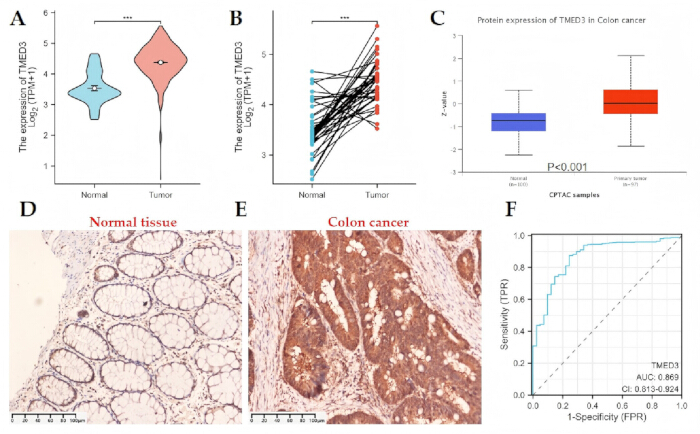
그림 9. 대장암에서 TMED3의 발현, 진단 가치 및 면역조직화학적 검증. (A) TCGA 데이터셋에서 대장암 조직과 정상 대장 조직 간 TMED3 mRNA 발현의 차별. (B) 대장암 조직과 인접 정상 조직에서 TMED3 mRNA 발현의 쌍 분석 (C) CPTAC/UALCAN 데이터셋에서 얻은 대장암 및 정상 조직에서의 TMED3 단백질 발현. (D) 정상 대장 조직에서 TMED3의 대표적인 면역조직화학적 염색. (E) 대장암 조직에서 TMED3의 면역조직화학적 염색으로 TMED3 발현 증가를 보인 사례. (F) 대장암에서 TMED3의 진단 가치를 평가하는 수환자 운행특성(ROC) 곡선. 스케일 바 = 100 μm. 곡선 아래 면적(AUC)은 0.869였으며, 95% 신뢰구간(CI)은 0.813–0.924였습니다. 통계적 유의성은 필요에 따라 윌콕슨 순위합 또는 윌콕슨 부호 순위 검정을 사용하여 분석하였습니다. P < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
| 유형 | TMED3 | P 값 | χ2 | ||
| 낮은 표정 | 고분정 | ||||
| 연식 | |||||
| ≤ 55년 | 25 | 15 | 10 | 0.13 | 2.34 |
| > 55 | 35 | 14 | 21 | ||
| 성별 | |||||
| 여성 | 21 | 10 | 11 | 0.94 | 0.007 |
| 남성 | 39 | 19 | 20 | ||
| T 단계 | |||||
| T1+T2 | 23 | 15 | 8 | 0.04 | 4.26 |
| T3+T4 | 37 | 14 | 23 | ||
| N 스테이지 | |||||
| 번호 | 30 | 12 | 18 | 0.2 | 1.67 |
| N1+N2 | 30 | 17 | 13 | ||
| TNM 스테이지 | |||||
| I+II | 33 | 13 | 20 | 0.13 | 2.35 |
| III+IV | 27 | 16 | 11 | ||
표 1: 대장암에서 TMED3 발현과 임상병리학적 특성 간의 연관성. 대장암 환자의 임상병리학적 특성은 TMED3 발현이 낮은 그룹과 높은 그룹 간에 비교되었습니다. TMED3 발현과 나이, 성별, T 단계, N 단계, TNM 단계 등 임상병리학적 변수 간의 연관성을 카이제곱(χ2) 검정을 사용해 분석하였다. 데이터는 각 하위 그룹의 환자 수로 제시됩니다. 통계적 유의성은 P < 0.05로 정의되었습니다.
KM 생존 분석은 TMED3 발현이 높은 환자가 낮은 TMED3 발현 환자에 비해 OS(P = 0.031)와 DSS(P = 0.020)가 유의하게 더 낮다는 것을 보여주었습니다(그림 10A 및 10B). 시간 의존 ROC 분석은 1년, 3년, 5년 후 각각 0.620, 0.564, 0.575의 예측 성능을 보여주었습니다(그림 10C). 더불어, 단변량 및 다변량 콕스 회귀분석을 통해 T 단계, M 단계, 병리학적 단계, TMED3 발현이 대장암 전체 생존 기간과 관련된 예후 인자임을 확인하였습니다(표 2). 이 결과는 TMED3 발현 증가가 대장암에서 예후가 좋지 않음을 시사하지만, 시간 의존적 ROC 분석은 예측 성과가 제한적이었습니다.
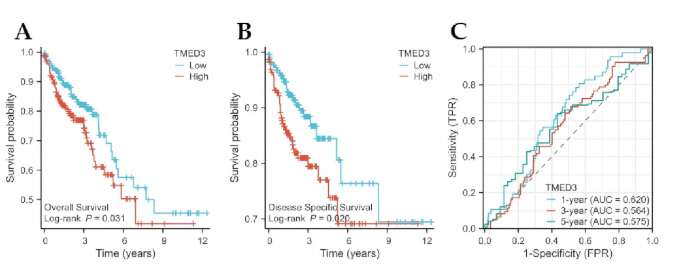
그림 10. 대장암에서 TMED3 발현의 예후적 유의. (A) 대장암에서 TMED3 발현이 높거나 낮은 환자를 비교한 Kaplan–Meier (KM) 전체 생존(OS) 곡선. (B) TMED3 발현이 높거나 낮은 환자를 비교한 Kaplan–Meier 질환 특이적 생존(DSS) 곡선. (C) 1년, 3년, 5년 OS에서 TMED3 발현의 예측 성능을 평가하는 시간 의존적 수신자 작동 특성(ROC) 곡선. 생존율 차이는 로그-랭크 검정을 사용하여 분석하였다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
| 특징 | 단변량 분석 | 다변량 분석 | ||
| 위험비 (95% CI) | P 값 | 위험비 (95% CI) | P 값 | |
| 성별 | 1.101(0.746–1.625) | 0.627 | ||
| T 단계 | 3.072(1.423–6.631) | 0.004 | 3.817(1.174–12.407) | 0.026 |
| N단계 | 2.592(1.743–3.855) | <0.001 | 0.587(0.223–1.584) | 0.28 |
| M 단계 | 4.193(2.683–6.554) | <0.001 | 2.272(1.314–3.930) | 0.003 |
| 병리학적 단계 | 2.947(1.942–4.471) | <0.001 | 3.115(1.032–9.401) | 0.044 |
| TMED3 | 1.537(1.037–2.277) | 0.032 | 1.599(1.039–2.462) | 0.033 |
표 2: 대장암 전체 생존 기간과 관련된 예후 인자에 대한 단변 및 다변량 Cox 비례 위험 회귀 분석. 대장암 환자에서 임상병리학적 특성과 TMED3 발현의 예후 유의성을 평가하기 위해 단변량 및 다변량 Cox 비례 위험 회귀분석을 수행하였습니다. 위험비(HR)는 95% 신뢰구간(95% 신뢰구간)으로 제시됩니다. 변수로는 성별, T 단계, N 단계, M 단계, 병리학적 단계, TMED3 발현이 포함되었습니다. 통계적 유의성은 P < 0.05로 정의되었습니다.
약물 민감도 분석 결과, TMED3 발현이 높은 그룹의 환자들은 5-플루오루라실, 라파티닙, 트라메티닙의 추정 IC50 값이 낮은 TMED3 발현 그룹에 비해 낮은 것으로 나타났습니다(그림 11). 이 결과는 TMED3 발현이 높은 대장암 환자가 이러한 화학요법 및 표적 치료제에 대한 민감도를 증가시킬 수 있음을 시사하며, TMED3 발현과 치료 반응 간의 잠재적 연관성을 시사합니다.
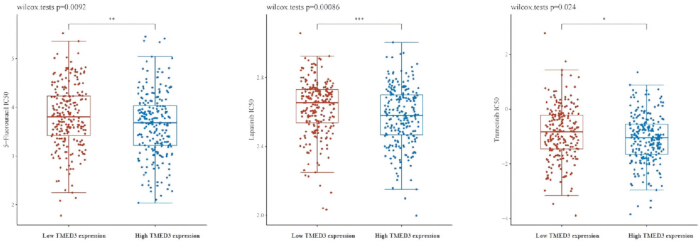
그림 11. 대장암에서 TMED3 발현과 화학요법 약물 민감성 간의 상관관계. 5-플루오우라실, 라파티닙, 트라메티닙의 TMED3 발현(G1)이 낮은 그룹과 TMED3 발현(G2) 그룹(G2) 그룹 간의 추정 최대 억제 농도(IC50) 값을 보여주는 박스 플롯. IC50 값이 낮을수록 약물 민감도가 더 높다는 신호입니다. 통계적 유의성은 윌콕슨 랭크 합 검정을 사용하여 분석하였습니다. *P < 0.05, **P < 0.01, ***P < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
유전자 풍부화 분석
MSigDB 데이터베이스의 KEGG 데이터셋을 사용한 GSEA는 대장암에서 TMED3 관련 유전자가 리보솜, 항원 처리 및 제시, 산화 인산화, 펜토스 인산 경로와 관련된 경로에서 유의미하게 풍부함을 입증했습니다(그림 12). 이 발견들은 TMED3가 대장암에서 위 경로를 통해 종양 진행에 관여할 수 있음을 시사합니다.
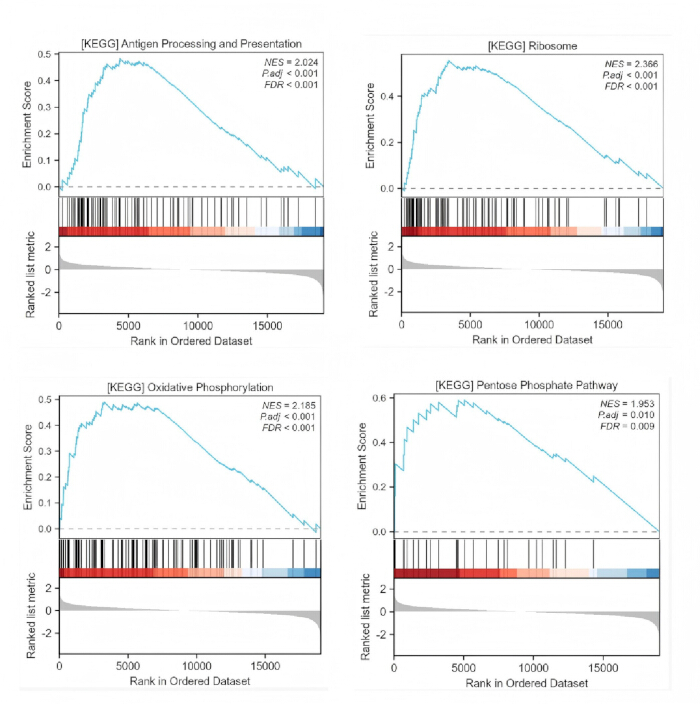
그림 12. 대장암에서 TMED3 관련 유전자의 유전자 집합 풍부화 분석(GSEA). GSEA 는 대장암에서 항원 처리 및 제시, 리보솜, 산화적 인산화, 펜토스 인산 경로와 관련된 경로에서 TMED3 관련 유전자의 풍부함을 보여주는 플롯을 보여준다. 각 패널에는 정규화 농축 점수(NES), 명목 P 값, 그리고 거짓 발견률(FDR) 값이 표시되어 있습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
이 연구는 TMED3가 여러 암에서 이상하게 발현되며, 종양 진행, 예후, 면역 특성, TMB, MSI, 약물 민감도와 연관되어 있음을 보여주었습니다. 대장암에서는 TMED3 과발현이 생존 결과의 불리함과 진단적 가치 증가와 연관되어 있었습니다. 기능 풍부화 분석 결과, TMED3가 암 관련 대사 및 신호 전달 경로에 관여할 수 있음을 시사하였습니다. 종합적으로 이 결과들은 TMED3가 범암, 특히 대장암에서 잠재적 진단 및 예후 바이오마커로서 추가 연구를 뒷받침합니다.
데이터 가용성:
본 연구에서 분석된 데이터셋은 The Cancer Genome Atlas(TCGA; https://portal.gdc.cancer.gov/projects/; 2025년 7월 1일 접속), UALCAN(http://ualcan.path.uab.edu/; 2025년 7월 1일 접속), cBioPortal(https://www.cbioportal.org/; 2025년 7월 5일 접속), 그리고 GSCA를 통한 암 약물 민감성 게놈학(GDSC) 플랫폼(https://guolab.wchscu.cn/GSCA/#/drug; 2025년 7월 5일 접속) 등 공개 데이터베이스에서 수집되었습니다. 이 연구 중 생성된 모든 처리 데이터는 논문에 포함되어 있습니다.
토론
TMED 단백질은 emp24 도메인을 포함하는 고도로 보존된 단백질로, 진핵세포 내에서 단량체 또는 이합체 형태로 존재합니다20. TMED 계열의 구성원들은 소포 매개 단백질 전달과 세포 내 수송에 참여하는 제1형 막관통 단백질입니다20. p24 단백질 계열은 TMED3를 포함한 10개의 TMED 구성원으로 구성되어 있습니다. 점점 더 많은 증거에 따르면 TMED3는 자궁내막암, 골육종, 클리어 세포암, 간세포암, 전립선암, 유방암 등 여러 악성 종양에서 비정상적으로 발현된다는 것이 밝혀졌습니다 4,6,21,22,23. TMED3 발현 증가는 다중 종양 유형에서 예후가 좋지 않은 것과도 연관되어 있습니다 3,5,17,18,19. 폐 편평세포암에서는 TMED3가 에즈린 조절을 통해 종양 진행을 촉진하는 것으로 나타났으며, TMED3는 세포 증식, 집락 형성, 이동 및 세포자멸사 관련 단백질 조절 이상을 억제하는 것으로 나타났다. 이 연구들은 TMED3가 암의 발생과 진행에 밀접하게 관여함을 시사하며; 그러나 범암에서 그 생물학적 기능과 분자 기전은 아직 완전히 밝혀지지 않았습니다.
본 연구에서는 여러 공개 데이터베이스를 통합하여 암 전반에 걸쳐 TMED3의 발현 패턴, 예후 유의성, 면역 특성 및 잠재적 생물학적 기능을 포괄적으로 평가하였습니다. TMED3 발현은 26개 종양 유형에서 유저히 증가했으며, 이 결과는 여러 암에서 종양 및 인접 정상 조직 분석을 통해 더욱 확인되었습니다. CPTAC 데이터는 일관되게 BRCA, COAD, GBM, KIRC, LIHC, LUAD, LUSC, OV, UCEC 내에서 TMED3 단백질 발현 상승을 확인했습니다. 흥미롭게도, PAAD 조직에서는 TMED3 mRNA 발현이 상승했으나, UALCAN 데이터베이스에서는 단백질 발현이 감소하여 전사 후 조절, 단백질 분해 또는 번역 후 변형이 이 불일치에 기여할 수 있음을 시사합니다. 이전 연구들은 유방암 세포에서 TMED3 과발현이 MCF-7 세포의 세포질과 핵 모두에서 β-카테닌과 Axin-2의 축적을 촉진하고, c-myc, MMP7, TCF4 등 Wnt/β-카테닌 하류 표적 발현을 증강시켜 종양 세포 증식, 이동 및 침범을 촉진한다는 것을 보여주었습니다24. 마찬가지로, TMED3는 비소세포폐암에서 상향 조절되는 것으로 보고되었으며, TMED3의 침묵은 종양 세포 증식과 침습적 능력을 억제합니다25. 본 연구에서 임상 병리학적 분석 결과, TMED3 발현은 말기 ACC, KIRC, KIRP, LUAD에서 높았으나, 말기 UCEC에서는 발현이 낮아져 암 진행 중 TMED3가 종양 특이적 생물학적 역할을 할 가능성을 시사합니다. 생존 분석은 또한 ACC, COAD, UVM에서 TMED3 발현 증가와 OS, DSS 부정적 연관성을 보여주어 다발성 암에서 TMED3의 잠재적 예후가치를 지지하였습니다. 또한 프로모터 메틸화 분석 결과, BRCA, COAD, ESCA, HNSC, KIRC, KIRP, LIHC, LUAD, PAAD, PRAD 등에서 TMED3 메틸화 수준이 증가했으며, BLCA, TGCT, UCEC에서는 메틸화 수준이 감소하는 것으로 확인되었습니다. 이 결과는 이상한 프로모터 메틸화가 종양 의존적으로 TMED3 발현 조절 이상에 기여할 수 있으며, 암 발생에 관여할 수 있음을 시사합니다.
MSI는 면역치료에 대한 반응성 향상과 자주 연관되는 뚜렷한 분자 아형으로, 돌연변이 부담이 높고 PD-L1 발현이 증가하는 경우가 많습니다26,27. TMB가 높은 종양은 체세포 돌연변이에서 유래한 다양한 신항원을 생성할 수 있어, T세포 매개 항종양 면역 활성을 증가시키고 면역 체크포인트 차단에 대한 민감도를 높일 수 있습니다 28,29. 본 연구에서 TMED3 발현은 KIRC, STAD, UCEC 양에서 TMB와 MSI 모두와 양의 상관관계를 보였으며, 이는 TMED3가 이들 암 유형에서 종양 면역원성 및 면역치료 반응성과 연관이 있을 수 있음을 시사합니다. 점점 더 많은 증거가 종양 미세환경, 특히 면역 및 기질 구성 요소가 암 진행, 치료 반응, 재발, 환자 예후에 중요한 역할을 한다는 것을 입증하고 있습니다. ESTIMATE 알고리즘은 면역 관련 유전자 발현 패턴에 따라 기질, 면역, ESTIMATE 점수를 계산하며, 이전 연구에서는 전립선암, 교모세포종, 대장암에서 이 점수와 임상 결과 사이에 유의미한 관계가 보고되었습니다30, 31, 32. 분석 결과, TMED3 발현은 다양한 종양 유형에서 기질 점수, 면역 점수, ESTIMATE 점수와 다양하게 연관되어 있어 TMED3가 종양 미세환경 조절을 통해 종양 진행에 기여할 수 있음을 시사하였습니다. 더불어 TMED3 발현은 CD274(PD-L1), PDCD1(PD-1), CTLA4 등 여러 면역 체크포인트 관련 유전자와 상관관계가 있었으나, 이들 연관성의 방향과 크기는 종양 유형별로 차이가 있었다. ACC, KIRP, LGG, LIHC, THYM, UVM 등에서 TMED3와 면역 체크포인트 마커 사이에 유의한 양의 상관관계가 확인되어, 이들 암에서 TMED3 발현이 높은 종양이 면역치료에 대한 민감도가 증가할 수 있음을 시사합니다. 약물 감수성 분석에서는 TMED3 발현과 17-AAG, 라파티닙, PD-0325901, RDEA119, 트라메티닙에 대한 반응성 간의 연관성이 밝혀져 TMED3 발현과 치료 효능 간의 잠재적 연관성을 시사하였습니다.
면역조직화학적 검증을 위해 대장암을 선정했으며, 결과 정상 대장 조직에 비해 TMED3 발현이 정상 대장 조직에 비해 현저히 높았음을 확인해 주었습니다7. 임상 병리학적 분석은 대장암에서 TMED3 발현과 T 단계 사이에 유의한 연관관계가 있음을 추가로 밝혀냈습니다. 또한 TMED3는 진단적 가치를 보였으며, TMED3 발현 증가는 환자 예후가 좋지 않음과 연관되어 있었습니다. 그러나 시간 의존 ROC 분석에서는 1년, 3년, 5년 OS 예측에 대한 AUC 값이 0.5를 약간 초과하는 수준으로, 통계적 유의성에도 불구하고 예측 정확도가 제한적임을 나타냈다. 이러한 발견은 TMED3가 현재 임상 적용의 강력한 예측 인자보다는 탐색적 예후 바이오마커로서 더 큰 가치를 가진다는 것을 시사합니다. 단변량 및 다변량 Cox 회귀분석을 통해 T 단계, M 단계, 병리학적 단계, TMED3 발현이 대장암에서 OS와 관련된 독립적인 예후 인자임을 확인하였습니다. 약물 민감성 분석 결과, TMED3 발현이 높은 환자는 5-플루오우라실, 라파티닙, 트라메티닙 등 일반적으로 사용되는 치료제에 더 잘 반응할 수 있음을 시사했습니다. 더불어, 기능적 풍부 분석 결과, 대장암에서 TMED3 관련 유전자는 주로 리보솜, 항원 처리 및 제시, 산화적 인산화, 펜토스 인산 경로와 관련된 경로에서 풍부하게 유지됨을 밝혀냈습니다.
본 연구는 여러 암 유형에서 TMED3의 발현 프로필, 예후값 및 면역 관련 특성을 체계적으로 평가하였습니다. 그럼에도 불구하고 여러 가지 제한 사항을 고려해야 합니다. 대부분의 발견은 공개 데이터셋을 기반으로 한 생물정보학 및 다중체학 분석에서 도출되었으며, 실험적 검증은 대장암 조직의 면역조직화학적 분석에 한정되었습니다. 더불어, TMED3가 종양 진행에서 어떤 역할을 하는지 정확한 분자 기전을 조사하기 위한 기능적 실험은 수행되지 않았습니다. 따라서 TMED3의 생물학적 기능과 다양한 악성 종양에서의 잠재적 치료적 중요성을 더욱 명확히 하기 위해 추가 시험관 내 및 생체 내 연구가 필요합니다.
공개 사항
이해 상충:
저자들은 상충하는 이해관계가 없다고 선언한다.
감사의 글
이 연구는 허베이성 의학과학연구사업(No. 20231832)의 지원을 받았습니다. 저자들은 TCGA, GTEx, UALCAN, cBioPortal 데이터베이스의 기여에 진심으로 감사드립니다.
재료
```html
```
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.5% 암모니아 용액 | Tianjin Fuyu Fine Chemical Co., Ltd | CAS:1336-21-6 | N/A |
| 1% 산성 알코올 | Ningbo Chiwell Biotechnology Co., Ltd | CWGQ-HE-1001 | N/A |
| 10% 중성 완충 포르말린 | Wuhan Huntz Biotechnology Co., Ltd | H-H8060 | N/A |
| 100% 에탄올 | Tianjin Fuyu Fine Chemical Co., Ltd | CAS:64-17-5 | N/A |
| 70% 에탄올 | Tianjin Fuyu Fine Chemical Co., Ltd | CAS:64-17-5 | N/A |
| 80% 에탄올 | Tianjin Fuyu Fine Chemical Co., Ltd | CAS:64-17-5 | N/A |
| 95% 에탄올 | Shandong Lirun Medical Technology Co., Ltd | CAS:64-17-5 | N/A |
| 알시안 블루 염색 | Baso Diagnostics Inc., Zhuhai | BA4121 | N/A |
| cBioPortal | Memorial Sloan Kettering Cancer Center | N/A | SCR_014555 |
| 구연산 기반 항원 재현 버퍼 | Leica Biosystems Newcastle Ltd | AR9640-CN | N/A |
| clusterProfiler 패키지 | Bioconductor | N/A | SCR_016884 |
| DESeq2 패키지 | Bioconductor | N/A | SCR_015687 |
| 디아미노벤질딘 테트라하이드로클로라이드 수화물 | Leica Biosystems Newcastle Ltd | DS9800-CN | N/A |
| ESTIMATE 패키지 | R 패키지 | 버전 1.0.13 | N/A |
| GSCALite 플랫폼 | GSCALite | N/A | N/A |
| GTEx 데이터베이스 | GTEx Consortium | N/A | SCR_013042 |
| 헤마톡실린 | Ningbo Chiwell Biotechnology Co., Ltd | CWGQ-HE-1001 | N/A |
| 과산화수소 | OriGene Technologies, Inc | PV-6000D | N/A |
| 카플란-마이어 생존 분석 | 생존 R 패키지 | 버전 3.2-7 | SCR_021137 |
| KEGG 유전자 세트 | MSigDB | 버전 7.5.1 | SCR_016863 |
| 광학 현미경 | Zeiss Technology (Suzhou) Co., Ltd | N/A | N/A |
| 파라핀 임베딩 매체 | YL 회사의 PATHO-Reagent 부서 | CAS:8002-74-2 | N/A |
| 폴리머 기반 검출 시스템 | Leica Biosystems Newcastle Ltd | PV-6000 | N/A |
| R 통계 분석 소프트웨어 | R 통계 계산 재단 | 버전 4.2.1 | SCR_001905 |
| 이차 토끼 항-마우스 IgG | Leica Biosystems Newcastle Ltd | DS9800-CN | N/A |
| TCGA 데이터베이스 | 국립 암 연구소 | N/A | SCR_003193 |
| TMED3 기본 항체 | CUSABIO Technology, 휴스턴, 미국 | CSB-PA897107LA01HU | N/A |
| 트리스 완충 염수 (TBS) | Leica Biosystems Newcastle Ltd | AR9590-CN | N/A |
| UALCAN 데이터베이스 | UALCAN | N/A | SCR_015827 |
| 윌콕슨 통계 분석 | 통계 R 패키지 | N/A | SCR_003005 |
| 자일렌 | Tianjin Fuyu Fine Chemical Co., Ltd | CAS:1330-20-7 | N/A |