본 프로토콜은 에피좀형 플라스미드 전기천공법을 이용하여 일차 양수 세포로부터 통합-프리(integration-free) 이배체 인간 iPSC를 생성하는 재현 가능한 방법을 제공합니다. 본 방법은 염색체 이상을 안정화하기 위한 전달 및 배양 조건을 최적화함으로써, 후속 연구 및 임상 적용을 위한 질병 특이적 모델 구축을 위한 실용적인 플랫폼을 제공합니다.
방법 논문
일차 양수 세포로부터 이배체성 인간 유도만능줄기세포의 생성 ~을 통해 / ~을 경유하여 에피좀 플라스미드 전기천공법
이 논문에서
요약
초록
특정 염색체 이배체(aneuploidy)를 보유한 양수 세포(AFCs)로부터 환자 맞춤형 유도만능줄기세포(iPSCs)를 생성하는 것은 유전 질환 모델링을 위한 강력한 플랫폼을 제공합니다. 그러나 이러한 세포의 내재적인 게놈 불안정성과 가변적인 증식 능력으로 인해, 이배체 AFCs를 위한 신뢰할 수 있고 재현 가능한 리프로그래밍 파이프라인을 구축하는 것은 여전히 기술적으로 어려운 과제로 남아 있습니다. 본 논문에서는 에피솜 플라스미드 전기천공법을 이용하여 일차 AFCs로부터 이배체 인간 iPSCs를 생성하는 포괄적인 비통합법을 제시합니다. 본 프로토콜에서는 세포 해동 및 점진적 배지 적응 전략을 통한 세포 확장을 포함하여, 최적화된 플라스미드 전달까지 전체 워크플로우를 상세히 설명합니다. ~을 통해 / ~을 경유하여 전기천공 시스템, 중간엽-상피 전이(MET) 유도 배지 교체를 통한 순차적 전기천공 후 배양, 그리고 정의된 형태학적 기준에 기반한 기계적 콜로니 피킹을 설명합니다. 또한 핵심 다능성 마커에 대한 면역형광 염색, 이배체 핵형 유지를 확인하기 위한 G-banding 핵형 분석, PCR 기반의 에피솜 벡터 제거 확인을 포함한 검증 절차를 상세히 기술합니다. 이 무피더(feeder-free), 무통합(integration-free) 프로토콜은 질환 모델링, 약물 스크리닝 및 염색체 생물학 연구에 적합한 이배체 iPSC 라인을 생성합니다.
서론
유도 만능 줄기세포 기술의 등장은 인간 배아 줄기세포(hESCs)와 관련된 윤리적 문제 없이 환자 맞춤형 만능 세포의 생성을 가능하게 함으로써 재생 의학, 질병 모델링 및 약물 발견 분야를 변화시켰습니다. 세포 리프로그래밍의 개념적 토대는 Gurdon의 체세포 핵 이식 입증1에서 시작되었으며, 이후 배아 줄기세포의 확립2,3,4을 거쳐, 최종적으로 OCT4, SOX2, KLF4 및 c-MYC의 이소성 발현을 통한 유도 만능성 개발5 로 이어졌습니다. 이후 iPSC 기술은 인간의 발달, 유전 질환 및 정밀 의료를 연구하는 데 필수적인 플랫폼이 되었습니다. 초기 리프로그래밍 방법은 레트로바이러스 또는 렌티바이러스 벡터를 사용했으나, 통합과 관련된 위험으로 인해 임상 적용에 한계가 있었습니다. 이에 따라, 임상 적용을 위한 비통합형 리프로그래밍 방법의 개발이 우선순위가 되었습니다. 이러한 방법에는 Sendai 바이러스6 사용, 합성 mRNA7, oriP/EBNA1(Epstein-Barr nuclear antigen-1) 메커니즘 기반의 에피소말 벡터8, 그리고 저분자 화합물만을 이용한 화학적 리프로그래밍9,10,11,12이 포함됩니다.
이배체성(Aneuploidy)은 인간의 유산과 선천성 기형의 주요 원인입니다. 이배체성 관련 발달 이상에 내재된 세포 및 분자적 기전을 이해하기 위해서는 이러한 상태의 유전적 배경을 충실히 재현하는 적절한 세포 모델이 필요합니다. 양수 세포(AFCs)는 환자 맞춤형 iPSC 제작을 위한 매력적이고 효율적인 출발 물질이며13,14,15, 특히 산전 진단된 유전 질환의 경우 더욱 그러합니다16,17. 일반적인 양수 검사 중에 얻은 잔여 양수는 출생 후 추가적인 침습적 조직 생검 없이도 태아 유래 세포를 확보할 수 있게 해줍니다. 성인 체세포와 비교하여 AFCs는 일반적으로 더 높은 증식 능력, 더 긴 텔로미어, 더 낮은 누적 환경 돌연변이 부담 및 더 큰 발달 가소성을 나타내며, 이는 모두 세포 리프로그래밍을 용이하게 합니다18,19. 중요한 점은, AFCs가 발달 중인 태아의 염색체 구성을 충실히 보존하므로, 21번 삼염색체성20, 18번 삼염색체성21, 터너 증후군 및 클라인펠터 증후군22을 포함한 염색체 이상에 대한 질환 특이적 iPSC 모델을 구축하는 데 이상적인 공급원이 된다는 것입니다.
본 프로토콜은 에피솜 벡터(episomal vectors)를 사용하여 이배수성 양수 세포로부터 통합-프리(integration-free) iPSC를 생성하기 위한 종합적인 가이드를 제공합니다. 이 방법에는 세포 분리, 리프로그래밍, 클론 선택 및 특성 분석을 위한 상세한 절차가 포함되어 있습니다. 다른 통합-프리 리프로그래밍 방법과 비교했을 때, 에피솜 플라스미드 시스템은 게놈 안전성, 기술적 단순성 및 비용 효율성 사이의 실질적인 균형을 제공하여, 일반적인 실험실 사용 및 대규모 바이오뱅킹 응용 분야에 특히 적합합니다. 본 프로토콜은 기존 바이오뱅크에 보관된 냉동 AFC와 정기 산전 진단 중에 얻은 신선한 잔여 양수 샘플 모두에 적용 가능합니다. AFC에 대해 보고된 에피솜 리프로그래밍 효율은 상대적으로 낮고, 리프로그래밍 또는 장기 배양 과정에서 특히 특정 이배수성의 경우 자발적인 염색체 복구(chromosome rescue)가 발생할 수 있지만, 이 워크플로우는 질환 특이적 iPSC 바이오뱅크 구축, 염색체 생물학 및 초기 인간 발달 연구, 그리고 계통 특이적 세포 유형으로의 하위 분화 연구에 쉽게 적용될 수 있습니다. 이러한 접근 방식은 질환 모델링 및 염색체 이상에 대한 기전 연구를 위해 산전 샘플로부터 임상적으로 유의미한 통합-프리 iPSC 라인을 생성하는 데 특히 적합합니다.
프로토콜
인간 양수 샘플을 이용한 모든 절차는 헬싱키 선언(Declaration of Helsinki)을 준수하여 수행되었으며, 북경대학교 제3병원(Peking University Third Hospital)의 기관생명윤리위원회(IRB)/인간연구윤리위원회의 승인을 받았습니다(프로토콜 번호 M2023406). 이배체성 샘플은 인간 발달 및 생식 자원 전문 국가 인증 임상 보관소인 북경대학교 제3병원 생식의학센터 바이오뱅크에서 제공받았습니다. 이 표본들은 임상적 산전 진단을 위한 정기적 양수 검사 중 수집된 잔여 양수로, 별도의 조치가 없었다면 폐기되었을 샘플들입니다. 모든 기증자로부터 수집 전 서면 동의를 얻었으며, 여기에는 잔여 샘플의 바이오뱅크 보관 및 이후 연구 활용에 대한 명시적인 권한 부여가 포함되었습니다. 환자의 개인정보 보호를 위해 모든 샘플은 엄격하게 익명화되었습니다. 임상 G-banding 분석을 통해 확인된 이배체 핵형 샘플 중 21번 삼염색체성(다운 증후군, N = 2), 18번 삼염색체성(에드워즈 증후군, N = 1), X 단일염색체성(터너 증후군, N = 1), 클라인펠터 증후군(N = 2) 샘플을 iPSC 유도를 위해 선정하였습니다. 리프로그래밍에 사용된 이배체 세포주에 대한 상세 정보는 다음에서 요약하여 설명합니다. 표 1.
1. 바이오뱅크 보관 양수 세포의 해동 및 일차 배양
참고: 이 섹션에서는 바이오뱅크에서 이배수성 AFC를 검색 및 회수하는 표준화된 절차에 대해 상세히 설명합니다. 배양된 세포는 후속 에피솜 재프로그래밍을 위해 충분한 개체 수를 확보하도록 확장됩니다.
- 표준 해동 절차
- 배지 평형화: 사용 전 complete AmnioType-1 배지를 37 °C로 가온한다.
- 시료 회수: 액체 질소 저장고에서 세포 동결 배지에 약 300,000 AFCs가 동결 보존된 cryovial을 꺼낸다. 조기 해동을 방지하기 위해 vial을 즉시 드라이아이스에 담아 실험실로 옮긴다.
- 신속 해동: cryovial의 하단 절반을 37 °C 항온수조에 담그고 부드럽게 흔들어준다. 작은 얼음 결정만 보일 때 해동 과정을 중단한다.
참고: 완전히 해동하지 않도록 주의한다. 이는 세포가 따뜻한 DMSO의 독성 효과에 노출되는 것을 방지하기 위함이다. - 희석: 층류 후드(laminar flow hood) 내에서, 세포 현탁액을 4 mL의 예열된 AmnioType-1 배지가 들어 있는 15 mL conical tube에 한 방울씩 옮긴다.
- 원심분리: 현탁액을 실온에서 300 × g로 5분간 원심분리한다.
- 계대 배양: 상층액을 흡입하여 제거하고, 세포 펠릿을 2 mL의 신선한 AmnioType-1 배지에 부드럽게 재현탁한다. 세포를 0.1% Gelatin으로 사전 코팅된 6-well plate 또는 T25 flask에 30,000–50,000 cells/cm² 밀도로 분주한다.
- 초기 배양: 세포를 37 °C, 5% CO2 습윤 배양기에 넣는다. 분주 후 3일째에 도립 위상차 현미경으로 flask를 관찰하여 세포의 초기 부착 여부를 확인한다.
- primary AFCs의 증식 및 배지 전환
- 섬유아세포 배양(FC) 배지 준비: 100 mL의 자체 제작 섬유아세포 배양 배지를 준비하려면, 82 mL의 high-glucose DMEM과 15 mL의 Fetal Bovine Serum (FBS)을 혼합한다. 여기에 1 mL의 100× GlutaMAX, 1 mL의 100× Non-essential Amino Acids (NEAA), 그리고 1 mL의 Penicillin-Streptomycin (P/S)을 추가한다. 멸균 환경에서 0.22 µm 진공 여과 시스템을 통해 배지를 여과한다.
- 증식 과정 동안, 전기천공법(electroporation) 전의 대사 안정성을 확보하기 위해 3일마다 AFC 배지를 특수 임상 배지(AmnioType-1)에서 표준 섬유아세포 배양 시스템(자체 제작 FC 배지)으로 점진적으로 변경한다.
- 점진적인 배지 전환 수행:
- 3일째 (75% AmnioType-1: 25% FC): 기존의 AmnioType-1 배지를 흡입하여 제거한다. 75% AmnioType-1과 25% FC 배지로 구성된 혼합 배지를 추가한다.
- 6일째 (50% AmnioType-1: 50% FC): 배지를 흡입하여 제거하고 AmnioType-1과 FC 배지를 1:1 비율로 교체한다.
- 9일째 (25% AmnioType-1: 75% FC): 배지를 흡입하여 제거하고 25% AmnioType-1과 75% FC 배지 혼합물로 교체한다.
- 12일째 (100% FC): 배지를 흡입하여 제거하고 100% FC 배지로 전환한다.
참고: 이러한 점진적 적응은 세포 충격을 줄이고 민감한 이배체(aneuploid) 클론의 탈락을 방지한다.
- 점진적인 배지 전환 수행:
- 매일 콜로니 형태를 관찰한다. 양수에는 불균일한 세포 집단이 포함되어 있다. 위상차 현미경 하에서 두 가지 주요 유형인 F-type(섬유아세포 유사, 방추형)과 E-type(상피 유사, 원형)을 식별한다. 섬유아세포 유사 중간엽 세포군이 리프로그래밍에 최적이다.
참고: 세포의 노화 징후를 면밀히 모니터링한다.
- primary AFCs의 계대 배양
- 세포가 80%–90% 합류도(confluence)에 도달하면(통상 10–14일째), flask에서 배지를 흡입하여 제거하고 Ca²⁺/Mg²⁺가 없는 2 mL의 Dulbecco's phosphate-buffered saline (DPBS)로 한 번 부드럽게 세척한다.
- 6-well plate의 단일 well에 세포 단층을 덮을 수 있도록 1 mL의 0.25% Trypsin-EDTA 용액을 첨가한다.
- 세포가 완전히 떨어질 때까지 37 °C에서 4–5분간 배양한다.
- 3 mL의 FC 배지를 추가하여 해리 시약을 중화시킨다. 현탁액을 15 mL conical tube로 옮긴다.
- 실온에서 300 × g로 5분간 원심분리한다.
- 상층액을 흡입하여 제거하고 세포 펠릿을 1 mL의 신선한 FC 배지에 재현탁한다. trypan blue 배제법을 이용해 hemocytometer 또는 자동 세포 계수기로 생존 세포 수를 측정한다.
- 세포를 complete 배지가 들어 있는 새 T25 flask에 30,000–50,000 cells/cm² 밀도로 분주한다(통상 1:2 또는 1:3 비율).
- 리프로그래밍에 사용하기 전까지 세포를 passage 3–5까지 증식시킨다. passage 6 이상의 세포는 사용하지 않는다.
참고: 전기천공 시점의 세포 품질은 리프로그래밍 성공의 가장 중요한 결정 요인이다. 노화 징후나 비정상적인 형태가 없는, 대수 성장기(log-phase)의 건강한 F-type AFC만을 사용한다.
2. 세포 전기천공 시스템을 이용한 AFC로의 에피솜 플라스미드 전기천공
- 배양 용기를 기저막 매트릭스로 코팅하십시오.
- 기저막 매트릭스(Matrigel)를 다음 온도에서 하룻밤 동안 해동하십시오. 4 °C 얼음 위에서.
- 멸균된 DPBS 또는 DMEM/F-12를 얼음 위에서 냉각한다. 파이펫 팁과 튜브를 얼음 위에서 30분 동안 사전 냉각한다.
- 냉각된 팁과 튜브를 사용하여, ice-cold DMEM/F-12에서 basement membrane matrix를 1:200 비율로 희석합니다 (예: 30 µL 매트릭스 + 6-웰 플레이트용 DMEM/F-12 6mL).
- 피펫팅으로 5~6회 부드럽게 위아래로 섞어 충분히 혼합한다. 이때 기포가 생기지 않도록 주의한다.
- 6-well 플레이트의 경우, 웰당 1mL씩 희석된 코팅 용액을 배양 용기에 추가하십시오.
- 코팅된 용기를 다음 조건에서 배양하십시오. 37 °C 최소 1시간 동안 또는 상온에서 2시간 동안.
- 세포를 도말하기 직전에 코팅 용액을 흡입하여 제거하십시오. 항생제가 포함되지 않은 FC 배지 2 mL를 추가하십시오. 10 μM Y-27632 (ROCK 억제제)를 첨가하고 플레이트를 다시 A로 옮깁니다. 37 °C 인큐베이터. 코팅된 표면이 마르지 않도록 하십시오.
참고: 코팅된 플레이트는 다음 조건에서 보관할 수 있습니다. 4 °C Parafilm으로 밀봉하여 최대 7일 동안 보관한다. 사용 전 상온에서 평형화한다.
- 에피좀 재프로그래밍 플라스미드 해동 및 준비
- 플라스미드 선택: 리프로그래밍을 위해 다음과 같은 에피솜 플라스미드를 사용하십시오: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL 및 pCXLE-EBNA1.
참고: (선택 사항) 전기천공 조건을 최적화하기 위해 pCE-GFP를 동일한 설정 하에 병렬로 전기천공할 수 있습니다. 초기 48~72시간 동안의 GFP 발현은 형질전환 효율을 확인하는 편리한 지표가 되며, 이후 계대 배양 과정에서 GFP 신호가 점진적으로 소실되는 것을 통해 일시적 플라스미드 희석 정도를 모니터링할 수 있습니다. - 품질 관리(QC): 분광광도계를 사용하여 DNA 농도와 순도를 확인하십시오. A260/280 비율이 1.8에서 1.9 사이인지 확인하십시오. 각 플라스미드의 농도가 다음보다 높은지 확인하십시오. 1 µg/µL 및 멸균된 상태여야 합니다.
참고: 모든 플라스미드를 엔도톡신 제거(endotoxin-free) 방법으로 준비하는 것이 매우 중요합니다. 잔류 엔도톡신은 높은 세포 독성을 유발하고 리프로그래밍 효율을 현저히 감소시킬 수 있습니다. 플라스미드는 소량으로 분분주하여 -20 °C 반복적인 동결-해동 주기를 방지하기 위해. - 제공해주신 텍스트가 "For a"로 시작하며 내용이 중단되었습니다. 번역할 전체 문장이나 문단을 제공해 주시면, 요청하신 지침에 따라 전문적인 학술 한국어로 정밀하게 번역해 드리겠습니다. 100 µL 반응, 준비 5 µg 플라스미드 혼합물(pCXLE-hOCT3/4-shp53, pCXLE-hSK의 동일 중량비)의 pCXLE-hUL 및 pCXLE-EBNA1).
- 플라스미드 선택: 리프로그래밍을 위해 다음과 같은 에피솜 플라스미드를 사용하십시오: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL 및 pCXLE-EBNA1.
- 전기천공법 파라미터를 설정하십시오.
- 전기천공 장치를 초기화하십시오. 펄스 파라미터를 일차 부착 세포에 최적화된 설정으로 지정하십시오: 펄스 전압: 1,200V, 펄스 폭: 20ms, 펄스 횟수: 2회.
- 피펫 스테이션에 Buffer E 2mL를 채워 전극이 완전히 잠기도록 하십시오.
참고: 초기 실험에서 세포 생존율이 50% 미만으로 나타날 경우, 950 V / 20 ms / 2 펄스(더 완만한 조건)와 같은 대안적인 파라미터 세트의 테스트를 고려하십시오. 이러한 대안은 생존율을 높이기 위해 효율성을 일부 희생하는 방식입니다.
- 전기천공법을 위한 AFC 준비
- 0일 차에, 현미경 하에서 세포가 과성장, 노화 또는 오염의 징후 없이 건강한 방추형 형태를 나타내는지 확인하십시오. 세포가 90%의 합류도(confluence)에 도달했으며 활발한 대수 성장기(log-phase)에 있는지 확인하십시오.
- 전기천공법 절차 직전에 Matrigel 코팅액을 흡입하여 제거하고, 이를 미리 데워둔 항생제 제거 배지 2 mL로 교체하십시오. FC medium plus 10 μM Y-27632 (ROCK 억제제). 항생제가 포함되지 않은 이 FC 배지를 다음 온도로 예열하십시오. 37 °C 전기천공법 시스템을 위해 세포를 회수하기 전, 최소 20분 동안 인큐베이터에 둡니다.
참고: 이 특정 배지 배치에는 Penicillin-Streptomycin (P/S)이나 다른 어떤 항생제도 첨가하지 마십시오. 전기천공법(electroporation) 이후 세포막은 일시적으로 투과성이 유지되며 취약한 상태가 됩니다. 항생제가 존재하면 세포 사멸(apoptosis)이 증가할 수 있습니다. - 전기천공법(electroporation)을 위해 AFC의 배지를 흡입하여 제거하고, Ca 성분이 없는 DPBS로 단층(monolayer)을 1회 세척합니다.²⁺/Mg²⁺.
- TrypLE Select Enzyme 2mL(T25 플라스크 기준)을 첨가하고 다음 온도에서 배양하십시오. 37 °C 4~5분 동안.
- FC 완전 배지 6 mL로 중화한 후 15 mL 원추형 튜브로 옮긴다. 자동 세포 계수기를 사용하여 세포 수를 측정하십시오.
- 300에서 원심분리하십시오. × g 실온에서 5분 동안.
- 다음을 사용하여 상층액을 완전히 제거하십시오. 200 μL 피펫 팁을 사용하여, 작은 세포 펠렛(cell pellet)이 흐트러지지 않도록 주의하며 옮깁니다.
- 세포 펠렛을 Buffer R에 재현탁하여 최종 밀도를 1.0으로 맞춥니다. × 10⁷ 1.4까지 × 10⁷ cells/mL.
참고: 세포 펠릿이 건조한 상태가 되도록 상층액을 최대한 완전히 흡입하십시오. 남아 있는 배양액은 재현탁 버퍼를 희석시켜 전기천공 효율을 낮출 수 있습니다. AFC의 경우 Buffer R(부착 세포용)을 사용하십시오. 제조사의 권장 사항을 확인하여 버퍼 선택이 적절한지 검증하십시오.
- 전기천공법을 수행합니다.
- 분주 110 μL 세포 현탁액의 (1.0–1.4가 포함된) × 106 세포)를 멸균된 1.5 mL 마이크로원심분리 튜브에 넣습니다.
참고: 추가하십시오. 10 μL 최종 부피까지 Buffer R을 첨가하여 충분한 세포 현탁액을 확보함으로써, 흡입 시 기포가 유입되는 것을 방지하십시오. - 추가하십시오 5 μg 플라스미드 혼합물을 ~에 추가합니다. 110 μL 세포 분주액. 부드럽게 피펫팅하여 3회 혼합한다.
- 멸균된 제품을 부착하십시오. 100 μL 피펫에 전기천공 팁을 장착하십시오. 팁이 딸깍 소리가 나며 단단히 고정되었는지 확인하십시오.
- 부하(Load) 100 μL 세포/DNA 현탁액을 취하되, 눈에 보이는 기포가 없는지 확인하십시오.
참고: 공기 방울은 전기 펄스 동안 아킹(arcing)을 유발하여 세포를 사멸시키고 팁을 손상시킵니다. 공기 방울이 보일 경우, 혼합물을 다시 튜브 안으로 배출하고 천천히 흡입하는 과정을 반복하십시오. - 팁이 장착된 피펫을 스테이션의 버퍼 튜브에 수직으로 삽입하여 딸깍 소리가 날 때까지 고정합니다. 터치스크린에서 모든 파라미터가 정확한지 확인한 다음, Start 버튼을 눌러 펄스 시퀀스를 수행합니다.
- 화면에 표시될 때까지 기다리십시오. "완료" (통상적으로 1~2초 이내). 즉시 스테이션에서 피펫을 제거하고, 전기천공된 세포 현탁액을 2~3...으로 직접 분주한다. 미리 데워둔 항생제 무첨가 FC 배지가 들어있는 코팅된 6-웰 플레이트의 웰에 10 μM Y-27632.
- 사용한 팁을 안전하게 폐기하십시오. 필요한 경우 추가 웰이나 반복 실험을 위해 위 단계를 반복하십시오. 6-웰 플레이트를 다음의 장치에 넣으십시오. 37 °C, 5% CO2₂ 습윤 배양기에서 하룻밤 동안 배양합니다.
- 분주 110 μL 세포 현탁액의 (1.0–1.4가 포함된) × 106 세포)를 멸균된 1.5 mL 마이크로원심분리 튜브에 넣습니다.
3. 전기천공 후 리프로그래밍 배양
참고: 이 섹션에서는 AFC를 iPSC로 완전히 리프로그래밍하기 위한 순차적인 배지 교체 과정을 설명합니다. 전체 일정은 전기천공법부터 콜로니 피킹까지 약 25일이 소요됩니다.
- 전기천공 후 약 16–18시간 뒤에, 생존하여 부착된 세포가 떨어지지 않도록 주의하며 배지를 흡입하여 제거합니다. 각 웰에 미리 데워둔 FC 배지(P/S 포함) 2 mL를 조심스럽게 첨가하여 초기 24시간 동안 세포가 안정화되도록 합니다. 플레이트를 인큐베이터로 다시 옮깁니다.
- 2일 차부터 6일 차까지, 격일로 배지의 절반을 교체합니다. 사용한 배지 1 mL를 조심스럽게 흡입하여 제거하고 신선한 TeSR-E8 (E8) 배지 1 mL를 첨가합니다.
참고: 배지를 부분적으로 교체하면 초기 리프로그래밍 과정을 지원하는 분비 자가분비 인자들이 보존됩니다. 느슨하게 부착되어 전이 중인 세포의 교란을 최소화하기 위해 웰의 가장자리부터 천천히 흡입하십시오. - 7일 차부터는 격일로 2 mL의 E8 배지를 사용하여 배지를 완전히 교체합니다.
- 매일 현미경으로 형태학적 변화를 관찰합니다. 10–14일 차경에 부분적으로 리프로그래밍된 자갈 모양의 클러스터가 나타날 것으로 예상됩니다.
참고: (선택 사항) 콜로니 형성이 원활하지 않은 경우, 9–15일 차 사이에 25–100 μM sodium butyrate를 배양액에 첨가합니다23. - 15일 차부터는 매일 E8 배지를 교체합니다.
- 18일 차경부터 각 웰을 매일 검사하여 진정한 iPSC 콜로니가 출현하는지 확인합니다. 0일 차 전기천공부터 콜로니 피킹까지의 리프로그래밍 워크플로우에 대한 전체 타임라인은 표 2에 제시되어 있습니다.
4. iPSC 콜로니의 기계적 피킹 및 확립된 iPSC 라인의 확장
참고: 아래의 형태학적 기준에 따라 실제 iPSC 콜로니를 재프로그래밍되었거나 재프로그래밍되지 않은 세포와 구별하십시오. 다음의 형태학적 특징을 바탕으로 "이상적인" 콜로니를 식별하십시오: (1) 경계 정의: 콜로니와 주변 양수 세포가 명확하게 구분되는 날카롭고 매끄러우며 원형인 가장자리를 확인하십시오. (2) 세포 밀도: 콜로니 내의 세포가 작고 조밀하게 배열되어 있으며, 뚜렷한 인을 가진 높은 핵-세포질 비율을 가지는지 확인하십시오. (3) 굴절률: 고품질의 콜로니는 위상차 현미경 하에서 밝고 굴절률이 높게 보입니다. (4) 평탄도: 콜로니는 3차원적인 "덩어리" 형태가 아니라 평평한 2차원 시트 형태로 성장해야 합니다. 부분적으로 재프로그래밍된 콜로니는 종종 실제 iPSC 콜로니보다 더 빨리 나타나며, 더 크고 두껍고 3차원적인 경향이 있습니다. 이러한 콜로니들은 피킹 및 계대 배양 시 자발적으로 분화합니다. "공포", 들쭉날쭉한 가장자리 또는 중앙 분화 징후가 보이는 콜로니는 피킹하지 마십시오.
- iPSC 콜로니의 기계적 선택 및 이동
- 10 μM Y-27632가 첨가된 E8 배지를 웰당 0.5 mL씩 넣어 Matrigel이 코팅된 24-웰 플레이트를 준비한다. 사용 전까지 37 °C로 유지한다.
- Class II 생물안전 작업대 내의 실체현미경 아래에 배양 플레이트를 놓는다. 플레이트를 시야 근처로 가져오기 전, 70% 에탄올로 실체현미경의 대물렌즈와 스테이지를 멸균한다.
- 올바른 형태(평평하고 조밀하며 경계가 뚜렷함)를 보이는 콜로니를 확인한다.
- 멸균된 10 μL 피펫 팁을 낮은 각도(수평면에서 약 30°)로 잡고, 선택한 콜로니의 주변을 가볍게 긁어 경계를 정한다. 콜로니의 직경 방향으로 평행하게 절개하여 콜로니를 약 3개의 파편으로 나눈다. 동일한 피펫 팁을 사용하여 콜로니 파편을 기질에서 가볍게 긁어 들어올린 후, 준비된 24-웰 플레이트의 한 웰로 파편을 이동시킨다.
- 각 콜로니에 대해 이 단계를 반복하며, 파편들을 서로 다른 웰에 배치한다.
- 24-웰 플레이트를 배양기에 넣는다. 파편이 부착될 수 있도록 24 h 동안 그대로 둔다.
- 선택 후 2일째부터 Y-27632가 없는 E8 배지로 매일 교체한다.
- 선택된 콜로니가 70–80% 합쳐질(confluence) 때까지(통상 3–6일 소요) 확장시킨 후, Accutase를 사용하여 계대 배양한다.
- 확립된 iPSC 라인의 계대 배양 및 확장
- iPSC가 포함된 웰에서 배지를 흡입하여 제거한다. 단층을 덮을 정도로 Accutase를 첨가한다. 상온에서 2–6 min 동안 배양한다. 현미경으로 콜로니 가장자리를 관찰하며, 세포가 떨어지기 시작하고 세포 사이에 틈이 생기는지 확인한다.
- Accutase 용액을 완전히 흡입하여 제거한다. 1 mL의 E8 배지 + 10 μM Y-27632를 첨가한다. P1000 피펫을 사용하여 배지를 콜로니 표면에 5–8회 가볍게 피펫팅하여 콜로니를 2–8개의 세포로 이루어진 작은 덩어리로 분리한다.
참고: iPSC를 과도하게 분리하면 생존율이 급격히 감소하므로 주의한다. 목표는 단일 세포 현탁액이 아니라 균일한 작은 덩어리를 만드는 것이다. - 분리된 덩어리를 1 mL의 E8 배지 + 10 μM Y-27632와 함께 Matrigel이 새로 코팅된 12-웰 플레이트에 고르게 옮긴다. 플레이트를 배양기에 넣는다.
- 매일 E8 배지로 교체한다(1일 이후에는 Y-27632 제외).
- 합쳐진 정도(confluence)에 따라 1:2에서 1:5의 분할 비율로 3–4일마다 계대 배양을 계속한다.
- 안정적인 에피좀 제거(episomal clearance)를 보장하기 위해, 하위 응용 단계에 적용하기 전 최소 10회 이상 계대 배양한다.
5. 이배체 iPSC 라인의 특성 분석
참고: 다능성, 핵형 무결성 및 에피솜 벡터 제거를 확인하기 위해 구축된 iPSC 라인(계대 10회 이상)에 대해 다음의 검증 분석을 수행하십시오.
- 다능성 마커 발현을 확인하십시오.
- 면역형광 염색, 유세포 분석 또는 두 방법을 모두 사용하여 핵심 다능성 마커의 발현을 검증하십시오. 예상 마커 프로필은 다음의 내용으로 요약되어 있습니다. 표 3.
참고: 면역형광 염색을 통해 다능성을 1차적으로 확인할 수 있으나, LIN28A, DPPA4, KLF4를 포함하여 다능성 관련 유전자 발현을 보다 광범위하게 평가하기 위해 RT-qPCR 및 RNA-seq 분석을 권장합니다.
- 면역형광 염색, 유세포 분석 또는 두 방법을 모두 사용하여 핵심 다능성 마커의 발현을 검증하십시오. 예상 마커 프로필은 다음의 내용으로 요약되어 있습니다. 표 3.
- G-banding을 이용한 핵형 분석
중요: 리프로그래밍은 일부 클론에서 삼염색체성 구조의 구제(trisomy rescue)를 유도할 수 있습니다. 이배체 유지 유도체와 정상배수체로 구제된 유도체를 모두 식별하기 위해 여러 클론(부모 세포주당 5~10개)을 스크리닝하십시오.- 합성도(confluence) 70%–80%인 계대 배양 10–15대의 iPSC를 수확하십시오.
- 추가하십시오 0.1 μg/mL 배양 배지에 colcemid를 첨가합니다. 다음 온도에서 배양합니다. 37 °C 세포를 중기(metaphase)에서 정지시키기 위해 2~4시간 동안 처리합니다.
주의: Colcemid는 유사분열 독성 물질입니다. 생물안전작업대(biosafety cabinet) 내에서 장갑을 착용하고 취급하십시오. Colcemid가 포함된 폐기물은 유해 물질로 처리하십시오. - Accutase 또는 그와 동등한 시약을 사용하여 세포를 단일 세포 현탁액으로 분리하십시오. 300에서 원심분리하십시오. × g 5분 동안.
- 펠릿을 5 mL의 예열된 저장액(0.075 M 염화칼륨)에 현탁하십시오. 다음 조건에서 배양하십시오. 37 °C 15~20분 동안.
- 완충 용액과 부드럽게 혼합하면서 갓 제조한 고정액(메탄올:아세트산, 부피비 3:1) 1 mL를 튜브에 추가하십시오. 300에서 원심 분리하십시오. × g 10분 동안.
- 상층액을 흡입하여 제거한다. 신선한 고정액 5mL를 첨가한다. 부드럽게 혼합하고 10분 동안 배양한다. 다시 원심분리한다.
- 고정 단계(단계 6)를 한 번 더 반복하여 총 3회 고정합니다.
- 마지막 원심분리 후, 적절한 세포 밀도를 맞추기 위해 펠릿을 0.5–1 mL의 신선한 고정액에 재현탁하십시오.
- 깨끗하고 젖어 있는 유리 슬라이드 위에 약 30cm 높이에서 세포 현탁액을 2~3방울 떨어뜨립니다. 이후 공기 중에서 건조시킵니다.
- 슬라이드를 다음 온도에서 베이킹하십시오. 80 °C 2시간 동안 또는 65 °C 염색체를 숙성시키기 위해 하룻밤 동안 방치합니다.
- G-banding을 수행한다: 슬라이드를 0.025% 트립신(trypsin) 용액으로 30~60초 동안 처리하고, 세척한 후, 5% Giemsa 용액으로 1~5분 동안 염색한다.
- 명시야 오일 침강 현미경(100배 대물렌즈) 하에서 클론당 최소 20개 이상의 잘 펼쳐진 중기 세포를 분석하십시오.× 목표)
- ISCN 명명법을 사용하여 핵형을 기록하십시오 (예: 여성 21번 삼염색체증의 경우 47,XX,+21; 터너 증후군의 경우 45,X).
참고: G-banded 핵형 분석은 주요 염색체 이상을 검출하지만 해상도에 한계가 있습니다. 미세한 유전적 변화를 식별하고 iPSC의 게놈 무결성을 확인하기 위해 복제수 변이(CNV) 분석, 전엑솜 시퀀싱(WES) 또는 전게놈 시퀀싱(WGS)과 같은 상보적 분석법이 권장됩니다.
- PCR을 통해 에피솜 벡터의 제거를 확인하십시오.
참고: 이 단계에서는 벡터 특이적 서열의 PCR 증폭을 통해 iPSC 라인에서 모든 에피솜 플라스미드가 소실되었음을 확인합니다.- 표준 컬럼 기반 추출 키트를 사용하여 iPSC(계代 수 ≥ 10) 및 형질전환되지 않은 대조군 AFC에서 게놈 DNA를 추출하십시오.
- 설치하십시오 25 μL PCR 반응. 다음의 사이클 조건 하에서 Orip/GAPDH 프라이머 쌍을 사용하여 PCR을 수행합니다 (94 °C 2분 동안 수행하며, 이어서 35회 반복합니다. 94 °C 30초 동안, 55 °C 30초 동안 수행하고, 72 °C 30초 동안; 최종 신장 단계는 72 °C (5분 동안). 모든 PCR 실행 시 양성 대조군(플라스미드 템플릿)과 음성 대조군(형질전환되지 않은 세포의 게놈 DNA)을 포함하십시오.
- 적절한 DNA 래더와 함께 2% 아가로스 겔에서 PCR 산물을 전기영동하여 분리하십시오.
- 결과 해석: 에피좀이 제거된 iPSC 라인에서는 544bp에서 증폭 밴드가 나타나지 않습니다. 양성 대조군은 예상 크기의 밴드가 나타나야 하며, 음성 대조군은 밴드가 나타나지 않아야 합니다.
- PCR을 이용한 마이코플라스마 검출
- 배지 교체 전, iPSC 배양액을 최소 24시간 동안 배양한 후 배양 상청액 0.5–1mL를 수집하고 12,000에서 원심분리합니다. × g 세포 잔해를 제거하기 위해 5분 동안 처리합니다.
- 제조업체의 지침에 따라, 정제된 상층액을 PCR Mycoplasma Detection Kit를 이용한 PCR의 템플릿으로 사용하십시오.
- 2% 아가로스 겔 전기영동으로 PCR 산물을 분리하십시오. iPSC 배양액이 마이코플라스마 음성임이 확인된 경우에만 후속 실험을 진행하십시오.
참고: 멸균 및 마이코플라스마 검사 결과가 기록된 인증 바이오뱅크로부터 부모의 AFC를 확보하지 않은 경우, 리프로그래밍 전 초기 품질 관리 단계로서 정기적인 마이코플라스마 스크리닝을 수행할 것을 강력히 권장합니다.
- 세 가지 계통 분화능 분석 (선택 사항)
- 확인되었습니다. 시험관 내(in vitro) 지향성 삼계통 분화(directed trilineage differentiation) 또는 배아체(embryoid body, EB) 형성을 통한 분화 능력을 평가하고, 이어서 배엽 특이적 마커 분석을 수행합니다. 또는 다음을 수행합니다. 생체 내(in vivo) 골드 표준 다능성 검증을 위한 면역결핍 쥐에서의 테라토마 형성.
참고: 상세한 테라토마 분석 또는 유도 분화 프로토콜은 출판된 표준 작업 지침서를 참조하십시오.24이러한 분석은 권장되나, 포괄적인 분석이 이루어진 경우에는 생략할 수 있습니다. 체외(in vitro) 마커 분석 및 기능적 분화 데이터가 제공됩니다.
- 확인되었습니다. 시험관 내(in vitro) 지향성 삼계통 분화(directed trilineage differentiation) 또는 배아체(embryoid body, EB) 형성을 통한 분화 능력을 평가하고, 이어서 배엽 특이적 마커 분석을 수행합니다. 또는 다음을 수행합니다. 생체 내(in vivo) 골드 표준 다능성 검증을 위한 면역결핍 쥐에서의 테라토마 형성.
6. 단일 세포 클론 유도 및 검증
참고: 각 iPSC 라인이 단일 세포에서 유래했는지 확인하기 위해 2단계 클론 검증 과정이 권장됩니다. 기계적 피킹 및 증식 후, 핵형 확인을 거쳐 2차 단일 세포 클론 시딩을 수행하는 것이 권장됩니다. 각 iPSC 라인이 단일 세포로부터 유래했음을 검증하는 것은 iPSC 생성의 필수 요구 사항입니다. 이를 통해 부모의 체세포 모자이시즘을 제거하고, 진단적 이배체 시그니처가 전체 집단에서 균일함을 확인할 수 있습니다.
- 단일 세포 시딩
- 핵형이 확인된 iPSC 콜로니를 37 °C에서 Accutase를 사용하여 2–6분 동안 해리하고 단일 세포 현탁액으로 재부유시킵니다.
- 분리된 단일 세포의 생존율을 극대화하기 위해 10 µM Y-27632가 첨가된 E8 배지를 사용합니다. 다음 방법 중 하나를 사용하여 단일 세포를 분주합니다:
- 한계 희석법: 현탁액을 100 µL당 0.5–1 세포 농도로 희석합니다. Matrigel이 코팅된 96-well 플레이트의 각 웰에 100 µL씩 시딩합니다.
- 형광 활성 세포 분류법(FACS): 생존한 단일 세포를 Matrigel이 코팅된 96-well 플레이트 웰에 직접 분류하여 넣습니다.
- 단일 클론성 검증 및 확장
- 초기 검사: 시딩 후 24–48시간에 고해상도 위상차 현미경을 사용하여 모든 웰을 검사합니다. 단일하게 명확히 정의된 부착 사건이 관찰되는 웰만 표시합니다. 여러 개의 클러스터가 있거나 세포가 없는 웰은 제외합니다.
- 콜로니 성장: 확인된 단일 세포를 처음 24시간 이후에는 ROCK 억제제가 없는 E8 배지에서 배양합니다.
- 순차적 확장: 단일 세포 유래 콜로니가 70% 합류도(confluence)에 도달하면, 96-well 플레이트에서 24-well, 12-well, 최종적으로 6-well 포맷으로 세포를 순차적으로 확장합니다.
참고: 세포 치료 연구의 경우, iPSC 라인의 계보 순수 상태를 증명하기 위해 분석 증명서(Certificate of Analysis)의 일부로 단일 세포 단계(0일 또는 1일 차)의 사진 증거가 종종 요구됩니다.
리프로그래밍 실패, 최적화되지 않은 콜로니 형성 및 iPSC 클론 확립 과정의 문제점에 대한 잠재적 원인과 실질적인 해결책이 Table 4에 요약되어 있습니다.
결과
리프로그래밍 중의 형태학적 진행 과정
일차 양수 세포는 E형 및 F형 세포를 포함하여 이질적인 형태를 나타냈습니다(그림 1A). 리프로그래밍을 위해서는 F형 세포를 증식시켜 사용해야 합니다. Epi5 에피소말 플라스미드를 AFC에 전기천공한 후, 특유의 형태학적 변화 과정이 관찰됩니다. 0일 차에 AFC는 전형적인 방추형의 섬유아세포 유사 형태를 보입니다. 3~5일 차가 되면 리프로그래밍의 첫 번째 형태학적 증거가 나타납니다. 중간엽 세포 집단 내에 상피 유사 세포의 작은 클러스터가 출현하며, 이는 MET의 시작을 의미합니다. 이러한 전이 세포들은 주변의 중간엽 세포보다 크기가 더 작고 조밀합니다. 7~10일 차 사이에는 세포 클러스터의 응집도가 증가하며, 이는 전형적인 상피 형태로의 전환을 반영합니다. 완전히 리프로그래밍된 iPSC 콜로니는 14~16일 차 사이에 나타나기 시작합니다. 21~25일 차가 되면 성숙한 iPSC 콜로니를 피킹할 준비가 됩니다(그림 1B). DNA 전달 효율을 평가하기 위해 리프로그래밍 플라스미드와 함께 pCE-GFP 플라스미드를 병행하여 전기천공하였습니다(그림 1C). GFP 발현은 초기 배양 과정 중 전기천공의 성공 여부와 플라스미드 유지 상태를 확인하는 시각적 지표로 사용할 수 있습니다.
완전하게 리프로그래밍된 iPSC 콜로니와 부분적 리프로그래밍의 구별
본 프로토콜에서 중요한 기술은 완전히 재프로그래밍된 iPSC 콜로니와 부분적으로 재프로그래밍된 콜로니를 구별하는 능력입니다. 후자를 선택할 경우 안정적인 iPSC 라인 구축에 실패하기 때문입니다. 표 5는 이 두 콜로니 유형 간의 주요 형태학적 및 분자적 차이점을 요약하여 보여줍니다.
그림 2는 나란히 비교한 모습을 보여줍니다. 부분적으로 리프로그래밍된 세포는 종종 명확한 경계가 없는 느슨한 응집체를 형성합니다. 이러한 클러스터는 어느 정도의 압축을 보일 수 있으나, 일반적으로 중간엽 특성을 유지하거나 불규칙하고 "퍼지(fuzzy)"한 가장자리를 나타내며, 이는 불완전한 후성유전적 리셋을 의미합니다(그림 2, 왼쪽). 1차 리프로그래밍 과정에서 전형적인 iPSC 유사 형태를 가진 콜로니 내에 자발적 분화 영역이 포함될 수 있습니다(그림 2, 가운데). 형태학적으로 정의된 미분화 영역을 수동으로 선택하여 추가 배양을 위해 피킹할 수 있습니다. 성공적으로 확립된 iPSC 라인은 높은 핵-세포질 비율, 뚜렷한 인, 그리고 매우 밀접한 세포 간 결합을 특징으로 하는 전형적인 조밀한 다능성 형태를 보여야 합니다(그림 2, 오른쪽).
일반적으로 1–2 × 10⁶ AFC를 이용한 전기천공법으로 리프로그래밍한 후 수십에서 수백 개의 콜로니가 관찰되었습니다. 각 AFC 라인에서 24개의 단일 콜로니를 수동으로 분리하였으며, 그 결과 1-9개의 확장 가능한 iPSC 클론을 얻었습니다(표 1).
다능성 마커 검증
확립된 iPSC 라인은 모든 다능성 마커를 발현해야 합니다. 그림 3은 계대 배양 15대에서의 클라인펠터 증후군(47,XXY) 이배체 iPSC 라인에 대한 대표적인 면역형광 및 FACS 결과입니다. 핵 마커인 OCT4, NANOG, SOX2는 콜로니 전반에 걸쳐 균일한 발현을 보이며, 세포 표면 마커인 TRA-1-60은 특징적인 링 형태의 막 염색을 나타냅니다(그림 3A). FACS 분석을 통해 SSEA-4와 TRA-1-81의 높은 발현 수준을 추가로 정량화하였습니다(그림 3B). 이러한 발현 패턴은 진성 다능성 줄기세포의 확립된 기준과 일치하며, 이는 이배체성이 마커 수준에서의 다능성 획득을 저해하지 않음을 확인해 줍니다.
이배체 iPSC의 핵형 확인
이배수성 양수 세포에서 유도된 모든 iPSC 클론에 대해 G-banding 핵형 분석이 필수적입니다. 그림 4는 대표적인 핵형 분석 결과를 보여줍니다.
양성 핵형 결과는 최소 20개의 중기 분열상에서 기대했던 이배체 핵형이 확인된 iPSC 클론의 식별을 의미합니다. 음성 결과는 이배체 기원으로부터 유배체 클론(46,XX 또는 46,XY)만이 발견되는 경우를 말하며, 이는 iPSC 생성 프로토콜의 성공은 확인해주지만 완전한 삼염색체 구제(trisomy rescue)가 일어났음을 나타내므로, 이배체 상태가 유지된 세포주를 얻기 위해 단일 세포 클론 유도 또는 리프로그래밍을 반복해야 합니다.
에피좀 벡터 제거 확인
에피좀 벡터는 계대 배양 과정에서 점진적으로 희석되며, 대부분의 확립된 iPSC 라인에서 장기 배양 후에는 검출되지 않습니다.8,25,26,27외인성 벡터의 제거는 비통합형 리프로그래밍 접근법의 특징입니다. 양성 결과(에피좀 제거 확인)는 계대 배양 10세대 이후에 oriP(544 bp) 증폭 밴드가 나타나지 않는 것입니다. 음성 결과(불완전한 제거)는 10세대에서도 밴드가 지속적으로 나타나는 것이며, 이는 일반적으로 계대 배양을 계속 진행하면 15~20세대 사이에 해결됩니다. GAPDH 증폭은 게놈 DNA의 무결성과 성공적인 PCR 증폭을 확인하기 위한 내부 대조군으로 사용되었습니다.그림 5A). 계대 배양 20회 이후에도 에피좀 벡터(episomal vector)가 지속적으로 검출되는 드문 사례는 게놈 통합(genomic integration) 사건이 발생했음을 나타낼 수 있으며, 이 경우 해당 클론은 폐기해야 합니다. 생성된 이배체 iPSC 라인의 생물학적 안전성과 실험적 무결성을 보장하기 위해, PCR 기반의 마이코플라스마(mycoplasma) 오염 스크리닝을 강력히 권장합니다. 유지 관리되는 모든 단일 클론 라인의 세포 배양 상층액을 수집하여 분석해야 합니다. ~을 통해 마이코플라스마 특이적 프라이머를 이용한 PCR. 양성 반응을 보이는 단일클론 균주(예: Clone #7 및 #9)는 즉시 폐기해야 합니다.그림 5B).
In vitro 삼분화 분화능
삼배엽 분화 능력의 확인은 iPSC 라인을 검증하기 위한 필수 기준입니다. 그림 6 의 대표적인 결과를 보여줍니다 시험관 내 (in vitro) 18번 삼염색체성 iPSC 라인의 배아체 분화. PAX6(외배엽), T-Brachyury 및 TBX6(중배엽), GATA6 및 SOX17(내배엽)의 발현은 이배수성 iPSC가 세 가지 배엽 모두로 분화할 수 있는 능력이 있음을 확인시켜 줍니다.그림 6).
단일 세포 클론 유도 및 검증
고충실도 이배체 iPSC 모델을 구축하기 위해, 세포 이질성을 최소화하고 잠재적인 키메리즘을 배제하고자 2단계의 단일 세포 유래 및 검증 워크플로우를 시행하였습니다. 초기 증식 후, 핵형이 정상인 클론을 해리하여 단일 세포 밀도로 다시 파종하였습니다. 24–48시간 후 현미경 검사를 통해 단일 세포 유래 부착 사건의 존재를 확인하였으며, 이를 이후 증식시켜 검증된 단일 클론 라인을 구축하였습니다(그림 7A).
양성 결과는 96-웰 플레이트 내의 단일 세포로부터 단일 콜로니가 성공적으로 확장된 상태를 의미하며, 매일 현미경으로 모니터링하여 웰당 하나의 콜로니만 존재함을 확인합니다(그림 7B). 확장 후, 핵형 및 다능성 마커의 재확인 결과가 원래의 클론과 일치해야 합니다. 음성 결과는 웰당 여러 개의 콜로니가 관찰되거나 단일 세포가 생존 및 확장하는 데 실패한 경우입니다.
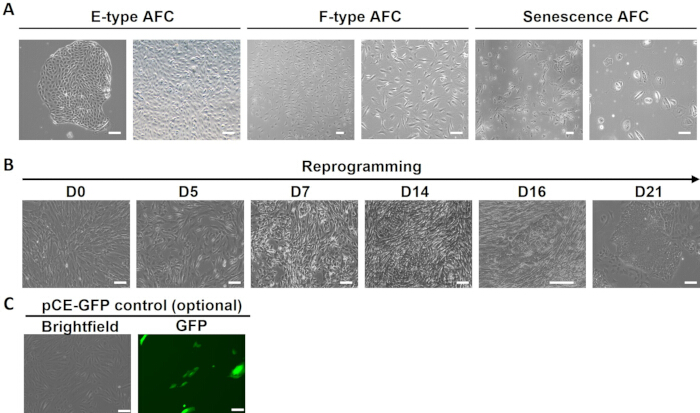
그림 1: Epi5 에피소말 플라스미드를 이용한 양수 세포 리프로그래밍의 형태학적 진행. 다양한 유형의 일차 AFC 및 주요 시점별 리프로그래밍 과정의 형태를 보여주는 대표 이미지. (A) 출발 물질의 세 가지 주요 형태를 보여주는 위상차 이미지: 상피 유사(E-type), 섬유아세포 유사(F-type) 및 노화된 AFC. (B) 0일차부터 21일차까지의 리프로그래밍 과정의 대표적 시계열 이미지로, 일차 AFC에서 조밀한 iPSC 유사 콜로니의 출현까지의 전이 과정을 보여줌. 0일차: 전기천공 전의 AF-MSC로, 전형적인 방추형 중간엽 형태를 나타냄. 3–5일차: 초기 MET 단계; 잔류 중간엽 세포들 사이에 상피 유사 세포들이 군집 형태로 나타남. 7–10일차: 일차 리프로그래밍 세포가 출현함. 14–16일차: 조약돌 모양의 형태를 띠나 경계가 불분명한 일차 리프로그래밍 콜로니(MET 콜로니). 21–25일차: 편평하고 조밀하게 밀집된 세포, 뚜렷한 경계, 높은 핵-질 비율 및 두드러진 핵소체를 가진 완전히 리프로그래밍된 iPSC 콜로니가 출현함. (C) pCE-GFP를 이용한 AFC 전기천공 후 GFP 발현을 보여주는 대표 형광 이미지. 스케일 바는 100 µm를 나타냄. 여기에서 이 그림의 더 큰 버전을 확인하십시오.
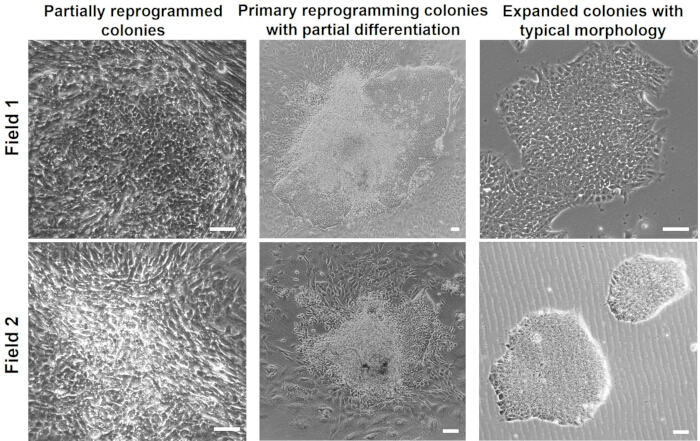
그림 2: 완전히 재프로그래밍된 콜로니와 부분적으로 재프로그래밍된 콜로니의 비교. 왼쪽: 느슨한 응집체와 불규칙한 경계를 보이는 부분적으로 재프로그래밍된 콜로니. 중앙: 자발적 분화 영역이 동반된 전형적인 iPSC 유사 영역을 가진 일차 재프로그래밍 콜로니. 오른쪽: 전형적인 iPSC 형태를 가진 확장된 콜로니. 스케일 바, 100 µm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
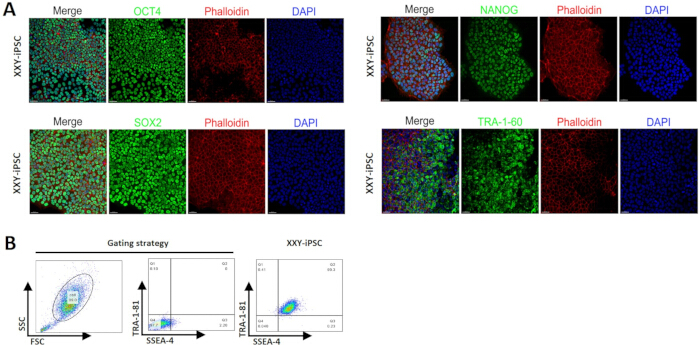
그림 3: 이배수성 iPSC의 다능성 마커 면역형광 분석. (A) OCT4, SOX2, NANOG 및 TRA-1-60(녹색)을 포함한 핵심 다능성 마커에 대한 XXY-iPSC의 면역형광 염색. 세포골격 구조는 Phalloidin(적색)으로, 핵은 DAPI(청색)로 시각화하였다. 스케일 바는 50 µm를 나타낸다. (B) XXY-iPSC 라인에서 SSEA-4 및 TRA-1-81의 게이팅 전략과 정량적 발현을 보여주는 유세포 분석(FACS) 결과. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
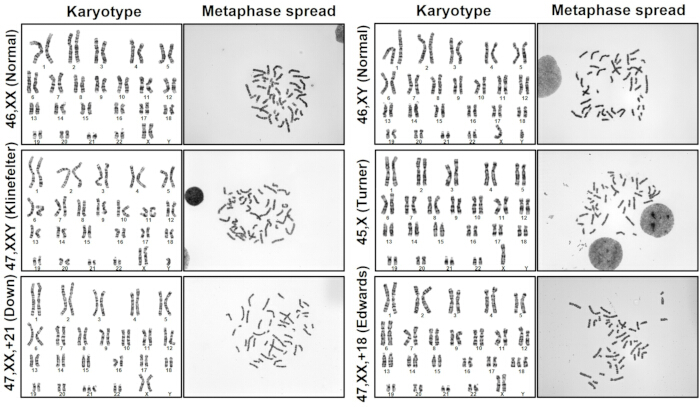
그림 4이배체 iPSC 라인의 G-밴딩 핵형 분석. 생성된 세포주에서 염색체 이상이 안정적으로 유지됨을 확인하는 G-밴딩 핵형 분석 및 그에 해당하는 중기 세포 분산도. 분석 대상으로는 46,XX(정상 여성), 46,XY(정상 남성), 47,XXY(클라인펠터 증후군), 45,X(터너 증후군), 47,XX,+21(다운 증후군) 및 47,XX,+18(에드워즈 증후군)이 포함됨. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
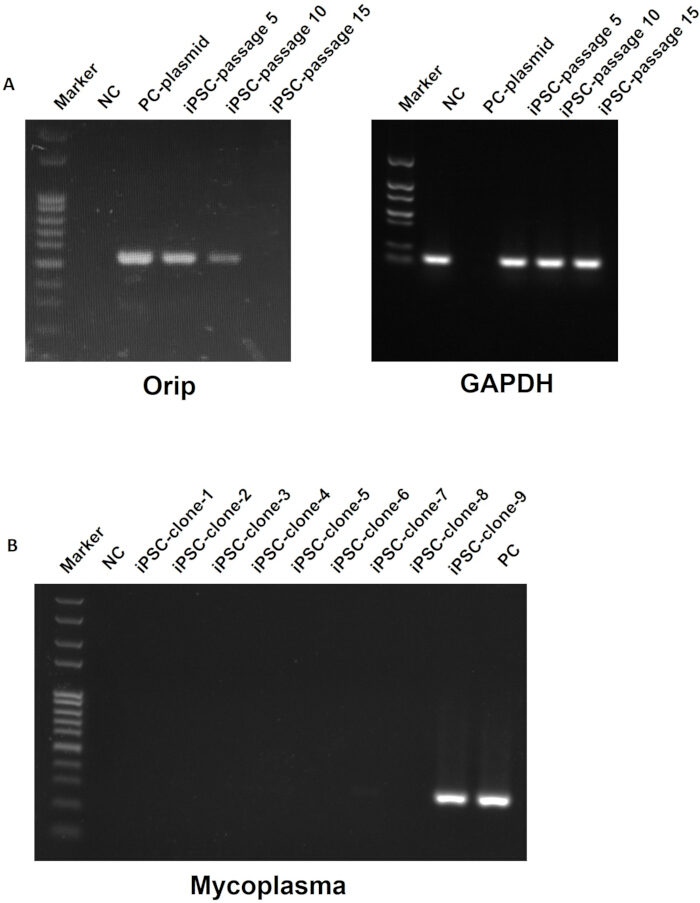
그림 5: 이배체 iPSC 라인에서 에피솜 벡터 제거 및 마이코플라즈마 검사의 PCR 기반 검출. oriP/GAPDH 또는 마이코플라즈마 프라이머 세트로 증폭한 PCR 생성물의 아가로스 겔 전기영동 (2%). (A) 다양한 계대 배양 단계에서의 iPSC 클론 내 전체 벡터 제거 확인. (B) 9개의 독립적인 클론에 대한 마이코플라즈마 오염의 PCR 기반 검출. 클론 #7 (희미함) 및 #9 (강함)에서 마이코플라즈마 오염이 나타났으며, 이는 폐기해야 함. PC, 양성 대조군; NC, 음성 대조군. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
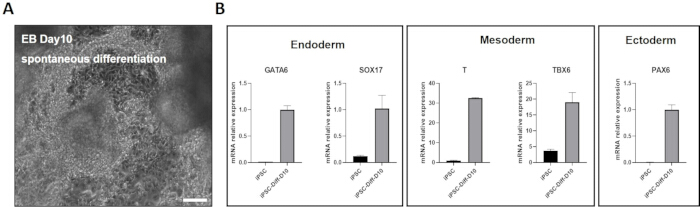
그림 6: 이배체 iPSC의 In vitro 삼계통 분화. (A) 젤라틴 코팅 표면에 부착 후 자발적 분화 과정 중 10일차 배아체(EB)의 형태를 보여주는 위상차 현미경 사진. 스케일 바는 100 µm를 나타냄. (B) 다능성 종료 및 후속 계통 결정의 정량적 분석을 위한 RT-qPCR 분석. 결과는 미분화 iPSC와 비교하여 10일차에 세 가지 배아 세포층의 주요 마커 mRNA 상대적 발현이 유의하게 증가했음을 보여줌: 내배엽 (GATA6, SOX17), 중배엽 (T, TBX6), 그리고 외배엽 (PAX6). 데이터는 평균 ± SD로 표시됨. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
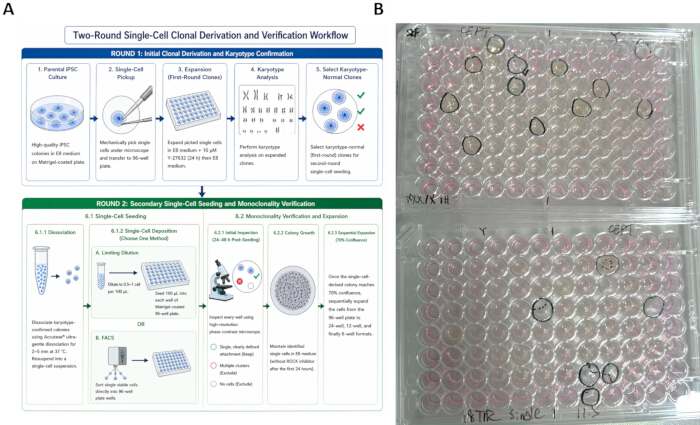
그림 7이배체 iPSC 라인을 위한 단일 세포 클론 유도 워크플로. (A) 라운드 1(초기 유도 및 핵형 확인)과 라운드 2(2차 단일 세포 파종)를 나타내는 도식적 워크플로 ~을 통해 단일 클론성 확보를 위한 한계 희석법 또는 FACS 기반의 클론 검증 과정. 1단계: 개별 iPSC 콜로니의 기계적 피킹, 6-웰 플레이트로의 확장 및 핵형 검증. 2단계: 핵형이 확인된 이배체 클론에 대해, 단일 세포 유래의 클론성을 보장하기 위해 한계 희석법 또는 FACS를 이용하여 96-웰 플레이트에 단일 세포를 시딩함. 단일 콜로니가 성장한 웰만 확장함. (B) 클론 증식 단계의 96-웰 플레이트 대표 이미지이며, 순차적 증식을 위해 성공적으로 식별된 단일 세포 유래 콜로니에 원형으로 표시하였다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
| 유전적 배경 | 핵형 | 테스트한 AFC 라인 수 | 리프로그래밍 후 분리한 단일 콜로니 수 | 성공적으로 확립된 iPSC 클론 수 |
| 21번 삼염색체성 | 47,XX,+21 | 2 | 48 | 9 |
| 18번 삼염색체성 | 47,XX,+18 | 1 | 24 | 8 |
| 클라인펠터 증후군 | 47,XXY | 2 | 48 | 6 |
| X 단염색체성 | 45,X | 1 | 24 | 1 |
| 정상 여성 | 46,XX | 1 | 24 | 2 |
| 정상 남성 | 46,XY | 2 | 48 | 6 |
| 단일 콜로니는 리프로그래밍 후 콜로니 형태를 기반으로 수동으로 분리되었으며, 추가 특성 분석을 위해 확장 배양되었습니다. 성공적으로 확립된 iPSC 클론 수는 분리 후 확장 및 유지가 가능했던 콜로니 수를 나타냅니다. | ||||
표 1: 체세포 리프로그래밍에 사용된 AFC 세포주의 상세 정보.
| 일차 | 배지 조성 | 주요 관찰 사항 |
| 0 | 항생제가 없는 FC medium + Y27632 | 전기천공법 |
| 1 | FC medium | 생존 세포의 회복 시작 |
| 2 – 6 | FC에서 E8로 (부분 교체) | MET 시작; 세포가 조밀해짐; 작고 더 둥근 세포들이 군집 형태로 나타남 |
| 7 – 8 | E8 (격일로 전체 교체) | 초기 콜로니 형성 |
| 9 – 14 (선택 사항) | E8 (+ 25 μM NaB) | 경계가 불분명한 자갈 모양의 군집; 크기가 다양함 |
| 15-18 | E8 (매일 교체) | 진정한 iPSC 콜로니 출현 (18–25일차); 경계가 뚜렷하고 조밀하게 뭉쳐 있으며 핵-세포질 비율이 높은 편평한 콜로니 |
| 19 – 25 | E8 (매일 교체) | 콜로니 직경이 400 μm 초과; 균일하고 편평한 형태; 피킹 가능 상태 |
표 2: 0일차부터 콜로니 피킹까지의 전체 리프로그래밍 일정 요약.
| 마커 | 세포 내 위치 | 검출 방법 |
| OCT4 | 핵 | 면역형광법 / 유세포 분석법 |
| NANOG | 핵 | 면역형광법 / 유세포 분석법 |
| SOX2 | 핵 | 면역형광법 / 유세포 분석법 |
| SSEA-4 | 세포 표면 | 면역형광법 / 유세포 분석법 |
| TRA-1-60 | 세포 표면 | 유세포 분석법 / 살아있는 세포 염색 |
| TRA-1-81 | 세포 표면 | 유세포 분석법 / 살아있는 세포 염색 |
표 3: 확립된 iPSC 클론의 예상 다능성 마커 발현 프로파일.
| 문제 | 가능한 원인 | 용액 |
| 낮은 세포 생존율(< 전기천공법 이후 (40%) | 1. 해당 세포주에 대해 펄스 파라미터가 너무 강함 | 1. 더 완만한 파라미터를 테스트하십시오. |
| 2. 세포가 과밀하게 성장하였습니다 (> 90%) | 2. 0일 차에 75~90%의 합류도(confluence)를 유지하십시오. | |
| 3. 공기 방울로 인한 아크 발생 | 3. 천천히 흡입하고, 펄싱(pulsing) 전에 팁에 기포가 있는지 확인하십시오. | |
| 4. 분해되었거나 잘못된 재현탁 완충액 | 4. 키트에 포함된 신선한 Buffer R을 사용하십시오. | |
| 5. 전기천공법 실시 전 세포 품질 저하 | 5. 형태가 건강한 P3-P5 세포만을 사용하십시오. | |
| 25일 차까지 iPSC 콜로니가 관찰되지 않음 | 1. 배지가 비활성 상태였습니다. | 1. 새로 제조한 E8을 사용하십시오. NaB를 25–100 μM 9일 차부터 14일 차까지 |
| 2. 플라스미드 DNA 분해 또는 부적절한 해동 | 2. 아가로스 겔에서 플라스미드 무결성 확인 | |
| 3. 분화된 세포의 과성장으로 인한 오염 | 3. 분화된 부위가 퍼지기 전에 수동으로 제거하고, 세포 밀도를 낮추기 위해 세포를 계대 배양한다. | |
| 4. 매트릭스 코팅 실패 또는 저하 | 4. 코팅액을 새로 조제하여 얼음 위에 보관하십시오. | |
| iPSC 콜로니는 피킹 후 자발적으로 분화합니다. | 1. 콜로니를 너무 일찍(18일 이전) 선택함 | 1. 콜로니가 생성될 때까지 대기합니다. > 400 μm 성숙한 편평한 형태를 가진 |
| 2. 매트릭스 코팅 부족 또는 퇴화 | 2. 코팅 상태가 최신인지 확인하십시오. 사용 전까지 건조되지 않도록 하십시오. | |
| 3. ROCK 억제제 없이 단일 세포로 계대 배양함 | 3. 계대 배양 후 처음 24시간 동안은 항상 Y-27632를 사용하십시오. | |
| 핵형 분석 결과 예상된 이배성으로의 변화(삼염색체성 구조의 회복)가 나타남 | 1. 리프로그래밍 과정의 내재적 특성인 자발적 염색체 소실 | 1. 라인당 다수의 클론(≥ 5~10개)을 스크리닝하며, 회복된 클론은 동형 접합 배수체 대조군으로 사용합니다. |
| 2. 후기 계대 시작 세포의 더 높은 구조 가능성 | 2. 형태가 건강한 P3-P5 세포만 사용하십시오. | |
| PCR을 이용한 후기 계대(P10+)의 에피솜 서열 검출 | 1. 리프로그래밍 이후 계대 배양 부족 | 1. P15–P20까지 계대 배양을 지속하고, PCR로 재검사하십시오. |
| 2. EBNA-1 발현 지속 유지 플라스미드 | 2. 장기 배양 시 보통 해결됩니다; 5배양(passage)마다 모니터링하십시오. | |
| 3. prep 과정 중 잔류 플라스미드 오염으로 인한 위양성 | 3. 적절한 음성 대조군을 포함시키고, 컬럼 기반의 DNA 정제법을 사용하십시오. | |
| 전기천공법 펄스 도중의 아크/스파크 발생 | 1. 팁 내부에 갇힌 기포 | 1. 혼합물을 천천히 흡입하고, 로딩 전 튜브를 가볍게 두드려 기포를 제거하십시오. |
| 2. DNA 시료 내 고농도의 염 | 2. 엔도톡신 제거 플라스미드 조제물을 사용하십시오. | |
| 3. 세포 잔해로 인한 팁 오리피스 막힘 | 3. 세포 현탁액을 다음을 통해 여과한다. 40 μm 셀 스트레이너 | |
| 4. 팁이 손상되었거나 허용 한도를 초과하여 재사용됨 | 4. 각 팁은 최대 2회까지만 사용하며, 손상 여부를 확인하십시오. |
표 4: AFC 리프로그래밍 및 iPSC 클론 확립 중 발생하는 일반적인 문제에 대한 문제 해결 가이드.
| 특징 | 부분적으로 리프로그래밍된 콜로니 | 완전하게 리프로그래밍된 iPSC 콜로니 |
| 출현 시간 | 초기에 나타남 (7~10일 차) | 가변적이며, 일반적으로 나중에 나타남 (14~18일 차) |
| 콜로니 경계 | 불규칙한 가장자리 | 선명하고 뚜렷한 경계 |
| 세포 형태학 | 더 큰 세포들, 불균질함 | 작고 균일하며, 핵-세포질 비율이 높음 |
| 세포 패킹 | 느슨하게 채운 | 조밀하게 배열된, 자갈 모양의 |
| 인(Nucleoli) | 눈에 띄지 않는 | 뚜렷한 인 |
| 다능성 마커 | 음성 또는 약함/국소적 | 강하고 균일한 |
| 콜로니 안정성 | 계대 배양 시 퇴화 또는 분화 | 안정적이며 확장 가능한 |
표 5: 완전하게 역분화된 세포의 구별 특징 대비부분적으로 리프로그래밍된 콜로니.
토론
본 프로토콜은 에피솜 플라스미드 전달 방식을 이용하여 양수 세포로부터 비통합형, 무피더(feeder-free) 방식으로 이배체성(aneuploid) 인간 유도만능줄기세포(iPSCs)를 생성하는 방법을 설명합니다. ~을 통해 / ~을 경유하여 전기천공법. 리프로그래밍의 성공 여부는 몇 가지 결정적인 단계에 의해 결정됩니다. 우선, 시작 단계의 AFC 집단의 품질이 무엇보다 중요합니다. 임상 세포유전학 실험실에서 AFC는 일반적으로 다음과 같은 목적의 배지에서 증식시킵니다. 장기 배양보다는 산전 핵형 분석을 위해 세포 증식을 가속화하는 방식이 사용됩니다. 이러한 방식이 이후의 iPSC 생성 효율에 미치는 영향은 아직 완전히 밝혀지지 않았습니다. 따라서 시료 준비 과정에서 배지 조성을 고려해야 하며, 전기천공법(electroporation) 전 최적의 세포 품질을 확보하기 위해 해동 후 계代(passage) 수가 낮고 증식력이 높은 양수 세포(AFC) 집단을 농축해야 합니다. 둘째, 세포 생존력을 유지하면서 DNA 전달을 극대화할 수 있도록 전기천공 조건을 최적화해야 합니다. 본 프로토콜에서는 1200V, 20ms, 2회 펄스로 전기천공을 수행했을 때 일관되게 만족스러운 형질전환 효율과 재현성 있는 콜로니 형성이 나타났습니다. 개별 공여자 시료에 따라 때때로 미세한 최적화가 필요할 수 있습니다. 전기천공 후 첫 24~48시간 동안 발생하는 과도한 세포 사멸은 주로 초기 세포 품질 저하, 전기천공 완충액으로 재현탁 전 잔류 배지의 불완전한 제거, 또는 전기천공 과정 중의 과도한 조작 시간과 관련이 있습니다. 셋째, 콜로니 피킹(colony picking) 시점이 매우 중요합니다. 14일 이전에 나타나는 콜로니는 대개 부분적으로만 리프로그래밍된 상태이며, 진정한 iPSC 콜로니는 15일에서 25일 사이에 나타나며 경계가 명확하고 평평하며 조밀한 특유의 형태를 보입니다. 콜로니 출현 후 발생하는 자발적 분화는 주로 너무 이른 콜로니 피킹, 배지 교체 지연 또는 과도한 콜로니 밀도로 인해 발생하며, 적절한 시기에 콜로니를 피킹하는 것이 콜로니 품질 유지에 도움이 됩니다. 또한, 리프로그래밍 효율이 비교적 낮은 AFC 라인의 경우 9일에서 15일 사이에 선택적 최적화 단계로 소듐 부티레이트(sodium butyrate)를 추가할 수 있습니다.23마지막으로, 단일 세포 클로닝 ~을 통해 초기 핵형 확인 후, 클론 유래를 보장하기 위해 한계 희석법(limiting dilution)이나 FACS를 이용하여 96-웰 플레이트에 분주하는 과정이 필요합니다.
재프로그래밍에서 p53의 역할은 방법론에 따라 다릅니다. OSKM 기반의 에피좀 재프로그래밍에서는 일시적인 p53 억제가 초기 스트레스 반응 동안 세포 생존을 높이고 MET를 촉진하는 반면27, 화학적 재프로그래밍에서 p53은 게놈의 보호 장치 역할을 합니다28. 희귀 임상 샘플에 대한 전기천공법 기반 OSKM 재프로그래밍의 효율성을 고려할 때, 이 접근 방식은 여전히 가치가 있습니다. 잠재적인 게놈 위험을 최소화하기 위해, 확립된 iPSC 라인은 하위 응용 단계 이전에 정기적인 핵형 분석과 적절한 경우 CNV 분석 및 WES/WGS를 거쳐야 합니다.
이배체(aneuploid) iPSC 생성 시 특히 중요한 제한 사항은 리프로그래밍 과정 중에 발생하는 삼체성 구제(trisomy rescue) 현상입니다. Akutsu 등29은 구제 빈도가 염색체 유형에 따라 크게 다르다는 것을 입증했습니다. 이러한 변동성은 특정 이배체성의 경우, 원래의 염색체 이상이 유지된 클론을 식별하기 위해 핵형 분석을 통해 수많은 클론을 스크리닝해야 함을 의미합니다. 반대로, 동일한 현상을 이용하여 동일한 리프로그래밍 실험에서 동종 유전자 euploid 대조군 라인을 생성할 수 있으며, 이는 이배체 특이적 표현형을 연구하는 데 강력한 내부 대조군을 제공합니다.
본 프로토콜은 잔여 산전 진단 검체를 이용하여 환자 특이적 이배체 iPSC 라인을 구축하기 위한 강력하고 재현 가능한 플랫폼을 제공합니다. 이러한 세포 라인은 염색체 생물학, 발달 기전, 질환 모델링, 기능 유전체학, 게놈 편집 연구 및 질환 관련 세포 유형으로의 유도 분화 후 고속 약물 스크리닝 연구에 적용될 수 있습니다. 재생 의학 분야에서, 외래유전자가 도입되지 않은(transgene-free) iPSC는 향후 임상 적용을 위한 안전 요구 사항을 충족합니다. 본 프로토콜은 표준화되고 재현 가능한 워크플로우를 제공함으로써, 이러한 다양한 응용 분야에서 이배체 iPSC 기술의 광범위한 도입을 촉진합니다.
공개 사항
저자들은 상충하는 재정적 이해관계가 없음을 선언합니다. 그림 7A의 도식적 일러스트레이션은 AI 보조 도구를 사용하여 생성되었으며, 이후 저자들에 의해 검토 및 수정되었습니다.
감사의 글
본 연구는 중국 국가핵심연구개발계획(Grant No. 2022YFA0913300)과 베이징 대학 제3병원 임상 핵심 프로젝트(Grant No. BYSY2022054, Jianying Guo 지원)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.25% Trypsin-EDTA | Thermo Fisher (Gibco) | 25200056 | AFC 계대 배양을 위한 세포 해리 |
| 100bp Plus II DNA Ladder | TransGen Biotech | BM321-01 | DNA Ladder |
| -80 °C 냉동고 | Thermo Fisher | FDE60086fv | 플라스미드 DNA 및 시료의 장기 보관 |
| Accutase 세포 분리 용액 | StemCell Technologies | 07920 | iPSC를 작은 덩어리 형태로 부드럽게 해리 |
| 아세트산 (빙초산) | Sigma-Aldrich | 338826 | 핵형 분석용 고정액 성분 (MeOH:AcOH 3:1) |
| 아가로스 | Sigma-Aldrich | A9539 | PCR 생성물 전기영동용 (2%) |
| AmnioType-1 배지 | VivaCell BIOSCIENCES | C3620-0100 | 일차 AFC 배양 배지 |
| 자동 세포 카운터 / 혈구계수기 | Countstar | TC20 | 트리판 블루 배제법을 이용한 생존 세포 수 측정 |
| 명시야 현미경 (100x 오일) | Zeiss | Axiovert5 | 핵형 분석을 위한 중기 분산 분석 |
| 원심분리기 (스윙 버킷 로터) | Eppendorf | 5810R | 300 x g에서 세포 펠렛 형성 |
| II등급 생물안전 작업대 | ESCO | AC2-4S8-CN | 모든 세포 배양 작업을 위한 멸균 작업 공간 |
| CO2 배양기 (가습형) | There scientific | 3131 | 37 °C, 5% CO2 환경 유지 |
| Colcemid (10 ug/mL) | Capricorn scientific | COL-H | 핵형 분석을 위한 중기 정지 (0.1 ug/mL, 2-4 h) |
| CryoStor CS10 세포 동결 배지 | STEMCELL Technologies | 07959 | 세포 동결 배지 |
| DAPI | Merck Millipor | 10236276001 | 핵 염색 |
| DMEM (고농도 포도당) | Thermo Fisher (Gibco) | 11965092 | 섬유아세포 배양(FC) 배지의 기본 성분 |
| DMEM/F-12 | Thermo Fisher (Gibco) | 11330032 | Matrigel 희석 버퍼 (1:200) |
| Ca2+/Mg2+ 무첨가 DPBS | Thermo Fisher (Gibco) | 14190250 | 세척 버퍼 |
| 에피좀 플라스미드 (pCE-GFP) | Addgene | #41858 | 비통합형 리프로그래밍 벡터 (GFP 대조군) |
| 에피좀 플라스미드 (pCXLE-hOCT3/4-shp53-F) | Addgene | #27077 | 비통합형 리프로그래밍 벡터 (OCT4 + shp53) |
| 에피좀 플라스미드 (pCXLE-hSK) | Addgene | #27078 | 비통합형 리프로그래밍 벡터 (SOX2 + KLF4) |
| 에피좀 플라스미드 (pCXLE-hUL) | Addgene | #27080 | 비통합형 리프로그래밍 벡터 (L-MYC + LIN28) |
| 소태아 혈청 (FBS) | HyClone | SH30071.03 | AFC 증식을 위한 혈청 보충제 (FC 배지, 15%) |
| 형광 현미경 | Leica | Sp8 | TRA-1-60/81 생존 염색 및 면역형광 시각화 |
| 겔 전기영동 시스템 | Bio-Rad | 164-5056 | PCR 생성물의 아가로스 겔 분석 |
| 젤라틴 (0.1%) | Sigma-Aldrich | G1393 | AFC 부착을 위한 배양 용기 코팅 |
| 게놈 DNA 추출 키트 | TIANGEN | 4992199 | iPSC로부터 PCR-grade DNA 분리 |
| Giemsa 염색액 | Sigma-Aldrich | GS500 | 염색체 G-banding 염색 (5%) |
| GlutaMAX (100x) | Thermo Fisher (Gibco) | 35050061 | FC 배지용 보충제 |
| 도립 위상차 현미경 | Zeiss | Axiovert5 | 배양 상태 및 콜로니 형태의 일일 모니터링 |
| 액체 질소 저장 탱크 | Thermo Scientific | CY50985 | 세포 냉동 보존 |
| Matrigel 기저막 매트릭스 | Corning | 354230 | iPSC 부착을 위한 배양 용기 코팅 |
| 메탄올 (무수) | Sigma-Aldrich | 34860 | 핵형 분석용 고정액 성분 (MeOH:AcOH 3:1) |
| NANOG 항체 (Rabbit) | Abcam | ab109250 | 면역형광; 핵 다능성 마커 |
| Neon NxT 전기천공 키트 (100 uL) | Thermo Fisher (Invitrogen) | N10025 | 전기천공; 버퍼 R, T, E 및 100 uL 팁 포함 |
| Neon NxT 전기천공 시스템 | Thermo Fisher (Invitrogen) | NEON18S | 전기천공을 통한 에피좀 플라스미드 전달 |
| 비필수 아미노산 (NEAA, 100x) | Thermo Fisher (Gibco) | 11140050 | FC 배지용 보충제 |
| OCT4 항체 (Rabbit) | Abclonal | A7920 | 면역형광; 핵 다능성 마커 |
| PCR Master Mix (high fidelity) | TIANGEN | 4992920 | PCR을 통한 에피좀 소실 확인 |
| pCXWB-EBNA1 | Addgene | #37624 | EBNA1의 비복제성 에피좀 발현 |
| PE anti-human TRA-1-81 항체 | BioLegend | 330708 | 다능성 염색 |
| 페니실린-스트렙토마이신 (100x) | Thermo Fisher (Gibco) | 15140122 | 항생제 보충제 (전기천공 후 사용하지 않음) |
| Phalloidin-iFluor 647 시약 | Abcam | ab176759 | F-actin (액틴 필라멘트) 라벨링 |
| 염화칼륨 (KCl) | Sigma-Aldrich | P5405 | 핵형 분석용 저장성 용액 (0.075 M) |
| 실시간 PCR 시스템 | Thermo Fisher Scientific | QuantStudio3 | 마커 유전자 확인을 위한 qPCR |
| 부티르산 나트륨 (NaB) | Sigma-Aldrich | B5887 | HDAC 억제제; 리프로그래밍 효율 향상을 위해 25-100 uM 사용 |
| SOX2 항체 (Mouse) | R&D Systems | MAB2018 | 면역형광; 핵 다능성 마커 |
| SSEA-4 항체 | BioLegend | 330408 | 면역형광; 세포 표면 다능성 마커 |
| 실체 현미경 | Nikon | SMZ745 | 배율 하에서 기계적 콜로니 피킹 |
| TeSR-E8 | STEMCELL Technologies | 05990 | Feeder-free iPSC 유지 배지 |
| TRA-1-60 항체 | Merck Millipor | MAB4360 | 다능성 염색 |
| Trans DNA Marker II | TransGen Biotech | BM411-01 | DNA Ladder |
| TransDetect PCR 마이코플라스마 검출 키트 | TransGen Biotech | FM311-01 | 마이코플라스마 테스트 |
| TrypLE Select 효소 (1x) | Thermo Fisher (Gibco) | 12563011 | 부착성 AFC를 위한 부드러운 세포 해리 |
| 트립신 (0.025%) | Sigma-Aldrich | T4799 | 슬라이드 G-banding 전처리 (30-60 s) |
| VeritiPro 96-well 열 순환기 | Thermo Fisher Scientific | A48141 | 에피좀 소실 확인을 위한 PCR |
| 항온수조 (37 °C) | Shanghai Zhixin Experimental Instrument Technology Co., Ltd. | ZX-S22 | 배지 및 시약 해동 |
| Y-27632 Dihydrochloride (ROCK 억제제) | Tocris | 1254 | 해리 후 iPSC 생존율 향상 (10 uM) |
참고문헌
- Gurdon JB. The developmental capacity of nuclei taken from intestinal epithelium cells of feeding tadpoles. Development. 1962;10(4):622-640.
- Evans MJ, Kaufman MH. Establishment in culture of pluripotential cells from mouse embryos. Nature. 1981;292(5819):154-156.
- Martin GR. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 1981;78(12):7634-7638.
- Thomson JA, Itskovitz-Eldor J, Shapiro SS, Waknitz MA, Swiergiel J, et al. Embryonic stem cell lines derived from human blastocysts. Science. 1998;282(5391):1145-1147.
- Takahashi K, Tanabe K, Ohnuki M, Narita M, Ichisaka T, et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 2007;131(5):861-872.
- Fusaki N, Ban H, Nishiyama A, Saeki K, Hasegawa M. Efficient induction of transgene-free human pluripotent stem cells using a vector based on Sendai virus, an RNA virus that does not integrate into the host genome. Proc Jpn Acad Ser B Phys Biol Sci. 2009;85(8):348-362.
- Warren L, Manos PD, Ahfeldt T, Loh YH, Li H, et al. Highly efficient reprogramming to pluripotency and directed differentiation of human cells with synthetic modified mRNA. Cell Stem Cell. 2010;7(5):618-630.
- Yu J, Hu K, Smuga-Otto K, Tian S, Stewart R, et al. Human induced pluripotent stem cells free of vector and transgene sequences. Science. 2009;324(5928):797-801.
- Hou P, Li Y, Zhang X, Liu C, Guan J, et al. Pluripotent stem cells induced from mouse somatic cells by small-molecule compounds. Science. 2013;341(6146):651-654.
- Guan J, Wang G, Wang J, Zhang Z, Fu Y, et al. Chemical reprogramming of human somatic cells to pluripotent stem cells. Nature. 2022;605(7909):325-331.
- Liuyang S, Wang G, Wang Y, He H, Lyu Y, et al. Highly efficient and rapid generation of human pluripotent stem cells by chemical reprogramming. Cell Stem Cell. 2023;30(4):450-459.e9.
- Wang Y, Peng F, Yang Z, Cheng L, Cao J, et al. A rapid chemical reprogramming system to generate human pluripotent stem cells. Nat Chem Biol. 2025;21(7):1030-1038.
- Li C, Zhou J, Shi G, Ma Y, Yang Y, et al. Pluripotency can be rapidly and efficiently induced in human amniotic fluid-derived cells. Hum Mol Genet. 2009;18(22):4340-4349.
- Slamecka J, Salimova L, McClellan S, van Kelle M, Kehl D, et al. Non-integrating episomal plasmid-based reprogramming of human amniotic fluid stem cells into induced pluripotent stem cells in chemically defined conditions. Cell Cycle. 2016;15(2):234-249.
- Li Q, Fan Y, Sun X, Yu Y. Generation of induced pluripotent stem cells from human amniotic fluid cells by reprogramming with two factors in feeder-free conditions. J Reprod Dev. 2013;59(1):72-77.
- Crosland BA, Hedges MA, Ryan KS, D'mello RJ, Mccarty OJT, Amniotic fluid: its role in fetal development and beyond. J Perinatol. 2025 Aug;45(8):1163-1170. doi: 10.1038/s41372-025-02313-1. Epub 2025 May 8. PMID: 40341778; PMCID: PMC12354197.
- Liu L, et al. Amniotic fluid stem cells in birth defects: integrated roles in disease modeling, prenatal diagnosis, and therapy. Stem Cell Rev Rep. 2026. doi:10.1007/s12015-026-11161-1.
- Antonucci I, Provenzano M, Rodrigues M, Pantalone A, Salini V, et al. Amniotic fluid stem cells: a novel source for modeling of human genetic diseases. Int J Mol Sci. 2016;17(4):607.
- Guillot PV. Induced pluripotent stem (iPS) cells from human fetal stem cells. Best Pract Res Clin Obstet Gynaecol. 2016;31:112-120. doi:10.1016/j.bpobgyn.2015.08.007.
- Lu HE, Yang YC, Chen SM, Su HL, Huang PC, et al. Modeling neurogenesis impairment in Down syndrome with induced pluripotent stem cells from trisomy 21 amniotic fluid cells. Exp Cell Res. 2013;319(4):498-505.
- Lee CC, et al. Establishment of a human trisomy 18 induced pluripotent stem cell line from amniotic fluid cells. Stem Cell Res. 2018;29:115-119.
- D'Aurora M, et al. Modeling Klinefelter syndrome using induced pluripotent stem cells reveals impaired germ cell differentiation. Front Cell Dev Biol. 2020;8:567454.
- Mali P, Chou BK, Yen J, Ye Z, Zou J, et al. Butyrate greatly enhances derivation of human induced pluripotent stem cells by promoting epigenetic remodeling and the expression of pluripotency-associated genes. Stem Cells. 2010;28(4):713-720.
- Guo J, Lee Q, Qiu H, Wei Y, Zhu X, et al. Patient-derived neural organoids reveal developmental impairments associated with a novel GJB1 mutation in X-linked Charcot-Marie-Tooth disease. Neurobiol Dis. 2026;220:107299.
- Nanbo A, Sugden A, Sugden B. The coupling of synthesis and partitioning of EBV's plasmid replicon is revealed in live cells. EMBO J. 2007;26(19):4252-4262.
- Chou BK, Mali P, Huang X, Ye Z, Dowey SN, et al. Efficient human iPS cell derivation by a non-integrating plasmid from blood cells with unique epigenetic and gene expression signatures. Cell Res. 2011;21(3):518-529.
- Okita K, Matsumura Y, Sato Y, Okada A, Morizane A, et al. A more efficient method to generate integration-free human iPS cells. Nat Methods. 2011;8(5):409-412.
- Cheng L, Wang Y, Yang Z, Cao J, Peng F, et al. p53 safeguards chemical reprogramming of human somatic cells toward pluripotency. Cell. 2026. doi:10.1016/j.cell.2026.03.038.
- Akutsu SN, Miyamoto T, Oba D, Tomioka K, Ochiai H, et al. iPSC reprogramming-mediated aneuploidy correction in autosomal trisomy syndromes. PLoS One. 2022;17(3):e0264965.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공