본 연구에서는 알렉산더 병(AxD) 연구를 위해 생리학적으로 유의미한 시스템을 제공하는 일차 쥐 성상교세포 모델을 개발하여 GFAP 응집, 병리적 변형 및 성상교세포 기능 장애를 조사할 수 있도록 하였습니다. 이 시스템은 in vitro 및 in vivo 연구를 연결함으로써 AxD 병리를 탐구하고 신경퇴행성 질환의 치료 표적을 식별할 수 있는 강력한 플랫폼을 제공합니다.
이 논문에서
요약
초록
별아교세포(Astrocytes)는 중추신경계의 항상성 유지, 신경세포 기능 지원, 그리고 손상이나 질병에 대한 반응에서 필수적인 역할을 합니다. 별아교세포 활성의 기능 장애는 glial fibrillary acidic protein (GFAP)의 돌연변이로 인해 발생하는 희귀하고 치명적인 질환인 알렉산더병(Alexander disease, AxD)을 포함한 신경퇴행성 질환의 핵심 요인으로 점점 더 인식되고 있습니다. 이러한 돌연변이는 GFAP 응집, Rosenthal fiber 형성 및 점진적인 별아교세포 기능 장애를 초래합니다. in vivo 동물 모델은 복잡한 세포 환경을 제공하지만, 현재의 in vitro 및 in vivo 모델 모두 별아교세포의 복잡한 세포 맥락과 기능을 정확하게 재현하는 데 한계가 있습니다. 이를 해결하기 위해, 우리는 GFAP 돌연변이의 기능적 영향을 연구하고자 야생형(WT) 및 AxD 모델 쥐에서 유래한 일차 쥐 별아교세포를 이용한 세포 모델을 개발했습니다. 이 생리학적으로 유의미한 시스템은 GFAP 응집, 산화 스트레스 반응 및 병리적 변형을 포함한 별아교세포 특이적 메커니즘에 대한 세부적인 조사를 가능하게 합니다. AxD 모델 쥐를 사용할 수 없는 연구자들의 경우, 렌티바이러스 형질도입을 통해 정상 쥐 유래 별아교세포에 AxD 관련 GFAP 돌연변이를 도입하는 대안적인 방법을 사용할 수 있으며, 이를 통해 이 접근법의 적용 범위를 넓힐 수 있습니다. 불멸화된 별아교세포주나 재조합 단백질을 이용한 in vitro 연구와 비교하여, 일차 별아교세포는 본래의 세포 구조와 분자 프로필을 더 잘 보존하므로 GFAP의 동역학, 용해도, 그리고 산화적 손상 및 병리적 변형과 같은 스트레스 요인에 대한 별아교세포의 반응을 연구하기 위한 강력한 플랫폼을 제공합니다. 이 세포 모델은 분자적 연구와 시스템적 연구 사이의 간극을 메워 AxD에서의 별아교세포 기능 장애를 탐구할 수 있는 제어된 실험적 틀을 제공합니다. 기존 방법론을 보완함으로써, 일차 별아교세포 배양은 AxD 병리에 대한 이해를 높이며 신경퇴행성 질환의 잠재적 치료 표적을 식별하는 데 있어 가치 있는 도구가 됩니다.
서론
별아교세포(Astrocytes)는 중추신경계(CNS) 전체에 분포하는 특수한 글리아 세포로, 뇌의 항상성 유지, 신경세포 활동 조절, 그리고 부상이나 질병에 대한 반응에서 중요한 역할을 합니다1. 이들의 기능에는 신경전달물질의 제거 및 재활용, 세포 외 이온 및 수분 항상성 유지, 그리고 신경 회로 기능 보조 등이 포함됩니다. 별아교세포가 분비하는 분자들은 성인 뇌의 시냅스 발달과 시냅스 가소성에 필수적입니다2. 중추신경계 부상이나 질병에 반응하여 별아교세포는 반응성 변화를 겪으며, 이는 상황에 따라 전염증성 또는 항염증성 신호를 매개하여 신경 보호 기능을 수행하거나 반대로 중추신경계 병리를 유발하는 데 기여할 수 있습니다3. 별아교세포 기능의 조절 장애는 중추신경계의 건강과 질병을 결정짓는 핵심 요인으로 점점 더 인식되고 있습니다4,5.
제III형 중간 필라멘트(IF) 단백질인 Glial fibrillary acidic protein (GFAP)은 성상교세포의 주요 세포골격 성분이며, 모든 성상교세포는 아니지만 대부분의 성상교세포에서 발현됩니다. GFAP는 중추신경계(CNS) 손상에 반응하여 상향 조절되며, 조직 손상 심각도의 마커로 활용됩니다6. GFAP는 전통적으로 구조적 역할과 연관되어 왔으나7, 그 기능적 함의에 대해서는 여전히 연구가 부족한 실정입니다. GFAP의 돌연변이는 GFAP 응집, Rosenthal 섬유 형성 및 점진적인 성상교세포 기능 장애를 특징으로 하는 희귀 신경퇴행성 질환인 Alexander 병(AxD)을 유발합니다8. in vitro 생화학적 연구9,10,11와 in vivo 동물 모델12,13을 통해 AxD 병리에 대한 통찰을 얻었으나, 이러한 모델들은 성상교세포 기능의 복잡한 세포적 맥락을 온전히 포착하지 못합니다14.
이러한 한계를 극복하기 위해, 우리는 야생형(WT) 및 AxD 모델 쥐13에서 유래한 일차 쥐 성상세포를 이용한 세포 모델을 개발했습니다. 이 시스템은 성상세포의 고유한 세포 구조와 분자 프로필을 보존하여, AxD와 관련된 GFAP 응집, 산화 스트레스 반응 및 병리적 변형에 대한 연구를 가능하게 합니다. AxD 모델 쥐를 사용할 수 없는 연구자의 경우, 렌티바이러스 형질전환을 통해 정상 쥐 유래 성상세포에 AxD 관련 GFAP 돌연변이를 도입하는 대체 방법을 사용할 수 있습니다10.
불멸화 세포주와 비교하여, 일차 성상교세포는 in vivo 성상교세포 집단의 이질성과 복잡성을 유지하므로, 성상교세포 특이적 기전을 조사하기 위한 생리학적으로 유의미한 플랫폼을 제공합니다15. 재조합 단백질을 사용하는 in vitro 연구와 달리9, 일차 성상교세포는 GFAP 및 기타 성상교세포 특이적 마커를 자연적으로 발현하여, 본래의 세포 환경 내에서 질병 관련 변이를 연구할 수 있게 합니다10,16,17. 또한, 일차 성상교세포는 단순화된 in vitro 시스템에서는 재현하기 어려운 산화적 손상18 및 염증19과 같은 스트레스 자극에 대한 기능적 반응 조사를 용이하게 합니다.
AxD 연구에서 일차 성상교세포는 분자 연구와 시스템 연구 사이의 간극을 메움으로써 생화학적 접근 및 in vivo 접근 방식을 보완합니다. 생화학적 분석은 GFAP 돌연변이의 분자적 특성에 집중하지만 세포 수준의 복잡성이 부족하며, in vivo 모델은 시스템적 효과를 포착하지만 세포 내 기전 연구에는 덜 적합합니다. 일차 성상교세포는 세포의 복잡성과 실험적 제어가 가능한 중간 단계의 시스템을 제공하며, 이는 질환 기전을 이해하고 치료 표적을 식별하기 위해 세포 모델을 강조하는 신경퇴행성 질환 연구의 최신 경향과 일치합니다20.
본 원고에서는 AxD 연구를 위한 세포 모델로서의 일차 쥐 성상교세포의 개발 및 적용을 제시합니다. WT 성상교세포와 AxD 성상교세포 간의 직접적인 비교를 가능하게 함으로써, 이 접근 방식은 기존 대체 기술의 주요 한계점을 해결하고 렌티바이러스 형질도입을 통해 접근성을 확대합니다. 이러한 연구 결과는 AxD에서 발생하는 성상교세포 기능 장애에 대한 더 깊은 이해에 기여하며, 신경퇴행성 질환의 치료법 발견을 앞당기기 위한 가치 있는 도구를 제공합니다.
프로토콜
본 프로토콜에 사용된 동물은 국립칭화대학교 생명과학 및 의과대학의 기관동물관리 및 사용위원회(NTHU IACUC 승인 번호 109088 및 111060)의 승인을 받았으며, 실험동물의 관리 및 사용에 관한 농업 가이드북의 지침을 준수하였습니다.
1. 배지, 커버슬립, 디쉬 및 플레이트 준비
- 시작하기 전에 다음 용액들이 준비되었는지 확인하십시오.표 1) 준비되어 사용 가능한 상태입니다.
- 멸균 상태를 보장하기 위해 사용 전 가위와 핀셋을 오토클레이브로 멸균하십시오.
- 붕산 완충액(boric acid buffer)을 사용하여 0.02 mg/mL 농도의 poly-L-lysine (PLL) 용액을 준비하십시오.
- 커버슬립의 표면이나 배양 접시/플레이트의 바닥면이 완전히 덮일 정도로 충분한 양의 PLL 용액을 추가하십시오. 코팅이 균일하게 이루어졌는지 확인하십시오.
- PLL 코팅된 커버슬립과 디쉬를 층류 후드 내 실온에서 하룻밤 동안 배양하십시오.
- 다음 날, PLL 용액을 조심스럽게 제거하십시오. 코팅된 커버슬립 또는 디쉬/플레이트를 신선한 멸균수로 3회 헹구어 잔류 PLL을 제거하십시오.
참고: 세포 생존능에 부정적인 영향을 줄 수 있는 잔류 PLL을 제거하기 위해, PLL이 코팅된 플라스크/플레이트 또는 커버슬립을 철저히 헹구는 것이 매우 중요합니다.
2. 일차 성상교세포 배양 준비
참고: 개략적인 개요가 그림 1에 나와 있습니다.
- 새끼 쥐를 얼음 위에 놓아 저체온증을 유도한 후, 생후 1~3일 된 쥐의 머리를 절단하여 몸통과 분리한다.
- 머리를 60-mm 디쉬에 넣고 핀셋으로 측면을 고정한다. 미세 가위를 사용하여 머리 윗부분의 피부를 조심스럽게 절개한다.
- 미세 가위로 머리 정수리 부분을 절개하여 두개골을 조심스럽게 연다. 두개골의 두 부분을 조심스럽게 분리하여 제거한다.
- 핀셋을 사용하여 뇌를 기저부에서 떼어내어 해부 배지가 들어 있는 60-mm 디쉬로 옮긴다.
- 중앙선 구조가 드러나도록 내측 표면이 위를 향하게 하여 각 뇌반구를 배치한다.
- 해부 현미경 하에서 피질과 해마가 포함된 뇌반구는 온전하게 남겨두고, 중뇌와 뇌줄기 조직을 조심스럽게 제거한다.
- 미세 핀셋을 사용하여 수막을 가급적 한 조각으로 조심스럽게 벗겨낸다. 고랑에 숨어 남아 있는 수막이 있는지 주의 깊게 확인하고 완전히 제거한다.
- 해부된 뇌 조직을 라미나 flow 후드로 옮긴다. 1 mL 피펫을 사용하여 해부 배지를 흡입하고 신선한 해부 배지를 추가한다.
- 멸균된 메스 날을 사용하여 조직을 잘게 다진다.
- 다진 조직을 15 mL 튜브에 담긴 5 mL의 해리 배지로 옮긴다. 튜브를 37ºC 항온 수조에서 15분 동안 배양하며, 효소와 조직이 적절히 상호작용할 수 있도록 5분마다 튜브를 가볍게 흔들어준다.
- 배양 후, 조직이 튜브 바닥에 가라앉을 때까지 기다린다. 상층액을 흡입하고 5 mL의 해부 배지를 추가한다.
- 튜브를 5회 뒤집어 조직을 세척한다. 조직이 가라앉도록 3분 동안 그대로 둔 다음, 신선한 해부 배지를 사용하여 세척 과정을 3회 반복한다.
- 마지막 세척 후, 상층액을 제거하고 2.5 mL의 해부 배지와 2.5 mL의 유지 배지를 추가한다.
- 10-mL 피펫을 사용하여 용액을 10~15회 위아래로 통과시켜 조직을 트리튜레이션(trituration)한다.
- 조직이 가라앉을 때까지 튜브를 3분 동안 그대로 둔다. (세포가 포함된) 상층액을 새로운 50 mL 원추형 튜브로 옮긴다.
- 가라앉은 조직이 들어 있는 원래 튜브에 5 mL의 MEM 배지를 추가한다. 대부분의 덩어리가 사라질 때까지 10-mL 피펫으로 다시 10~15회 트리튜레이션한다.
- 세포 현탁액을 멸균된 40 µm 세포 스트레이너에 통과시켜 5 mL의 유지 배지가 들어 있는 깨끗한 50 mL 원추형 튜브에 넣는다.
- 여과된 세포 현탁액을 상온에서 200 × g로 5분 동안 원심분리한다.
- 상층액을 제거한 다음, 튜브를 가볍게 쳐서 세포 펠렛을 살살 풀어준다.
- 5 mL의 MEM 배지를 추가하고 피펫으로 10회 위아래로 섞어 펠렛을 재현탁한다. 세포 수를 세는 동안 세포 현탁액을 37ºC 항온 수조에 보관한다.
- 세포 현탁액 10 μL를 90 µL의 MEM 배지로 희석한다. 200 µL 피펫 팁을 사용하여 잘 섞는다.
- 희석된 세포 현탁액 20 μL를 20 µL의 트라이판 블루(trypan blue)에 추가한다. 혈구계수기를 사용하여 세포 수를 측정한다.
- 세포를 다음과 같이 배양 용기에 접종한다: 24-well 플레이트의 경우 웰당 2 × 10⁵ cells, 6-well 플레이트의 경우 웰당 5 × 10⁵ cells, 6-cm 디쉬의 경우 디쉬당 1 × 10⁶ cells.
- 플레이트 또는 디쉬를 조직 배양 인큐베이터에 넣는다. 세포를 상온에 장시간 방치하지 않도록 주의한다.
- 접종 4시간 후, 현미경으로 세포가 기질에 부착되었는지 확인한다.
- 접종 24시간 후에 배양액을 신선한 유지 배지로 교체한다.
- 2~3일마다 배지의 절반을 신선한 유지 배지로 교체하여 배양한다.
- 7일 후면 세포가 약 80%의 합류도(confluency)에 도달하여 실험에 사용할 수 있는 상태가 된다.
참고: 성상교세포 배양의 최적 조건을 보장하기 위해, 오염을 방지하기 위해 모든 단계는 멸균 환경(가급적 라미나 flow 후드 내부)에서 수행한다. 또한, 적용 가능한 모든 시약은 37°C로 예열되어 있어야 한다. 수막 조직이 남아 있으면 배양에 방해가 될 수 있으므로 수막을 제거할 때 세심하게 주의한다. 또한, 세포의 생존력과 무결성을 유지하기 위해 접종 및 세포 수 측정 중에 세포를 상온에 장시간 방치하는 것을 피한다.
3. 렌티바이러스 입자 생산 및 형질도입
참고: 개략적인 개요는 그림 2에 나타나 있습니다.
- 신선한 배양 배지가 담긴 10 cm2 페트리 접시에 HEK293T 세포를 분주한다(표 1).
- 37ºC 인큐베이터에서 세포를 하룻밤 동안 배양하여 50%–60%의 합류도(confluency)에 도달하게 한다.
- 1 mL의 Opti-MEM에 GFAP 또는 그 변이체를 인코딩하는 렌티바이러스 플라스미드 20 µg, 패키징 벡터 5.6 µg, 엔벨로프 벡터 1.8 µg을 첨가한다.
- DNA 혼합액에 트랜스펙션 시약 45 µL를 첨가한다.
- 부드럽게 섞은 후 실온에서 15분 동안 반응시킨다.
- 트랜스펙션 용액을 HEK293T 세포에 직접 첨가하고 37°C 세포 배양 인큐베이터에서 4시간 동안 배양한다.
- 트랜스펙션 용액을 흡입하여 제거하고 신선한 배양 배지로 교체한다.
- 세포를 2일 동안 계속 배양한다.
- 세포 배양 상층액을 수집하고 신선한 배양 배지로 교체한다.
- 다음 날, 다시 세포 배양 상층액을 수집하고 신선한 배양 배지로 교체한다.
- 그 다음 날, 마지막 세포 배양 상층액을 수집한다.
- 단계 3.9~3.11에서 수집한 상층액을 50-mL 원심 분리관(conical tube)에 합친다.
- 잔해를 제거하기 위해 60 mL 주사기를 사용하여 합쳐진 상층액을 0.45 µm 필터로 여과한다.
- 사멸 세포를 제거하기 위해 여과된 상층액을 실온에서 1,400 × g로 5분 동안 원심 분리한다.
- 정제된 상층액을 초원심 분리관으로 옮긴다.
- 렌티바이러스 입자를 펠렛(pellet)화하기 위해 4°C에서 100,000 × g로 70분 동안 원심 분리한다.
- 튜브 바닥의 펠렛이 손상되지 않도록 주의하며 상층액을 조심스럽게 제거한다.
- 피펫으로 부드럽게 섞어 펠렛을 600 µL의 Opti-MEM 배지에 재부유시킨다.
- 재부유된 렌티바이러스 입자를 50 μL씩 소분하여 필요할 때까지 -80°C에 보관한다.
- 1차 성상세포(primary astrocytes)를 6-well 플레이트에 분주하고 50%–70%의 합류도에 도달하게 한다(섹션 2).
- 필요한 양의 렌티바이러스 입자를 얼음 위에서 해동한다.
- 각 웰에 8 µg/mL Polybrene이 보충된 렌티바이러스 입자 50 µL를 첨가한다.
- 플레이트를 부드럽게 흔들어 바이러스와 Polybrene이 고르게 분포되도록 한다. 세포를 37ºC 세포 배양 인큐베이터에서 4–8시간 동안 배양한다.
- 세포가 손상되지 않도록 바이러스가 포함된 배지를 조심스럽게 흡입하여 제거한다.
- 배지를 신선한 배양 배지로 교체하고 2–3일 동안 계속 배양한다.
- 형광 면역 염색 현미경을 통해 중간섬유 네트워크 형성을 시각화하거나, 면역블로팅을 통해 GFAP 발현을 평가하여 형질전환된 세포에 대한 하위 분석을 수행한다.
참고: 렌티바이러스 입자를 취급할 때는 안전을 위해 적절한 개인 보호 장구(PPE)를 사용하는 것이 매우 중요하다. 또한, 바이러스 입자의 무결성을 유지하기 위해 반복적인 동결-해동 사이클을 피해야 한다.
4. 면역형광 현미경 관찰
- 세포가 도말된 커버슬립이 들어 있는 웰에서 배양액을 부드럽게 흡입하여 제거한다. 이때 세포가 흐트러지지 않도록 주의한다.
- 다음 고정액 중 하나를 첨가하여 세포를 고정한다: 일차 성상교세포(primary astrocytes)의 경우 3.2% (wt/vol) paraformaldehyde를 사용하고, 성상교세포-신경세포 공배양(astrocyte-neuron culture)의 경우 3.2% (wt/vol) paraformaldehyde와 4% (wt/vol) sucrose를 사용한다.
- 커버슬립을 고정액에 넣고 상온에서 15분 동안 반응시킨다. 별도의 언급이 없는 한, 이후의 모든 단계는 상온에서 수행한다.
- 고정된 세포를 phosphate-buffered saline (PBS)로 3회 세척하여 고정액을 제거한다.
- 블로킹 버퍼(PBS 내 5% (vol/vol) normal goat serum)로 조제한 0.2% (vol/vol) Triton X-100에 세포를 15분 동안 반응시켜 세포막을 투과화한다.
- 투과화된 세포를 PBS로 3회 세척한다.
- 제조사의 권장 농도에 따라 일차 항체를 블로킹 버퍼로 희석하여 일차 항체 용액을 준비한다.
- 커버슬립을 일차 항체 용액에 넣고 상온에서 최소 1시간 동안 반응시킨다.
- 커버슬립을 PBS로 3회 세척하여 결합하지 않은 일차 항체를 제거한다.
- 형광 물질이 접합된 goat anti-mouse 및 goat anti-rabbit 이차 항체를 블로킹 버퍼로 1:500 비율로 희석하여 이차 항체 용액을 준비한다.
- 커버슬립을 이차 항체 용액에 넣고 상온에서 1시간 동안 반응시킨다.
- 커버슬립을 PBS로 3회 세척하여 결합하지 않은 이차 항체를 제거한다.
- 핀셋을 사용하여 커버슬립을 유리 슬라이드 위로 조심스럽게 옮긴다.
- 형광을 보존하기 위해 마운팅 매질(mounting medium)을 사용하여 커버슬립을 마운팅한다.
- 커버슬립의 가장자리를 투명 매니큐어로 부드럽게 밀봉하여 움직임과 증발을 방지한다.
- 이미징을 진행하기 전 매니큐어를 완전히 건조시킨다.
- 준비된 슬라이드는 면역형광 현미경 또는 공초점 현미경을 이용한 이미징에 사용할 수 있다.
참고: 실험의 성공을 위해 PBS, 블로킹 버퍼, 항체와 같은 모든 시약은 신선하게 준비하고 멸균 상태를 유지한다. 세포가 손상되거나 유리 표면에 흠집이 생기지 않도록 커버슬립을 조심스럽게 다룬다. 형광 신호의 광퇴색(photobleaching)을 방지하기 위해 항체 반응 및 마운팅 후에는 시료를 빛으로부터 차단한다. 또한, 구체적인 실험 설정에 따라 항체 농도와 반응 시간을 최적화한다.
5. 면역블로팅(Immunoblotting)
- 잔여 배지와 부유물을 제거하기 위해 성상교세포(astrocytes)를 PBS로 두 번 헹굽니다.
- 단백질 분해를 최소화하기 위해 플레이트나 디쉬를 얼음에 올립니다. 한 번에 웰 하나씩, PBS를 완전히 흡입하여 제거합니다.
- 프로테아제 및 포스파타아제 억제제가 포함된 차가운 radioimmunoprecipitation assay (RIPA) 완충액을 첨가합니다. 6-well 플레이트의 경우 웰당 250 µL를, 6-cm 디쉬의 경우 디쉬당 500 µL를 첨가합니다.
- 세포 스크레이퍼를 사용하여 모든 성상교세포를 RIPA 완충액(50 mM Tris, pH 8.0, 150 mM NaCl, 1% (wt/vol) NP-40, 5 mM ethylenediaminetetraacetic acid (EDTA), 0.5% (wt/vol) sodium deoxycholate, 0.1% (wt/vol) SDS, 1 mM phenylmethylsulfonyl fluoride [PMSF]) 속으로 완전히 긁어 모읍니다.
- 긁어모은 세포를 얼음에 둔 1-mL Dounce 균질기로 옮깁니다. 페스틀(pestle)로 부드럽게 갈아 세포를 균질화합니다.
- 완전한 용해를 위해 균질화된 세포 용해물을 얼음 위에서 10분간 배양합니다. bicinchoninic acid (BCA) 분석으로 단백질 농도를 측정하기 위해 전체 용해물 중 20 µL를 따로 보관합니다.
- 불용성 단백질을 침전시키기 위해 세포 용해물을 4ºC에서 13,500 × g로 10분간 원심분리합니다.
- 상층액을 깨끗한 튜브로 조심스럽게 옮깁니다. BCA 분석으로 단백질 농도를 측정하기 위해 상층액 20 µL를 따로 보관합니다.
- 메탄올/클로로포름 침전법을 수행하여 상층액을 농축합니다.
- 결과물로 얻은 침전물을 0.1 mL의 Laemmli 시료 완충액(25 mM Tris-HCl (pH 6.8), 1% (w/v) SDS, 12.5% (v/v) glycerol, 0.01% (w/v) bromophenol blue, 355 mM β-mercaptoethanol)에 재현탁합니다.
- 침전물을 Laemmli 시료 완충액에 재현탁하고 초음파 처리를 통해 분산시킵니다.
- 10% 출력에서 0.5초 펄스로 초음파 처리를 3회 반복합니다. 거품 발생을 방지하기 위해 프로브 팁을 튜브 바닥 쪽으로 유지합니다.
- RIPA 상층액과 전체 세포 용해물 모두에 대해 bicinchoninic acid (BCA) 단백질 분석을 수행합니다.
- 단백질 시료를 12% 또는 15% sodium dodecyl sulfate polyacrylamide gel electrophoresis (SDS-PAGE) 젤에 로딩합니다. 200 V의 정전압에서 45분간 젤을 전기영동합니다.
- 습식 전이 시스템(wet transfer system)을 사용하여 젤의 단백질을 니트로셀룰로오스 막으로 전이시킵니다. 제조사의 지침에 따라 100 V에서 70분간 전이시킵니다.
- 0.1% (wt/vol) Tween-20이 포함된 Tris-buffered saline (TBST)에 용해된 5% (wt/vol) bovine serum albumin (BSA)에 막을 담급니다. 부드럽게 흔들어주며 상온에서 최소 1시간 동안 블로킹합니다.
- 제조사의 지침에 따라 1차 항체를 TBST로 희석합니다. 1차 항체 용액에 막을 넣고 4ºC에서 부드럽게 흔들어주며 밤새 배양합니다.
- 막을 TBST로 세 번 헹구며, 각 세척은 5분간 수행합니다.
- 형광체 또는 horseradish peroxidase (HRP)가 결합된 2차 항체를 TBST로 1:500 비율(또는 제조사 지정 비율)로 희석합니다.
- 2차 항체 용액에 막을 넣고 상온에서 부드럽게 흔들어주며 1시간 동안 배양합니다.
- 막을 TBST로 세 번 헹구며, 각 세척은 5분간 수행합니다.
- 제조사의 지침에 따라 형광 또는 enhanced chemiluminescence (ECL)을 사용하여 막을 현상합니다.
- 이미징 시스템을 사용하여 단백질 밴드를 시각화합니다.
참고: 단백질 분해를 방지하기 위해 항체 배양 및 블로킹 단계를 제외한 모든 단계는 얼음 위 또는 4ºC에서 수행하십시오. 전체 과정 동안 저온을 유지할 수 있도록 사용 전 모든 완충액, 시약 및 장비를 미리 냉각하십시오. 스미어링(smearing) 현상을 방지하기 위해 젤에 시료를 과하게 로딩하지 마십시오. 또한 특정 실험에 맞게 항체 농도와 배양 시간을 최적화하십시오.
6. 공동 배양을 위한 일차 신경세포 준비
- 흡입 마취제인 이산화탄소를 사용하여 임신한 쥐를 안락사시킨다. 자궁을 적출하여 멸균 페트리 접시에 놓는다.
- 태아로부터 뇌를 적출하여 해부 용액이 담긴 6-cm 디쉬에 넣습니다. 조직이 건조해지는 것을 방지하기 위해 항상 용액에 잠겨 있도록 유지하십시오.
- 설명된 바에 따라(단계 2.7) 피질을 해부하고 뇌막을 제거하십시오.
- 적출한 조직을 층류 후드(laminar flow hood)로 옮깁니다.
- 1 mL 피펫을 사용하여 해부 용액을 흡입하여 제거하고, 접시에 새로운 해부 용액을 추가하십시오.
- 멸균된 메스 날을 사용하여 뇌 조직을 작은 조각으로 잘게 다집니다.
- 잘게 다진 조직을 37℃로 미리 가온한 5 mL의 신경세포 해리 배지(표 1)로 옮기십시오. º15 mL 튜브에 C를 넣습니다.
- 튜브를 37℃에서 배양하십시오. º효소와 조직의 적절한 상호작용을 위해 5분마다 튜브를 부드럽게 흔들어주며 30분 동안 C 워터배스에서 반응시킵니다.
- 튜브를 항온수조에서 꺼내 조직이 튜브 바닥에 가라앉도록 둡니다. 조직이 흐트러지지 않도록 1 mL 피펫 팁을 사용하여 상층액을 조심스럽게 흡입하여 제거합니다.
- 튜브에 미리 데워둔 해부 용액 5 mL를 넣고 5회 반전시켜 조직을 헹굽니다. 조직이 가라앉도록 튜브를 3분 동안 그대로 둡니다. 그 다음, 매번 새로운 해부 용액을 사용하여 세척 과정을 3회 반복합니다.
- 마지막 세척 후, 상층액을 제거하고 2.5 mL의 해부 용액과 2.5 mL의 도말 배지를 첨가하십시오.
- 10mL 피펫을 사용하여 용액을 10~15회 반복적으로 흡입 및 배출함으로써 조직을 분쇄하십시오.
- 조직이 가라앉을 수 있도록 튜브를 3분 동안 그대로 둡니다. 세포가 포함된 상층액을 새로운 50 mL 원심 분리 튜브로 옮깁니다.
- 침강된 조직이 포함된 원래 튜브에 도말 배지 5 mL를 추가하십시오.
- 10-mL 피펫을 사용하여 덩어리가 대부분 사라질 때까지 조직을 10~15회 더 분쇄하십시오.
- 세포 현탁액을 멸균된 상태로 통과시키십시오. 40 µm 5 mL의 도말 배지가 들어 있는 깨끗한 50 mL 코니컬 튜브에 셀 스트레이너를 배치합니다.
- 여과된 세포 현탁액을 200에서 원심분리하십시오. × 실온에서 5분 동안 원심분리합니다.
- 상청액을 제거한 후, 튜브를 가볍게 두드려 세포 펠렛(cell pellet)을 부드럽게 풀어줍니다. 미리 데워둔 플레이팅 배지 5mL를 첨가하고, 피펫으로 10회 정도 상하로 섞어 펠렛을 재현탁합니다.
- 이전 단계(단계 2.21 및 2.22)에서 설명한 대로 세포 수를 측정하십시오. 세포 현탁액을 다음 상태로 유지하십시오. 37°C 세포 계수 중 항온수조 사용.
- 배양 용기 내의 일차 성상교세포 위에 다음과 같이 뉴런을 직접 플레이팅합니다. 24-웰 플레이트의 경우, 1.45를 분주합니다. × 105 웰당 세포 수; 6-웰 플레이트의 경우, 5개로 파종하십시오. × 105 웰당 세포 수; 6-cm 디쉬의 경우, 1개를 분주하십시오. × 106 웰당 세포 수.
- 플레이트 또는 디쉬를 37°C로 설정된 조직 배양 인큐베이터에 넣으십시오.º5% CO가 포함된 C₂세포의 생존율을 유지하기 위해 세포를 실온에 장시간 방치하지 마십시오.
- 분주 4시간 후, 분주 배지를 신경세포 유지 배지로 교체하십시오.
- 3~4일마다 배지의 절반을 신선한 뉴런 유지 배지로 교체하십시오.
참고: 공배양된 뉴런은 다음 시점에 실험 준비가 완료됩니다. 체외 배양 7~10일(DIV).
결과
분리 후 다양한 시점에서의 일차 성상교세포 배양의 형태학적 개요가 그림 3에 제시되어 있습니다. 피질 세포 현탁액을 플레이팅한 후, 일부 성상교세포는 처음 24시간 이내에 배양 접시 표면에 부착됩니다 (그림 3A). 배양액이 성상교세포의 생존과 성장을 지원하도록 최적화되어 있기 때문에, 초기 3~5일 동안 배양물에는 세포 파편과 사멸하는 뉴런이 포함되어 있습니다 (그림 3B). 플레이팅 후 7일이 되면 성상교세포 단층이 형성되기 시작하며, 이는 배양이 성공적으로 확립되었음을 나타냅니다 (그림 3C). 배양 상태로 유지된 해리된 뉴런은 뚜렷한 분화 단계를 거쳐 최종적으로 잘 정의된 신경돌기를 발달시킵니다 (그림 3D–F). 이러한 뉴런은 유리 커버슬립 위에 단층으로 배양하거나 공배양 실험을 위해 일차 성상교세포 위에 플레이팅할 수 있어, 성상교세포-뉴런 상호작용을 연구하기 위한 다각적인 플랫폼을 제공합니다.
본 프로토콜에 따라 정상 쥐에서 분리한 일차 성상교세포(primary astrocytes)를 사용하여, AxD 관련 GFAP 돌연변이가 IF 네트워크 형성에 미치는 영향을 조사하였습니다. 연구를 위해 pLEX-MCS 렌티바이러스 벡터에 삽입된 WT GFAP를 템플릿으로 하여, 부위 특이적 돌연변이 유발법(site-directed mutagenesis)을 통해 WT GFAP(그림 4A) 및 E373K(그림 4B), R376W(그림 4C), D395Y(그림 4D), D417A(그림 4E), Q426L(그림 4F) GFAP를 포함한 다양한 형태의 돌연변이 GFAP를 제작하였습니다(보충 파일 1 및 보충 그림 1). 이후 GFAP 발현 작제물을 렌티바이러스 감염을 통해 일차 성상교세포에 도입하였습니다. 감염 과정은 8 μg/mL polybrene 존재 하에 감염다중도(MOI) 10의 렌티바이러스와 세포를 함께 배양하여 진행되었습니다. 이러한 조건에서 면역형광 현미경 관찰 결과, 약 70%–80%의 성상교세포가 성공적으로 감염되었음을 확인하였습니다. 내인성 쥐 GFAP와 관련하여 도입된 GFAP의 분포를 이중 표지 면역형광 현미경으로 분석하였습니다. 도입된 인간 GFAP를 검출하기 위해 항-인간 GFAP 단클론 항체를 사용하였으며(그림 4A–F, 녹색 채널), 쥐 GFAP와 도입된 인간 GFAP를 모두 인식하는 다클론 항-panGFAP 항체를 사용하여 전체적인 GFAP 분포를 시각화하였습니다(그림 4A–F, 적색 채널). WT GFAP를 발현하는 성상교세포에서는 섬유상 네트워크가 세포질 전체에 분포하였습니다(그림 4A). 반면, GFAP 돌연변이체(그림 4B–F, 녹색 채널)는 주로 세포질 응집체를 형성하였으며, 이는 종종 내인성 IF 네트워크를 파괴하고 붕괴시켰습니다(그림 4B–F, 적색 채널). WT 및 돌연변이 GFAP의 상대적 발현 수준은 전체 세포 용해물을 이용한 이뮤노블로팅(immunoblotting)으로 결정하였습니다(그림 4G). WT(그림 4G, 레인 2) 또는 돌연변이(그림 4G, 레인 3–7) GFAP를 도입한 결과, 예상되는 크기의 단백질이 유사한 수준으로 생성되었습니다. 돌연변이 GFAP에 의해 형성된 세포질 응집체가 WT 단백질에 비해 변화된 용해 특성을 보이는지 평가하기 위해, radioimmunoprecipitation assay (RIPA) 버퍼를 사용하여 도입된 성상교세포를 추출하였습니다16. 상층액(그림 4H) 및 펠릿(그림 4I) 분획의 이뮤노블롯 분석 결과, 용해성에서 뚜렷한 차이가 나타났습니다. WT GFAP를 발현하는 세포에서는 대부분의 단백질이 상층액으로 쉽게 추출되었습니다(그림 4H, 레인 2). 이와 대조적으로, 돌연변이 GFAP는 추출에 대한 저항성이 증가하여 단백질의 대부분이 펠릿 분획에 남아 있었습니다(그림 4I, 레인 3–7). 이러한 결과는 AxD 관련 GFAP 돌연변이가 불용성 응집체 형성을 촉진하여, 일차 성상교세포 내 GFAP의 용해 특성을 변화시킨다는 것을 시사합니다.
R237H GFAP 돌연변이와 과발현이 필라멘트 구성 및 IF 네트워크 형성에 미치는 영향을 이해하기 위해, WT 쥐 또는 동형 접합 R237H 넉인 돌연변이를 가진 AxD 모델 쥐13에서 유래한 일차 배양 성세포의 GFAP 네트워크 형성 능력을 분석하였습니다. 면역형광 공초점 현미경 분석 결과, WT 성세포에서는 GFAP가 세포질 전체에 분포하며 잘 조직된 필라멘트 네트워크를 형성하였고, 이는 vimentin IF와 공국소화되었습니다 (그림 5A). 반면, 동형 접합 돌연변이 성세포에서는 GFAP 양성 세포의 약 70%에서 뚜렷한 세포질 응집체가 관찰되었습니다 (그림 5B). 이러한 응집체는 빈번하게 vimentin IF 네트워크를 파괴하여, 네트워크가 거대한 핵 주변 응집체로 붕괴되게 하였습니다. 응집체를 포함하는 GFAP 양성 세포의 정량 결과는 그림 5C에 나타나 있습니다. 단백질 수준에서 GFAP 발현을 평가하기 위해, WT 및 동형 접합 돌연변이 성세포로부터 전체 세포 용해물을 준비하였습니다. anti-panGFAP 항체를 이용한 면역블로팅 결과, 동형 접합 돌연변이 성세포에서 총 GFAP가 약간 증가하였으며 (그림 5D, 레인 2), WT 성세포 (그림 5D, 레인 1) 대비 1.3배 증가한 것으로 나타났습니다 (그림 5E). 돌연변이 GFAP의 과발현이 가용성 및 불용성 풀 사이의 동적 평형을 변화시키는지 확인하기 위해, 상층액과 펠릿 분획을 분리하여 면역블로팅으로 분석하였습니다 (그림 5F). 상층액과 펠릿 분획 간의 GFAP 분포 정량 결과는 그림 5G에 제시되어 있습니다. WT 성세포 (그림 5F, 레인 1 및 2)에서 GFAP는 상층액과 펠릿 분획에 거의 균등하게 분포되어 있었습니다. 그러나 동형 접합 돌연변이 성세포에서는 펠릿 분획의 GFAP 수준이 증가하였으며 (그림 5F, 레인 4), 이는 GFAP가 세포질 응집체로 더 많이 격리되었음을 나타냅니다. 특히, 동형 접합 돌연변이 성세포에서 GFAP 응집체의 축적은 펠릿 분획 내 유비퀴틴화된 GFAP 종의 검출과 상관관계가 있었으며 (그림 5F, 레인 4), 이는 이들 세포의 세포질 응집체 내에 병리적으로 변형된 GFAP가 존재함을 더욱 뒷받침합니다.
별아교세포(Astrocytes)는 신경세포의 건강과 기능을 지원하는 데 결정적인 역할을 합니다. 별아교세포 내 R237H GFAP 돌연변이의 축적이 비세포 자율적 기전을 통해 신경세포에 영향을 미치는지 확인하기 위해, 별아교세포-신경세포 공배양을 이용하였습니다. 랫드 배아 18일차(E18) 일차 신경세포를 10~12 DIV 동안 배양된 일차 별아교세포 위에 파종하고 10일 동안 추가로 성숙시켰습니다. 이후 공배양물을 고정하고 βIII tubulin에 대한 항체로 면역 염색하여 신경세포의 형태를 평가하였습니다. WT 별아교세포(그림 6B)와 공배양된 신경세포(그림 6A)는 동형접합 돌연변이 별아교세포(그림 6E)와 공배양된 신경세포(그림 6D)에 비해 신경돌기 성장이 유의미하게 더 길었습니다(그림 6C). 정량 분석 결과, 동형접합 돌연변이 별아교세포와 공배양된 신경세포의 신경돌기 길이는 WT 별아교세포와 공배양된 신경세포에 비해 76% 감소한 것으로 나타났습니다(그림 6G). 이러한 결과는 별아교세포 내 돌연변이 GFAP의 축적이 정상적인 신경세포 발달 및 형태를 지원하는 능력을 심각하게 손상시킨다는 것을 보여줍니다. 이러한 기능 장애는 AxD의 특징적인 신경퇴행성 표현형에 기여할 수 있습니다.
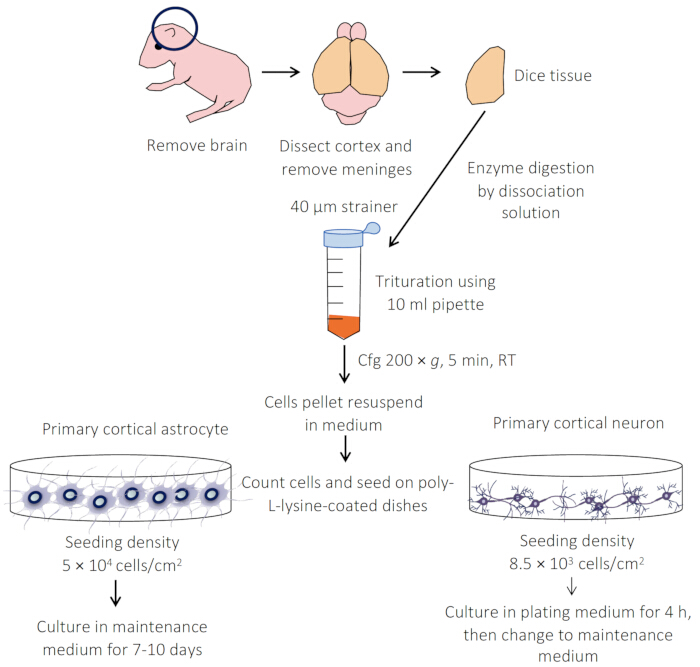
그림 1: 성상교세포 및 신경세포의 일차 배양 준비 프로토콜 개요. 대뇌 피질을 조심스럽게 박리하고, trypsin 또는 papain을 사용하여 조직을 효소적으로 소화합니다. 해리된 세포를 준비된 커버슬립, 디쉬 또는 플레이트에 플레이팅합니다. 성상교세포와 신경세포 모두 유지 배지에서 배양하며 최대 28일까지 유지할 수 있습니다. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
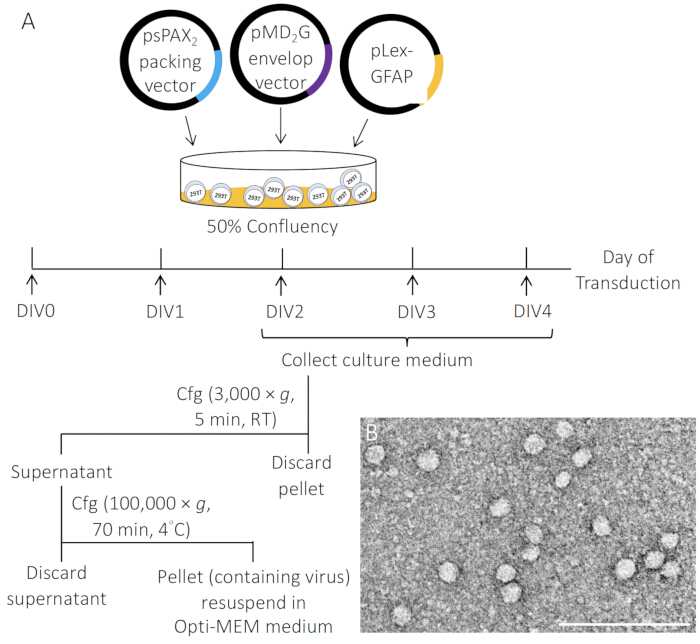
그림 2: 렌티바이러스 입자 생성의 모식도. (A) 렌티바이러스는 transfection 시약을 사용하여 pLEX-MCS–GFAP 벡터, psPAX2 패키징 벡터 및 pMD2.G 외피 벡터를 4:3:1 비율로 293T 세포에 일시적 공동 형질도입(transient cotransfection)하여 생성하였다. 렌티바이러스 입자가 포함된 배양 상층액을 in vitro 2~4일(DIV)에 수확하고, 0.45-μm 필터로 여과하여 부유물을 제거한 후 고속 원심분리를 통해 농축하였다. (B) 렌티바이러스 입자의 전자현미경 사진. 스케일 바, 500 nm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
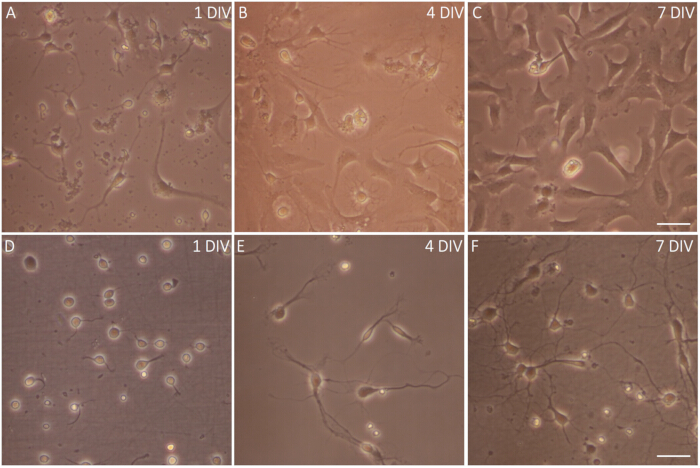
그림 3: 일차 성상교세포 및 뉴런의 위상차 이미지. (A–C) 분리 후 서로 다른 시점에서의 일차 성상교세포 배양물의 형태학적 개요. (A) 플레이팅 하루 후, 성상교세포의 일부가 플라스크 바닥에 부착되었다. (B) 플레이팅 4일 후, 성상교세포 층이 형성되기 시작한다. (C) 플레이팅 7일 후, 성상교세포 층이 거의 합쳐졌다(confluency). 이러한 배양 조건에서는 뉴런이 거의 완전히 부재함에 유의하라. (D–F) 플레이팅 직후, (D) 피질 뉴런이 세포체를 둘러싸는 층판 구조를 뻗기 시작한다. (E) 이후 배양 기간 동안, (F) 뉴런 분화가 진행되며 일부 뉴런은 가지를 친 돌기를 발달시켜 더 복잡한 뉴런 네트워크가 형성됨을 나타낸다. 스케일 바, 20 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
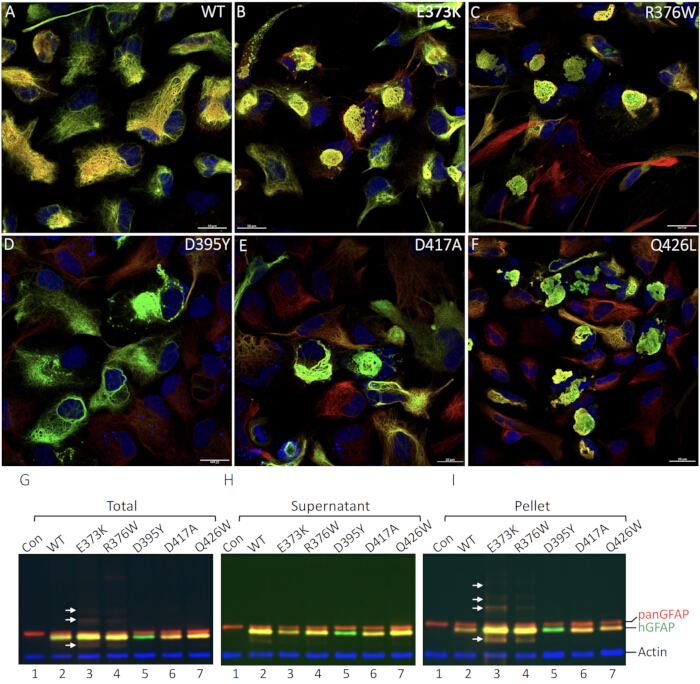
그림 4: 일차 성상세포 내 WT 및 변이 GFAP의 필라멘트 구조 및 용해도 특성. (A–F) 일차 쥐 성상세포에 WT (A) 또는 E373K (B), R376W (C), D395Y (D), D417A (E), Q426L (F)을 포함한 AxD 관련 변이 GFAP를 형질도입하였다. 세포를 고정하고 anti-human GFAP (녹색 채널) 및 anti-panGFAP (적색 채널) 항체로 면역염색하였다. DAPI (청색 채널)로 염색하여 핵을 시각화한 병합 이미지를 나타내었다. WT GFAP는 주로 필라멘트 네트워크로 조립된 반면 (A), 변이 GFAP 단백질은 대부분의 형질도입된 세포에서 세포질 응집체를 형성하였다 (B–F). 스케일 바, 20 μm. (G–I) 변이 GFAP의 발현 수준 및 용해도 특성 분석. 일차 성상세포를 형질도입하지 않거나 (G–I, 레인 1) 표시된 GFAP 컨스트럭트를 형질도입하였다 (G–I, 레인 2–7). 형질도입 72 h 후, 세포를 radioimmunoprecipitation assay (RIPA) 버퍼로 용해시켰으며, 생성된 총 용해물 (G)과 상층액 (H) 및 펠릿 (I) 분획을 anti-human GFAP (녹색 채널) 및 anti-panGFAP (적색 채널) 항체를 이용한 면역블롯으로 분석하였다. anti-actin 항체 (청색 채널)로 탐지한 블롯을 로딩 컨트롤로 사용하였다. human GFAP (hGFAP), total GFAP (panGFAP) 및 actin의 위치는 오른쪽에 표시되어 있다. D395Y GFAP 변이가 형질도입된 성상세포는 anti-panGFAP 항체를 이용한 적색 채널에서 염색되지 않았는데, 이는 변이로 인해 항체의 표적 에피토프가 파괴되었기 때문으로 보인다. 성상세포에 E373K GFAP를 형질도입했을 때, 면역블롯 분석 결과 단량체 GFAP 밴드의 위아래로 추가적인 면역양성 밴드 (화살표)가 나타났다. 아래쪽 밴드는 분해 산물일 가능성이 높으며, 위쪽 밴드는 유비퀴틴화에 의해 변형된 GFAP에 해당한다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
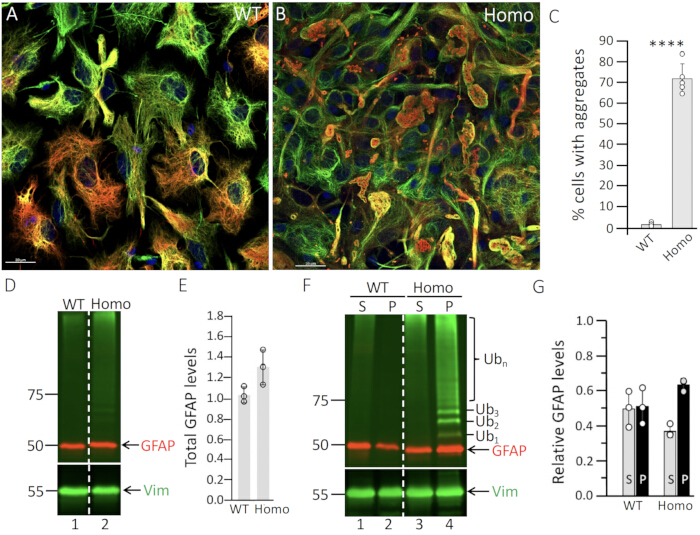
그림 5: 동형접합 돌연변이 쥐 유래 성상교세포에서의 GFAP 응집. (A) WT 또는 (B) 동형접합 돌연변이 쥐에서 유래한 일차 성상교세포를 14 DIV 동안 배양한 후, GFAP(적색 채널) 및 vimentin(녹색 채널) 항체를 사용하여 이중 표지 면역형광 현미경 관찰을 위한 처리를 수행하였다. 핵을 DAPI(청색 채널)로 염색하여 시각화한 병합 이미지를 나타내며, 스케일 바는 20 μm이다. WT 성상교세포(A)에서는 GFAP가 vimentin과 공국소화된 섬유상 IF 네트워크를 형성하였다. 이와 대조적으로, 대부분의 동형접합 돌연변이 성상교세포는 GFAP와 vimentin 모두에 양성 반응을 보이는 GFAP 응집체를 포함하고 있었다(B). (C) WT 및 동형접합 돌연변이 성상교세포에서 응집체를 보유한 세포의 정량 분석. 데이터는 세 번의 독립적인 실험에서 얻은 평균 ± 표준 오차(SE)를 막대 그래프로 나타낸 것이다. 통계 분석은 양측 t-검정을 사용하여 수행되었으며, ****p < 0.0001이다. (D–G) WT 및 동형접합 돌연변이 성상교세포에서 GFAP의 발현 수준 및 용해성 특성. 일차 성상교세포를 14 DIV에서 RIPA 버퍼로 추출하였다. 총 세포 용해물(D)과 상층액(S) 및 펠릿(P) 분획(F)을 GFAP(적색 채널), ubiquitin(녹색 채널), vimentin(녹색 채널) 항체를 이용한 면역블롯법으로 분석하였다. 왼쪽에 분자량 마커(kDa 단위)를 표시하였으며, 오른쪽에 GFAP, vimentin(Vim), ubiquitin(Ub)의 위치를 표시하였다. Ub1–3은 각각 단일, 이중 및 삼중 유비퀴틴화된 GFAP 종을 나타내며, Ubn은 다중 유비퀴틴화된 GFAP 종을 나타낸다. (D 및 F)의 점선은 레인들이 동일한 젤에서 실행되었으나 연속적이지 않았음을 나타낸다. 유비퀴틴화된 GFAP 종은 동형접합 돌연변이 성상교세포의 펠릿 분획(F, 레인 4)에서만 검출되었음에 유의하라. GFAP 수준의 정량 분석은 (E,G)에 나타내었다. 각 흰색 점은 생물학적 반복 실험(n = 3)을 나타낸다. 데이터는 평균 ± SD로 표시되었다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
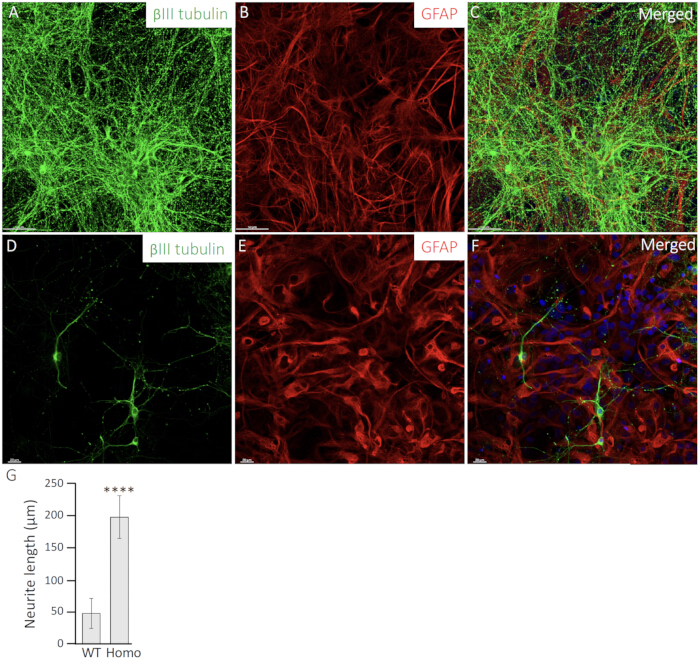
그림 6: 호모접합 돌연변이 성상교세포의 돌연변이 GFAP 발현은 신경돌기 형태를 변화시킨다. 1차 신경세포(A,D)를 WT 성상교세포(B) 또는 호모접합 돌연변이 성상교세포(E)와 공배양하였다. 신경세포의 형태를 시각화하기 위해 βIII tubulin 항체(녹색 채널)로 면역염색하였으며(A,D), 성상교세포(B,E)는 GFAP 항체(적색 채널)로 표지하였다. DAPI(청색 채널)로 핵을 염색한 병합 이미지가 제시되어 있다(C,F). 스케일 바, 20 μm. (G) WT 또는 Homo 성상교세포와 공배양한 신경세포의 신경돌기 길이를 정량화하여 막대 그래프로 나타내었다. 데이터는 평균 ± SD로 표시하였다. 통계적 유의성은 양측 t-검정으로 평가하였으며, WT와 R237H 성상교세포 간의 유의미한 차이는 ****P < 0.0001로 표시하였다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
| 구성 요소 | 최종 농도 | |
| 해부 배지 | 10× HBSS | 10% |
| 1 M HEPES, pH 7.4 | 10 mM | |
| 100× 페니실린-스트렙토마이신 | 1× | |
| 해리 배지 | 2.5% 트립신 | 0.25% |
| 1 M HEPES, pH 7.4 | 10 mM | |
| 150 mM CaCl22 | 1.5 mM | |
| DNase I (15,000U) | 80 U | |
| 10× HBSS | 10% | |
| 유지 배지 | 태아 송아지 혈청 | 10% |
| 100배 농축 페니실린-스트렙토마이신 | 1× | |
| 최소 필수 배지 | 97% | |
| 신경세포 해리 배지 | 100 mM 피루브산 나트륨 | 1 mM |
| 10% 포도당 | 0.10% | |
| 1 M HEPES, pH 7.4 | 10 mM | |
| 0.5 M EDTA | 5 mM | |
| 2 mg/mL 시스테인 | 0.2 mg | |
| 파파인 | 67 U | |
| 150 mM CaCl22 | 1.5 mM | |
| DNase I (15,000U) | 80 U | |
| 신경세포 도말 배지 | 소태아혈청 | 5% |
| GlutaMax-1 | 1% | |
| 10% 포도당 | 0.06% | |
| 100× 페니실린-스트렙토마이신 | 1× | |
| 신경세포 유지 배지 | 뉴로베이설 배지 | 97% |
| B27 | 1/50 | |
| GlutaMax-1 | 0.5 mM | |
| 100× 페니실린-스트렙토마이신 | 1% | |
| 293T 세포 배양 배지 | 10%가 함유된 DMEM | 90% |
| 태아 송아지 혈청 | 10% | |
| 글루타민 | 2 mM | |
| 100× 페니실린-스트렙토마이신 | 1% |
표 1: 배지 조성.
보충 파일 1: GFAP 돌연변이 렌티바이러스 구성물. GFAP 돌연변이는 부위 특이적 돌연변이 유발법(site-directed mutagenesis)을 통해 생성되었습니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
부속 그림 1: 부위 지정 돌연변이 유발법으로 생성된 GFAP 돌연변이의 모식도.이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
일차 성상교세포 배양은 건강 및 질병 상태에서 성상교세포의 역할에 대한 우리의 이해를 크게 향상시켰습니다. McCarthy와 de Vellis21의 기초 연구를 바탕으로, 이러한 배양법은 성상교세포 특이적 과정, 특히 AxD 돌연변이가 GFAP 조립 및 응집체 형성에 미치는 영향에 대한 세부적인 탐구를 가능하게 하므로 AxD 연구에 매우 중요합니다.
일차 성상교세포의 성공적인 분리와 배양은 세포 생존력, 순도 및 재현성에 영향을 미치는 몇 가지 핵심 단계에 달려 있습니다. 조직 분해를 방지하고 단일 세포 현탁액으로의 완전한 해리를 보장하기 위해서는 뇌 조직의 신속하고 정밀한 박리뿐만 아니라 트립신 농도와 소화 시간의 세심한 최적화가 필수적입니다. 부드러운 trituration과 멸균 세포 스트레이너의 사용은 잔해물과 응집체를 제거함으로써 세포 순도를 더욱 높여줍니다. 이러한 단계에 이어 저속 원심분리와 신선한 배양 배지에서의 세심한 재현탁을 수행하면 변동성과 오염을 최소화하면서 높은 세포 생존력과 성장을 유지하는 데 도움이 됩니다. 분리 후에는 견고한 세포 부착을 보장하고 실험 목적을 달성하기 위해 표면 코팅의 선택이 매우 중요합니다. Poly-L-lysine (PLL)은 경제성과 강력한 세포 부착 촉진 능력으로 인해 자주 사용되지만, laminin22,23 및 collagen24과 같은 다른 코팅제는 in vivo 조건을 더 잘 모방하거나 특정 세포 연구를 용이하게 할 수 있습니다. 이러한 효과를 이해함으로써 연구자는 관련성 있고 재현 가능한 결과를 얻을 수 있는 실험을 설계할 수 있습니다.
기술적인 어려움에도 불구하고, 이 프로토콜은 불멸화 세포주보다 우수한 생리학적 관련 모델을 제공하므로 여전히 필수적입니다. 하지만 몇 가지 한계점을 인식하는 것이 중요합니다. 1) 분리 및 배양 과정은 기술적으로 까다로우며 전문적인 기술과 장비가 필요합니다. 기성 세포주와 비교했을 때, 이 방법은 시간이 더 많이 소요되고 변동성이 발생하기 쉬워 실험의 재현성에 영향을 줄 수 있습니다. 2) 성상교세포는 in vivo에서 상당한 지역적 이질성을 보이며25,26, 중추신경계(CNS)의 서로 다른 영역에서 뚜렷한 집단이 발견됩니다. 일차 성상교세포 배양은 일반적으로 피질이나 해마와 같은 특정 뇌 영역에서 유도되므로, CNS 전반의 성상교세포 집단의 다양성을 완전히 포착하지 못할 수 있습니다. 3) 분리 및 배양 과정은 외상성 절차, 효소 소화 및 인공 배양 조건에의 노출로 인해 성상교세포에서 반응성 상태를 유도하는 경우가 많습니다. 이러한 반응성 상태는 반응성 성상교증 연구에는 유용하지만, in vivo에서 부상이나 질병에 대한 성상교세포의 생리학적 반응을 정확하게 나타내지 못할 수 있습니다. 이는 실험 결과를 왜곡할 수 있는 비생리학적 아티팩트를 유발할 수 있습니다. 4) 일차 성상교세포 배양은 뉴런, 미세아교세포, 혈관내피세포 및 세포외 기질 성분과의 상호작용을 포함하여 in vivo에 존재하는 복잡한 뇌 미세환경이 결여되어 있습니다. 이러한 상호작용은 성상교세포의 기능과 스트레스 요인에 대한 반응에 결정적이며, 이러한 상호작용의 부재는 in vivo 행동을 완전히 재현하는 능력을 제한합니다. 5) 쥐나 생쥐와 같은 설치류 유래 일차 성상교세포는 인간 성상교세포와 비교하여 분자적 및 기능적 특성에서 상당한 차이가 있을 수 있습니다27,28. 이러한 요인들은 비생리학적 아티팩트를 유발할 수 있으므로, 신중한 실험 설계와 해석이 필요합니다. 이러한 과제를 해결하기 위해 자기 세포 분리29 또는 FACS 기반 분리30와 같은 추가 정제 단계를 거치면 더 순수한 성상교세포 집단을 얻을 수 있습니다. 이러한 방법들은 프로토콜의 복잡성을 증가시키지만, 성상교세포 특이적 기능에 대한 보다 정확한 연구를 가능하게 합니다.
일부 고급 프로토콜과 달리, 여기서 설명하는 방법은 일반적으로 사용 가능한 세포 배양 재료에 의존하며 고가의 장비가 필요하지 않습니다. 또한, 이 프로토콜은 분리 후 세포를 직접 플레이팅하여 추가적인 쉐이킹이나 계대 배양 없이 일차 배양 준비 과정을 단순화합니다31. 이러한 접근 방식은 GFAP 발현과 성상교세포의 반응성 상태를 더 잘 보존할 수 있습니다. 이 방법은 실행이 쉽고 재현성이 뛰어나며, 모든 CNS 영역의 세포에 적용 가능하여 연구자들에게 다용도 도구를 제공합니다. 이 프로토콜을 통해 농축된 일차 성상교세포는 고유의 세포 구조, 신호 전달 경로 및 기능적 특성을 유지하므로 광범위한 세포 생물학 및 생화학 연구에 적합합니다16,17,32. 적절한 기술적 전문성과 세심한 취급이 있다면, 이러한 배양 세포를 높은 생존율로 유지할 수 있으며 성상교세포의 형태, 기능 및 행동에 대한 가치 있는 통찰을 얻을 수 있습니다. 본 프로토콜은 특히 생후 쥐의 피질에서 성상교세포를 분리하도록 설계되었지만, 마우스나 해마, 척수와 같은 다른 뇌 영역에서 성상교세포를 분리하도록 쉽게 조정할 수 있습니다. 이러한 유연성 덕분에 이 방법은 신경과학의 다양한 연구 질문을 해결하는 데 매우 유용합니다. 질환 모델링의 경우, AxD 모델 쥐에서 유래한 성상교세포는 질환 관련 GFAP 돌연변이, Rosenthal fiber 형성 및 스트레스에 대한 병리적 반응을 재현할 수 있어33, AxD 메커니즘을 연구하는 강력한 플랫폼을 제공합니다.
정상 쥐에서 유래한 일차 성상교세포는 렌티바이러스 형질도입을 통해 유전적으로 조작될 수 있으며, 이를 통해 AxD 돌연변이가 GFAP 조립 및 응집체 형성에 미치는 영향을 탐구할 수 있습니다9,33. 이 과정에서 적절한 추출 버퍼를 선택하는 것이 매우 중요한데, 이는 형질도입된 성상교세포 내 돌연변이 GFAP의 용해성 특성 평가에 상당한 영향을 미치기 때문입니다34. 이온성 및 비이온성 세제의 조합으로 구성된 RIPA(Radioimmunoprecipitation assay) 버퍼는 응집체를 보존하면서 GFAP 필라멘트를 효과적으로 용해시키며10, 본 연구의 목적에 핵심적인 종합적인 생화학적 분석을 용이하게 합니다.
전반적으로, 일차 성상교세포 배양은 성상교세포의 생물학과 질환 기전, 특히 AxD를 연구하는 데 있어 다각적이고 강력한 플랫폼을 제공합니다. 프로토콜을 최적화하고 한계점을 보완함으로써 연구자는 재현성과 신뢰성을 높일 수 있으며, 이는 성상교세포의 기능을 이해하고 GFAP 관련 성상교세포증의 치료 표적을 식별하는 데 있어 이 방법을 필수적으로 만들어 줍니다.
공개 사항
저자들은 공개할 사항이 없습니다.
감사의 글
R237H 넉인(knock-in) 쥐를 제공해주신 Tracy Hagemann 박사(위스콘신-매디슨 대학교 Waisman Center)에게 감사드립니다. 본 연구는 국가과학기술연구회(National Science and Technology Council)의 지원(N.-H. L. 및 M.-D.P.에게 부여된 111-2320-B-007-008 및 112-2320-B-007-006)을 통해 수행되었습니다. 저자들은 국가과학기술연구회(NSTC-114-2740-M-007-001)의 지원을 받는 대만 국립 청화 대학교의 공초점 이미징 코어(confocal imaging core)의 지원에 감사드립니다. 또한 전자현미경을 사용할 수 있도록 지원해준 국립 청화 대학교 기기 센터(Instrument Center)에 감사드립니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1 M HEPES, pH 7.4 | Gibco | 15630-080 | |
| 100× 페니실린-스트렙토마이신 | Gibco | 15140-122 | |
| 10× 행크 균형염 용액 (HBSS) | Gibco | 14180-046 | |
| 2.5% 트립신(Trypsin) | Gibco | 15090046 | |
| 30% 아크릴아마이드/비스 용액 37.5:1 | Biorad | 1610158 | |
| anti-GFAP 항체 | Cell Signaling Technology | 12389 | |
| 항인간 GFAP 항체 | Biolegend | 837202 | SMI21 클로닝 |
| anti-panGFAP 항체 | Agilent | GA524 | |
| 항-유비퀴틴 항체 | Millipore | ST 1200 | FK2 클로닝 |
| 항비멘틴 항체 | Sigma-Aldrich | V6389 | 클론 V9 |
| 항-β III 튜불린 항체 | Biolegend | 801201 | |
| B27 보충제 | Gibco | 17504044 | |
| 염화 칼슘 (CaCl2)2) | Arcos | 34961 | |
| 세포 배양 관련 시약 | |||
| ChemiDoc 이미징 시스템 | BioRad | 해당 내용이 없습니다. | |
| 쿠마시 블루 염료 | USB | 32826 | |
| 시스테인 | Sigma-Aldrich | C1276 | |
| 디티오트레이톨(DTT) | 요로상피세포암(Urothelial Carcinoma) | DTT | |
| DNase I | Sigma-Aldrich | D5025 | |
| 다운스 균질기 (Dounce homogenizer) | Wheaton | ||
| Dulbecco's modified Eagle Medium (DMEM) | Corning | 10-013-CM | |
| 엔도톡신 제거 플라스미드 DNA 추출 키트 | Qiagen | 12943 | |
| 강화 화학발광(ECL) 시약 | PerkinElmer | NEL 105001 | |
| 에틸렌디아민테트라아세트산 (EDTA) | USB | 15699 | |
| 소 태아 혈청 | Gibco | A5209401 | |
| 포도당 | Sigma-Aldrich | G8270 | |
| GlutaMax | Gibco | 35050-061 | |
| 최소 필수 배지 (MEM) | Corning | 10-010-CVR | |
| NaCl | Honeywell | 31434S | |
| Neurobasal 배지 | Gibco | 21103049 | |
| Optima XE-90 초원심분리기 | Beckman | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | |
| 파파인 | 워딩턴 | LS003126 | |
| 페닐메틸설포닐 플루오라이드(PMSF) | ACROS ORGANICS | 215740050 | |
| 폴리에틸렌이민 | Sigma-Aldrich | P3143 | |
| 폴리-L-라이신 | Sigma-Aldrich | P6516 | |
| 염화칼륨(KCl) | Honeywell | 12636 | |
| 로다민 표지 항-액틴 항체 | BioRad | 12004164 | |
| 소듐 도데실 설페이트 (SDS) | USB | 75819 | |
| 피루브산 나트륨 | Gibco | 11360070 | |
| StarBright Blue 520 염소 항-마우스 IgG | Biorad | 12005867 | |
| StarBright Blue 700 goat anti-rabbit IgG | BioRad | 12004161 | |
| 설탕(Sucrose) | Sigma-Aldrich | S5391 | |
| SW-28 로터 | Beckman | 해당 사항 없음 | |
| TansIT-LT1 트랜스펙션 시약 | Mirus | MR-MIR-2300 | |
| TEMED | USB | 76320 | |
| Tris(hydroxymethyl)aminomethane (Tris) | USB | 75825 | |
| Triton X-100 | Sigma-Aldrich | T9284 | |
| β-머캅토에탄올 | Sigma-Aldrich | M3148 |
참고문헌
- Verkhratsky A, Nedergaard M. Physiology of astroglia. Physiol Rev. 2018;98(1):239-389.
- Eroglu C, Barres BA. Regulation of synaptic connectivity by glia. Nature. 2010;468(7321):223-31.
- Sofroniew MV. Astrogliosis. Cold Spring Harb Perspect Biol. 2014;7(2):a020420.
- Sofroniew MV, Vinters HV. Astrocytes: biology and pathology. Acta Neuropathol. 2010;119(1):7-35.
- Brandebura AN, Paumier A, Onur TS, Allen NJ. Astrocyte contribution to dysfunction, risk and progression in neurodegenerative disorders. Nat Rev Neurosci. 2023;24(1):23-39.
- Sofroniew MV. Molecular dissection of reactive astrogliosis and glial scar formation. Trends Neurosci. 2009;32(12):638-47.
- Hol EM, Pekny M. Glial fibrillary acidic protein (GFAP) and the astrocyte intermediate filament system in diseases of the central nervous system. Curr Opin Cell Biol. 2015;32:121-30.
- Brenner M, et al. Mutations in GFAP, encoding glial fibrillary acidic protein, are associated with Alexander disease. Nat Genet. 2001;27(1):117-20.
- Lin NH, Jian WS, Perng MD. Deletions in glial fibrillary acidic protein leading to alterations in intermediate filament assembly and network formation. Int J Mol Sci. 2025;26(5):1913.
- Yang AW, et al. Effects of Alexander disease-associated mutations on the assembly and organization of GFAP intermediate filaments. Mol Biol Cell. 2022;33(8):ar69.
- Lin NH, Perng MD. Experimental approaches for biochemical analysis of glial fibrillary acidic protein and its disease-associated variants. J Vis Exp. 2025;(225).
- Hagemann TL, Connor JX, Messing A. Alexander disease-associated glial fibrillary acidic protein mutations in mice induce Rosenthal fiber formation and a white matter stress response. J Neurosci. 2006;26(43):11162-73.
- Hagemann TL, et al. Antisense therapy in a rat model of Alexander disease reverses GFAP pathology, white matter deficits, and motor impairment. Sci Transl Med. 2021;13(620):eabg4711.
- Hagemann TL. Alexander disease: models, mechanisms, and medicine. Curr Opin Neurobiol. 2022;72:140-7.
- Lange SC, et al. Primary cultures of astrocytes: their value in understanding astrocytes in health and disease. Neurochem Res. 2012;37(11):2569-88.
- Lin NH, Yang AW, Chang CH, Perng MD. Elevated GFAP isoform expression promotes protein aggregation and compromises astrocyte function. FASEB J. 2021;35(5):e21614.
- Lin NH, Jian WS, Snider N, Perng MD. Glial fibrillary acidic protein is pathologically modified in Alexander disease. J Biol Chem. 2024;300(7):107402.
- Goya-Iglesias N, et al. Alexander disease mutations differentially sensitize glial fibrillary acidic protein (GFAP) to posttranslational modifications and network disruption by oxidants. Redox Biol. 2026;92:104103.
- Olabarria M, Putilina M, Riemer EC, Goldman JE. Astrocyte pathology in Alexander disease causes a marked inflammatory environment. Acta Neuropathol. 2015;130(4):469-86.
- Lee HG, Wheeler MA, Quintana FJ. Function and therapeutic value of astrocytes in neurological diseases. Nat Rev Drug Discov. 2022;21(5):339-58.
- McCarthy KD, de Vellis J. Preparation of separate astroglial and oligodendroglial cell cultures from rat cerebral tissue. J Cell Biol. 1980;85(3):890-902.
- Olsen ML, et al. Functional expression of Kir4.1 channels in spinal cord astrocytes. Glia. 2006;53(5):516-28.
- Strack A, et al. Chemokines are differentially expressed by astrocytes, microglia and inflammatory leukocytes in Toxoplasma encephalitis and critically regulated by interferon-gamma. Acta Neuropathol. 2002;103(5):458-68.
- East E, Golding JP, Phillips JB. A versatile 3D culture model facilitates monitoring of astrocytes undergoing reactive gliosis. J Tissue Eng Regen Med. 2009;3(8):634-46.
- Zhang Y, Barres BA. Astrocyte heterogeneity: an underappreciated topic in neurobiology. Curr Opin Neurobiol. 2010;20(5):588-94.
- Oberheim NA, Goldman SA, Nedergaard M. Heterogeneity of astrocytic form and function. Methods Mol Biol. 2012;814:23-45.
- Vasile F, Dossi E, Rouach N. Human astrocytes: structure and functions in the healthy brain. Brain Struct Funct. 2017;222(5):2017-29.
- Oberheim NA, et al. Uniquely hominid features of adult human astrocytes. J Neurosci. 2009;29(10):3276-87.
- Peterson IL, et al. Isolation and monoculture of functional primary astrocytes from the adult mouse spinal cord. Front Neurosci. 2024;18:1367473.
- Agalave NM, et al. Isolation, culture, and downstream characterization of primary microglia and astrocytes from adult rodent brain and spinal cord. J Neurosci Methods. 2020;340:108742.
- Du F, et al. Purity, cell viability, expression of GFAP and bystin in astrocytes cultured by different procedures. J Cell Biochem. 2010;109(1):30-7.
- Lin NH, et al. The role of gigaxonin in the degradation of the glial-specific intermediate filament protein GFAP. Mol Biol Cell. 2016;27(25):3980-90.
- Lin NH, Perng MD. Synergistic effects of glial fibrillary acidic protein mutation and overexpression in the pathogenesis of Alexander disease. Int J Mol Sci. 2026;27(10).
- Perng M, et al. The Alexander disease-causing glial fibrillary acidic protein mutant, R416W, accumulates into Rosenthal fibers by a pathway that involves filament aggregation and the association of alpha B-crystallin and HSP27. Am J Hum Genet. 2006;79(2):197-213.
재인쇄 및 허가
태그
이 논문이 게재되었습니다
동영상 곧 제공