Verontreiniging van de voorbereidingen van eukaryotische ribosomen gezuiverd door middel van traditionele methoden door co-zuiveren nucleasen en proteasen negatief effect op de downstream-biochemische en structurele analyses. Een snelle en eenvoudige chromatografische zuivering methode wordt gebruikt om dit probleem op met behulp van gist ribosomen als een modelsysteem op te lossen.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Chromatografische zuivering van sterk actieve gist Ribosomen
In dit artikel
Samenvatting
Samenvatting
Eukaryotische ribosomen zijn veel meer labiel in vergelijking met hun eubacteriële en archael tegenhangers, waardoor die een belangrijke uitdaging voor onderzoekers. Bijzonder lastig is het feit dat lysis van de cellen een groot aantal proteasen en nucleasen die kunnen afbreken ribosomen releases. Zo is het belangrijk om ribosomen te scheiden van deze enzymen zo snel mogelijk. Helaas, conventionele differentieel ultracentrifugatie methoden laat ribosomen blootgesteld aan deze enzymen voor onaanvaardbaar lange tijd, invloed zijn op hun structurele integriteit en functionaliteit. Om dit probleem, wij maken gebruik van een chromatografische methode met behulp van een cysteïne gebracht Sulfolink hars. Deze eenvoudige en snelle toepassing vermindert co-zuiverende proteolytische en nucleolytische activiteiten, het produceren van hoge opbrengsten van een intact, zeer biochemisch actieve gist ribosomen. Wij stellen voor dat deze methode ook moeten gelden voor zoogdieren ribosomen. De eenvoud vande methode, en de verbeterde zuiverheid en activiteit van chromatografisch gezuiverd ribosoom is een belangrijke technische vooruitgang voor de studie van eukaryotische ribosomen.
Protocol
1. De voorbereiding van een cysteine geladen Sulfolink hars
- Bereid Sulfolink hars (Pierce) bij kamertemperatuur.
- Plaats een totaal van 10 ml van een 50% suspensie van Sulfolink koppeling gel zoals geleverd door de fabrikant in twee 10 ml plastic flacons met 5 ml verdeeld in elke flacon.
- Kort centrifuge flacons bij 850 xg en verwijder voorzichtig supernatant.
- Was de gel drie keer in koppeling-buffer (50 mM Tris, pH 8,5, 5 mM EDTA) door resuspenderen de kralen in 5 ml, centrifugeren even op 850 xg en het verwijderen van het supernatant met een pipet.
- Voeg vervolgens vijf ml van een 50 mM oplossing van L-cysteïne in koppeling buffer aan elke buis en meng de slurry gedurende 1 uur bij 25 ° C.
- Verwijder de resterende L-cysteïne door wassen zoals beschreven in stap 1.4 hierboven.
- Resuspendeer de gel in 10 ml van een bindende buffer [20 mM HEPES, pH 7,6, 5 mM Mg (OAc) 2, 60 mM NH 4 Cl, 2 mM DTT], en evenwicht van de hars door wassen in 10 ml bindingsbuffer3 keer zoals beschreven in stap 1.4. Giet hars in een 10 ml centrifuge kolom, cap en opgeslagen bij 4 ° C. De hars capaciteit voor RNA-binding is ~ 20 A 260 eenheden per ml.
2. Chromatografische zuivering van ribosomen met behulp van een cysteïne geladen Sulfolink hars
Opmerking: Als het werken met een stam waar de protease-activiteit blijkt te zijn een probleem, protease remming cocktails kan worden gebruikt in alle volgende buffers.
- Onderhoud van alle componenten op het ijs en voor te bereiden alle oplossingen met behulp van RNase-vrij water en steriele filtratie.
- Grow gistcellen 's nachts tot midden-log fase (OD 595 = 0.6-1.2) in geschikte media. Pellet cellen door centrifugeren, en was een gram cellen in bindingsbuffer en centrifugeer bij 3700 xg gedurende 5 minuten bij 4 ° C.
- Resuspendeer cellen in 1 ml van een bindende buffer naar een totaal volume van ongeveer 2 ml, en verstoren met behulp van een gelijk volume van 0,5 mm glazen kralen gekoeld tot 4 ° C uzingen een Biospec Mini-bead beater (Bartlesville, OK). Monsters kunnen worden opgesplitst in meerdere buizen als dat nodig is.
- Verwijder de ongebroken cellen, organellen, en cellulaire puin door centrifugatie bij 30.000 xg gedurende 30 minuten in een Beckman-Coulter Optima Max E ultracentrifuge (Fullerton, CA).
- Vlak voor het gebruik, pellet de hars van een minuut bij 1000 xg tot de opslag oplossing te verwijderen. Twee ml van de hars wordt gebruikt voor elke gram een van de cellen.
- Verwijder cellysaat supernatanten van de 30.000 xg spin (S30), en zorg ervoor dat contaminatie van ofwel de lipide fractie aan de top of de cel puin op de bodem van de buizen, en plaats te minimaliseren direct in de in rekening gebrachte Sulfolink slurry. De lipide laag kan worden vermeden ofwel door het verwijderen of door te duwen uit de pipet na de tip heeft overschreden in het supernatant.
- Incubeer de S30/Sulfolink mengsel op ijs zonder het te mengen gedurende 15 minuten.
- Plaats de kolommen in 15 ml conische buizen en centrifugeer bij 1000 xg gedurender een minuut.
- Plaats de doorstroomsysteem fracties in de kolommen, meng met de hand, en incubeer nog 15 minuten op ijs.
- Plaats de kolommen in 15 ml conische buizen en centrifugeer bij 1000 xg gedurende een minuut. Gooi het doorstroomsysteem.
- Cap kolommen en voeg 5 ml van de binding buffer. Meng kolommen met de hand tot geresuspendeerd, verwijdert u de doppen, en centrifugeer de kolommen centrifuge bij 1000 xg gedurende een minuut. Herhaal dit protocol het wassen twee keer.
- Voeg 1,5 ml elutie buffer (20 mM HEPES-KOH, pH 7,6, 10 mM Mg (OAc) 2, 500 mM KCl, 2 mM DTT, 0,5 mg / ml heparine) om elke kolom. Meng slurries met de hand, en incubeer op ijs gedurende 2 minuten
- Plaats kolommen in nieuwe 15 ml conische buizen en centrifugeer bij 1000 xg gedurende 1 minuut. Verzamel eluaat. Herhaal de elutie stap eens te meer, zodat de uiteindelijke combinatie monster volumes zijn ~ 3 ml. Gebruikte hars kan worden gewassen met elutiebuffer zonder heparine, gevolgd door evenwicht met bindende Buffer, en opgeslagen in 10 ml volumes van bindingsbuffer bij 4 ° C voor hergebruik later.
3. Puromycine behandeling
Opmerking: Een alternatieve methode om te verwijderen vervuilende tRNA soorten is over te schakelen van een glucose rijk aan glucose uitgeput media om ribosoom afvoer te bevorderen. Echter, dit verandert de metabole status van de gistcellen, die ribosoom functie en concentratie zou kunnen beïnvloeden.
Met het oog op de ribosomen strook van endogene peptidyl-tRNA, een behandeling met puromycine wordt uitgevoerd.
- Neutraliseren tot pH 7,5 100 mM puromycine oplossing door het toevoegen van 1 M KOH druppelsgewijs bij kamertemperatuur.
- Voeg geneutraliseerd puromycine oplossing voor ~ 1 mM uiteindelijke concentratie in eluaat.
- Voeg 100 mM GTP tot een uiteindelijke concentratie van 1 mM.
- Incubeer gedurende 30 minuten bij 30 ° C.
4. Zuivering van ribosomen door sedimentatie door glycerol kussens
- Plaats een mlvan kussen buffer (20 mM HEPES, pH 7,6, 10 mM Mg (OAc) 2, 500 mM KCl, 2 mM DTT, 25% glycerol) in een 4 ml volume polycarbonaat ultracentrifuge buis.
- Voorzichtig laag puromycine behandeld elutie fracties op de top van het kussen, en centrifugeer monsters op 100.000 xg overnacht bij 4 ° C.
- Verwijderen van buizen uit de centrifuge rotor, en zuig supernatants.
- Was de pellets met gezuiverde ribosomen tweemaal met 1 ml kussen buffer.
- Resuspendeer ribosomen in 100 ul buffer kussen door lichte verstoring met een glazen staaf.
- Na de onderbreking, bedek buizen met parafilm en schud bij een gematigde snelheid in een koude kamer vortex gedurende een uur.
- Breng de inhoud naar een microcentrifugebuis, centrifugeren gedurende 5 minuten op maximale snelheid bij 4 ° C, en verwijder supernatant in de frisse buizen.
- Herhaal de stappen 4,1 tot 4,7 met behulp van 2 ml van de buffer en kussen, behalve dat 100 ul van opslag buffer (50 mM HEPES-KOH pH 7,6, 50 mM NH 4 Cl, 5 mM Mg(OAc) 2, is 1 mM DTT, 25% glycerol) worden gebruikt in de stappen 4.4 en 4.5 in plaats van kussen buffer.
- Kwantificeren van de gezuiverde ribosomen spectrofotometrisch (1 A 260 = 20 pmol van gist ribosomen), en bewaar bij -80 ° C. Typische resultaten van 1 gram gist worden 300-400 pmol van ribosomen.
5. Representatieve resultaten:
Een voorbeeld van RNA soorten uit elk van de drie belangrijkste stappen van het protocol is weergegeven in figuur 2. Terwijl rRNAs zijn de belangrijkste soorten die aanwezig zijn in totaal cellysaten (T) ook deze bevatten een groot aantal andere soorten RNA. Ribosomen gezuiverd van de Sulfolink kolom (SL) bevatten ook een grote hoeveelheid tRNA's als gevolg van de hoge affiniteit van de kolom bed voor deze soorten ook. Behandeling van deze fractie met puromycine resulteert in hydrolyse van peptiden van peptidyl-tRNA's, en bevordert dissociatie van deze soorten uit ribosomen. De puromycine behandelde monsters (Pm) gebrek aan co-purifying tRNA soorten, en vormen dus helemaal zuiver ribosomen. Zoals eerder gemeld 8, zijn deze ribosomen zijn zeer intact en biochemisch actief is, waardoor ze ideaal zijn substraten voor gedetailleerde functionele en structurele analyses.
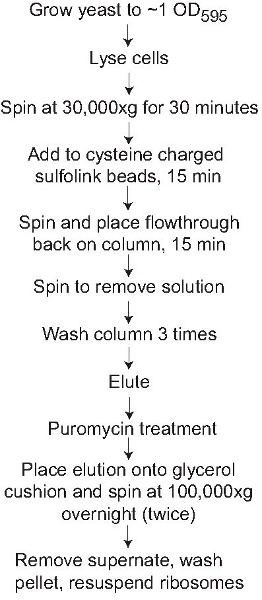
Figuur 1. Methode Flowchart. Chromatografisch zuivering van ribosomen met behulp van de cysteïne gekoppelde sulfolink hars is afgebeeld.
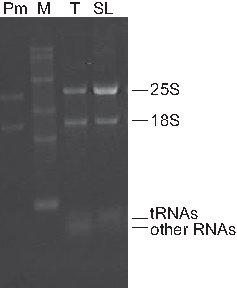
Figuur 2. Representatieve analyse van de ribosoom de voorbereidingen. Totaal RNA soorten werden geëxtraheerd uit totaal cellysaten (T), Sulfolink gezuiverd ribosomen (SL) en Sulfolink gezuiverd ribosomen vervolgens behandeld met puromycine en afgezet door middel van een glycerol kussen (Pm). Lane M staat voor RNA grootte markers. Bands die 25S en 18S rRNA, evenals tRNA's en andere soorten RNA worden aangegeven. Allerijstroken werden geladen met 2 ug van RNA.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Ribosoom zuivering protocollen in principe te betrekken lyseren cellen, het oogsten een cytosolische fractie van een lage snelheid draaien, en dan pelletering ribosomen door de hoge snelheid centrifugeren 1. Terwijl een paar nieuwe methoden zijn gebruikt voor het zuiveren van bacteriële ribosomen, had hetzelfde niet geldt voor eukaryoten 2-4. Hoewel de extra stappen zijn toegevoegd aan de jaren, zoals het zout wast, en glycerol kussens (bijv. zie 5), hebben biochemische en structurele st...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Geen belangenconflicten verklaard.
Dankbetuigingen
Wij willen iedereen bedanken van de leden van de Dinman laboratorium, waaronder Ashton Belew, Karen Jack, Sharmishtha Musalga, Sergey Sulima, Shivani Reddy, en Michael Rhodin voor hun hulp en inbreng aan dit project. Dit werk werd ondersteund door subsidies aan AM van de American Heart Association (AHA 0630163N) en JDD van de National Institutes of Health (5R01 GM058859-12). JAL werd ondersteund door een Amerikaanse Reinvestment and Recovery Act van 2009 aan te vullen aan de ouder-subsidie (3R01GM058859-11S1).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Naam van het reagens | Vennootschap | Catalogus nummer | |
| Sulfolink Koppeling hars | Doorboren | 20402 | |
| Mini bead-beater 16 | Biospec | 607 | |
| Optima Max E ultracentrifuge | Beckman Coulter | ||
| Legende RT | Sorvall | ||
| 0,5 mm Glas kralen | Biospec | 11079105 | |
| Tris | Sigma-Aldrich | 252859 | |
| EDTA | Sigma-Aldrich | E9884 | |
| DTT | Sigma-Aldrich | 43815 | |
| HEPES | Sigma-Aldrich | 54459 | |
| NH 4 Cl | Sigma-Aldrich | A9434 | |
| KCl | Sigma-Aldrich | 60128 | |
| Mg (OAc) 2 | Sigma-Aldrich | M5661 | |
| KOH | Sigma-Aldrich | 221473 | |
| Glycerol | Sigma-Aldrich | G5516 | |
| Puromycine | Sigma-Aldrich | P7255 | |
| GTP | Fermentas | R0461 |
Referenties
- Palade, G. E., Siekevitz, P. Liver microsomes; an integrated morphological and biochemical study. J. Biophys. Biochem. Cytol. 2, 171-200 (1956).
- Fabry, M., Kalvoda, L., Rychlik, I. Hydrophobic interactions of Escherichia coli ribosomes. Biochim. Biophys. Acta. 652, 139-150 (1981).
- Jelenc, P. C. Rapid purification of highly active ribosomes from Escherichia coli. Anal. Biochem. 105, 369-374 (1980).
- Le goffic, F., Moreau, N., Chevelot, L., Langrene, S., Siegrist, S. Purification of bacterial ribosomes using chloramphenicol and erythromycin columns. Biochimie. 62, 69-77 (1980).
- Meskauskas, A., Petrov, A. N., Dinman, J. D. Identification of functionally important amino acids of ribosomal protein L3 by saturation mutagenesis. Mol. Cell Biol. 25, 10863-10874 (2005).
- Algire, M. A. Development and characterization of a reconstituted yeast translation initiation system. RNA. 8, 382-397 (2002).
- Maguire, B. A., Wondrack, L. M., Contillo, L. G., Xu, Z. A novel chromatography system to isolate active ribosomes from pathogenic bacteria. RNA. 14, 188-195 (2008).
- Leshin, J. A., Rakauskaite, R., Dinman, J. D., Meskauskas, A. Enhanced purity, activity and structural integrity of yeast ribosomes purified using a general chromatographic method. RNA. Biol. 7, 354-360 (2010).
- Triana, F., Nierhaus, K. H., Chakraburtty, K. Transfer RNA binding to 80S ribosomes from yeast: evidence for three sites. Biochem. Mol. Biol. Int. 33, 909-915 (1994).
- Azzam, M. E., Algranati, I. D. Mechanism of puromycin action: fate of ribosomes after release of nascent protein chains from polysomes. Proc. Natl. Acad. Sci. U. S. A. 70, 3866-3869 (1973).
- Nathans, D. Puromuycin inhibition of protein synthesis: incorporation of puromycin into peptide chains. Proc. Natl. Acad. Sci. U. S. A. 51, 585-592 (1964).
- Rabinovitz, M., Fisher, J. M. A dissociative effect of puromycin on the pathway of protein synthesis by Ehrlich ascites tumor cells. J. Biol. Chem. 237, 477-481 (1962).
- Allen, D. W., Zamecnik, P. C. The effect of puromycin on rabbit reticulocyte ribosomes. Biochim. Biophys. Acta. 55, 865-874 (1962).
- Yarmolinsky, M. B., Haba, G. L. Inhibition by puromycin of amino acid incorporation into protein. Proc. Natl. Acad. Sci. U. S. A. 45, 1721-1729 (1959).
- Becker-Ursic, D., Davies, J. In vivo and in vitro phosphorylation of ribosomal proteins by protein kinases from Saccharomyces cerevisiae. Biochemistry. 15, 2289-2296 (1976).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
