Membraantransport omvat het transport van eiwitten van het plasmamembraan naar het celinterieur (d.w.z. endocytose) gevolgd door transport naar lysosomen voor afbraak of naar het plasmamembraan voor recycling. De methoden die in dit artikel worden beschreven, zijn ontworpen om endocytose en recycling van plasmamembraaneiwitten te bestuderen.
Methodenartikel
De op cellen gebaseerde L-glutathionebeschermingstests om endocytose en recycling van plasmamembraaneiwitten te bestuderen
In dit artikel
Samenvatting
Samenvatting
Membraantransport omvat het transport van eiwitten van het plasmamembraan naar het celinterieur (d.w.z. endocytose) gevolgd door transport naar lysosomen voor afbraak of naar het plasmamembraan voor recycling. De celgebaseerde L-glutathion beschermingsassays kunnen worden gebruikt om endocytose en recycling van eiwitreceptoren, kanalen, transporters en adhesiemoleculen die zich op het celoppervlak bevinden, te bestuderen. De endocytische assay vereist het labelen van celoppervlakte-eiwitten met een celmembraan ondoordringbare biotine die een disulfidebinding bevat en de N-hydroxysuccinimide (NHS) ester bij 4 ºC - een temperatuur waarbij membraantransport niet optreedt. Endocytose van gebiotineerde plasmamembraaneiwitten wordt geïnduceerd door incubatie bij 37 ºC. Vervolgens wordt de temperatuur weer verlaagd tot 4 ºC om endocytische trafficking te stoppen en wordt de disulfidebinding in biotine die covalent is gekoppeld aan eiwitten die aan het plasmamembraan zijn gebleven, gereduceerd met L-glutathion. Op dit punt blijven alleen eiwitten die zijn geëndocyteerd beschermd tegen L-glutathion en blijven dus gebiotineerd. Na cellyse worden gebiotineerde eiwitten geïsoleerd met streptavidine agarose, geëlueerd uit agarose en het gebiotineerde eiwit van belang wordt gedetecteerd door western blotting. Tijdens de recycling assay worden na biotinylering cellen geïncubeerd bij 37 °C om endocytische vesikels te laden met gebiotineerde eiwitten en de disulfidebinding in biotine die covalent is gekoppeld aan eiwitten die aan het plasmamembraan zijn gebleven, wordt gereduceerd met L-glutathion bij 4 ºC zoals in de endocytische assay. Vervolgens worden cellen opnieuw geïncubeerd bij 37 °C om biotinylerende eiwitten uit endocytische vesikels te laten recyclen naar het plasmamembraan. Cellen worden vervolgens geïncubeerd bij 4 ºC en de disulfidebinding in biotine die is gekoppeld aan eiwitten die naar het plasmamembraan zijn gerecycled, wordt gereduceerd met L-glutathion. De gebiotineerde eiwitten die zijn beschermd tegen L-glutathion zijn diegene die niet zijn gerecycled naar het plasmamembraan.
Inleiding
Alle levende cellen verwerken informatie door middel van het transporteren van lading, zoals extracellulaire liganden, micro-organismen, voedingsstoffen, transmembraaneiwitten en lipiden van het plasmamembraan naar endocytische blaasjes (d.w.z. endocytose). Een wederkerig proces genaamd recycling brengt endocytose in evenwicht en brengt veel van het geïnternaliseerde membraan en de lading terug naar het celoppervlak. Het evenwicht tussen endocytose en recycling bepaalt de samenstelling van het plasmamembraan en voorziet cellen van informatie die in tijd en ruimte is opgelost. Endocytose en recycling zijn hoofdregulatoren van diverse cellulaire functies zoals opname van voedingsstoffen en metabolisme, ontwikkeling, proliferatie, differentiatie en polariteit, herprogrammering, migratie, celadhesie en migratie, cytokinese en neurotransmissie1-3. Endocytische en recyclingpaden zijn zeer dynamisch en zeer gecoördineerd en laten cellen toe om het equivalent van het gehele plasmamembraan 1-5x per uur te vervangen.
De celgebaseerde L-glutahione beschermingsassays zijn nuttig om endocytose en recycling van transmembraaneiwitten, inclusief receptoren, kanalen, transporteurs en adhesiemoleculen in epitheliale en niet-epitheliale cellen te bestuderen4-8. We hebben eerder endocytose en recycling van de Cystic Fibrosis Transmembraan Conductance Regulator (CFTR) bestudeerd in menselijke luchtwegepitheliale cellen en HEK293 cellen9-15. De op biotinylering gebaseerde assays die in het manuscript worden beschreven, zijn geoptimaliseerd voor het onderzoeken van endocytose en recycling in epitheliale cellen die onder polariserende omstandigheden worden gekweekt op semipermeabele groeionderlagen. Deze protocollen kunnen worden aangepast om endocytose en recycling van eiwitten in epitheliale cellen te bestuderen die in plastic weefselkweekschalen worden gekweekt of in niet-epitheliale cellen. Figuren 1 en 2 bevatten voorbeelden van endocytische en recycling assays in epitheliale en niet-epitheliale cellen.
Endocytische assays worden uitgevoerd zoals eerder beschreven9-15. Cellen worden gekweekt op collageen gecoate semipermeabele groeionderlagen11,14. Als alternatief kunnen cellen worden gekweekt in collageen gecoate plastic weefselkweekschalen10,15. Cellen worden snel afgekoeld tot 4 ºC om membraanverkeer te stoppen en de plasmamembraaneiwitten worden op 4 °C gelabeld met een celmembraanondoorlaatbare biotin. Biotin reageert met ε-amine van lysineresiduen en de disulfidebinding is thiol-afbreekbaar. Na biotinylering worden cellen geïncubeerd bij 37 °C om eiwitverkeer te induceren en endocytische blaasjes te laden gedurende 2,5, 5,0, 7,5 of 10 min. Vervolgens worden cellen afgekoeld tot 4 °C en wordt de disulfidebinding in biotin dat covalent is bevestigd aan plasmamembraaneiwitten gereduceerd met L-glutathion (GSH). Op dit punt in het protocol worden alleen eiwitten die van het plasmamembraan zijn geëndocyteerd beschermd tegen GSH en blijven dus biotinyleerd. Cellen die na biotinylering op 4 °C blijven zonder incubatie bij 37 ºC of de GSH-behandeling zouden dienen om de hoeveelheid CFTR die op tijd nul is biotinyleerd te bepalen. Cellen die na biotinylering op 4 °C blijven zonder incubatie bij 37 ºC maar met GSH-behandeling zouden dienen om de efficiëntie van de reductie van de disulfidebindingen te bepalen. Na de hierboven beschreven behandelingen worden cellen gelyseerd, worden biotinylerende eiwitten geïsoleerd door middel van streptavidine agarose, elueerden in SDS-steekbuffer en gescheiden door SDS-PAGE. Het eiwit van belang wordt in de biotinylerende steekproeven gedetecteerd door western blotting. De hoeveelheid biotinylerend eiwit op 4 ºC op tijd nul (zonder de 37 ºC opwarming) wordt beschouwd als 100%. De hoeveelheid eiwit die na GSH-behandeling op 4 °C nog biotinyleerd is, wordt beschouwd als achtergrond en wordt afgetrokken van de hoeveelheid eiwit die na opwarming tot 37 ºC op verschillende tijdstippen nog biotinyleerd is. Eiwitendocytose wordt berekend na aftrekking van de achtergrond en wordt uitgedrukt als het percentage biotinylerend eiwit op elk tijdstip na opwarming tot 37 ºC vergeleken met de hoeveelheid biotinylerend eiwit aanwezig op tijd nul.
Recycling assays worden uitgevoerd zoals eerder beschreven11,16. Cellen worden gekweekt op collageen gecoate semipermeabele groeionderlagen11. Als alternatief kunnen cellen worden gekweekt op collageen gecoate plastic weefselkweekschalen13. Cellen worden opgewarmd tot 37 °C na biotinylering om endocytische blaasjes te laden met biotinylerende eiwitten. Het tijdstip van de eerste incubatie bij 37 ºC wordt bepaald door het tijdstip waarop endocytose van het eiwit van belang maximaal is tijdens de lineaire toename van het endocytische signaal. De tijd is eiwitspecifiek en kan afhankelijk zijn van het celtype en de celkweekcondities. In onze ervaring bereikte CFTR-endocytose maximaal na 5,0 of 7,5 min13,14 (Figuren 1 en 2). Vervolgens worden cellen onmiddellijk afgekoeld tot 4 °C en wordt de disulfidebinding in biotin dat is bevestigd aan plasmamembraaneiwitten gereduceerd met GSH. Vervolgens worden cellen gelyseerd om de hoeveelheid geëndocyteerd eiwit van belang te bepalen of opnieuw opgewarmd tot 37 °C gedurende verschillende periodes van tijd om geëndocyteerd biotinylerend eiwit van belang toe te laten recyclen naar het plasmamembraan. Cellen worden vervolgens weer afgekoeld tot 4 °C en wordt de disulfidebinding op biotin dat is bevestigd aan eiwitten gereduceerd die naar de plasmamembranen zijn gerecycled
Protocol
1. Zaaien van cellen
- Behandel 24 mm filters vooraf met 10% collageen I (bereid 10% collageen I in minimaal essentieel medium (MEM), bedek het volledige oppervlak van het filter met de collageenoplossing, incubeer onder UV-licht bij kamertemperatuur gedurende 30 min, en in een cellenkweekincubator bij 37 ºC gedurende 1 uur, zuig het overtollige collageen na incubatie af).
- Bereid cellenkweekmedium voor (MEM begast met CO2 gedurende 20 min, 10% foetaal runderserum (FBS), 50 U/ml penicilline, 50 U/ml streptomycine, 2 mM L-glutamine, 0.5 μg/ml puromycine)
- Zaai CFBE41o- cellen op zes 24 mm filters voor endocytose en recycling, respectievelijk, op 1 x 10⁶/filter.
- Verwijder het apicale medium de dag na het zaaien en voed dagelijks vanaf de basolaterale zijde alleen.
- Voed met selectie antibioticum negatief medium 24 uur voor het experiment. Voer het experiment uit in CFBE41o- cellen 6-10 dagen na het zaaien.
2. Voorbereidingen vóór het experiment (Vergelijkbaar voor de endocytose- en recyclingstest)
- Stel een werkruimte in in de koude ruimte. Endocytische en recyclingstests moeten worden uitgevoerd in de koude ruimte, behalve voor de incubatie bij 37 °C. Platen met de 24 mm filters moeten direct op de werkblad in de koude ruimte worden geplaatst.
- Schakel de 37 ºC incubator in.
- Bereid 500 ml PBS++, pH 8.2 (Dulbecco’s fosfaat gebufferde zoutoplossing (PBS), 1 mM magnesiumchloride en 0.1 mM calciumchloride, pH 8.2) en bewaar 250 ml bij 37 °C in een incubator en 250 ml bij 4 °C in de koude ruimte.
- Vul putjes in een 6 well plate met PBS++, pH 8.2, 37 °C en bewaar in de incubator bij 37 °C.
- Vul putjes in een andere 6 well plate met PBS++, pH 8.2, 4 °C en bewaar in de koude ruimte bij 4 °C.
- Bereid 100 ml PBS++, pH 8.6 bij 4 °C en bewaar in de koude ruimte.
- Bereid biotin met de disulfidebinding en NHS-ester in een concentratie van 0,8 mg/ml in PBS++, pH 8.2, 4 °C binnen 30 min van de biotinyleringsstap (het volume van biotin buffer moet het hele oppervlak van het filter volledig bedekken); we raden 1,5 ml/24 mm filter aan.
- Bereid 100 ml van GSH-buffer in water, pH 8.6 en koel af tot 4 ºC (75 mM natriumchloride, 1 mM magnesiumchloride en 0.1 mM calciumchloride, 50 mM GSH, 80 mM natriumhydroxide en 10% FBS). GSH en natriumhydroxide moeten net voor het experiment worden toegevoegd. Controleer de pH en pas aan tot 8.6; natriumhydroxide neutraliseert de carboxylgroepen en deprotoneert de helft van de cysteïneresidu's in glutathion. Het is sterk gebufferd bij de pKa van deze cysteïne, die 8.64 is. (Bereid hetzelfde volume GSH-buffer voor voor de recyclingstest).
- Bereid 50 ml Lysis buffer, pH 8.2 en bewaar bij 4 °C (25 mM HEPES, pH 8.2, 1% (v/v) Triton X-100, 10% (v/v) glycerol); voeg Complete protease remmercocktail toe per 50 ml lysibuffer en koel af tot 4 ºC; controleer de pH na het toevoegen van Complete omdat een pH-daling kan optreden.
- Bereid Laemli sample buffer met 100 mM DTT.
- Bereid 1x Running buffer (100 ml van 10x Running buffer, 900 ml water).
- Bereid 1x Transfer buffer en koel af tot 4 ºC (100 ml van 10x Transfer buffer zonder natriumdodecylsulfaat (SDS), 200 ml methanol, 700 ml water).
3. Endocytische test
CFTR polariseert naar het apicale membraandomein; dus, het protocol beschrijft biotinylering van het apicale membraandomein. Biotinylering van het basolaterale membraandomein is vereist om endocytose van eiwitten die naar het basolaterale membraan polariseren te bestuderen.
Werkwijze: Biotinylering van celoppervlakte-eiwitten bij 4 ºC → Opwarmen tot 37 ºC om endocytische vesikel te laden met biotinyleerde eiwitten → Afkoelen tot 4 ºC om endocytische verkeer te stoppen → Reductie van de disulfidebinding in biotin die aan eiwitten die aan het celoppervlak zijn gebleven is gehecht → Cellysis → Isolatie van biotinyleerde (d.w.z. endocytosede) eiwitten met streptavidin agarose → Elutie van biotinyleerde eiwitten van streptavidin agarose → Eiwitelektroforese en westerse blotting.
- Breng de plaat met zes 24 mm filters (Tabel 1: monsters a-c) uit de cellenkweekincubator en breng snel over naar de plaat gevuld met koude (4 ºC) PBS++, pH 8.2 op ijs.
- Laat PBS++ het apicale oppervlak overstromen om het hele oppervlak snel te bedekken. Breng de plaat op ijs naar de koude ruimte en zet op de werkblad.
- Verwijder PBS++ snel door de plaat ondersteboven te draaien en de filters op hun plaats te houden om te voorkomen dat ze eruit vallen. Voeg ~2 ml PBS++ toe aan de apicale en basolaterale zijde.
- Was filters met ~2 ml koude PBS++, pH 8.2 3x gedurende 2
Resultaten
CFTR-endocytose werd bestudeerd in CFBE41o-cellen gekweekt op collageen-gecoate filters (Figuur 1). Gebiotineerde CFTR werd gevisualiseerd via western blotting met muis monoklonaal antilichaam, kloon 596 en een anti-muis mierikswortelperoxidase-antilichaam met behulp van het western blotting-detectiesysteem, gevolgd door chemiluminescentie. Kwantificering van gebiotineerde CFTR werd uitgevoerd via densitometrie met belichtingen binnen het lineaire dynamische bereik van de film. CFTR-endocytose werd berekend na aftrek van de achtergrond en werd uitgedrukt als het percentage gebiotineerde CFTR op elk tijdstip na opwarming tot 37 ºC vergeleken met de hoeveelheid gebiotineerde CFTR aanwezig op tijdstip nul (Figuren 1A en 1B). CFTR-endocytose was lineair tussen 0-7,5 min. Experimenten waarbij de achtergrond-CFTR >10% was, werden uitgesloten vanwege een inefficiënte GSH-behandeling (Figuur 1D).
CFTR-recycling werd bestudeerd in HEK293-cellen gekweekt in met collageen gecoate weefselkweekschalen (Figuur 2). CFTR-endocytose was lineair tussen 0,0-5,0 min en bereikte het maximum bij het tijdstip van 5,0 min (Figuur 2A); daarom werden de cellen 5,0 min bij 37 ºC geïncubeerd om endocytische blaasjes te laden met gebiotineerde eiwitten, waaronder CFTR (Figuren 2B en 2C). De recycling van geendocyteerde CFTR werd berekend als het verschil tussen de hoeveelheid gebiotineerde CFTR na de eerste en tweede GSH-behandeling.
Tabel 1. Endocytotische assays.
| Endocytose | BT | GSH | Endo-2,5 | Endo-5,0 | Endo-7,5 | Endo-10,0 |
| Monster | a | b | c2,5 | c5,0 | c7,5 | c10,0 |
| Biotine | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2,5 min | 5,0 min | 7,5 min | 10 min |
| GSH | (-) | + | + | + | + | + |
Tabel 2. Recycling-assay.
| Recycling | BT | GSH | Endo-5 | Rec-2.5 | Rec-5.0 |
| Monster | a | b | c | d2.5 | d5.0 |
| Biotine | + | + | + | + | + |
| 1e 37 ºC | (-) | (-) | 5 min | 5 min | 5 min |
| 1e GSH | (-) | (-) | + | + | + |
| 2e 37 ºC | (-) | (-) | + | + | + |
| 2e GSH | (-) | (-) | (-) | 2.5 min | 5 min |
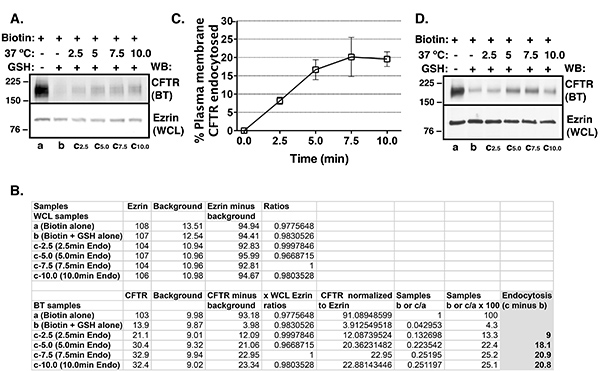
Figuur 1. Overzicht van endocytose-assays uitgevoerd om CFTR-endocytose in CFBE41o- cellen te bepalen. Cellen werden gekweekt op met collageen gecoate filters. Representatieve western blots (A), representatieve densitometrie-waarden (B) en een overzicht van experimenten (C) die CFTR-endocytose als functie van de tijd aantonen. Selectieve biotinylering van het celoppervlak en western blotting werden gebruikt om de abundantie van plasma-membraan CFTR te bepalen. Proteinabundantie werd gekwantificeerd via densitometrie met belichtingen binnen het lineaire dynamische bereik van de film. Op tijdstip nul werd de hoeveelheid gebiotinyleerde (BT) CFTR beschouwd als 100% (Tabel 1: monster a). Op tijdstip nul werd de hoeveelheid BT CFTR die overbleef na GSH-behandeling beschouwd als een CFTR-achtergrond (monster b; let op dat dit een andere achtergrond is dan degene die van alle monsters is afgetrokken, zoals getoond in Figuur 1B). De CFTR-achtergrond was 6,7 ± 0,9% (gemiddelde ± S.E.M.) in de experimenten die voor analyse zijn meegenomen. De CFTR-achtergrond werd afgetrokken van de BT CFTR na 2,5, 5,0, 7,5 of 10 min opwarming bij 37 ºC (monsters c min monster b). CFTR-endocytose werd uitgedrukt als het percentage CFTR dat nog gebiotinylereerd was op de tijdstippen 2,5, 5,0, 7,5 of 10 min na aftrek van de CFTR-achtergrond. CFTR-endocytose was lineair tussen nul en 7,5 min. Ezrin-abundantie in het totale cellysaat (WCL) werd gebruikt als loading control. 4 experimenten/groep. Experimenten waarin de CFTR-achtergrond >10% was, werden uitgesloten vanwege een inefficiënte GSH-behandeling (D). De hoeveelheid gebiotinylereerde CFTR in de GSH-controle (monster b) in het uitgesloten experiment was 14,5%.
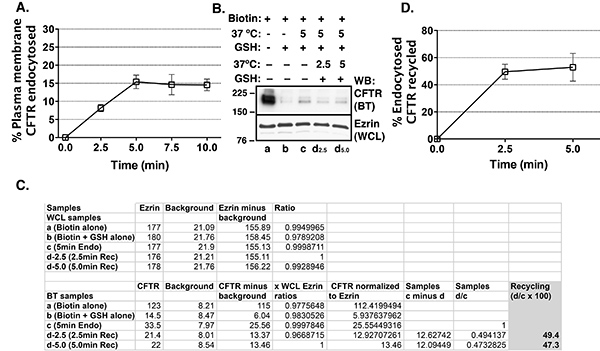
Figuur 2. Samenvatting van endocytose- en recycling-assays uitgevoerd in HEK293-cellen die stabiel CFTR tot expressie brengen. Cellen werden gekweekt in met collageen gecoate weefselkweekplaten. Samenvatting van gegevens die aantonen dat CFTR-endocytose lineair was tussen 0-5 min (A). Daarom werden in de recycling-assays endocytische blaasjes geladen met gebiotineerde (BT) eiwitten, waaronder CFTR, door opwarming op 37 ºC gedurende 5 min. De eiwithoeveelheid werd gekwantificeerd via densitometrie met belichtingstijden binnen het lineaire dynamische bereik van de film. Representatieve western blot (B), representatieve densitometrie-waarden (C) en samenvatting van experimenten (D) die CFTR-recycling als functie van de tijd aantonen. Op tijdstip nul werd de hoeveelheid BT CFTR beschouwd als 100% (Tabel 2: monster a). Op tijdstip nul werd de hoeveelheid BT CFTR die overbleef na GSH-behandeling beschouwd als de CFTR-achtergrond (monster b; let op, dit is een andere achtergrond dan degene die van alle monsters is afgetrokken zoals getoond in C). Experimenten waarin de CFTR-achtergrond >10% was, werden uitgesloten vanwege inefficiënte GSH-behandeling. Endocytische blaasjes werden geladen met BT-eiwitten, waaronder CFTR, door incubatie op 37 ºC gedurende 5 min, gevolgd door de GSH-behandeling om biotine af te splitsen van eiwitten die op het plasmamembraan bleven (monsters c en d). De hoeveelheid BT CFTR na 5 min opwarmen op 37 ºC gevolgd door de GSH-behandeling vertegenwoordigt geëndocyteerd CFTR (monster c). Na de 5 min opwarming op 37 ºC en de eerste GSH-behandeling werden de cellen opnieuw opgewarmd op 37 ºC gedurende 2,5 of 5,0 min om de geëndocyteerde eiwitten naar het plasmamembraan te laten recyclen, waarna de biotine op het gerecycled CFTR werd gereduceerd door de tweede GSH-behandeling (monsters d). Op dit punt bleef alleen het CFTR dat niet was gerecycled van endosomen naar het plasmamembraan gebiotineerd (monsters d). CFTR-recycling werd berekend als het verschil tussen BT CFTR na de eerste GSH-behandeling (monster c) en de tweede GSH-behandeling op 2,5 en 5,0 min (monsters d) en werd uitgedrukt als het percentage geëndocyteerd CFTR. CFTR-recycling was snel en bereikte het maximum na 2,5 min. De hoeveelheid Ezrin in het totale cellysaat (WCL) werd gebruikt als loading control. 3 experimenten/groep.
Discussie
Het succes van endocytische en recyclingassays hangt af van efficiënte biotinylering van CFTR aan het plasmamembraan. Biotine moet onmiddellijk voor gebruik worden bereid omdat de NHS-esterfractie gemakkelijk hydrolyseert en niet-reactief wordt. Bovendien vereist de biotinyleringsstap strikte temperatuurcontrole bij 4 ºC om eiwittransport te stoppen. Als de temperatuur tijdens de biotinyleringsstap boven 4 ºC wordt verhoogd, kan eiwittransport optreden, wat resulteert in de biotinylering van variabele hoeveelheden CFTR.
Het succes van endocytische en recyclingassays hangt ook af van efficiënte reductie van de disulfidebinding in de biotinylering van CFTR die aan het plasmamembraan achterblijft. De hoeveelheid CFTR die na de GSH-behandeling nog biotinyleerd is, moet <60% van de totale biotinylering van CFTR op tijd nul zijn. Experimenten waarbij de hoeveelheid biotinylering van CFTR >10% is in het GSH-controlemonster, moeten worden uitgesloten. Figuur 1D toont een 'mislukt' experiment waarbij de hoeveelheid biotinylering van CFTR in de GSH-controle 14,5% was. Onvoldoende reductie van de disulfidebinding in de biotinylering van CFTR kan secundair zijn aan slechte temperatuurcontrole tijdens het experiment. Als de temperatuur tijdens de GSH-behandeling boven 4 ºC wordt verhoogd, kan eiwittransport optreden en zal de biotinylering van CFTR die als gevolg van de onbedoelde temperatuurverhoging endocytoseert, de achtergrond-CFTR verhogen. Alternatief kan onvoldoende reductie van de disulfidebinding in de biotinylering van CFTR het gevolg zijn van een verminderde halfwaardetijd van GSH in waterige oplossing veroorzaakt door oxidatie in de lucht of door ongeschikte pH. Zoals eerder bepaald, blijft GSH sterk gebufferd bij pH 8,64. In onze ervaring reduceren zes behandelingen van 15 min met de GSH-buffer de disulfidebinding met meer dan 90%, efficiënter dan één behandeling van 90 min.
De celcultuur vereist speciale aandacht. Biotine moet het plasmamembraan bereiken in intacte cellen waar het eiwit van belang wordt geëxpresseerd. We hebben de op biotinylering gebaseerde endocytische en recyclingassays gebruikt om endocytose en recycling van CFTR geëxpresseerd in de apicale membraandomein te bestuderen. Deze assays kunnen ook worden gebruikt om endocytisch transport van eiwitten in de basolaterale membraandomein te bestuderen in cellen gekweekt op semipermeabele groeiondersteuningen. Epitheelcellen die meerlagen vormen zijn niet geschikt voor deze assays omdat biotin en GSH-buffers alleen de bovenste laag cellen bereiken om de apicale membraaneiwitten te detecteren of de onderste laag om de basale membraaneiwitten te detecteren. Epitheelcellen gekweekt op plastic zijn mogelijkerwijs vatbaarder voor afwassen tijdens de assays. Willekeurige verlies van cellen tijdens het experiment zal de resultaten compromitteren. We bevelen periodieke onderzoek van de monolaagintegriteit onder een microscoop aan in experimenten waarbij cellen worden gekweekt in plastic weefselkweekschotels. Coating van weefselkweekschotels met collageen kan de celadhesie verhogen.
De biotinylering van eiwitmonsters moet routinematig worden getest op besmetting met intracellulaire eiwitten. Detectie van intracellulaire eiwitten in de biotinylering van eiwitmonsters kan duiden op onvoldoende wassing van de streptavidine agarose–biotinyleerde eiwitcomplexen na incubatie met WCL. Dus is de eerste stap om de wasefficiëntie te verhogen. Bovendien zal de aanwezigheid van cellen met gecompromitteerde plasmamembraanintegriteit biotine toegang geven tot intracellulaire eiwitten. Western blotting voor een eiwit dat uitsluitend in een intracellulair compartiment zoals het endoplasmatisch reticulum wordt geëxpresseerd, kan worden gebruikt om biotinylering van intracellulaire eiwitten te detecteren. Alternatief kunnen cytoskeletaaleiwitten zoals actine of ezrin worden gebruikt om de besmetting van de biotinylering van eiwitmonsters met intracellulaire eiwitten te testen. Cytoskeletaaleiwitten kunnen complexen vormen met transmembraaneiwitten en kleine hoeveelheden van de cytoskeletaaleiwitten kunnen worden gedetecteerd in de biotinylering van eiwitmonsters. Echter, in onze ervaring is de verhouding van biotinylering/WCL ezrin of actine <60;1:1.000 en dus zijn deze eiwitten geschikt voor de bepaling van celmembraanintegriteit in de op biotinylering gebaseerde assays.
De biotinyleringsreactie kan worden gestopt met glycine of Tris om niet-gereageerde biotinyleringsreagens te verwijderen zoals eerder gerapporteerd17. Bovendien kan GSH worden gestopt met iodoacetamide6. In onze ervaring kunnen de niet-gereageerde biotinyleringsreagens en GSH efficiënt worden verwijderd door zachtjes wassen met PBS++ zonder gebruik van stopreagensen.
De keuze van streptavidine vs. neutravidine agarose om de biotinylering van eiwitcomplexen te isoleren, moet op casus-per-casus basis worden bepaald. In onze ervaring biedt streptavidine agarose efficiënte isolatie van de biotinylering van eiwitcomplexen met minimale binding van niet-biotinyleerde eiwitten, in tegenstelling tot de neutravidine agarose waarbij de niet-specifieke binding optreedt op niveaus die de assayresultaten beïnvloeden (ongepubliceerde waarneming).
Openbaarmakingen
De auteurs verklaren dat ze geen concurrerende financiële belangen hebben.
Dankbetuigingen
Deze studie werd ondersteund door de U.S. National Institutes of Health (NIH)-subsidies R01HL090767, R01HL090767-02S1, P30 DK06010, en de NepCure Foundation Established Investigator New Direction Grant, (aan A.S.-U.).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| CFBE41o- cellen | referentie10,11,13,14,15 | ||
| HEK293 cellen | referentie13 | ||
| Minimal Essential Medium (MEM) | Gibco | 11095 | |
| L-Glutamine | Cellgro | 25-005-CL | |
| Penicillin | Sigma | P0781 | |
| Streptomycin | |||
| Puromycin | InvivoGen | ant-pr-1 | |
| PureCol Bovine Collagen Solution Type I | Advanced Biomatrix | 5005-B | |
| Cultuurreagentia | |||
| Dulbecco’s Phosphate Buffered Saline (PBS) | Gibco | 14190 | |
| Calciumchloride | Sigma | C3306 | |
| Magnesiumchloride | Sigma | M2670 | |
| Natriumchloride | Sigma | S3014 | |
| EZLink Sulfo-NHS-SS-Biotine | Pierce | 21331 | |
| L-Glutathione gereduceerd (GSH) | Sigma | G6529 | |
| Streptavidine-agarosehars | Thermo Fisher | 20353 | |
| Natriumhydroxide | Sigma | 224165 | |
| Foetaal bovien serum | Gemini Bioscience | 100-106 | |
| Milli-Q water | Millipore | Advantage System | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| Glycerol | FisherScientific | G33 | |
| Laemmli Sample buffer | BioRad | 161-0737 | |
| Dithiothreitol (DTT) | Sigma | 646563 | |
| Complete Protease Inhibitorcocktail | Roche | 1697498 | |
| Streptavidine kralen | Thermo Scientific | 20353 | |
| Chemiluminescentie | Perkin Elmer | NEL104001EA | |
| Reagentia | |||
| Vrij van vet melkpoeder | Carnation | N/A | |
| Tween-20 | BioRad | 170-6539 | |
| Tris-buffered Saline (TBS) | BioRad | 170-6435 | |
| Bovine Serum Albumine (BSA) | Gibco | 15120 | |
| Primair en secundair | |||
| Antilichamen voor Western Blotting | |||
| Muis monoklonaal Anti-CFTR 596 | Cystic Fibrosis Foundation Therapeutics, Inc., Chapel Hill, NC | ||
| Anti-ezrin | |||
| Lopende buffer 10x | BioRad | 161-0772 | |
| Overdracht buffer 10x (zonder SDS) | BioRad | 161-0771 | |
| Methanol | Fisher | A4129 | |
| Coulter teller | Beckman Coulter | Z1Coulter Particle Counter | |
| Standaard Cel Cultuurapparatuur | |||
| Celcultuurkap met UV-licht | |||
| Voorraadkolven | |||
| Transwell filters-24mm | Corning | 3412 | |
| 4 cm celcultuur schaaltjes | |||
| pH meter | |||
| 15 ml en 50 ml kegelbuisjes | |||
| 1,5 ml Eppendorfbuisjes | |||
| Rubber schraper | |||
| Koude ruimte | |||
| IJsemmers en ijs | |||
| 27 G naalden | |||
| 37 ºC Incubator | |||
| Thermometer | |||
| Benchtop centrifuge | |||
| Gekoelde centrifuge | |||
| Elektroforeseapparatuur | |||
| Ontwikkelaar | |||
| Film | GE Amersham | 28-9068-36 | |
| PVDF membraan | Millipore | IPVH00010 | |
| ImageJ software | NIH |
Referenties
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
Herprints en machtigingen
