Neuronale morfogenese en migratie zijn cruciale gebeurtenissen ten grondslag liggen aan een goede ontwikkeling van de hersenen. Hier beschrijven we methoden om genetisch manipuleren gekweekte cerebellaire granule neuronen en de ontwikkelingslanden cerebellum voor de beoordeling van de morfologie en trekkende kenmerken van neuronen.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Genetische Manipulatie van Cerebellaire Korrel Neuronen
In dit artikel
Samenvatting
Samenvatting
Ontwikkelings gebeurtenissen in de hersenen, waaronder neuronale morfogenese en migratie sterk georkestreerde processen. In vitro en in vivo analyses zorgen voor een grondige karakterisering wegen betrokken bij deze gebeurtenissen te identificeren. Cerebellaire granule neuronen (CGNs) die zijn afgeleid van de ontwikkelingslanden cerebellum een ideale modelsysteem dat zorgt voor morfologische analyse. Hier beschrijven we een werkwijze hoe genetisch manipuleren CGNs en hoe axono en dendritogenesis van individuele neuronen te bestuderen. Met deze methode de effecten van RNA interferentie, overexpressie of kleine moleculen kunnen worden vergeleken neuronen controleren. Bovendien, het knaagdier cerebellaire cortex is een gemakkelijk toegankelijk in vivo systeem vanwege de overheersende postnatale ontwikkeling. We presenteren ook een in vivo electroporatietechniek genetisch manipuleren ontwikkelen cerebella en beschrijf vervolgens cerebellaire analyses neuronale morfologie een beoordelingnd migratie.
Inleiding
Het cerebellum is een uitstekend systeem mechanismen groei en migratie axon bestuderen. Het cerebellum is het onderwerp van anatomische studies sinds het begin van de neurowetenschappen 1. Moderne microscopie en immunohistochemische technieken zijn sterk uitgebreid en verfijnd de eerste ontdekkingen van Santiago, Ramon en Cajal 2-4. Muis genetica en moleculaire studies blootgelegd essentiële groei en transcriptiefactoren in de controle van de ontwikkeling van het cerebellum, wat leidde tot een beter inzicht in cruciale gebeurtenissen die nodig zijn voor de juiste bedrading van de verschillende soorten neuronen waaronder cerebellaire granule neuronen (CGNs) 5-7.
Het cerebellum is een derivaat van rhombomere 1 van de ontwikkeling achterhersenen 8. De ruitvormige lip, dat deel van het dak van het 4e ventrikel leidt tot cerebellaire granule neuron voorlopercellen, die de meest talrijke neuronale populatie zal vormen in hetvolwassen cerebellum 9. Na rostrale migratie, ze zich in de cerebellaire anlage. Hier, mitose korrel neuron voorlopers leidt tot de dramatische uitbreiding van de externe granulaire laag (EGL), die postnataal plaatsvindt bij knaagdieren. Van de EGL, neuronen beginnen migreren naar binnen via de moleculaire laag (ML), langs de Purkinje cel laag om uiteindelijk gaan wonen in de interne granulaire laag (IGL 2). Tijdens dit migratieproces, krijgen ze een bipolaire vorm met twee axonen zich uitstrekt tot in de ML. Bij verdere migratie, het cellichaam migreert vanaf de axonen en de twee processen smelten een vertakte, T-vormige axon 10 vormen. Hierdoor vertoont de axonen fasciculate en worden aangeduid als parallelle vezels. Na zich in de IGL, CGNs groeien dendrieten, die dendritische klauwen te vormen om synapsen te leggen met bemoste vezels. Fundamentele processen onderzoeken ontwikkelingslanden cerebellum, een gecombineerde in vitro en in vivo approach zorgt voor betrouwbare resultaten en conclusies.
CGNs zijn niet alleen de meest talrijke neuronen van het cerebellum, maar van de gehele hersenen en kan gekweekt zeer zuivere 11-13 zijn. In de cultuur, deze zeer homogene neuronale bevolking wordt snel postmitotische en verwerft een polaire morfologie met gemakkelijk herkenbare axonen en dendrieten. Gekweekte CGNs hebben bewezen zeer nuttig om de verschillende aspecten van de neuronale ontwikkeling, met inbegrip voorlopercellen proliferatie, differentiatie, axonale en dendriet ontwikkeling, neuronale migratie, apoptose en elektrofysiologische eigenschappen (14-19 en vele anderen) te bestuderen zijn. Het gebruik van genetische manipulatie is de veelzijdigheid van gekweekte CGNs geëxpandeerd en daarin verder mechanistisch inzicht in de bovengenoemde gebeurtenissen. Transfectie van gekweekte neuronen met behulp van lage-efficiëntie calciumfosfaat of lipofiele methoden gevolgd door immuuncytochemie met polariteit markeringen of-software ondersteunde analyse faciliterenTates de beoordeling van bijvoorbeeld de morfologie van individuele neuronen in een dichte neuronale cultuur. Met deze aanpak kan de rol van eiwitten van belang in axon of dendriet groei worden bestudeerd 20-25,26-28. Dit kweeksysteem is evenwel minder nuttig voor neuronale migratie analyse migratie is zeer beperkt in hoge dichtheid kweken en hulpkweken zou vereisen. De in vitro analyse van axon en dendriet groei maakt het ook mogelijk voor het onderzoek van onderling verbonden eiwitten van een signalerende weg met behulp van combinaties van RNA interferentie (i), over-expressie of kleine moleculen.
Om de relevantie van het eiwit van belang in axon en dendriet groei regelgeving of neuronale migratie vast te stellen, de in vivo elektroporatie (IVE) techniek maakt het mogelijk voor de analyse van de ontwikkeling van cerebellaire cortex. Vanwege het feit dat de ontwikkeling van het cerebellum bij knaagdieren loopt weg in de eerste twee postnatale weken, het cerebellum vertegenwoordigt een accessible hersenenstructuur genetische manipulaties ontwikkelen axons en dendrieten, neuronale migratie, synaptogenese en apoptose 20-24,29,30,26,27,31-34 te onderzoeken. Bovendien, dit modelsysteem is ook nuttig voor andere aspecten van neuronale ontwikkeling die de intacte cerebellaire cortex zoals axon pathfinding, bedrading en connectiviteit van neuronen en neuron-glia interacties Samengevat vereist dit protocol voorziet in vitro en in vivo technieken aanpakken een complementaire aanpak van neuronale morfogenese en migratie.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
CGNs kan worden bereid door uit postnatale dag (P) 5 muis pups of pups P6 rat. We volgen een protocol, beschreven door Bilimoria en collega's, die een mitotische remmer gebruikt om te selecteren op postmitotische CGNs 13.
Ethiek verklaring:
Alle experimenten met levende dieren zijn uitgevoerd volgens het dier protocol door de "Verbraucherschutz und Lebensmittelsicherheit" van Nedersaksen, Duitsland goedgekeurd.
In vitro assay:
1. Bereiding van plasmide DNA, Media en Buffers voor de calciumfosfaattransfectiemethode
- Ontbinden plasmide DNA in steriele, endotoxine-vrij water; DMEM (hoog glucose); maken 2,5 M CaCl2, maak 2x HBSS (ontbinden 4 g NaCl, 0,1775 g KCl, 0,095 g Na 2 HPO 4 • 7H 2 O, 0,675 g glucose en 2,5 g HEPES in 250 ml ultrapuur water en breng de pH op 7.05, 7.08 en 7.11). Opmerking: Bij de voorbereidingde 2x HBSS oplossing, test die pH geeft de beste resultaten met betrekking tot transfectie-efficiëntie van bepaalde combinatie van plasmiden.
2. Transfectie van gekweekte neuronen
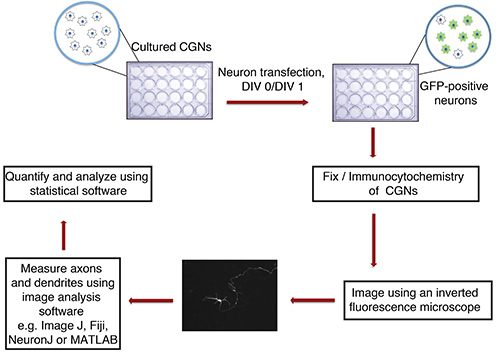
Figuur 1. Stroomschema van in vitro axon en dendriet groei assay. Gekweekte CGNs (24-well plaat met dekglaasjes), geïsoleerd uit P6 rat pups worden getransfecteerd in DIV 0 of 1 met DNA precipitaat met een fluorescente merker transfectie (bijv. GFP). Na fixatie en immunocytochemie, zijn neuronen afgebeeld op een blinde wijze. Beelden worden in ImageJ geïmporteerd en processen worden gemeten. De metingen worden vervolgens verwerkt met behulp van een statistisch programma.
- Seed CGNs (20 x 10 6 per 24-well plaat, BME, 10% kalf serum, 2 mM Penicilline-Streptomycin-Glutamine (PSG), 25 mM KCl) op salpeterzuur gewassen, polyornithine coating 12 mm glazen dekglaasjes in een plaat met 24 putjes met 500 ui medium per putje.
- Op dag in vitro (DIV) 0 (ten minste 8 uur na uitplaten) of DIV 1, verzamel groeimedia en laten 37 ° C. Was neuronen tweemaal met 500 ul voorverwarmde DMEM en voeg 500 ul DMEM.
- Plaats neuronen in incubator (37 ° C, 5% CO2) gedurende 45 minuten.
- Bereid 40 pi DNA neerslag gedurende elk putje door het mengen van: DNA (2-2.5 ug / goed, 10% van het totale DNA zou een transfectie marker bijvoorbeeld GFP te getransfecteerde neuronen visualiseren), water (tot 18 pl), voeg 2 pl 2,5 M CaCl2, meng goed en voeg 20 ul van 2x HBSS.
- Incubeer DNA neerslag gedurende 5 minuten bij kamertemperatuur.
- Voeg DNA-precipitaat aan elk putje en incubeer neuronen gedurende 18 min in incubator.
- Verwijder DMEM / DNA mix en was neuronen tweemaal met 500 ul van voorverwarmd DMEM.
- Voeg verzamelde media uit stap 2.2 terug naar neuronen. Als neuronen in kweek langer dan 3 dagen, supplement media met 25 mM glucose bij DIV 3 tot koolstofbron vullen.
- Na 1-5 dagen, afhankelijk van neuronen immuuncytochemie behulp van GFP antilichamen.
- Afbeelding tenminste 30 individuele neuronen per conditie op een blinde wijze met een fluorescentiemicroscoop.
3. Meet Axonen en Dendrieten met NeuronJ, een NIH ImageJ Plugin
Belangrijk: Zorg ervoor dat afbeeldingen correctluy worden geschaald met behulp van de juiste pixel: urn verhouding afhankelijk van vergroting en resolutie van het beeld.
- Beelden omzetten naar 8-bit met ImageJ: beeld Open, kies 'Afbeelding' -> 'Type' -> '8-bit '->' Afbeelding opslaan '.
- Run NeuronJ plugin en het imago van de 8-bit te openen.
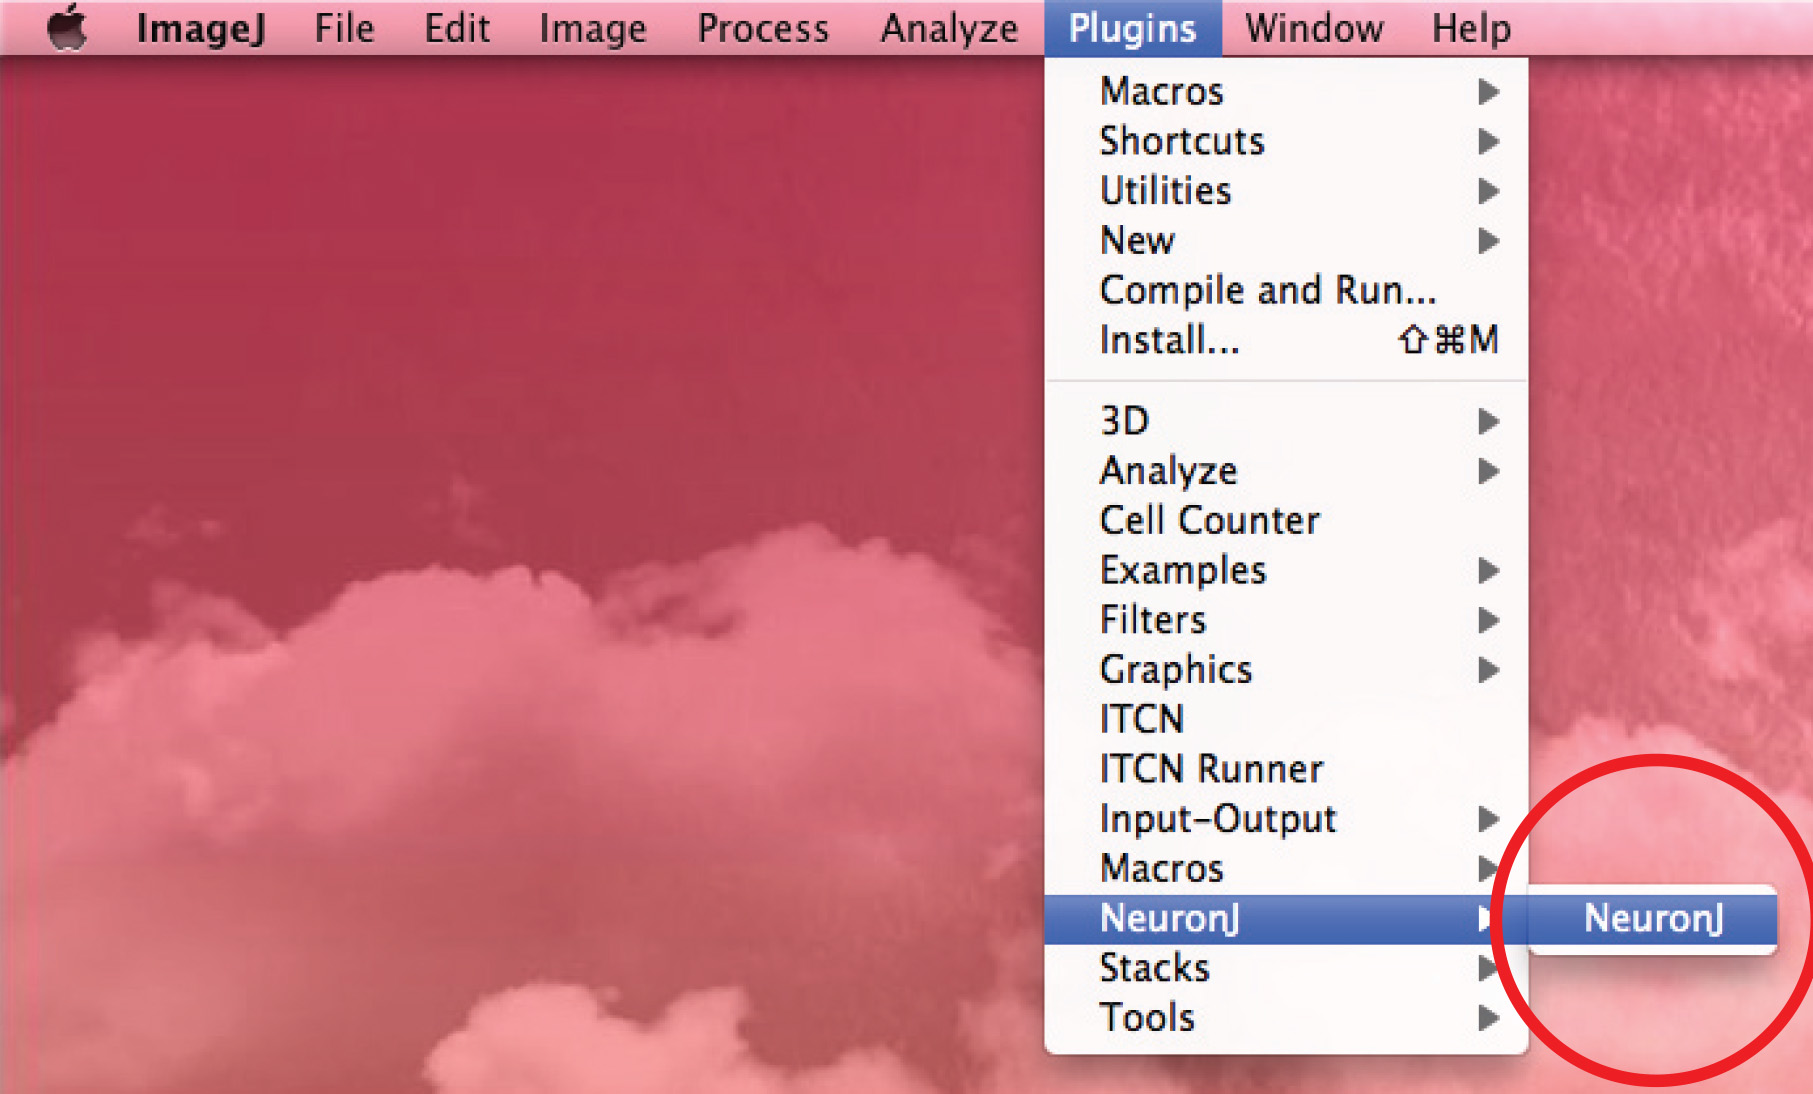
- Gebruik de optie 'traces Toevoegen' om het axon volgen: click de linker muisknop een keer aan het begin van het axon en beweeg de muis langs het proces. Dubbelklik op puntje van axon als trace overeenkomt axonale vorm.
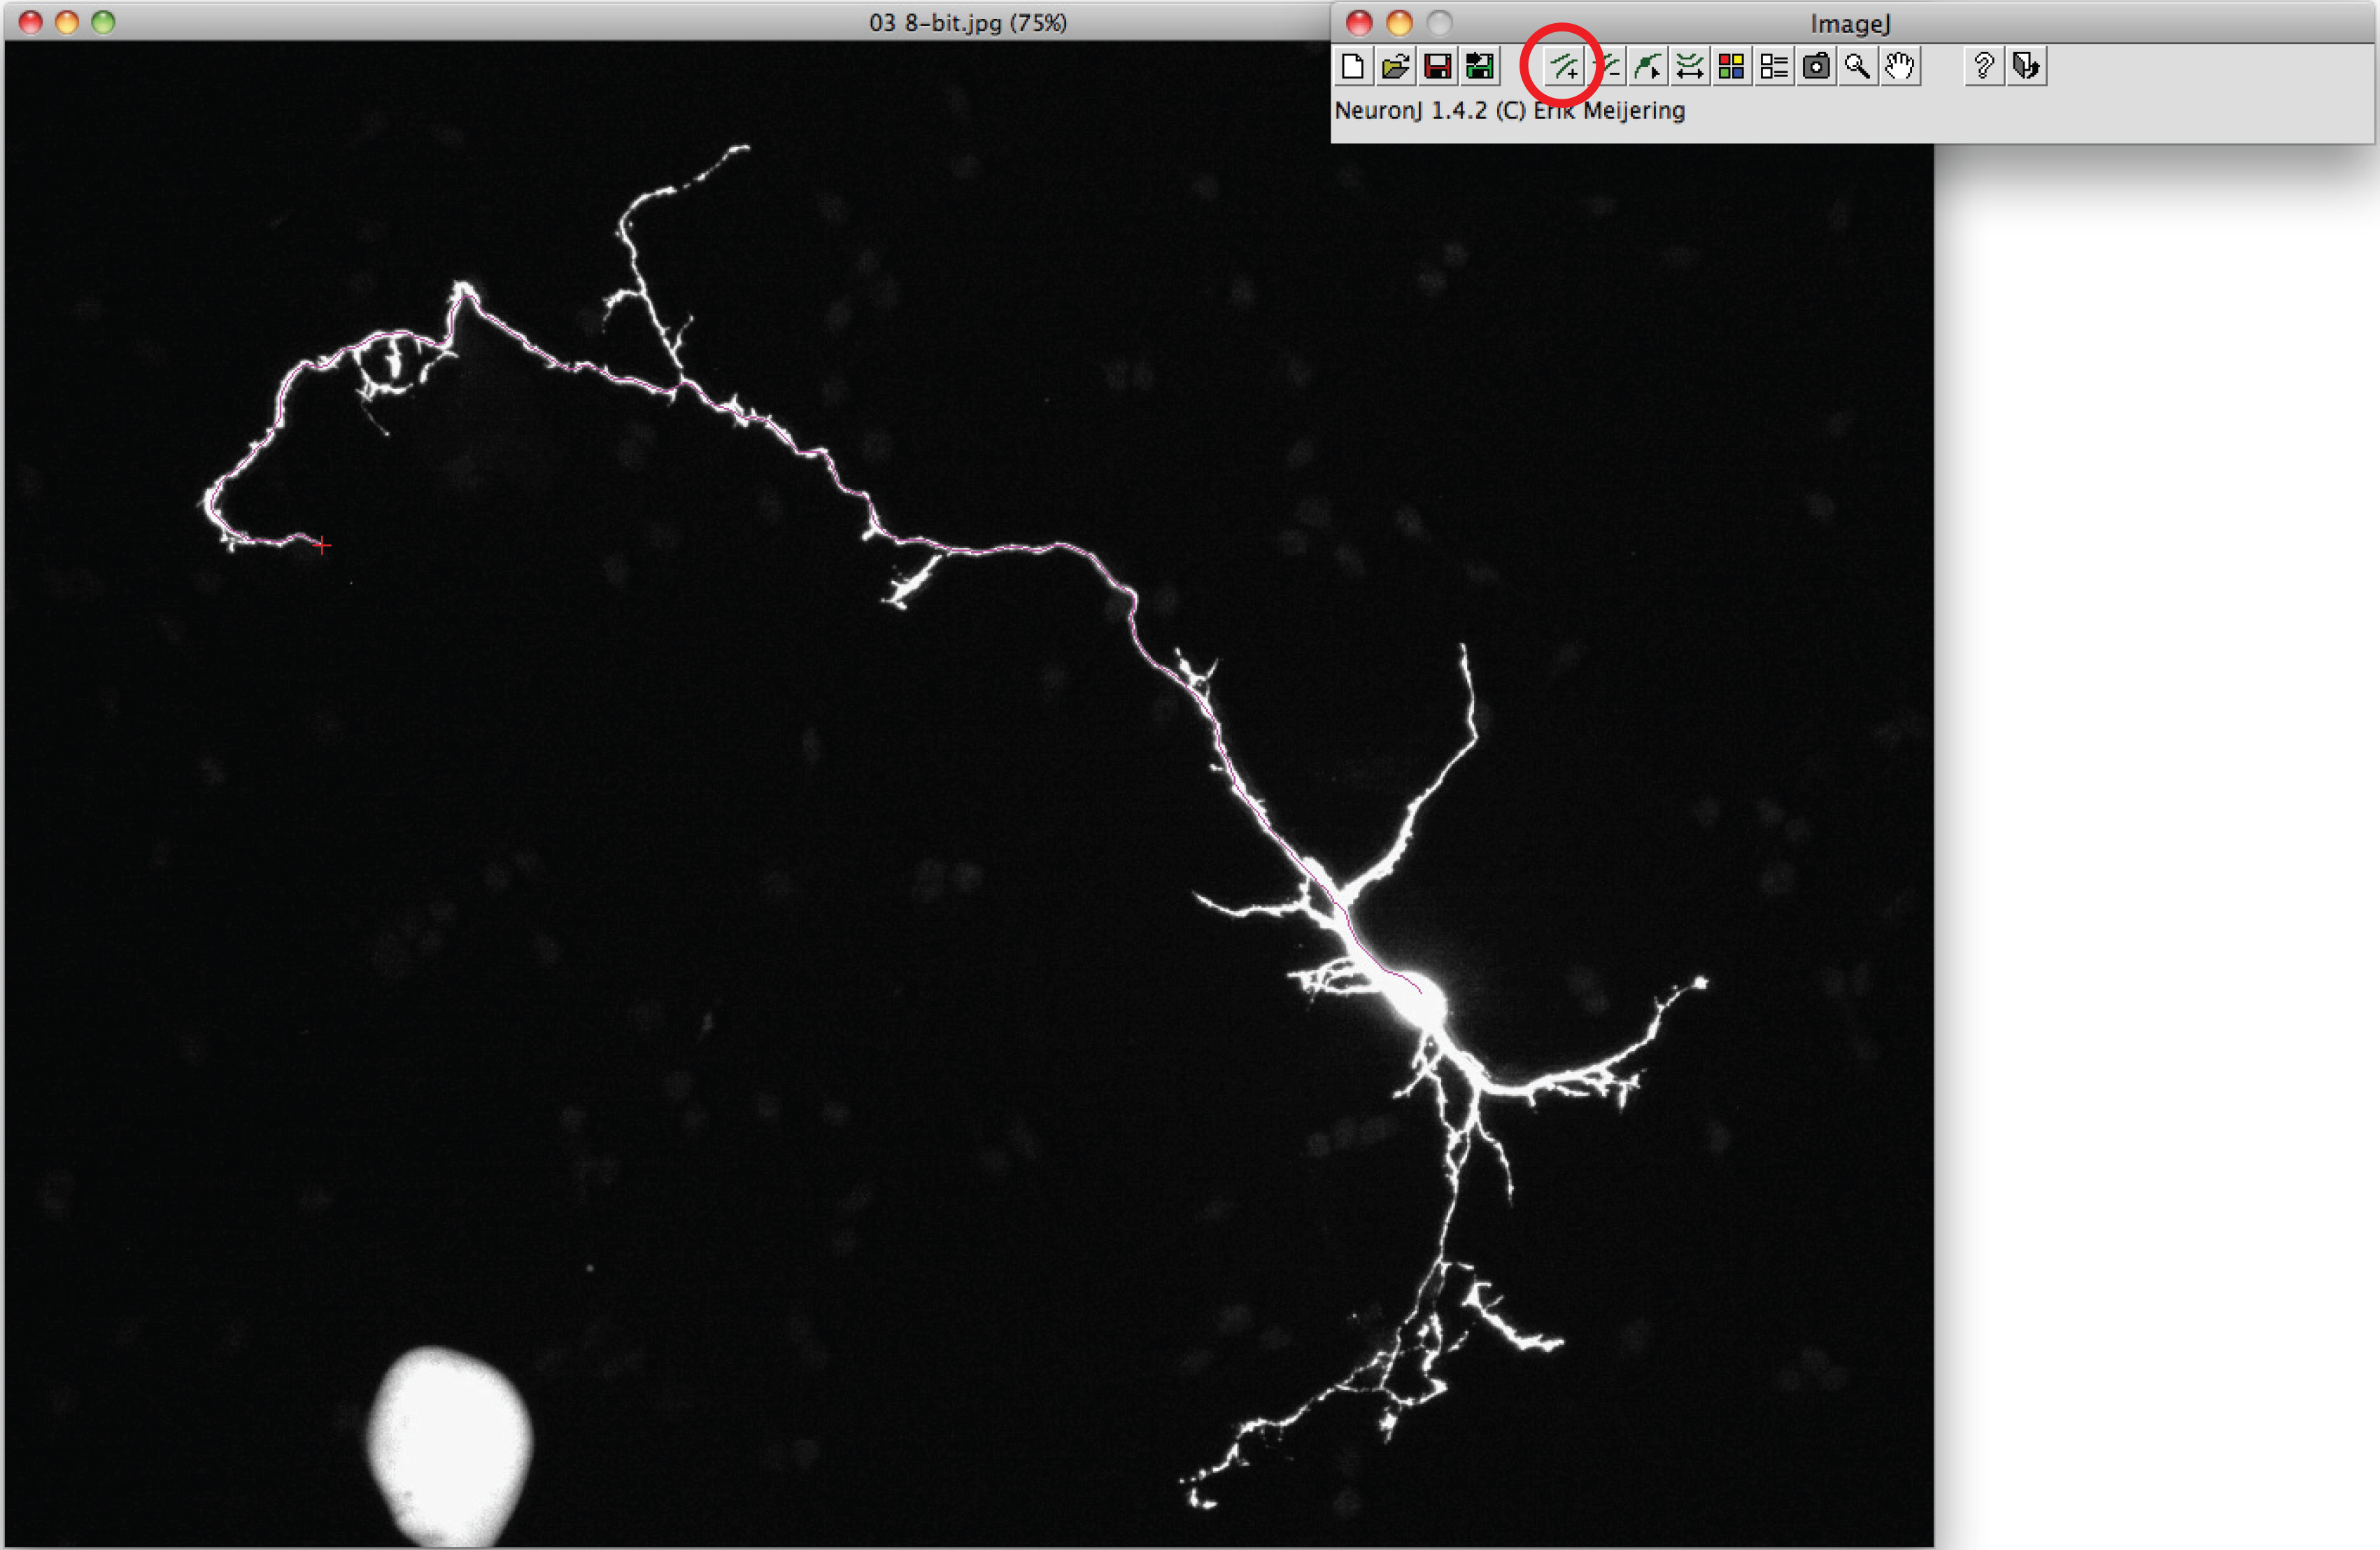
Opmerking: Indien de voorgestelde trace afwijken van axonale vorm, klik eenmaal op de axonale proces te verankeren trace, dan dubbelklikt u op het puntje van axon. - Klik op 'Meet traces', kies de 'Display tracing metingen' en druk op 'Uitvoeren'. Axon metingen worden allemaal weergegeven in een nieuw venster. Voor dendrieten, kiest u de 'Display groep metingen optie' en druk op 'Uitvoeren'.
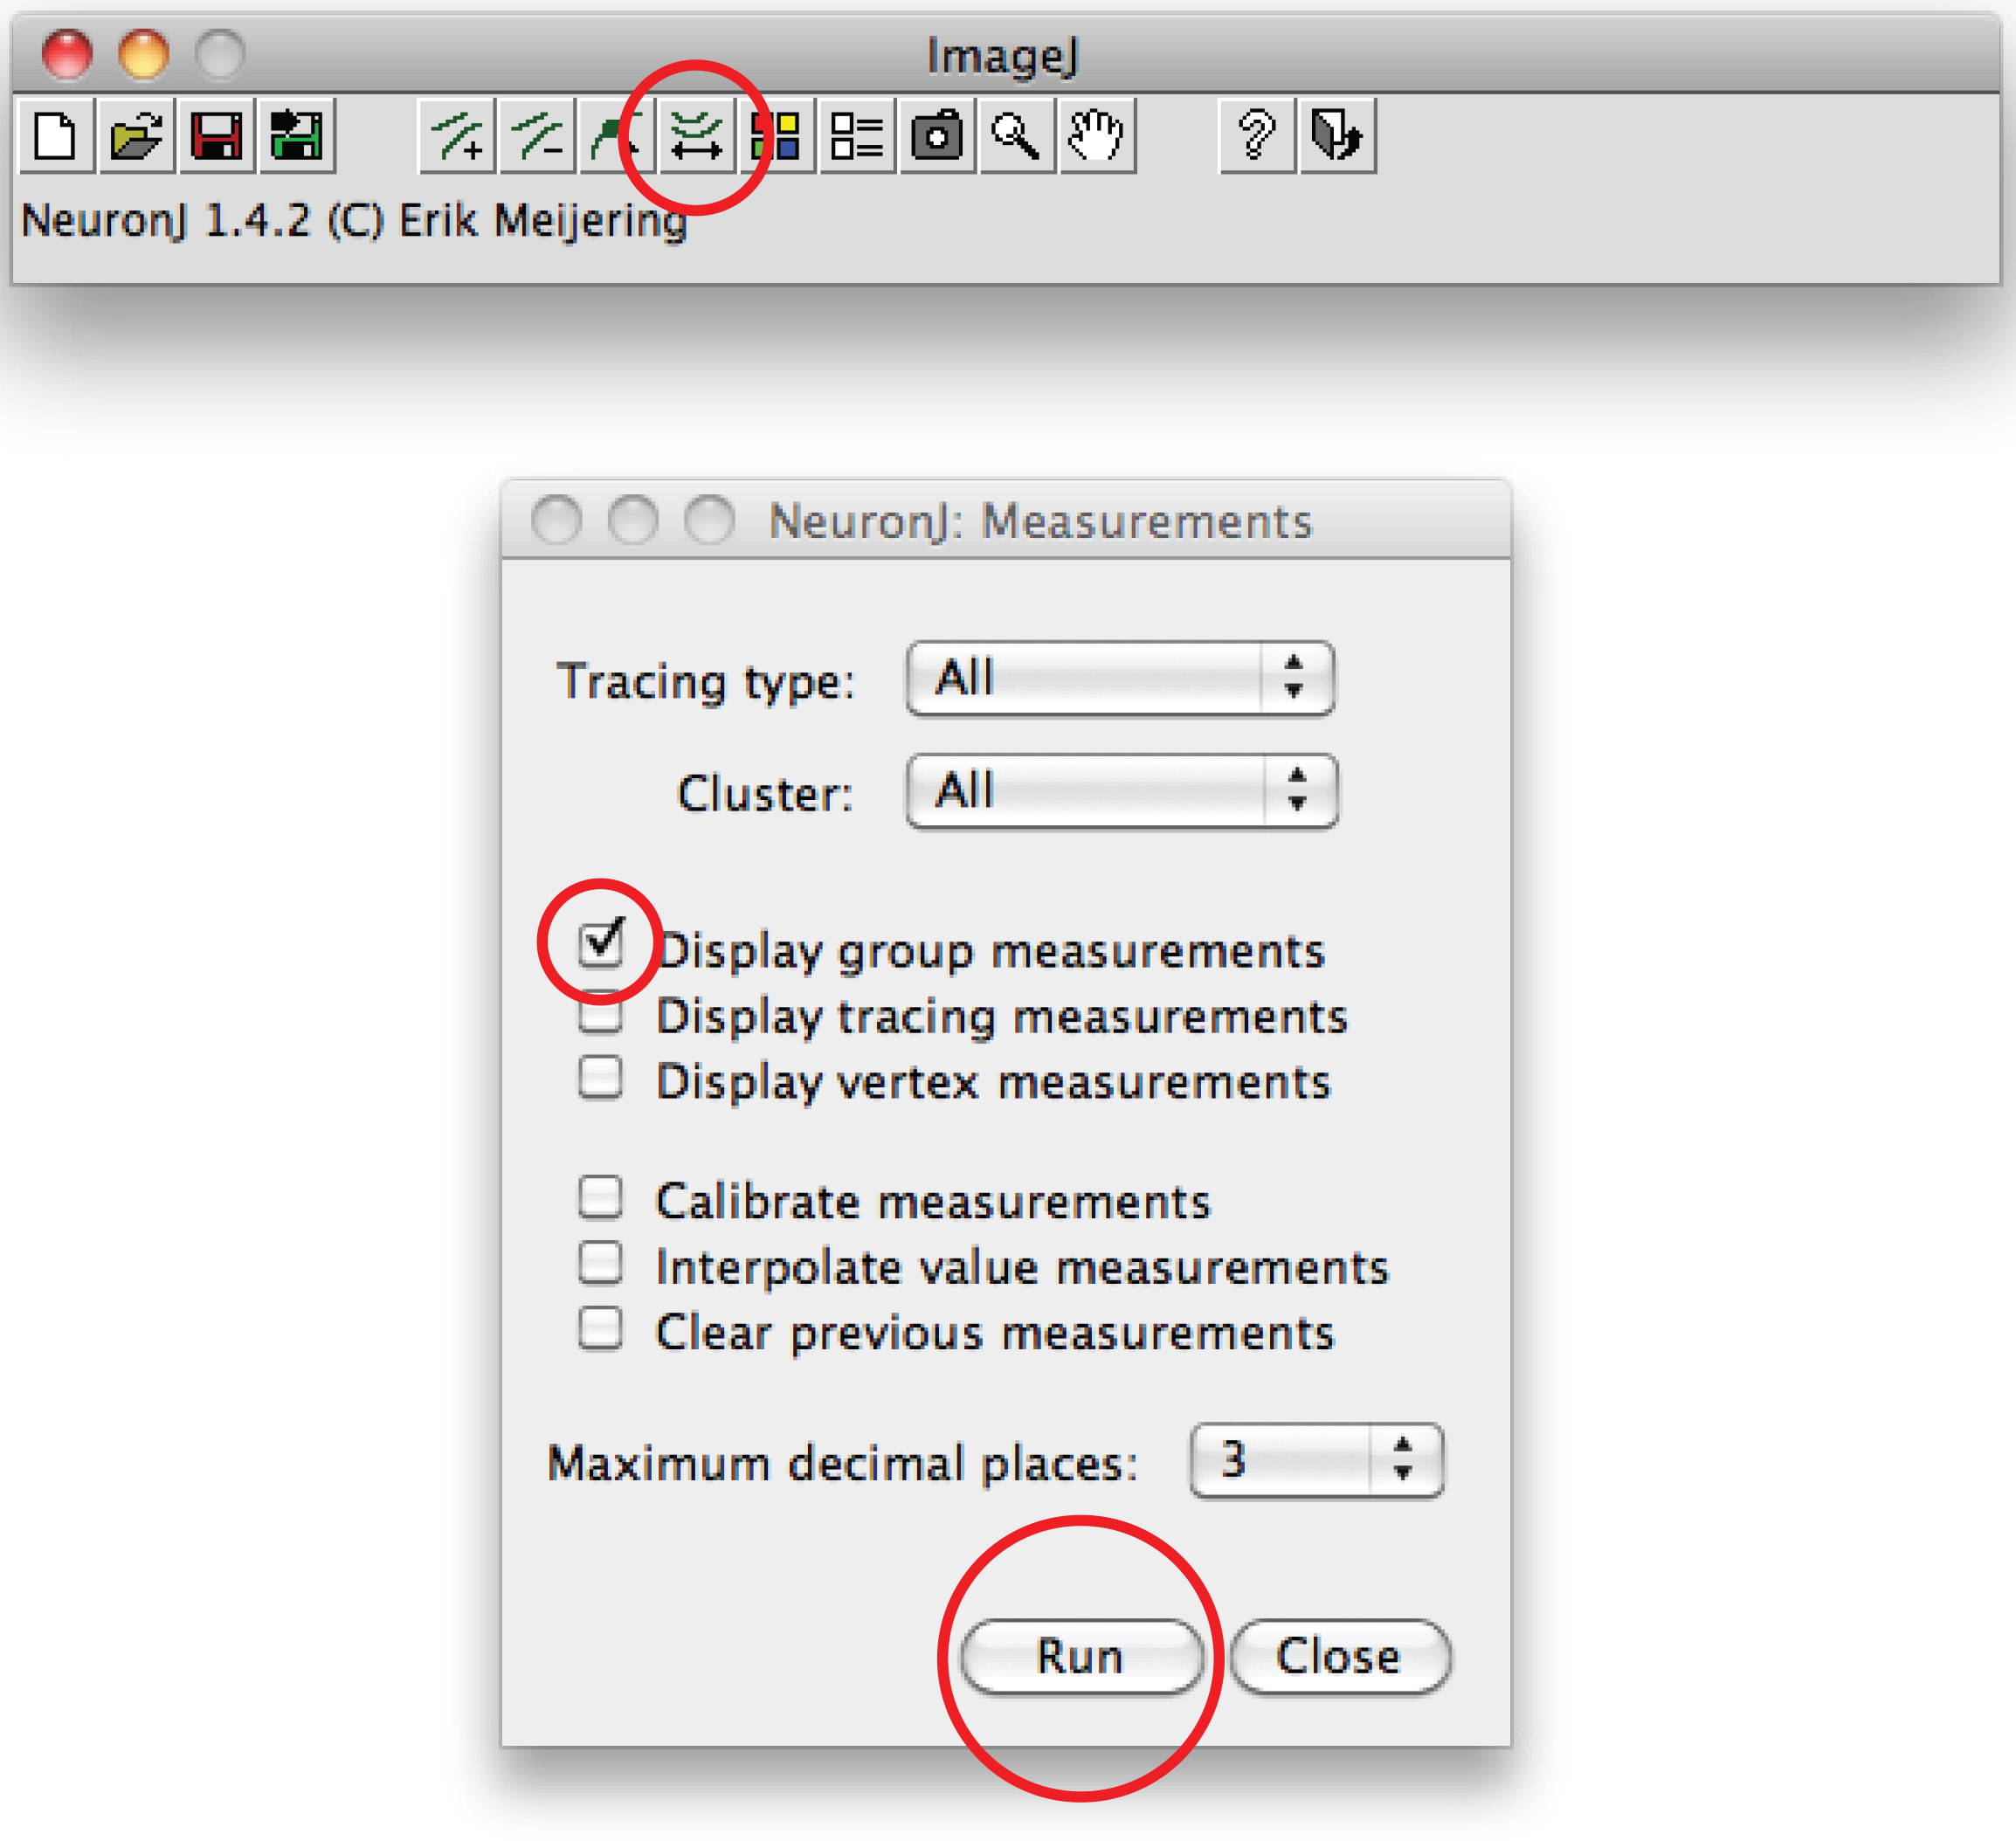
Totaal dendrite metingen worden allemaal weergegeven in een nieuw venster. Opslaan als een apart bestand dat in een spreadsheet-programma kan worden geopend. - Als alternatief voor het handmatig traceren, gebruiken Fiji software: Klik met de rechtermuisknop op the optie 'Rechte lijn', kies 'Freehand lijn',
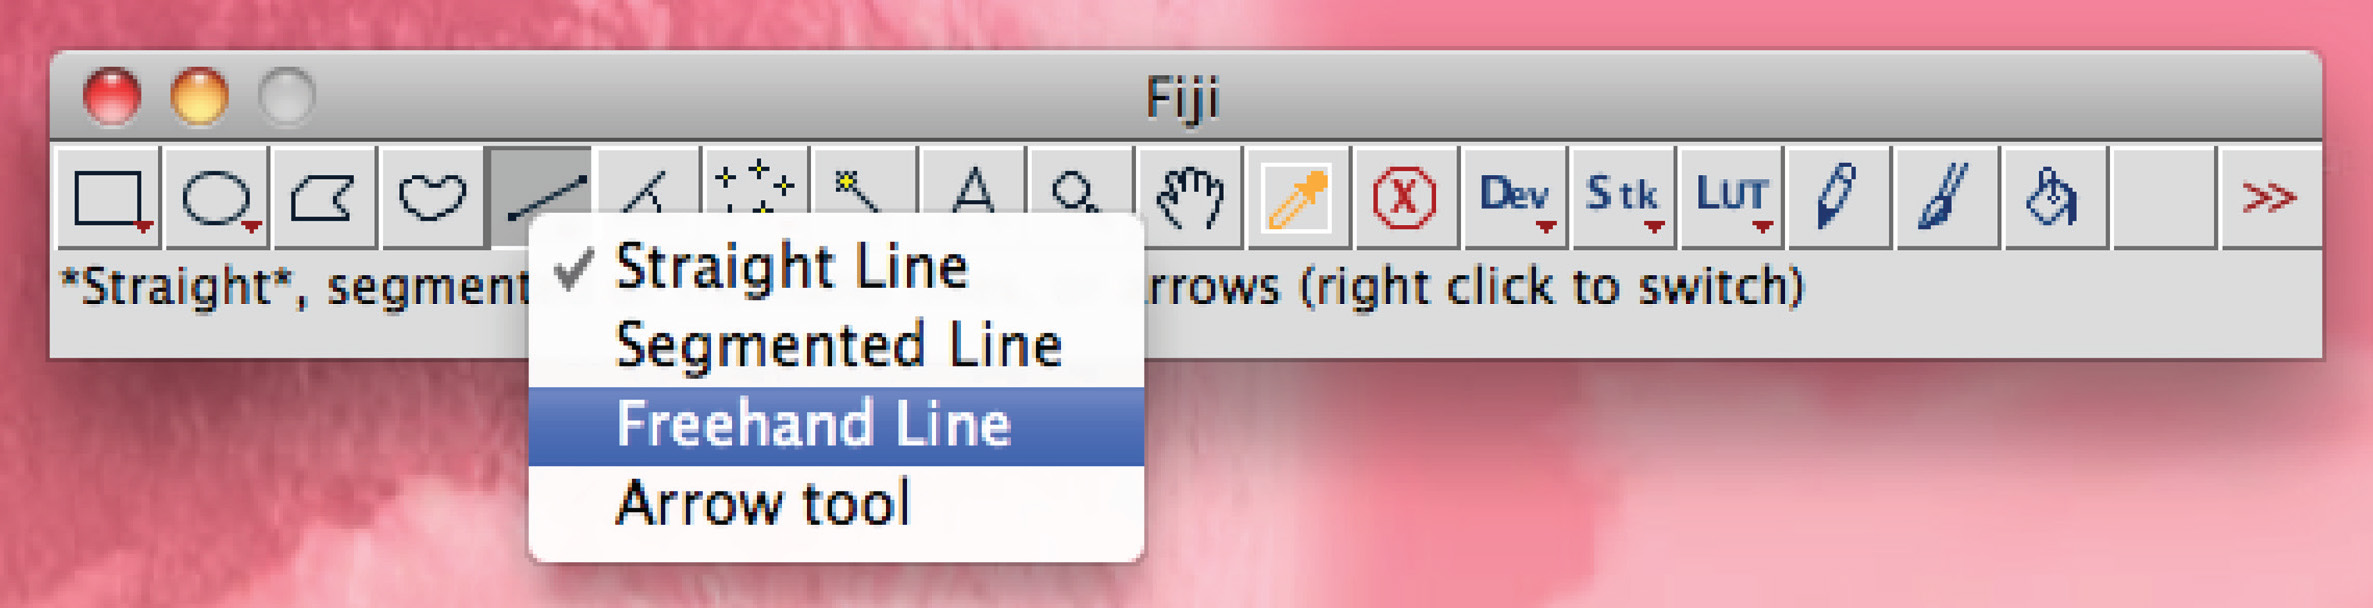
houd de linker muisknop ingedrukt en handmatig traceren het proces, druk op 'Ctrl + M' te meten. - Bereken gemiddelde axonale / dendritische lengte per conditie en gebruik passende statistische test.
In vivo elektroporatie:
1. Uitrusting en Bereiding van reagentia
- Je moet 30 G naalden, spacer (1-2 mm), spuit, dood volume verloopstuk (DVR), electroporator en tweezertrodes, verwarming pad of infrarood warmte lamp, zwanenhalslamp en isofluraan.
- Zet DVR in naald, bevestig vervolgens naald spuit, en eindelijk spacer op naald (figuur 2).
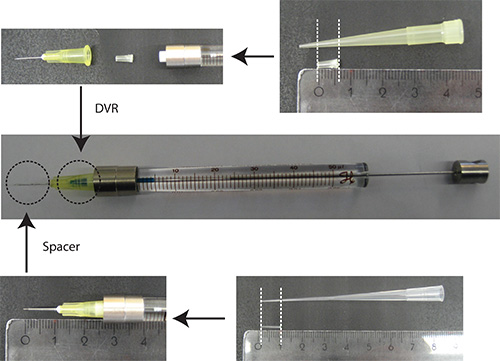
Figuur2. Voorbereiding van de naald. DVR wordt afgesneden een 200 ul pipet tip en geplaatst in de naald aan de dood volume te verminderen. Spacer is afgeleid van een 200 ul loading tip en is geplaatst op het uiteinde van de naald om de doordringdiepte te regelen in de kleine hersenen tot ongeveer 2 mm. Liniaaleenheden: cm - Ontbinden DNA in PBS/0.03% Fast Green. Opmerking: Als transfectie marker, is het voordelig om een fluorescerend eiwit dat onder een neuron-specifieke promotor (bijv. synapsin) gebruiken om alleen neuronen te visualiseren. 25% van de totale hoeveelheid plasmide moet het plasmide codeert voor de transfectie marker.
- Voeg 70% ethanol.
- Meng gelijke volumes van oktober en 30% sucrose opgelost in PBS.
- Vul de spuit met 4 pl DNA (4 ug / ul plasmide-DNA in PBS/0.03% snel groen).
2. IVE van Rat Pups
Stroomschema van IVE: zie figuur 3
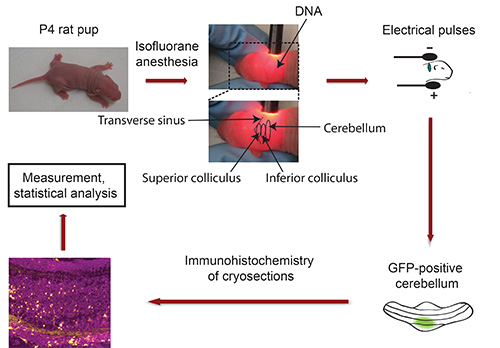
Figuur 3. Stroomschema van in vivo elektroporatie. Pups P4 ratten verdoofd met isofluraan en plasmide-DNA dat codeert voor een fluorescent transfectie marker (bijv. GFP) wordt geïnjecteerd in de kleine hersenen, gevolgd door blootstelling aan 5 elektrische pulsen. Vijf dagen later worden geïsoleerd GFP-positieve cerebella doorsnede en aan immunohistochemie. Beelden worden vastgelegd met behulp van een confocale microscoop en gebruik Imaris software geanalyseerd. De gegevens worden verwerkt met een statistisch programma.
- Gebruik P4 rat pups van albino stam (Wistar of Long Evans).
- Verdoven pups (na elkaar) met isofluraan in kleine doos (bijvoorbeeld P1000 pipettip doos) met 200 ul van isofluraan (geweekt in weefsel) voor 1-2 min tot pup is niet meer bewegen. Zorg dat pups niet in contact komen wet Iiquid isofluraan. Bewaken tijd dicht individuele pups reageren verschillend op anesthesie.
- Steriliseren achterkant van het hoofd pup met 70% ethanol.
- Fix hoofd van pup tussen duim en wijsvinger en gebruik zwanenhalslamp om cerebellum van albino pup te lokaliseren. De dwarse sinus scherp afbakent de middenhersenen (superieure en inferieure colliculus) van de corticale hemisferen (figuur 3). Het cerebellum is gelegen naast middenhersenen en verschijnt in een donkere kleur. Gebruik een permanent marker op de kleine hersenen met een punt aan te geven. Belangrijk: Houd jong in vaste positie! Opmerking: Indien verdoving slijten tijdens deze procedure, bloot pup aan isofluraan voorafgaand aan het injecteren van het DNA.
- Breng de naald (figuur 3) en injecteer langzaam 3 ul van DNA in het cerebellum.
- Laat de DNA-oplossing diffunderen gedurende 30-60 sec.
- Plaats het hoofd van de pup tussen tweezertrodes zodat de minpool contact maakt met de achterkant van het hoofd (cerebellar regio) en dat de pluspool de tegenoverliggende zijde van de kop (figuur 3).
- Onderwerp pup tot 5 elektrische pulsen. Stel voltage gewicht pups goede elektroporatie efficiëntie zonder hun overleving (tabel 1) compromitteren.
Tabel 1. Elektroporatie van P4 rat pups.Gewicht Spanning Pols Interval 8-9 g 160 V 50 msec 950 msec 9-10 g 165 V 50 msec 950 msec > 10 g 170 V 50 msec 950 msec - Laat pups terug op verwarmde pad of onder een infrarode lamp. Terug pups naar dam. Belangrijk: Zorg ervoor dat de warmtebron geen brandwonden toebrengen.
- Sacrifice pups 5 dagen na elektroporatie door ze in CO 2, gevolgd door onthoofding.
- Isoleer de cerebella en scherm voor GFP-positieve cerebella behulp van een fluorescentiemicroscoop.
- Fix cerebella in 4% PFA O / N bij 4 ° C, daarna incuberen in 30% sucrose bij 4 ° C totdat cerebella zinken naar bodem van de buis.
- Embed cerebella in OCT/30% sucrose en snijd 40 micrometer coronale secties met behulp van een cryostaat. Opmerking: Sectie elk cerebellum in een geblindeerde wijze.
- Betreft secties immunohistochemie met het GFP antilichaam. Tegenkleuring nucleaire kleurstof (DAPI of Hoechst 33258) en bepaal lokalisatie van minstens 200 getransfecteerde neuronen per dier.
- Voor een grondige analyse, verdelen de IGL in twee helften, wat resulteert in een hogere IGL tegenover de ML en een lagere IGL uitzicht op de witte stof en tel GFP-positieve neuronen die in elke helft. Opmerking: Count GFP-positieve neuronen van elke sectie in een geblindeerde wijze.
3. Meten Dendriet Lengte, Het verwerven van de Beelden van de afdeling in x, y, z Vliegtuig met behulp van een confocale microscoop
Opmerking: gebruik bijvoorbeeld 40 foto's voor een sectie 40 micrometer met een z-stwp van 1 micrometer.
- Open afbeelding serie in de software, Imaris, om een 3D-beeld van de dendrieten te genereren.
- Klik op 'Overtref' modus om de neuron in 3D te bekijken.
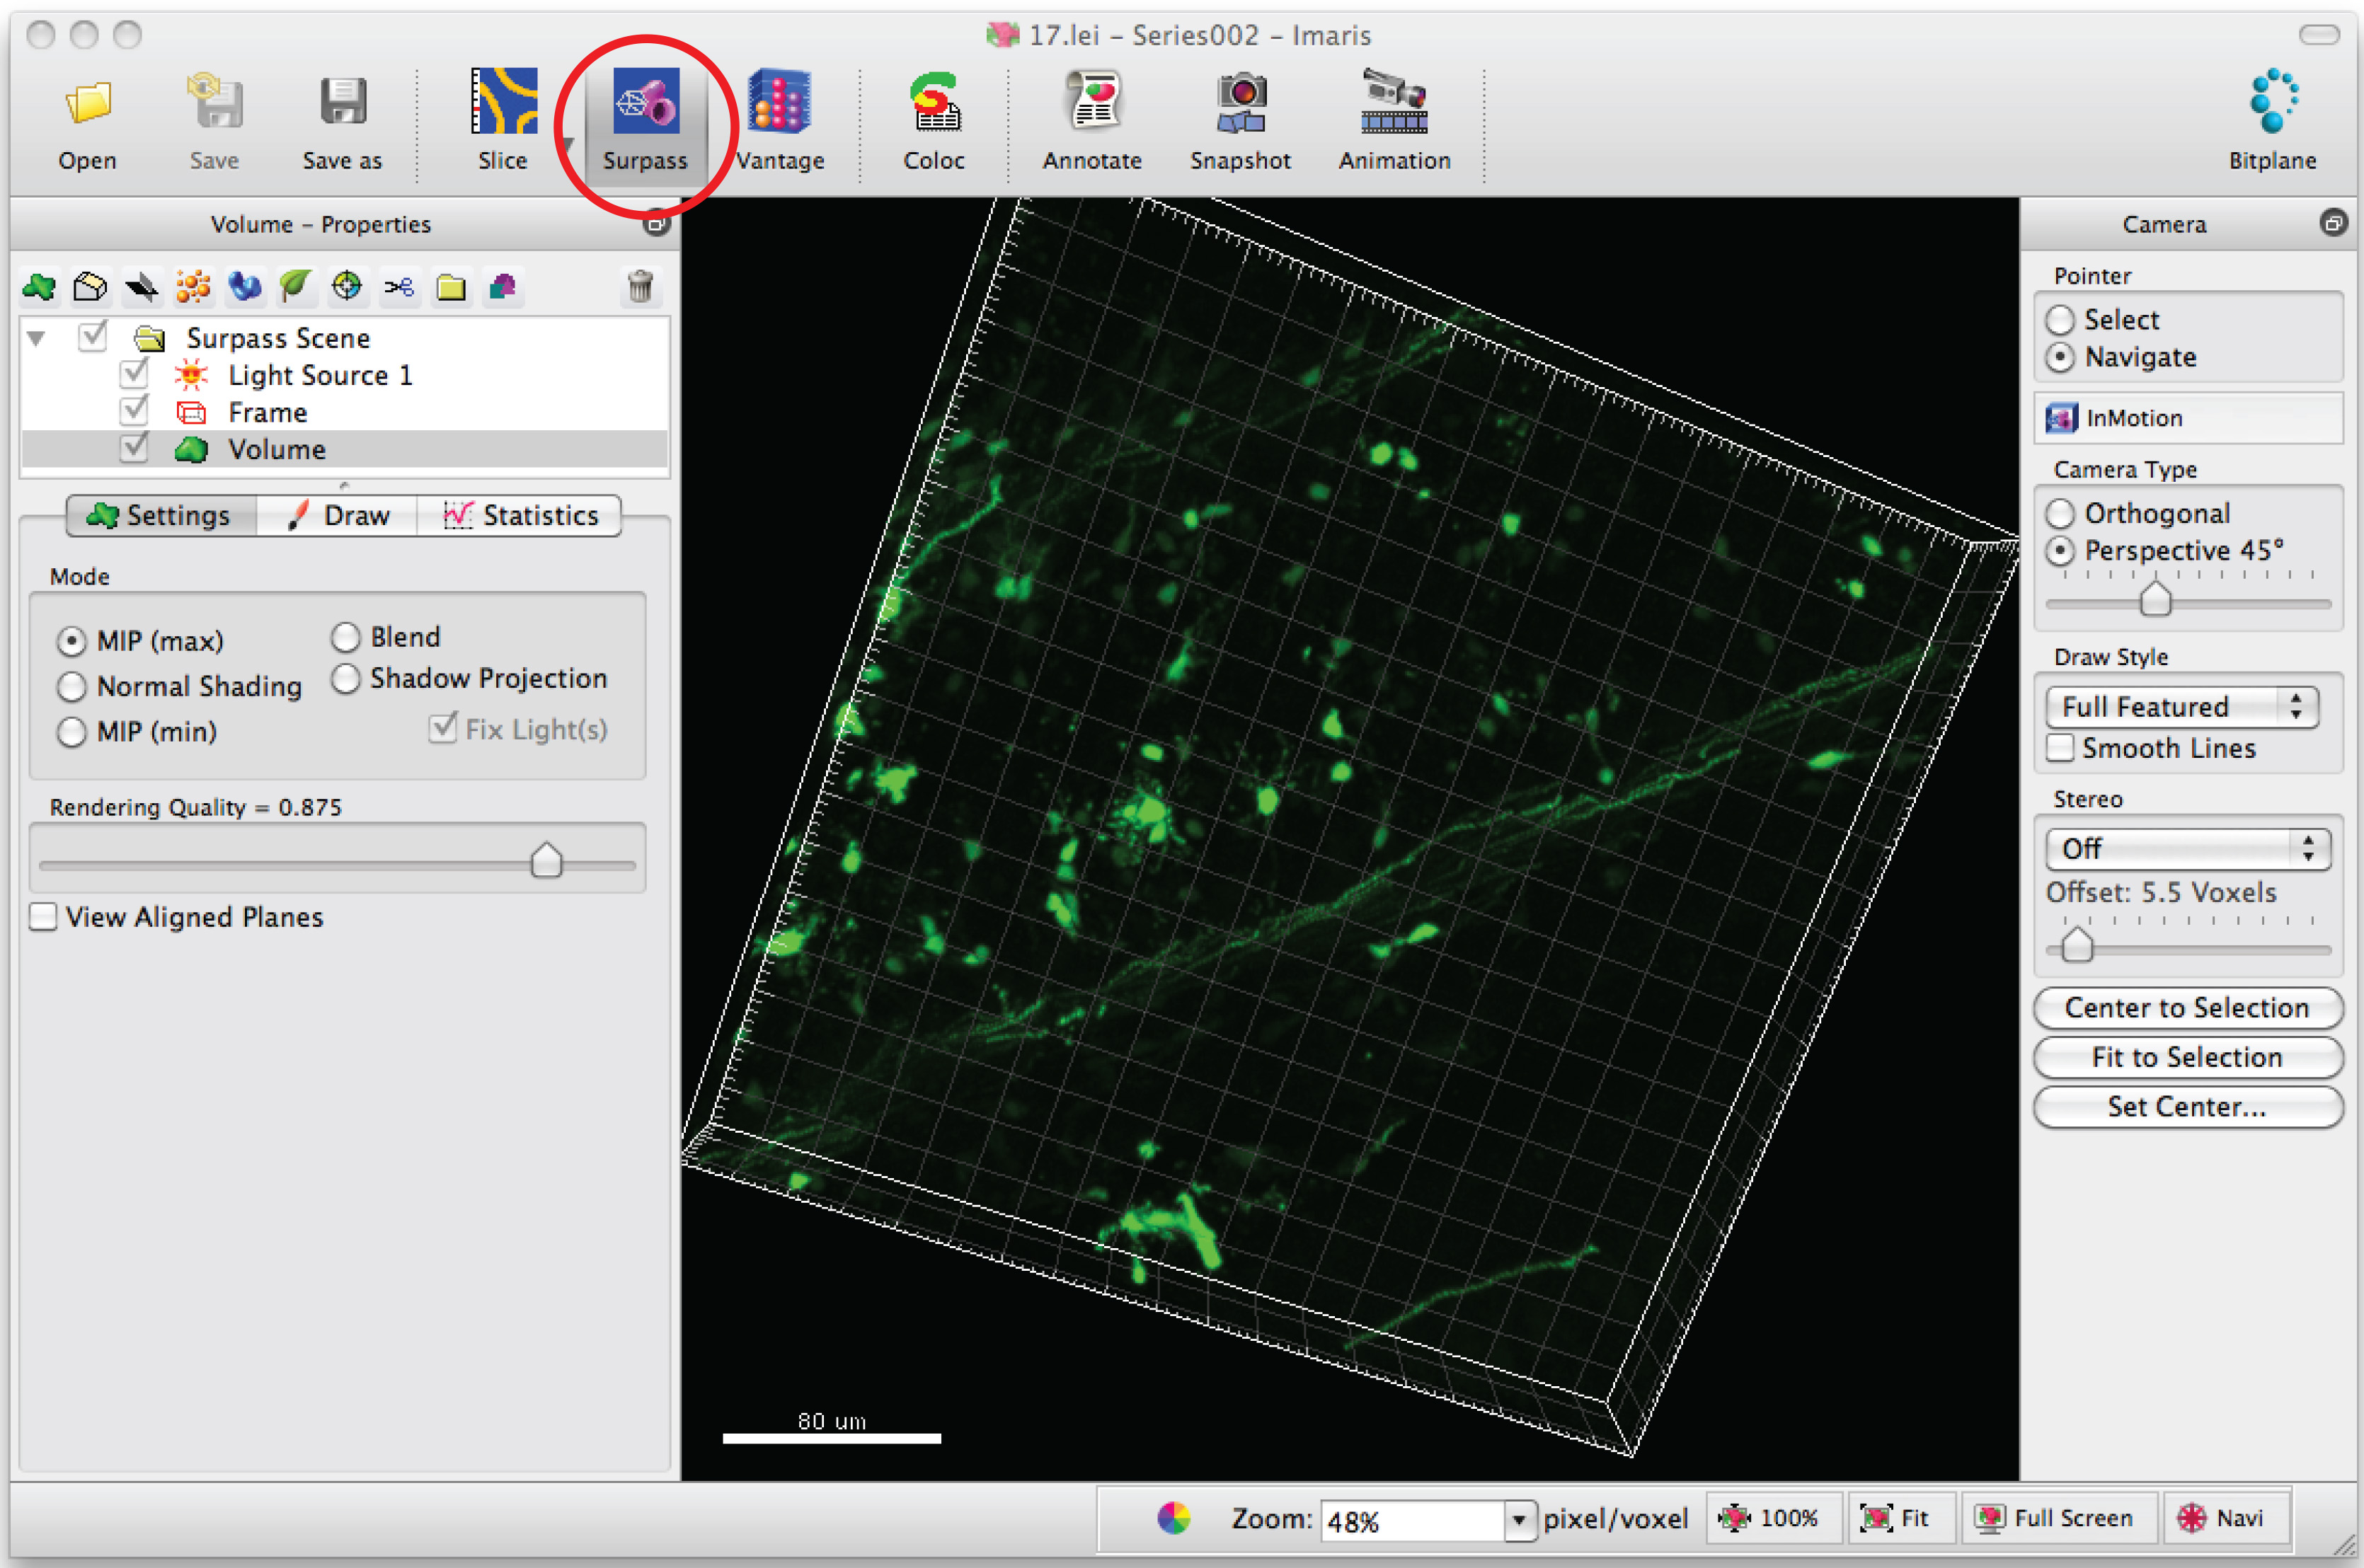
- Selecteer 'Voeg nieuwe gloeidraad' en klik op 'Skip automatisch aanmaken' om halfautomatische tracing beginnen.
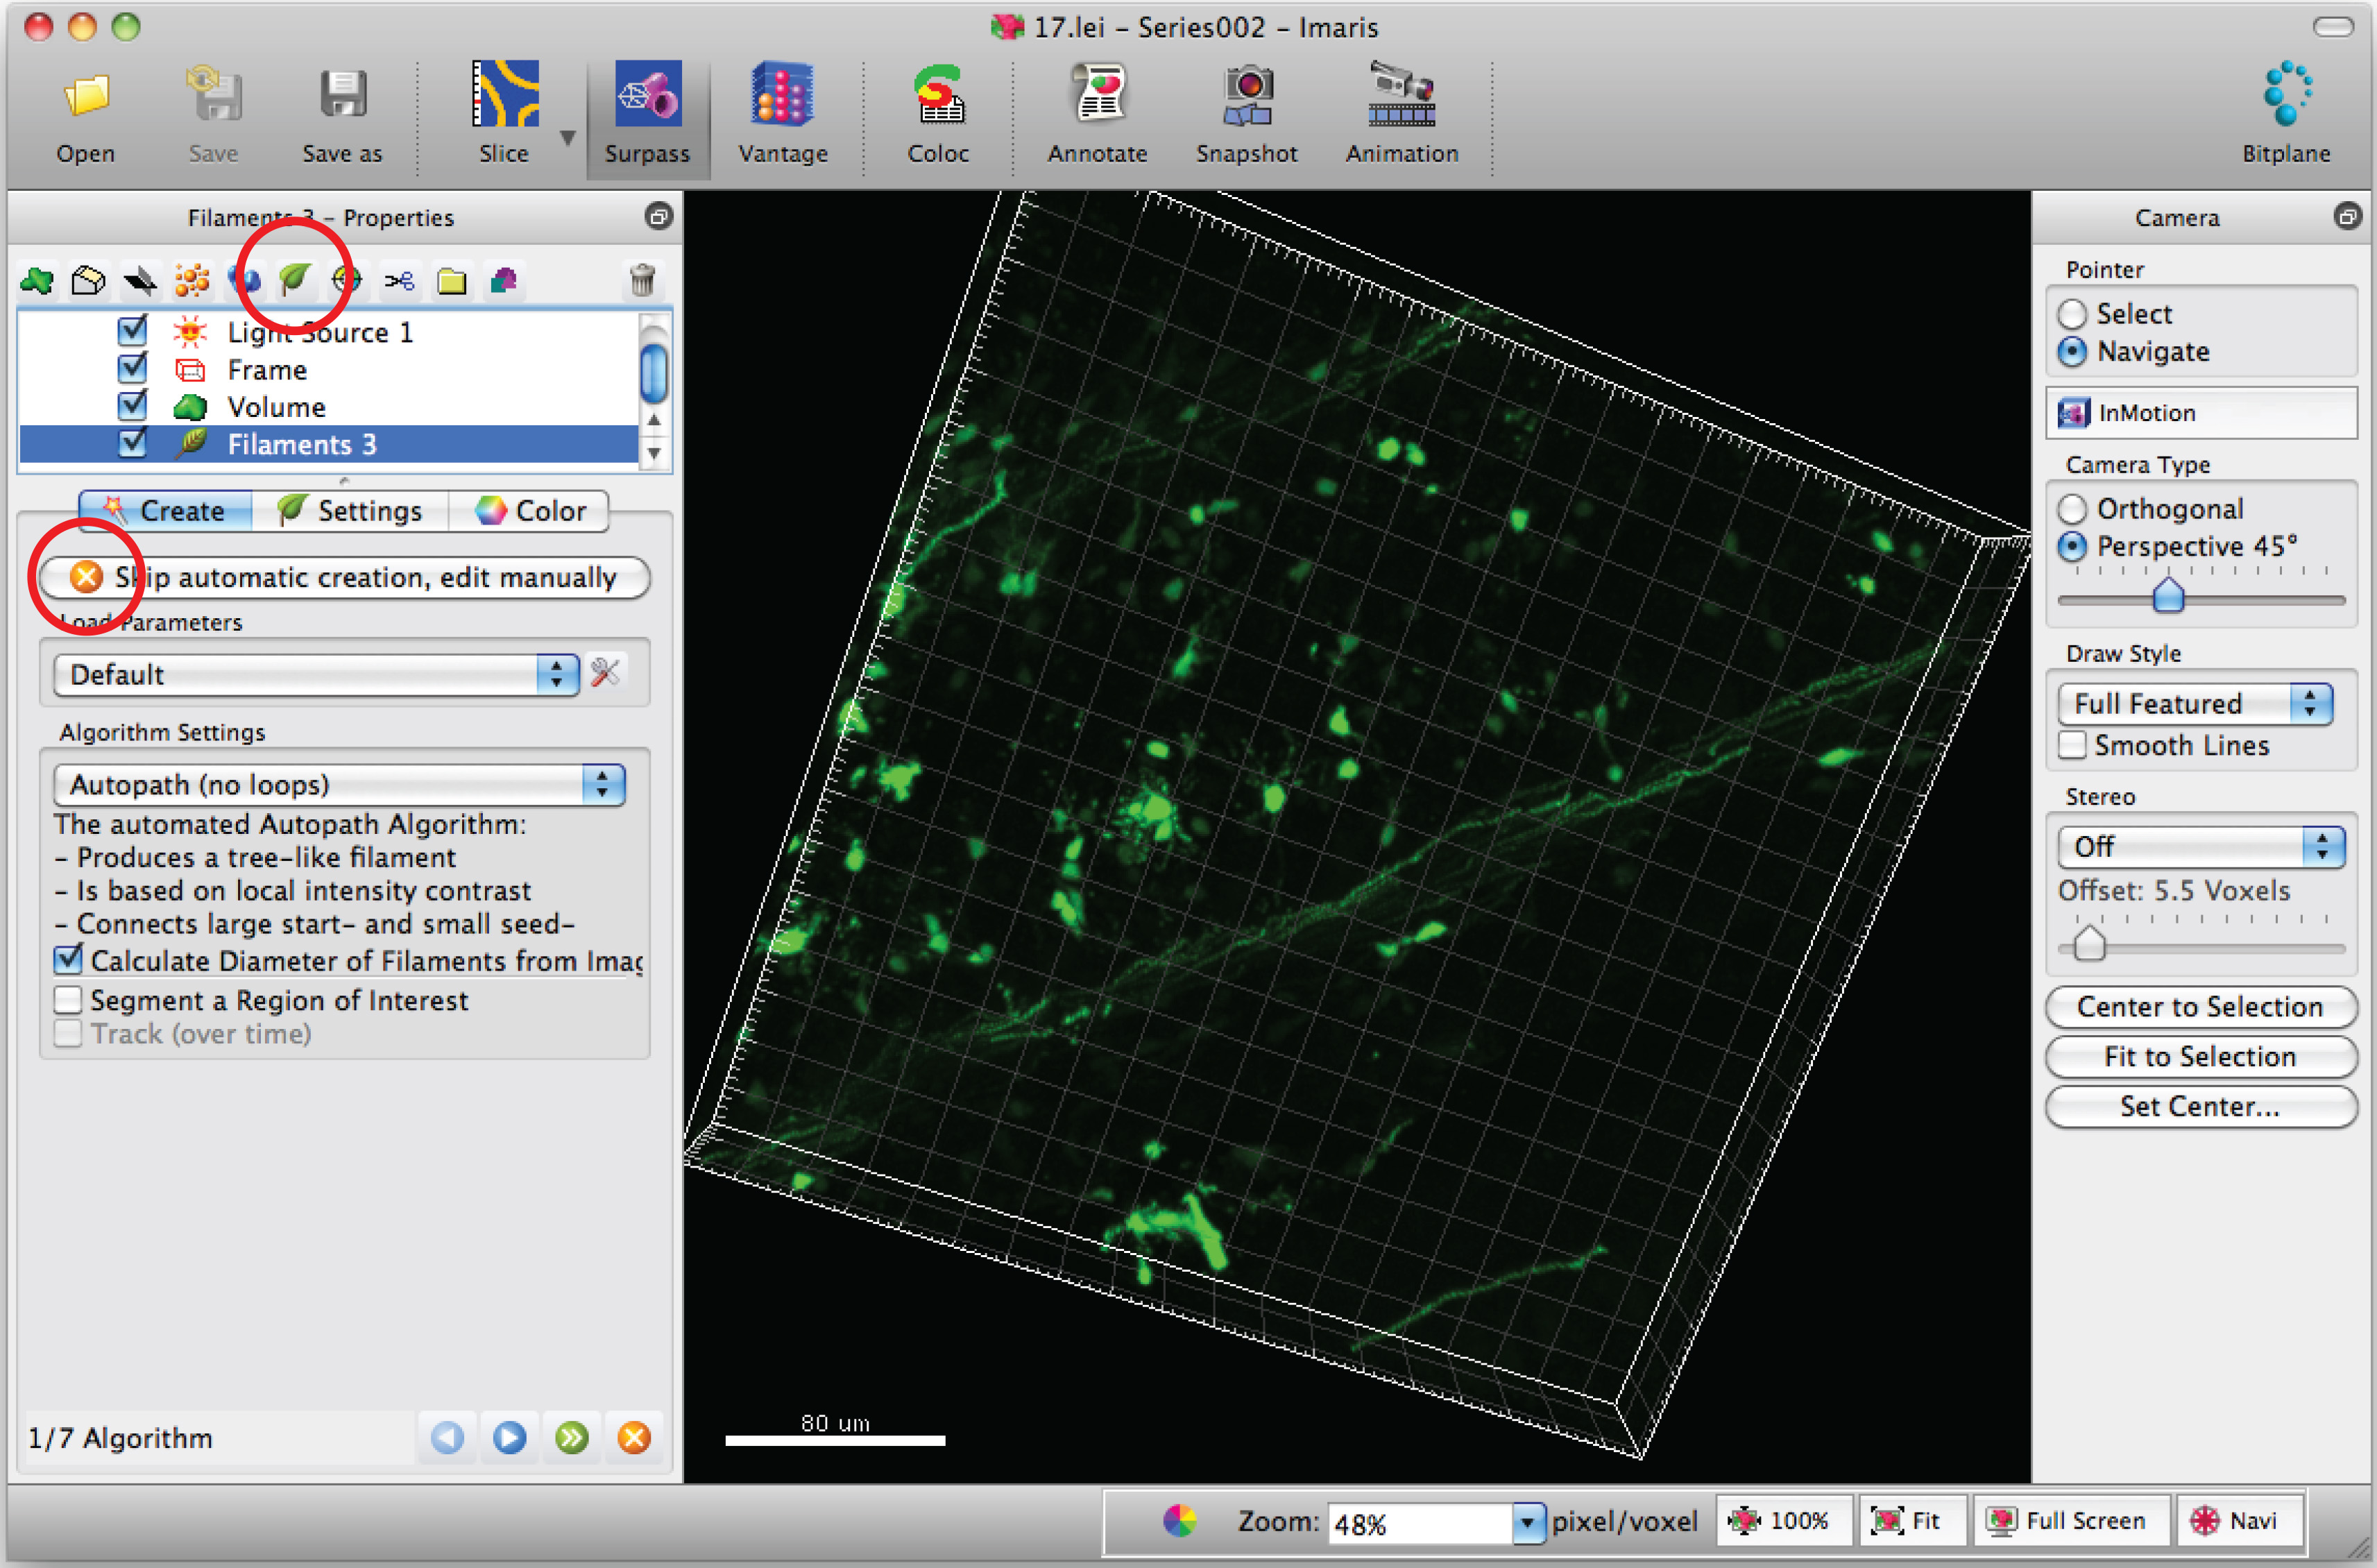
Opmerking: Analyseer elke 3D-afbeelding in een geblindeerde wijze - Kies het tabblad 'Draw' en 'AutoPath'.
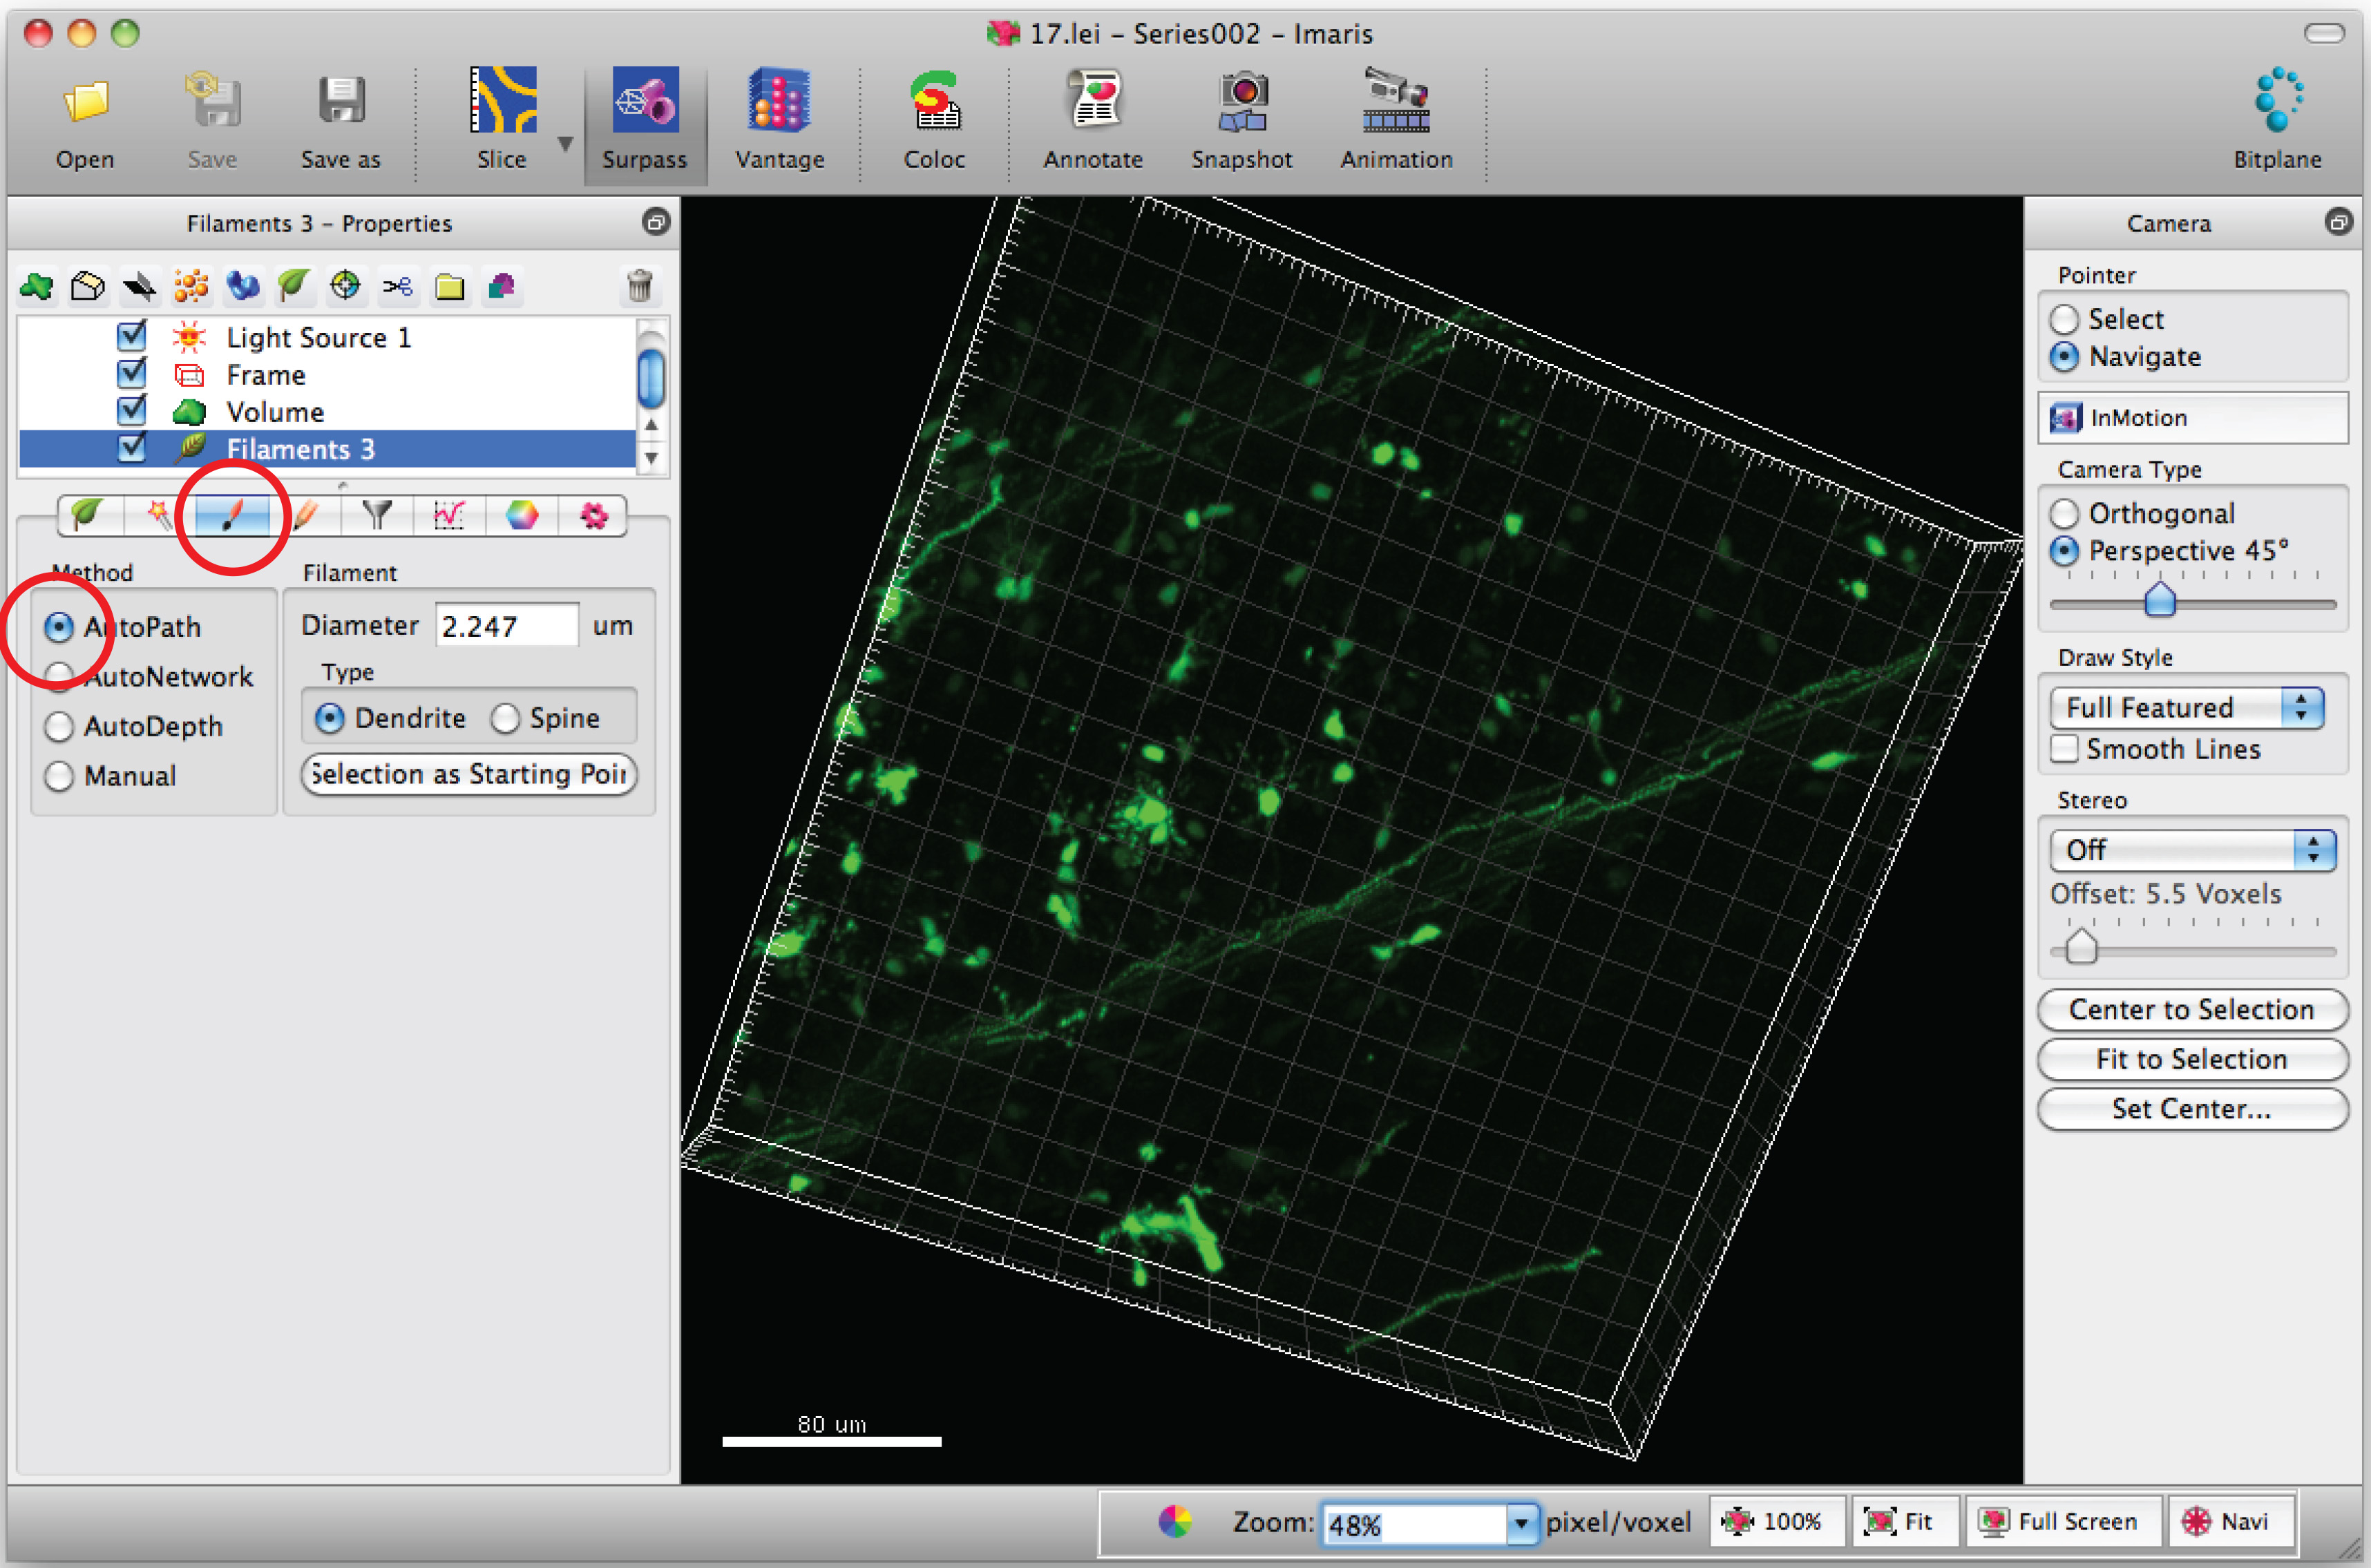
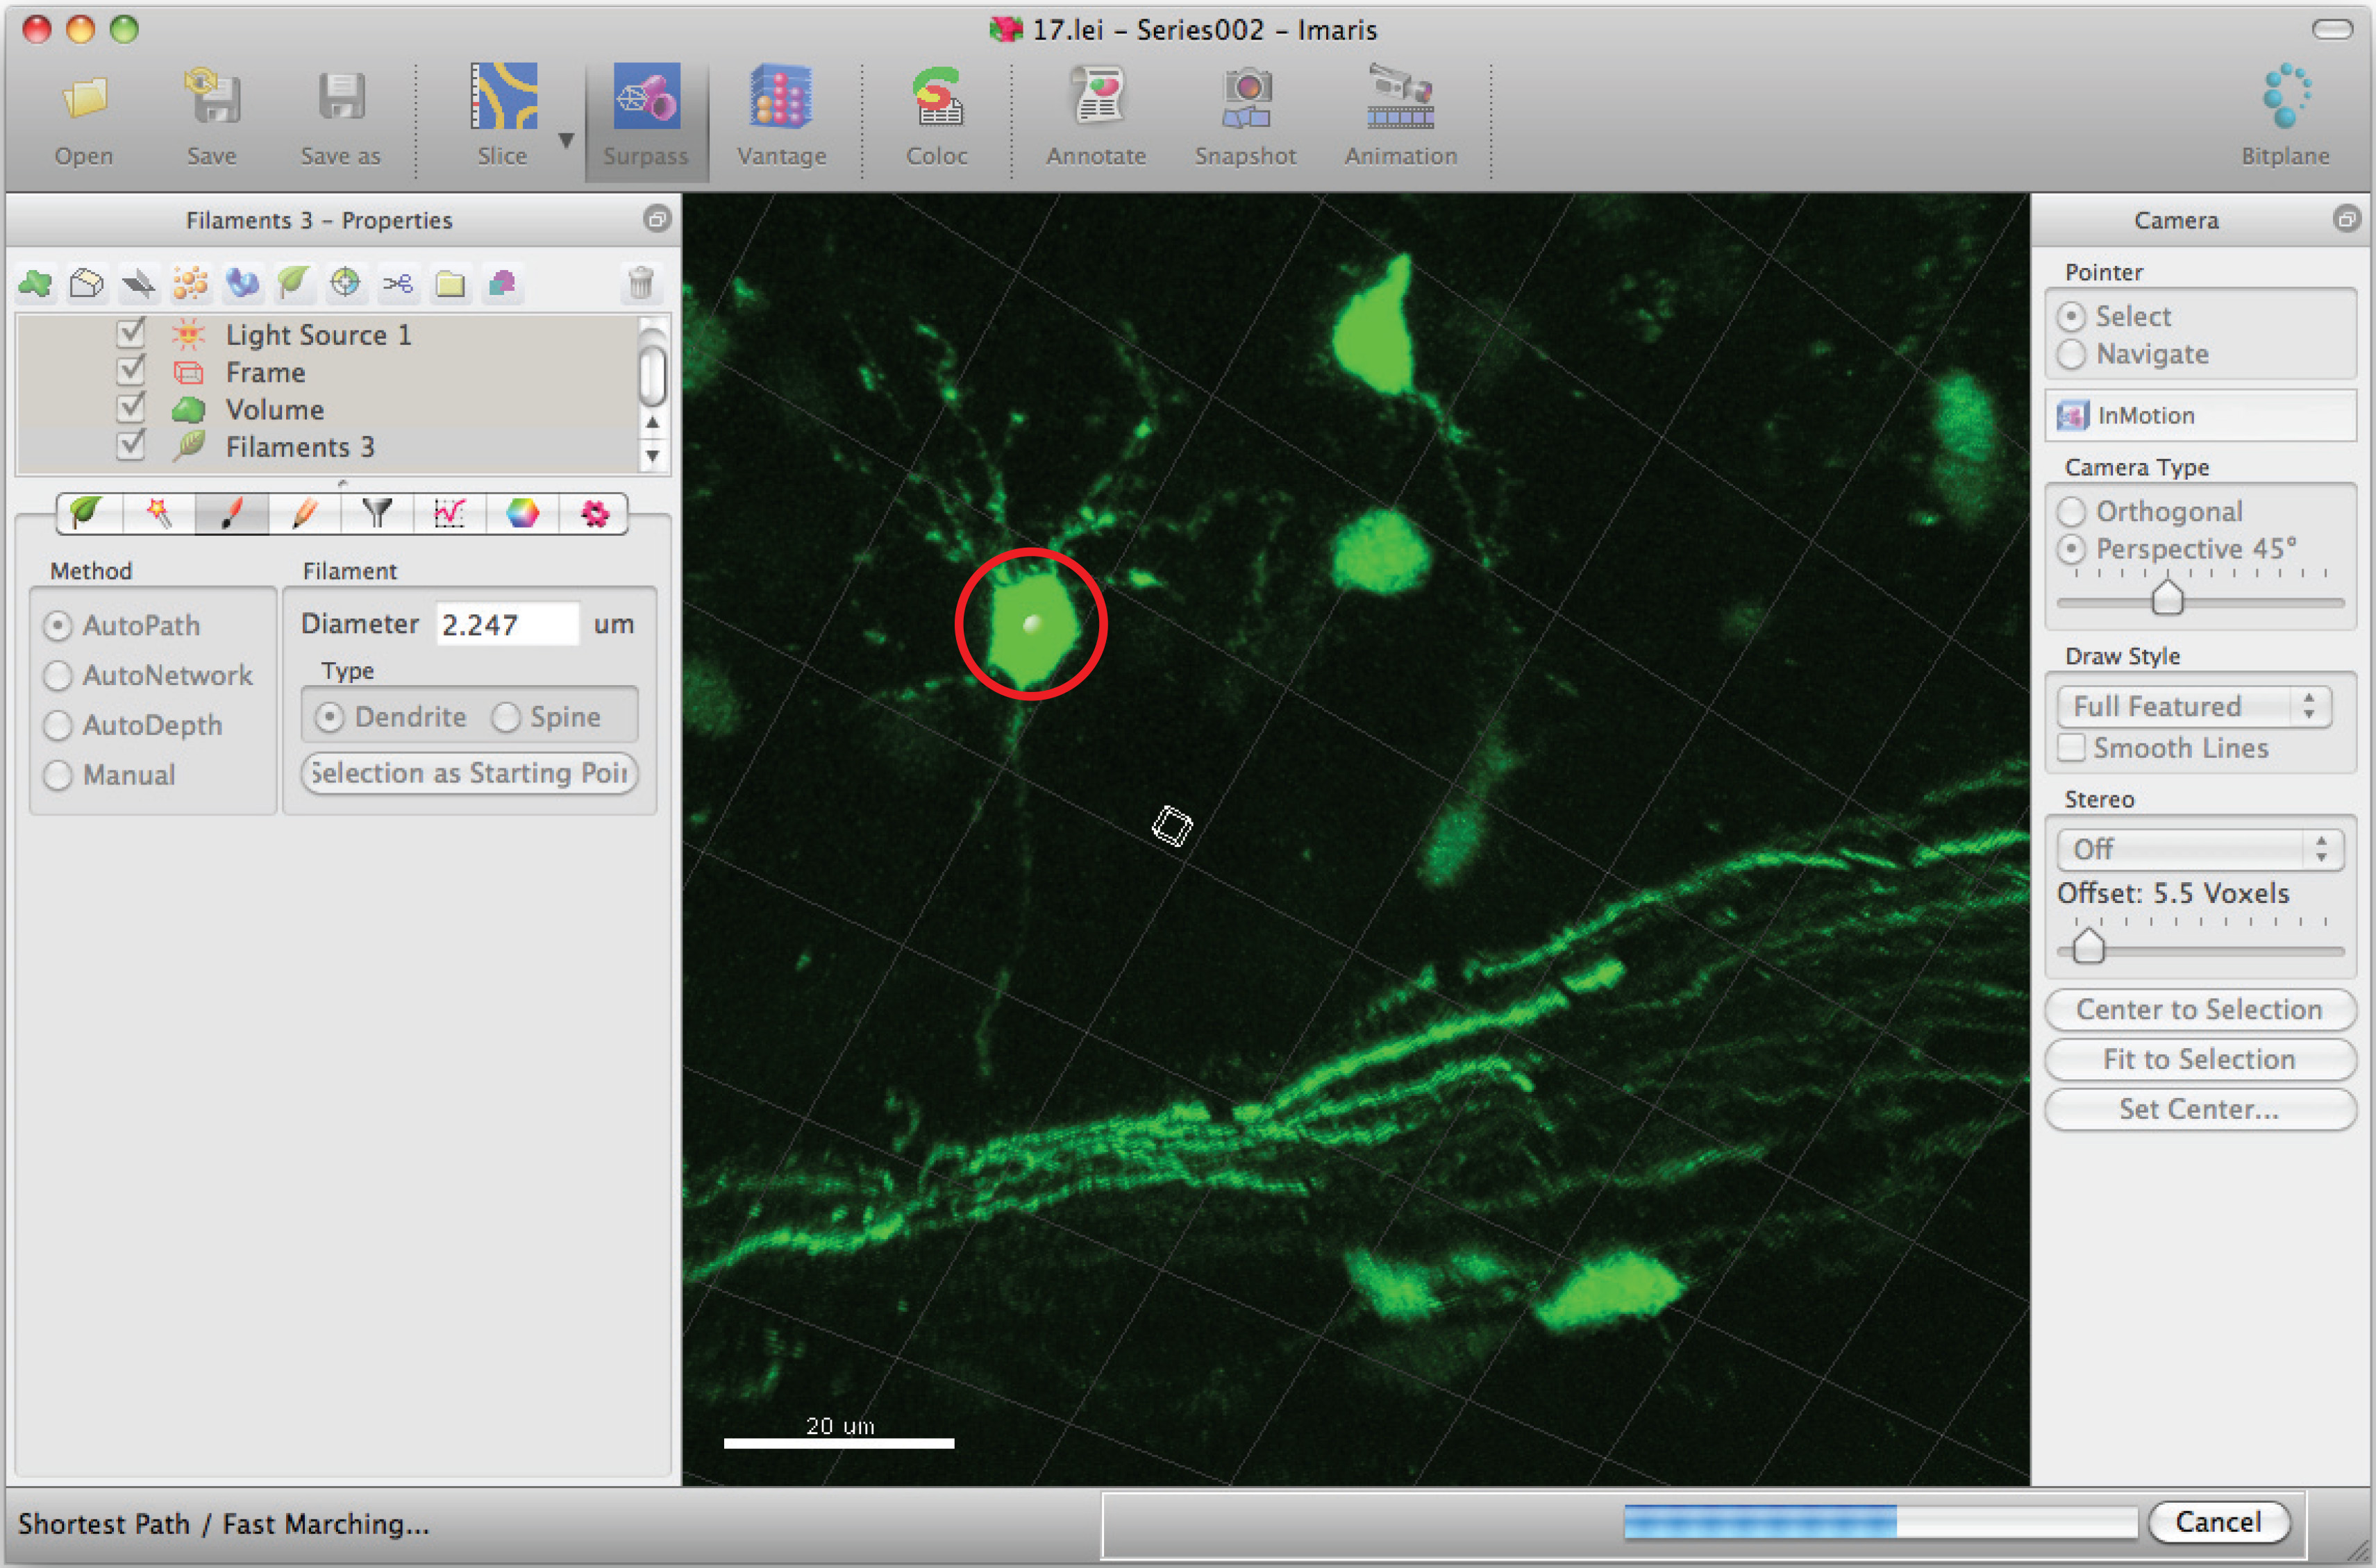
- Beweeg de muisaanwijzer op de cell lichaam en Shift + muis klik met de rechtermuisknop op de cel lichaam selecteren. Opmerking: autocalculation door software kan enkele minuten duren.
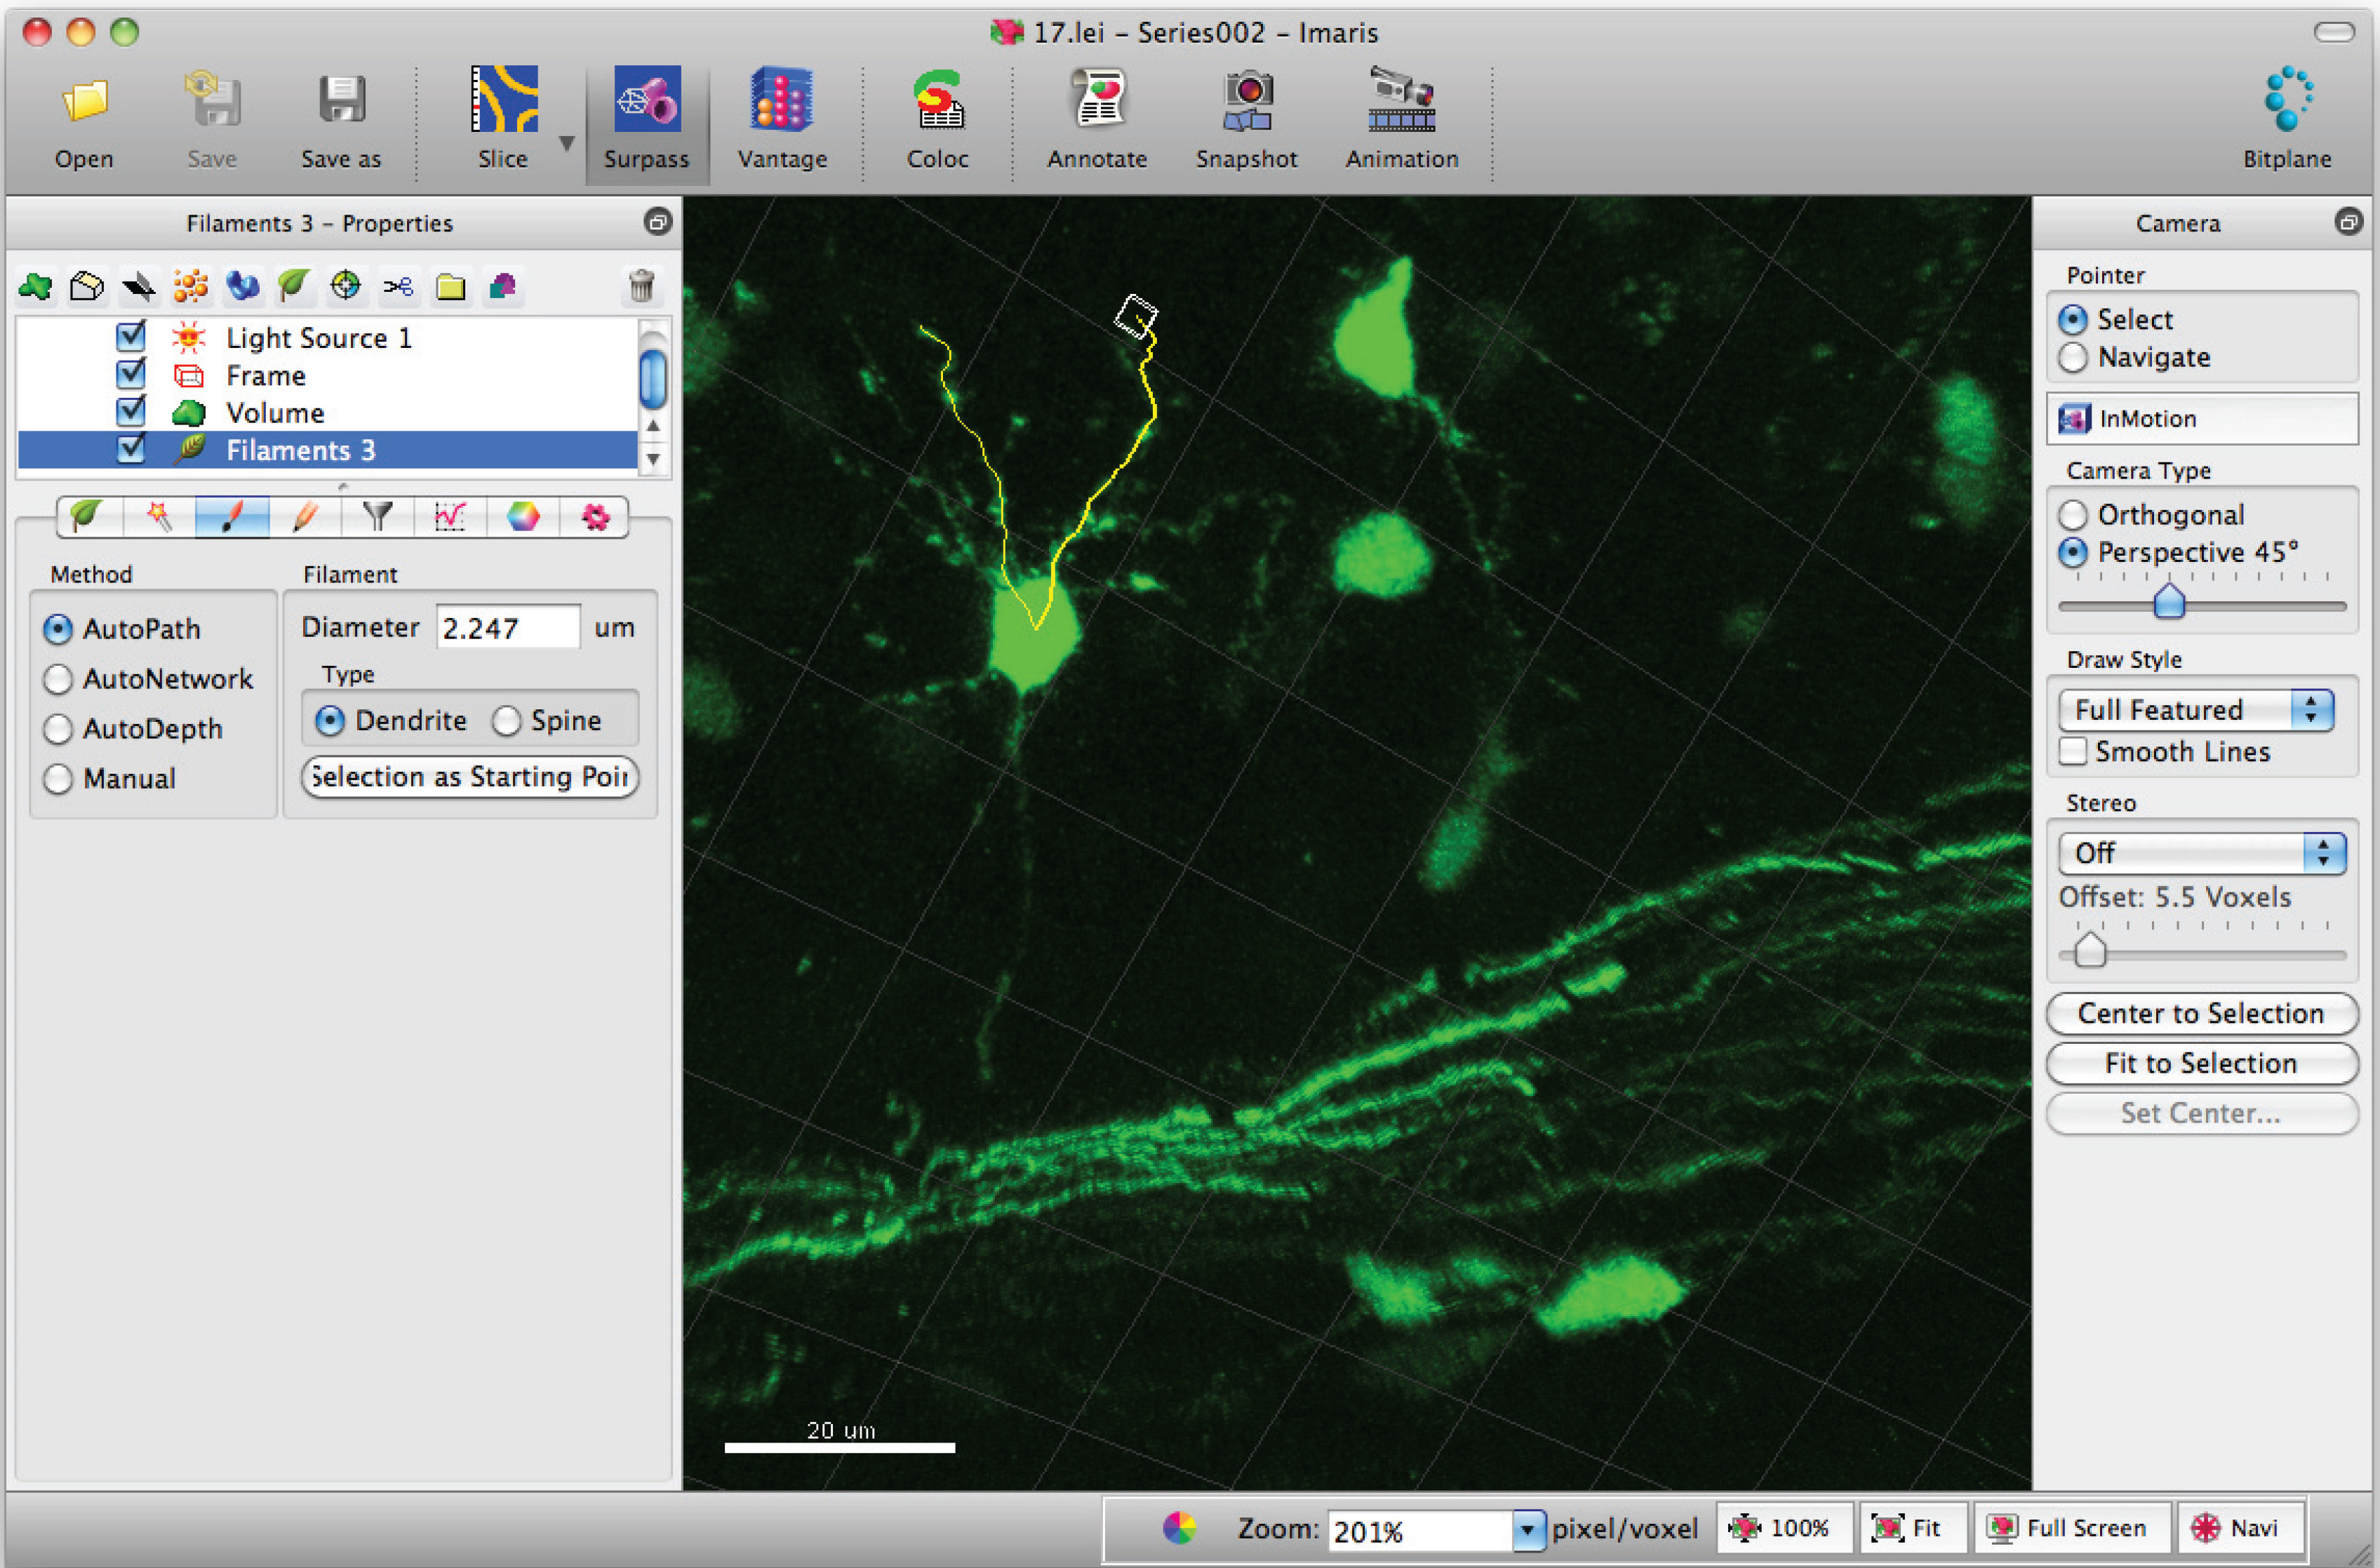
- Paden toe te voegen aan de gloeidraad (dendriet) met Shift + muis naar links klik. Opmerking: Paden kunnen worden gevisualiseerd in real time.
- Ga naar filament statistieken venster en klik op 'Gedetailleerde', 'specifieke waarden' en 'Filament dendrite lengte (som) wordt voor een bedrag van in totaal dendriet lengte.
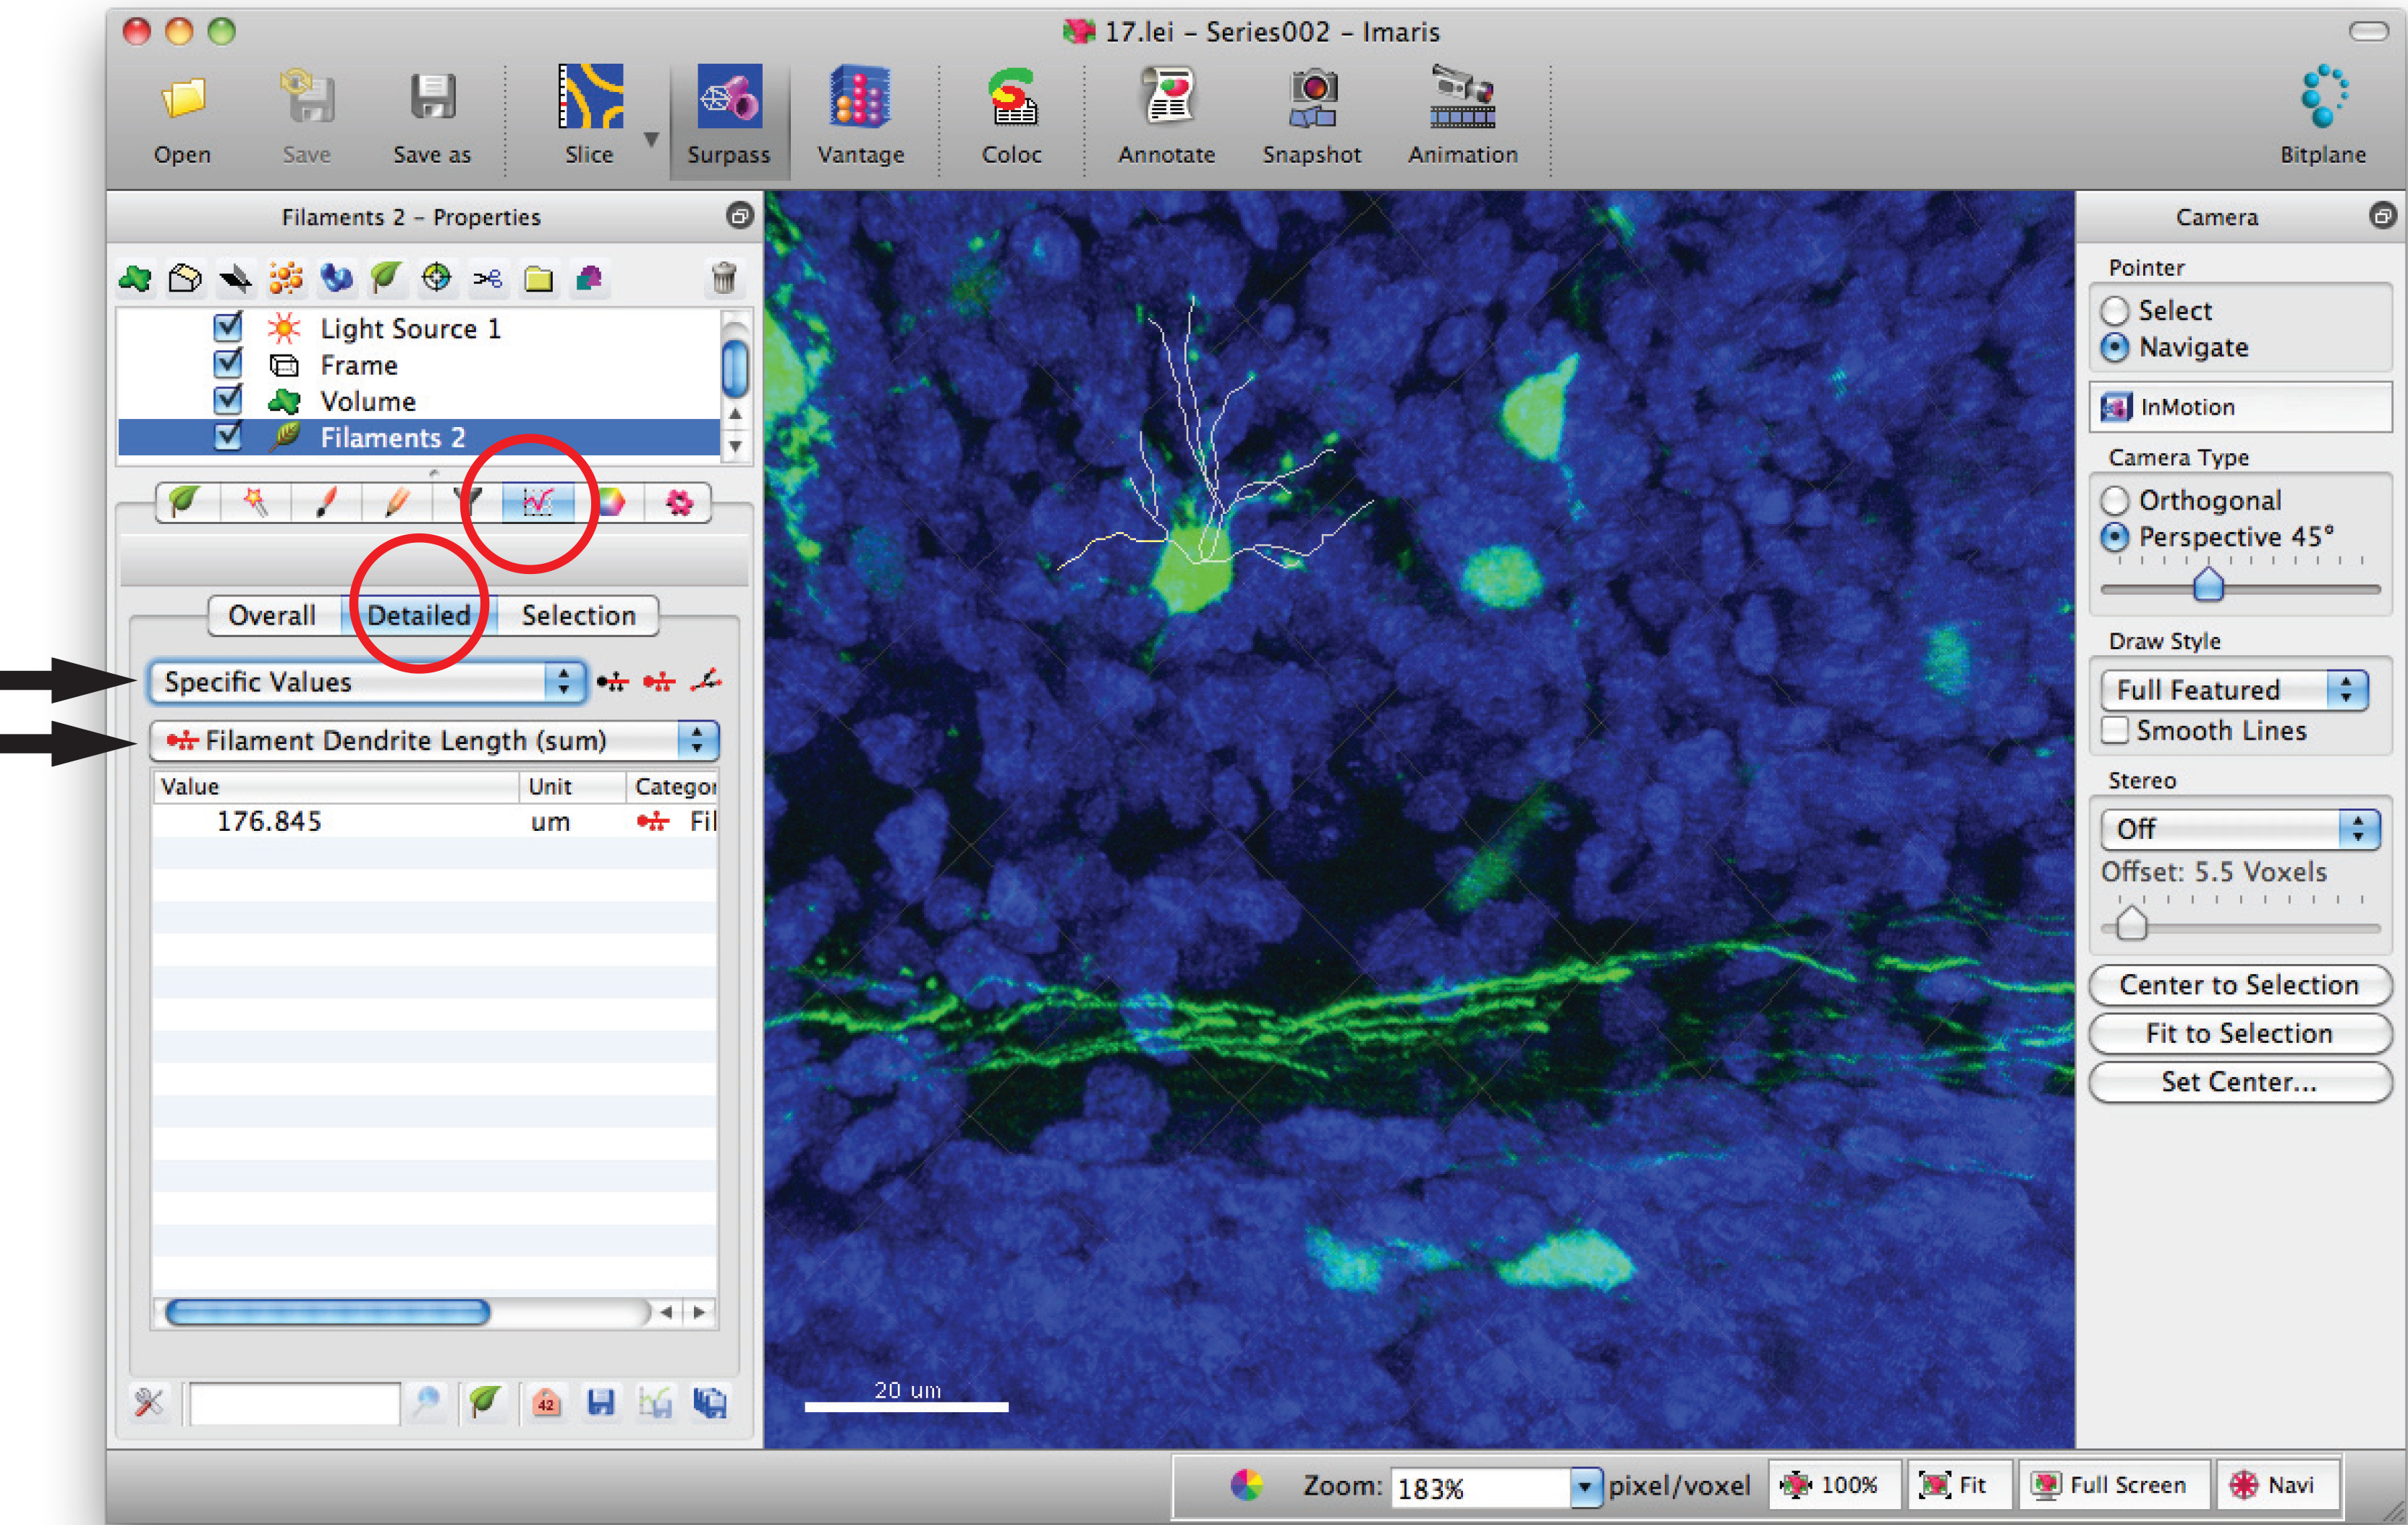
- Gebruik de juiste statistische tests om gegevens te analyseren.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Om de morfologie van CGNs in reactie op verschillende kweekomstandigheden analyseren we getransfecteerde neuronen op DIV 0 zoals hierboven beschreven. Na transfectie, plaatsten we een set van neuronen in volle medium (BME, 10% kalf serum, 2 mM PSG, 25 mM KCl) en een andere set in minimaal medium dat insuline (BME, 25 mM glucose, 2 mM PSG, 10 ug / ml insuline). We onderworpen de neuronen immuuncytochemie behulp van de GFP antilichaam bij DIV 1, 2, en 3, gevolgd door het meten van axonen en dendrieten voor set 1 en axonen...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Voordelen en beperkingen van de beschreven in vitro en in vivo methoden:
Gekweekte CGNs van muis en ratten zijn even goed geschikt voor morfologische analyse. Door de grotere omvang van een rat cerebellum, de opbrengst van CNG uit rattenpups dat van muisjongen 3-4x. Afgezien van CGNs, kan corticale en hippocampale neuronen worden gebruikt als cultuur-systeem ook. De calciumfosfaat methode resulteert in een lage (0,01-5%) transfectie-efficiëntie, die gewenst is om de morfolo...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren geen concurrerende financiële belangen.
Dankbetuigingen
Wij danken N. Schwedhelm-Domeyer voor een uitstekende technische bijstand, C. Hamer en S. Papiol voor hulp bij statistische analyses. Ons werk wordt gefinancierd door het Max-Planck-Gesellschaft, de Deutsche Forschungsgemeinschaft, het Centrum voor nanoschaal Microscopie en Moleculaire Fysiologie van de hersenen (CNMPB), Göttingen, Duitsland en door de GGNB Junior Groep Stipendium van de Universiteit van Göttingen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| DMEM | Gibco | 11960-044 | |
| BME | Gibco | 41010-026 | |
| Insulin | Sigma-Aldrich | Si-1-4011 | |
| Poly-L-Ornithine | Sigma-Aldrich | P-2533 | |
| CaCl2 | Appli-Chem | A3652 | |
| Isoflurane | Actavis Deutschland | ||
| Tissue-Tek OCT | Sakura | ||
| ECM 830 and tweezertrodes | Harvard Apparatus | ||
| Epifluorescence microscope and camera | Nikon | ||
| SP2 confocal microscope | Leica | ||
| ImageJ | NIH | ||
| Imaris 7.4.2 | Bitplane, Inc. | ||
| GraphPad Prism | GraphPad Software, Inc. | ||
| MS Excel | Microsoft | ||
| Loading tip 1-200 µl | Costar | 4853 | |
| Pipette tip 200 µl | Sarstedt | 70.760.502 | |
| Microlance 3 needle, 30 G | BD | 302200 | |
| 50 µl gastight Syringe 1705 | Hamilton | ||
| Glass coverslips | Thermo Scientific Menzel Glaeser | CB00120RA1 |
Referenties
- Cajal, S. R. Histology of the nervous system of man and vertebrates. , Oxford University Press. (1995).
- Altman, J., Bayer, S. A. Development of the cerebellar system : in relation to its evolution, structure, and functions. , CRC Press. (1997).
- White, J. J., Reeber, S. L., Hawkes, R., Sillitoe, R. V. Wholemount immunohistochemistry for revealing complex brain topography. J. Vis. Exp. , (2012).
- Palay, S. L., Chan-Palay, V. Cerebellar cortex: cytology and organization. , Springer. (1974).
- Hatten, M. E., Alder, J., Zimmerman, K., Heintz, N. Genes involved in cerebellar cell specification and differentiation. Curr. Opin. Neurobiol. 7, 40-47 (1997).
- Hatten, M. E., Heintz, N. Mechanisms of neural patterning and specification in the developing cerebellum. Annu. Rev. Neurosci. 18, 385-408 (1995).
- Sillitoe, R. V., Joyner, A. L. Morphology molecular codes, and circuitry produce the three-dimensional complexity of the cerebellum. Ann. Rev. Dev. Biol. 23, 549-577 (2007).
- Zervas, M., Millet, S., Ahn, S., Joyner, A. L. Cell behaviors and genetic lineages of the mesencephalon and rhombomere 1. Neuron. 43, 345-357 (2004).
- Wingate, R. J. The rhombic lip and early cerebellar development. Curr. Opin. Neurobiol. 11, 82-88 (2001).
- Kawaji, K., Umeshima, H., Eiraku, M., Hirano, T., Kengaku, M. Dual phases of migration of cerebellar granule cells guided by axonal and dendritic leading processes. Mol. Cell Neurosci. 25, 228-240 (2004).
- Hatten, M. E., Gao, W. -Q., Morrison, M. E., Mason, C. A. Cellular and molecular neuroscience. , MIT Press. 419-41 Forthcoming.
- Lee, H. Y., Greene, L. A., Mason, C. A., Manzini, M. C. Isolation and culture of post-natal mouse cerebellar granule neuron progenitor cells and neurons. J. Vis. Exp. , (2009).
- Bilimoria, P. M., Bonni, A. Cultures of cerebellar granule neurons. CSH Protoc. 2008, (2008).
- Rivas, R. J., Hatten, M. E. Motility and cytoskeletal organization of migrating cerebellar granule neurons. J. Neurosci. 15, 981-989 (1995).
- Kuhar, S. G., et al. Changing patterns of gene expression define four stages of cerebellar granule neuron differentiation. Development. 117, 97-104 (1993).
- Baird, D. H., Hatten, M. E., Mason, C. A. Cerebellar target neurons provide a stop signal for afferent neurite extension in vitro. J. Neurosci. 12, 619-634 (1992).
- Segal, R. A., Pomeroy, S. L., Stiles, C. D. Axonal growth and fasciculation linked to differential expression of BDNF and NT3 receptors in developing cerebellar granule cells. J. Neurosci. 15, 4970-4981 (1995).
- Gallo, V., Ciotti, M. T., Coletti, A., Aloisi, F., Levi, G. Selective release of glutamate from cerebellar granule cells differentiating in culture. Proc. Natl. Acad. Sci. U.S.A. 79, 7919-7923 (1982).
- Smith, T. C., Wang, L. Y., Howe, J. R. Distinct kainate receptor phenotypes in immature and mature mouse cerebellar granule cells. Physiol. 517 (1), 51-58 (1999).
- Konishi, Y., Stegmuller, J., Matsuda, T., Bonni, S., Bonni, A. Cdh1-APC controls axonal growth and patterning in the mammalian brain). Science. 303, 1026-1030 (2004).
- Stegmuller, J., Huynh, M. A., Yuan, Z., Konishi, Y., Bonni, A. TGFbeta-Smad2 signaling regulates the Cdh1-APC/SnoN pathway of axonal morphogenesis. J. Neurosci. 28, 1961-1969 (2008).
- Stegmuller, J., et al. Cell-intrinsic regulation of axonal morphogenesis by the Cdh1-APC target SnoN. Neuron. 50, 389-400 (2006).
- Kannan, M., Lee, S. J., Schwedhelm-Domeyer, N., Nakazawa, T., Stegmuller, J. p250GAP is a novel player in the Cdh1-APC/Smurf1 pathway of axon growth regulation. PLoS One. 7, (2012).
- Kannan, M., Lee, S. J., Schwedhelm-Domeyer, N., Stegmuller, J. The E3 ligase Cdh1-anaphase promoting complex operates upstream of the E3 ligase Smurf1 in the control of axon growth. Development. 139, 3600-3612 (2012).
- Gaudilliere, B., Konishi, Y., de la Iglesia, N., Yao, G., Bonni, A. A. CaMKII-NeuroD Signaling Pathway Specifies Dendritic Morphogenesis. Neuron. 41, 229-241 (2004).
- Yang, Y., et al. A Cdc20-APC ubiquitin signaling pathway regulates presynaptic differentiation. Science. 326, 575-578 (2009).
- Litterman, N., et al. An OBSL1-Cul7Fbxw8 ubiquitin ligase signaling mechanism regulates Golgi morphology and dendrite patterning. PLoS Biol. 9, (2011).
- Kim, A. H., et al. A centrosomal Cdc20-APC pathway controls dendrite morphogenesis in postmitotic neurons. Cell. 136, 322-336 (2009).
- Shalizi, A., et al. A calcium-regulated MEF2 sumoylation switch controls postsynaptic differentiation. Science. 311, 1012-1017 (2006).
- Vadhvani, M., Schwedhelm-Domeyer, N., Mukherjee, C., Stegmuller, J. The Centrosomal E3 Ubiquitin Ligase FBXO31-SCF Regulates Neuronal Morphogenesis and Migration. PLoS One. 8, (2013).
- Puram, S. V., et al. A CaMKIIbeta signaling pathway at the centrosome regulates dendrite patterning in the brain. Nat. Neurosci. , (2011).
- Jia, Y., Zhou, J., Tai, Y., Wang, Y. TRPC channels promote cerebellar granule neuron survival. Nat. Neurosci. 10, 559-567 (2007).
- Huynh, M. A., et al. An isoform-specific SnoN1-FOXO1 repressor complex controls neuronal morphogenesis and positioning in the mammalian brain. Neuron. 69, 930-944 (2011).
- de la Torre-Ubieta, L., Bonni, A. Transcriptional regulation of neuronal polarity and morphogenesis in the mammalian brain. Neuron. 72, 22-40 (2011).
- Calissano, P., et al. Recombinant human insulin-like growth factor I exerts a trophic action and confers glutamate sensitivity on glutamate-resistant cerebellar granule cells. Proc. Natl. Acad. Sci. U.S.A. 90, 8752-8756 (1993).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
