Streptococcus pneumoniae is de toonaangevende ziekteverwekker waardoor ernstige community-acquired pneumonie en verantwoordelijk voor meer dan 2 miljoen doden wereldwijd. De invloed van bacteriële factoren betrokken bij fitness of virulentie kan worden gevolgd in real-time in een acute muis longontsteking of bacteriëmie model met behulp van bioluminescentie bacteriën.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Na in Real Time de impact van Pneumokokken virulentiefactoren in een acute longontsteking Muis Model Met behulp van Bioluminescent Bacteriën
In dit artikel
Samenvatting
Samenvatting
Longontsteking is een van de grootste problemen in de gezondheidszorg in ontwikkelingslanden en geïndustrialiseerde landen en wordt geassocieerd met een aanzienlijke morbiditeit en mortaliteit. Ondanks de vooruitgang in kennis van deze ziekte, de beschikbaarheid van intensive care units (ICU), en het gebruik van krachtige antimicrobiële middelen en effectieve vaccins, de sterftecijfers hoog blijven 1. Streptococcus pneumoniae is de toonaangevende pathogeen van community-acquired pneumonie (CAP) en een van de meest voorkomende oorzaken van bacteriëmie bij mensen. Dit organisme is uitgerust met een arsenaal van oppervlakte blootgestelde adhesinen en virulentie factoren longontsteking en invasieve pneumokokken (IPD). De evaluatie van de in vivo rol van bacteriële fitness of virulentie factoren is van het grootste belang te ontrafelen S. pneumoniae pathogeniteit mechanismen. Murine modellen pneumonie, bacteriëmie en meningitis worden gebruikt om het effect van pneumokokken factoren verschil bepalenlende stadia van de infectie. Hier beschrijven we een protocol om in real-time pneumokokken verspreiding in muizen na intranasale of intraperitoneale infecties met bioluminescentie bacteriën. De resultaten tonen de replicatie en verspreiding van pneumokokken in de onderste luchtwegen en bloed, die kunnen worden gevisualiseerd en geëvalueerd middels een afbeeldingssysteem en de bijbehorende analyse software.
Inleiding
Luchtweginfecties veroorzaakt door virussen of bacteriën blijven een van de meest voorkomende gemeenschap verworven of klinische problemen veroorzaakt wereldwijd ongeveer een derde van alle overlijden wereldwijd. De belangrijkste bacteriële soorten Haemophilus influenzae en Streptococcus pneumoniae 2. Echter, deze bacteriesoorten gewoonlijk voorkomende bestanddelen van de natuurlijke luchtwegen flora. Aldus bacteriële wagen ook zeker risico voor invasieve ziekten en afhankelijk van de immuunstatus of predisposities van de individuen. De asymptomatische kolonisatie wordt geactiveerd om invasieve infecties. Streptococcus pneumoniae is de toonaangevende pathogeen van community-acquired pneumonie (CAP) en een van de meest voorkomende oorzaken van bacteriëmie bij de mens. Bij gezonde individuen S. pneumoniae (pneumokokken) zijn vaak asymptomatisch en onschadelijk kolonisatoren van de bovenste luchtwegen, wanneer zij worden geconfronteerd met niet-pathogene bacteriënvan de bewoner flora maar ook met ziekteverwekkers zoals Haemophilus spp. of Staphylococcus aureus en de eerste regel van het menselijke immuunsysteem afweersysteem. Vervoer tarieven zijn het hoogst bij jonge kinderen (37%) en zelfs hoger in overvolle opvangcentra (58%) 3-5. De jongste bevolking en ouderen, het ontvangen van de pneumokok via aërosol-transmissie van vervoerders en nasopharyngeal afscheidingen 6, behoren tot de risicogroepen en vaccinatie met behulp van een van de pneumokokken conjugaat vaccins (PCV10 of PCV13 bij kinderen en 23-valent polysaccharide PPSV23 bij volwassenen) wordt aanbevolen in de Verenigde Staten (VS) en vele Europese landen 4. De PPSV23 dekt serotypen verantwoordelijk voor ~ 90% van de bacteremic pneumokokken ziekten in de VS en Europa, het voorkomen zo effectief invasieve pneumokokken ziekten (IPD) bij volwassenen, terwijl de PCVs betrekking op de meest voorkomende serotypen bij kinderen. Bijgevolg IPD vanwege types vaccin (VT) zijn ReduCED maar nonvaccine serotypen weergeven van een hoge virulentie en antibioticumresistentie ontstaan 4,7-12. De nasopharynx als het reservoir is het startpunt voor pneumokokken te verspreiden naar de sinussen of middelste oren initiëren van schadelijke lokale infecties. Belangrijker, pneumokokken rechtstreeks verspreid via de luchtwegen naar de bronchiën en longen resulteert in levensbedreigende CAP 4,13. Longinfecties gaan vaak gepaard met weefsel en barrière vernietiging, waardoor het pathogeen te verspreiden in het bloed en veroorzaakt IPD. Incidentie van GLB en IPD zijn het hoogst in immuungecompromitteerde personen of bij de uitersten van leeftijd 4,13. De omstandigheden die verantwoordelijk is voor de omzetting van een commensaal een ziekteverwekker met een hoge virulentie zijn nog in discussie. Echter, naast veranderingen in de ontvangende gevoeligheid en evolutionaire aanpassing gepaard met hogere virulentie en de toename antibioticaresistenties zijn zouden een belangrijke invloed hebben op pneumococcal infecties 14-16.
De ziekteverwekker is begiftigd met een veelheid van adhesines bemiddelen intiem contact te epitheelcellen mucosale. Na het overwinnen van de luchtwegen slijm, wordt pneumokokken aanhankelijkheid aan gastheercellen gefaciliteerd via directe interactie van het oppervlak blootgestelde adhesines met cellulaire receptoren en door de exploitatie van extracellulaire matrix componenten of serum-eiwitten als overbrugging moleculen 4,17,18. Zo veelzijdig ziekteverwekkers pneumokokken zijn ook uitgerust met factoren betrokken bij ontduiking van gastheer immune afweermechanismen. Bovendien hebben zij het vermogen tot aanpassing aan verschillende ontvangende milieus zoals de longen, bloed en cerebrospinale vloeistof (CSF), respectievelijk 5,17,19,20.
De impact van bacteriële factoren op de pathogenese en inflammatoire gastheer responsen wordt onderzocht in experimentele diermodellen van longontsteking, bacteriëmie of meningitis 21-25. Ondanks dat het een menselijk pathogeen, deze modellen zijn wijll-opgericht om pneumokokken weefseltropisme, virulentie mechanismen, of protectivity van pneumokokkenvaccin kandidaten ontcijferen. De genetische achtergrond van inteelt muizenstammen bepaalt de gevoeligheid voor pneumokokken. BALB / c muizen intranasaal geïnfecteerd met pneumococcen bleken resistent te zijn, terwijl CBA / Ca en SJL muizen gevoeliger tegen pneumokokkeninfecties 22. Dit betekent dat, gelijkaardig aan mensen, de genetische achtergrond en de gastheer afweermechanismen bepalend voor de uitkomst van de infectie. Vandaar dat verdere inspanningen nodig zijn om de weerstand loci ontrafelen in het genoom van de muizen minder gevoelig voor pneumokokkeninfecties. De bevindingen leidden tot veranderingen in virulentie in vivo protocollen. In plaats van de ingeteelde BALB / c muizen vaak gebruikt in het verleden, zijn de zeer gevoelige CD-1/MF1 outbred muizenstammen tegenwoordig vaak gebruikt om het effect van het verlies-van-functie pneumococcen virulentie factoren of geschiktheid 26-28 bestuderen. Bovendien beschikbaarheidvan bioluminescente pneumokokken en optische beeldvormingstechnieken kan de real-time bioluminescentie bioimaging infecties. In pneumococcen de geoptimaliseerde luxABCDE gencassette (plasmide Paul-A Tn 4001 luxABCDE Kmr) ingevoegd in een integratieplaats van het chromosoom door transposon mutagenese. Bioluminescentie pneumococcen zijn gebruikt om de demping van pneumococcen mutanten tekort aan virulentie of geschiktheid factoren en de translocatie ve anatomische plaats naar de andere 26,28-31 beoordelen.
Hier bieden wij een protocol voor de bioimaging van pneumokokkeninfecties in een muizen-pneumonie of sepsis model. Amplificatie en verspreiding van bioluminescente pneumokokken in intranasaal of intraperitoneaal geïnfecteerde muizen kunnen eenvoudig worden gevolgd in de tijd met behulp van een optisch afbeeldingssysteem en hetzelfde dier op verschillende tijdstippen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Het dier infectie experimenten hier beschreven moeten worden uitgevoerd in strikte overeenstemming met de lokale en internationale (bijv. European Health Law van de Federatie van Laboratory Animal Science Associations (FELASA)) richtlijnen en voorschriften voor het gebruik van gewervelde dieren. De experimenten hebben door de lokale ethische raad en Institutional Animal Care Comite worden goedgekeurd. Alle experimenten met S. pneumoniae in het laboratorium of het dier infecties worden uitgevoerd in een klasse II bioveiligheid kabinet.
1. Voorbereiding van de Infectious Stock van Bioluminescent Pneumocococi
- Bereid voorraadoplossingen pneumococcen culturen in Todd-Hewitt bouillon aangevuld met 1% (w / v) gistextract en een uiteindelijke concentratie van 20% glycerol een onderhoud bij 80 ° C.
- Plaat een kleine hoeveelheid diepgevroren stock pneumococcen cultuur op bloed agar plaat en incubeer de bacteriën gedurende 10 uur bij 37 ° C in 5% CO2. Thij bloedagarplaat bevat de juiste antibiotica zoals kanamycine (150 ug / ml) voor de transposon insertie van de luxABCDE gen cassette in het genoom.
- Sub-cultiveren een verse kolonie op een nieuw bloed agar plaat voor een maximum van 10 uur.
- Inoculeer THY medium aangevuld met 10% (v / v) hitte-geïnactiveerd (30 min bij 56 ° C) foetaal runderserum (FBS) met pneumokokken en start de kweek bij een OD 600 van 0,05-0,07.
- Incubeer pneumococcen zonder schudden bij 37 ° C en 5% CO2 totdat de cultuur een OD 600 van 0,35-0,40 bereikt. Groei duurt tussen 3-4 uur.
- Oogst pneumococcen door centrifugeren bij 3750 xg gedurende 10 min en resuspendeer bioluminescente pneumokokken in met fosfaat gebufferde zoutoplossing pH 7,4 (PBS) aangevuld met 0,5% FBS.
- Stel entmateriaal tot de gewenste concentratie in PBS/10% FBS. De infectie dosis is afhankelijk van de pneumococcen stam en de genetische achtergrond van de microfoone. Om outbred CD-1 muizen intranasaal besmet met S. pneumoniae D39 lux de infectie dosis moet worden aangepast tot 1 x 10 7 CFU in een suspensie van 20 pi aangevuld met 90 eenheden hyaluronidase. Niet schudden of vortex pneumokokken, omdat dit autolyse zal leiden.
- Controleer de inoculumconcentratie door platen 10 voudige seriële verdunningen op bloed-agar en telling van de kolonies na groei gedurende de nacht bij 37 ° C in 5% CO2.
- Controleer de bioluminescentie van de pneumococcen inoculum door het meten van de bioluminescentie behulp van een optisch afbeeldingssysteem.
2. Intranasale en Intraperitoneale Infectie van Muizen met Bioluminescent Pneumokokken
- Gebruik vrouwelijke outbred muizen in de leeftijd van 7-10 weken voor de acute longontsteking en sepsis model. Het gewicht van deze muizen moet tussen 20-30 g.
- Verdoven muizen door intraperitoneale injectie van ketamine en xylazine. Maak een mengsel van 1,0 mgketamine en 0,1 mg xylazine in 100 pl steriele 0,9% (w / v) natriumchloride voor muizen met een lichaamsgewicht van 20 g. Dit komt overeen met een dosis van 50 mg / kg lichaamsgewicht voor ketamine en 5 mg / kg lichaamsgewicht xylazine. Om nauwkeurig te zijn, wegen muizen voor de injectie van de verdovingsmiddelen.
- Injecteer het mengsel in de intraperitoneale holte en plaats de dieren terug in de kooi totdat de verdoving handelen en de dieren verdoofd. Ademhaling van muizen zal zeer langzaam en regelmatig te worden. Muizen volledig verdoofd zijn, zodat de intranasale inoculatie en inhalatie van de bacteriesuspensie niet zal leiden tot niezen en dus verlies van inoculum. Dit kan worden beoordeeld door te knijpen met de muis naar het einde van hun staart, een volledig verdoofd muis zal responsiviteit ontbreken.
- Voorzichtig halen een verdoofd muis en houd de muisknop tussen de vingers en duim met de neus rechtop (Figuur 1).
- Gebruik een pipet met lange smalle tips (Gel LoaderTips) en drop bioluminiscente pneumokokken in meerdere kleine druppeltjes op de neusgaten (10 ul / neusgat) van de muis 26-29. De muis zal onwillekeurig inhaleer de bacteriën. Houd de muis 1-2 min rechtop en kijk of de muis niest of houdt het inoculum.
- Infect 7-10 weken oude CD-1 muizen intranasaal een infectie dosis van 1 x 10 7 of 7,5 x 10 7 pneumokokken van stam D39 en TIGR4 respectievelijk de besmetting in real time. De grens voor het detectiesysteem zonder absorptie door het gastheerweefsel ongeveer 1 x 10 6 bioluminescente bacteriën.
- Infecteren muizen intraperitoneaal (IP) te beoordelen en te BioImage virulentie van pneumokokken in een sepsis muis infectie model. Gebruik 5 x 10 3 CFU in 100 pl van stam D39 en 1 x 10 4 van stam TIGR4. Muizen worden niet verdoofd bij gebruik van de IP-route.
- Inoculeren controle muizen met PBS.

Figuur 1. Intranasale infectie van CD-1 muizen met S. pneumoniae. Klik hier voor grotere afbeelding .
3. Visualiseren Pneumococcal Verspreiding in de Lung and Blood Met behulp van de Imaging System
Afbeelding verspreiding van pneumococcen na intranasale infectie van vrouwelijke outbred CD1 muizen in real-time toepassing van een in vivo systeem.
- Schakel het beeldvormingssysteem en start de beeldanalyse software op de set vooringestelde computer.
- Het weergavesysteem initialiseert automatisch de CCD camera thermo gekoeld tot 90 ° C alvorens actief.
- De instellingen en binning afhankelijk van het aantal muizen gemetengelijktijdig en op grond van de bioluminescente signaal. Het gezichtsveld (FOV) de bioluminescentie van de dieren te controleren is variabel en de vergroting varieert tussen een FOV van 22,5 cm tot vijf muizen te meten, en een FOV van 3,9 cm tot een muis of delen van het dier, zoals de borst te meten of het hoofd.
- Routinematig gebruik van een belichtingstijd van 1 min, een gemiddelde graad van binning, en een FOV van 22,5 cm (set D). Selecteer eerst de lichtgevende imaging-modus en vervolgens de beeldvorming parameters.
- De emissie van het signaal afhankelijk van de bacteriestam en de muis stam, en het pigment van de muis. Scheer de borst van muizen bij gebruik bijvoorbeeld C57BL / 6 muizen, die voordelig kan zijn wanneer beeldvorming van de ontwikkeling van pneumonie bij deze muizen.
- Afbeelding geïnfecteerde muizen op prechosen tijdsintervallen. Meet de bioluminescentie van muizen in de acute longontsteking model op tijdsintervallen van maximaal 8-12 uur. Monitor ook het welzijn van de geïnfecteerde muizen door observing hun uiterlijk, gedrag, en de bepaling van het verlies van gewicht.
- Verdoven muizen in de verdovende kamer van de anesthesie-systeem van de beeldvormende apparatuur voor de metingen in de kamer. Begin inhalatie van een mengsel van isofluraan en zuurstof en wacht tot de muizen langzaam en regelmatig te ademen.
- Plaats verdoofde dieren in de beeldvorming kamer van het systeem en houden muizen in rugligging. De CCD camera op de bovenzijde van de kamer zal dan het beeld murine luchtwegen.
- Plaats de dieren met hun neus in buizen om inademing van de verdovingsmiddelen toe te staan.
- Isofluraan binnenkomst in de beeldvorming kamer via een gas slang is toegestaan om anesthesie te handhaven.
- De CCD-camera op de top van de kamer te activeren en bioluminescentie optische beeldvorming, druk op "Acquire" starten in de imaging software. Onmiddellijk een foto van de muizen in de gesloten ruimte op het scherm. Na een minuut meting een overlay van de bioluminescentie gegevens en de foto wordt weergegeven.
- Stop verdoving na het beeld overlay verschijnt in het venster van de software en zet de muizen terug in hun kooien.
- Muizen worden gecontroleerd voor herstel.
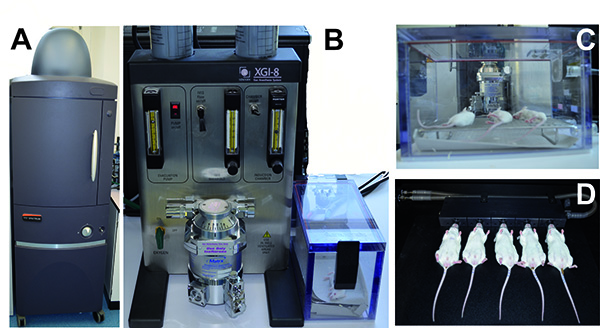
Figuur 2. Anesthesie en monitoring van muizen geïnfecteerd met bioluminescentie pneumokokken met behulp van de IVIS anesthesie en IVIS Spectrum systeem, respectievelijk. A) De IVIS Spectrum imaging systeem. B) De IVIS anesthesie systeem met de incubatiekamer. C) Muizen verdoofd in de incubatiekamer . D) Muizen gelegen binnen de IVIS Spectrum beeldvorming kamer met hun neus inademen van de verdoving._blank "> Klik hier voor grotere afbeelding.
4. Kwantificering en evaluatie van de bioluminescentie van muizen geïnfecteerd met Bioluminescent S. pneumoniae
- Bepaal de bioluminescentie intensiteiten van de muizen of van een geselecteerd deel van de muizen door het kwantificeren van de totale foton emissie (fotonen / seconde) met behulp van beeldanalyse software.
- Gebruik de waarden van de foton emissie die voorkomen in een Excel data fiche naar een grafiek bereiden. Aangezien de gegevens variatie vaak hoog in de gegroepeerde muizen, genereren een doos whisker grafiek om de verschillen in muizen geïnfecteerd met de verschillende pneumococcen stammen geven.
- Bieden de fotonen per muizen of als alternatief de resultaten als het gemiddelde van straling (fotonen / sec / cm 2 / sr) van een geselecteerd gebied.
- Meetgegevens van ROI (-regio of-interest) in foton modus kan kwantitatief worden vergeleken over verschillende in vivo imaging systemen met verschillende kwamra instellingen, sinds de metingen in eenheden van straling automatisch rekening met de camera-instellingen (bv. integratie tijd, binning, f / stop, en het gezichtsveld).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De overname en de opname van methionine is van centraal belang voor pneumokokken tot fitness in hun gastland niche 32,33 handhaven. De methionine ABC transporter lipoproteïne is gecodeerd in D39 door de spd _ 0151 gen (TIGR4: sp_0149) en noemde MetQ 32. Pneumokokken verder produceren methionine biosynthese enzymen (D39: Spd_0510 - Spd_0511; TIGR4 Sp_0585 - Sp_0586, MetE en metF). Het ontbreken van methionine in een chemisch gedefinieerd medium bevordert de groei van pneum...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Alle experimenten bij dieren hebben door de lokale overheden en ethische commissies worden goedgekeurd. In in vivo infectie experimenten de bacteriële verontreiniging in de verschillende gastheer niches van besmette dieren moet worden bepaald op verschillende tijdstippen na infectie. Onder deze experimentele omstandigheden de dieren worden opgeofferd voor de isolatie van de bacteriën uit het bloed, nasopharynx, bronchoalvelar lavage of organen zoals de longen, milt en hersenen. Om het aantal bacteriën per...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Onderzoek in het laboratorium werd ondersteund door subsidies van de Deutsche Forschungsgemeinschaft (DFG HA 3125/3-2, DFG HA 3125/4-2) en het ministerie van Onderwijs en Onderzoek (BMBF) Medische Infectie Genomics (FKZ 0315828A) naar SH.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Todd Hewitt bouillon | Carl Roth, Karlsruhe, Duitsland | X936.1 | |
| Gistextract | Carl Roth, Karlsruhe, Duitsland | 2363.2 | |
| Bloedagarplaten | Oxoid, Wesel, Duitsland | PB5039A | |
| Kanamycine | Carl Roth, Karlsruhe, Duitsland | T832.2 | |
| Erytromycine | Sigma-Aldrich, Taufkirchen, Duitsland | E6376 | |
| Foetaal runderserum (FRS) | PAA Laboratories, Coelbe, Duitsland | A11-151 | |
| CD-1 muizen, vrouwelijk | Charles River, Sulzfeld, Duitsland | CD1SIFE06W08W | vrouwelijke CD-1 muizen, zes tot acht weken oud |
| Ketamin 500 mg, Curamed injectieoplossing | Schwabe-Curamed, Karlsruhe, Duitsland | ||
| Rompun 2%, injectieoplossing | Bayer Animal Health, Monheim, Duitsland | ||
| BD Plastipak 1 ml spuiten | Becton Dickinson, Heidelberg, Duitsland | 300015 | steriele Luer-Lok spuiten met naald |
| Gel Loader Tips | PeqLab | 81-13790 | MµltiFlex Tips |
| Hyaluronidase | Sigma-Aldrich | H3884-100mg | Hyaluronidase Type IV-S van rundertest |
| Zuurstof | Air Liquide, Düsseldorf, Duitsland | M1001L50R2A001 | |
| Isofluraan | Baxter, Unterschleißheim, Duitsland | ||
| pGEM-T Easy | Promega, Mannheim, Duitsland | ||
| Oligonucleotiden | Eurofins MWG, Ebersberg, Duitsland | ||
| Qiaprep Spin Midiprep Kit | Qiagen, Hilden, Duitsland | 27104 | |
| PCR DNA zuiveringskit | Qiagen, Hilden, Duitsland | 28106 | |
| Living Image 4.1 software | Caliper Life Sciences/PerkinElmer, Rodgau, Duitsland | ||
| XGI-8 Gas Anesthesiesysteem | Caliper Life Sciences/PerkinElmer, Rodgau, Duitsland | ||
| IVIS Spectrum Beeldvormingssysteem | Caliper Life Sciences/PerkinElmer, Rodgau, Duitsland | ||
| Biofotometer | Eppendorf AG, Hamburg, Duitsland |
Referenties
- Niederman, M. S., et al. Guidelines for the management of adults with community-acquired pneumonia. Diagnosis, assessment of severity, antimicrobial therapy, and prevention. Am. J. Respir. Crit. Care Med. 163, 1730-1754 (2001).
- WHO, The global burden of disease: 2004 update. World Health Organization. , (2008).
- Bogaert, D., et al. Colonisation by Streptococcus pneumoniae and Staphylococcus aureus in healthy children. Lancet. 363, 1871-1872 (2004).
- Gamez, G., Hammerschmidt, S. Combat pneumococcal infections: adhesins as candidates for protein-based vaccine development. Curr. Drug Targets. 13, 323-337 (2012).
- Mook-Kanamori, B. B., Geldhoff, M., vander Poll, T., Dvan de Beek, D. Pathogenesis and pathophysiology of pneumococcal meningitis. Clin. Microbiol. Rev. 24, 557-591 (2011).
- Musher, D. M. How contagious are common respiratory tract infections. N. Engl. J. Med. 348, 1256-1266 (2003).
- Brueggemann, A. B., Pai, R., Crook, D. W., Beall, B. Vaccine escape recombinants emerge after pneumococcal vaccination in the United States. PLoS Pathog. 3, (2007).
- Munoz-Almagro, C., et al. Emergence of invasive pneumococcal disease caused by nonvaccine serotypes in the era of 7-valent conjugate vaccine. Clin. Infect. Dis. 46, 174-182 (2008).
- Whitney, C. G. Impact of conjugate pneumococcal vaccines. Pediatr. Infect. Dis. J. 24, 729-730 (2005).
- Whitney, C. G., et al. Decline in invasive pneumococcal disease after the introduction of protein-polysaccharide conjugate vaccine. N. Engl. J. Med. 348, 1737-1746 (2003).
- Lynch, J. P. 3rd, Zhanel, G. G. Streptococcus pneumoniae: epidemiology and risk factors, evolution of antimicrobial resistance, and impact of vaccines. Curr. Opin. Pulm. Med. 16, 217-225 (2010).
- Singleton, R. J., et al. Invasive pneumococcal disease caused by nonvaccine serotypes among Alaska native children with high levels of 7-valent pneumococcal conjugate vaccine coverage. JAMA. 297, 1784-1792 (2007).
- Dockrell, D. H., Whyte, M. K., Mitchell, T. J. Pneumococcal pneumonia: mechanisms of infection and resolution. Chest. 142, 482-491 (2012).
- Lieberman, T. D., et al. Parallel bacterial evolution within multiple patients identifies candidate pathogenicity genes. Nat. Genet. 43, 1275-1280 (2011).
- Yang, J., Tauschek, M., Robins-Browne, R. M. Control of bacterial virulence by AraC-like regulators that respond to chemical signals. Trends Microbiol. 19, 128-135 (2011).
- Young, B. C., et al. Evolutionary dynamics of Staphylococcus aureus during progression from carriage to disease. Proc. Natl. Acad. Sci. U.S.A. 109, 4550-4555 (2012).
- Kadioglu, A., Weiser, J. N., Paton, J. C., Andrew, P. W. The role of Streptococcus pneumoniae virulence factors in host respiratory colonization and disease. Nat. Rev. Microbiol. 6, 288-301 (2008).
- Voss, S., Gamez, G., Hammerschmidt, S. Impact of pneumococcal microbial surface components recognizing adhesive matrix molecules on colonization. Mol. Oral Microbiol. 27, 246-256 (2012).
- Koppe, U., Suttorp, N., Opitz, B. Recognition of Streptococcus pneumoniae by the innate immune system. Cell. Microbiol. 14, 460-466 (2012).
- Paterson, G. K., Mitchell, T. J. Innate immunity and the pneumococcus. Microbiology. 152, 285-293 (2006).
- Gerber, J., et al. A mouse model of Streptococcus pneumoniae meningitis mimicking several features of human disease. Acta Neuropathol. 101, 499-508 (2001).
- Gingles, N. A., et al. Role of genetic resistance in invasive pneumococcal infection: identification and study of susceptibility and resistance in inbred mouse strains. Infect. Immun. 69, 426-434 (2001).
- Holmes, A. R., et al. The pavA gene of Streptococcus pneumoniae encodes a fibronectin-binding protein that is essential for virulence. Mol. Microbiol. 41, 1395-1408 (2001).
- Koedel, U., Klein, M., Pfister, H. W. New understandings on the pathophysiology of bacterial meningitis. Curr. Opin. Infect. Dis. 23, 217-223 (2010).
- Medina, E. Murine model of pneumococcal pneumonia. Methods Mol. Biol. 602, 405-410 (2010).
- Hartel, T., et al. Impact of glutamine transporters on pneumococcal fitness under infection-related conditions. Infect. Immun. 79, 44-58 (2011).
- Hermans, P. W., et al. The streptococcal lipoprotein rotamase A (SlrA) is a functional peptidyl-prolyl isomerase involved in pneumococcal colonization. J. Biol. Chem. 281, 968-976 (2006).
- Jensch, I., et al. PavB is a surface-exposed adhesin of Streptococcus pneumoniae contributing to nasopharyngeal colonization and airways infections. Mol. Microbiol. 77, 22-43 (2010).
- Kadioglu, A., et al. Pneumococcal protein PavA is important for nasopharyngeal carriage and development of sepsis. Mol. Oral Microbiol. 25, 50-60 (2010).
- Orihuela, C. J., Gao, G., Francis, K. P., Yu, J., Tuomanen, E. I. Tissue-specific contributions of pneumococcal virulence factors to pathogenesis. J. Infect. Dis. 190, 1661-1669 (2004).
- Francis, K. P., et al. Visualizing pneumococcal infections in the lungs of live mice using bioluminescent Streptococcus pneumoniae transformed with a novel gram-positive lux transposon. Infect. Immun. 69, 3350-3358 (2001).
- Basavanna, S., et al. The effects of methionine acquisition and synthesis on Streptococcus pneumoniae growth and virulence. PLoS One. 8, (2013).
- Hartel, T., et al. Characterization of central carbon metabolism of Streptococcus pneumoniae by isotopologue profiling. J. Biol. Chem. 287, 4260-4274 (2012).
- Hammerschmidt, S., et al. The host immune regulator factor H interacts via two contact sites with the PspC protein of Streptococcus pneumoniae and mediates adhesion to host epithelial cells. J. Immunol. 178, 5848-5858 (2007).
- Voss, S., et al. The choline-binding protein PspC of Streptococcus pneumoniae interacts with the C-terminal heparin-binding domain of vitronectin. J. Biol. Chem. , (2013).
- Cartwright, K. Pneumococcal disease in western Europe: burden of disease, antibiotic resistance and management. Eur. J. Pediatr. 161, 188-195 (2002).
- vander Linden, M., Al-Lahham, A., Nicklas, W., Reinert, R. R. Molecular characterization of pneumococcal isolates from pets and laboratory animals. PLoS One. 4, (2009).
- Brehm,, et al. Sequence of the adenine methylase gene of the Streptococcus faecalis plasmid pAM beta 1. Nucleic Acids Res. 15, 3177 (1987).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
