We beschrijven hier een verbeterde werkwijze Luminescentie Resonance Energy Transfer (LRET) waarin we introduceren protease splitsingsplaats tussen de donor en acceptor fluorofoor sites. Deze modificatie kunnen wij specifieke LRET signalen die door membraaneiwitten plaats, waardoor de studie van membraaneiwitten zonder eiwitzuivering verkrijgen.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Luminescentie Resonance Energy Transfer om te studeren vormveranderingen in membraaneiwitten Uitgedrukt in zoogdiercellen
In dit artikel
Samenvatting
Samenvatting
Luminescentie Resonance Energy Transfer, of LRET, is een krachtige techniek die wordt gebruikt om afstanden tussen twee locaties in eiwitten binnen de afstand bereik van 10-100 een maatregel. Door het meten van de afstanden onder verschillende omstandigheden geligeerd kunnen conformatieveranderingen van het eiwit gemakkelijk worden bepaald. Met LRET, een lanthanide, meestal chelaat terbium wordt gebruikt als de donor fluorofoor, bieden voordelen zoals een langere only donor emissie levensduur, de flexibiliteit om meerdere acceptor fluoroforen gebruikt, en de mogelijkheid voor overgevoelige acceptor emissie detecteren als een makkelijke manier om energieoverdracht zonder het risico ook detecteren alleen donor-signaal te meten. Hier beschrijven we een werkwijze te gebruiken op LRET membraaneiwitten expressie gebracht en getest op het oppervlak van intacte zoogdiercellen. We introduceren een proteasesplitsingsplaats tussen de LRET fluorofoor paar. Na het verkrijgen van het oorspronkelijke signaal LRET splitsing op die plaats verwijdert het specifieke LRET signaal van het eiwit vanbelang waardoor we kwantitatief aftrekken van de achtergrond signaal dat overblijft na splitsing. Deze methode zorgt voor meer fysiologisch relevante metingen kunnen worden uitgevoerd zonder de noodzaak voor zuivering van eiwitten.
Inleiding
Luminescentie Resonance Energy Transfer (LRET) is een afgeleide van de bekende Fluorescence Resonance Energy Transfer (FRET) techniek 1. Vergelijkbaar met FRET kan LRET worden gebruikt om afstanden en veranderingen afstand tussen donor en acceptor fluoroforen aan specifieke plaatsen op het eiwit van belang in het traject van 10-100 A 1-3 meten. De principes van LRET zijn ook gelijkwaardig aan FRET doordat resonantie energieoverdracht plaatsvindt tussen twee proximale fluoroforen wanneer het emissiespectrum van de donor fluorofoor overlapt met het absorptiespectrum van de acceptor fluorofoor. De efficiëntie van deze overdracht is gerelateerd aan de afstand tussen de twee fluoroforen door de volgende vergelijking:
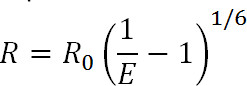 Eq. 1
waarbij R de afstand tussen de twee fluoroforen, E het rendement van engie-overdracht, en R 0, hieronder besproken, is de Förster straal voor de fluorofoor paar, dat wil zeggen de afstand waarop de efficiëntie van de overdracht is halfmaximale. Uit deze vergelijking kan men zien dat de efficiëntie is gerelateerd aan de grootte van de afstand verhoogd tot de inverse zesde macht 1. Hierdoor omgekeerde zesde macht afhankelijkheid waardoor FRET en LRET metingen uiterst gevoelig, zelfs voor kleine veranderingen afstand wanneer bij R 0 van het FRET paar. Het vermogen specifiek label gewenste plaatsen op eiwitten of andere macromoleculen kan men profiteren van deze gevoeligheid voor conformationele veranderingen volgen.
Vergeleken met FRET, die gebruikelijk organische kleurstofmoleculen gebruikt, LRET biedt extra voordelen. In LRET, in plaats van een organische kleurstof als de donor fluorofoor, een lanthanide serie kation typisch Tb 3 + of Eu3 + wordt gebruikt 1,4-6. Fluoroforen dat u vallennder categorie, bijvoorbeeld terbium chelaat, zijn ook zeer veelzijdig omdat ze kunnen worden gebruikt met een uitgebreide lijst van acceptor fluoroforen. Deze flexibiliteit is mogelijk omdat de emissiespectra van chelaten lanthaniden meerdere scherpe emissiepieken bevatten, waardoor een enkele soort donor fluorofoor te gebruiken met een van een groot aantal acceptor fluoroforen. Zo kan gesensibiliseerd acceptor emissie worden waargenomen, zonder enige vrees voor besmetting door-bloeding van donor emissie 5. De experimentator selecteert de specifieke acceptor gebaseerd op de verwachte afstand tussen de twee fluoroforen (Figuur 1 en Tabel 1). In deze lanthanide chelaat fluoroforen, is het metaalion gechelateerd door een molecuul dat een antenne groep die de normaal slecht absorberende lanthanide sensibiliseert zo goed excitatie een bioreactieve functionele groep om het ion tether een specifieke functionele groep op de 1 macromolecuul bevat, 5,6. Once opgewonden, lanthaniden ontspannen naar de grondtoestand door het vrijgeven van fotonen met een vervalsnelheid in milliseconden. Omdat het verval is noch een singlet-to-singlet ontspanning noch een triplet-to-singlet ontspanning, de emissie van fotonen kunnen niet goed worden fluorescentie of fosforescentie genoemd, maar is meer goed genoemd luminescentie 1. De lange verval van lanthanide luminescentie helpt enorm in leven metingen. Lifetime metingen kunnen vervolgens worden gebruikt om de efficiëntie via de volgende relatie te bepalen:
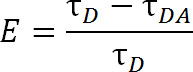 Eq. 2
waar, E is de efficiëntie van de overdracht, τ D is de levensduur van de donor (gecheleerde lanthanide) wanneer die niet deelnemen aan de energie-overdracht, en τ DA is de levensduur van de donor bij deelname aan de energie-overdracht met de acceptor. Met LRET, τ DA kan aldus worden gemeten als de levensduur van de gevoelige acceptor emissie omdat de levensduur terbium is zo veel groter dan een organische acceptorfluorofoor. De acceptor stoot met dezelfde levensduur als de aanzetten tot excitatie (donor lanthanide), en de eventuele bijdrage aan de levensduur van de acceptant eigen intrinsieke fluorescentie levensduur is relatief verwaarloosbaar. Door meting van de gesensibiliseerde emissie plaats donor emissie ook overbodig etikettering zorgen precies een 1: 1 verhouding van donor acceptor. Eiwitten kunnen in plaats daarvan gelijktijdig worden gemerkt met zowel acceptor en donor fluoroforen. Een heterogeen label bevolking zal leiden, maar dubbel-donor gelabelde eiwitten zal niet uitzenden in de acceptor golflengte en double-acceptor gelabelde eiwitten zullen niet enthousiast zijn. Bovendien dient de afstand tussen fluoroforen hetzelfde zijn, ongeacht welke cysteïne ter een gegeven fluorofoor hecht aan, vooral bij gebruik van de isotrope lanthaniden als donor, zodat de need naar een bepaalde site om ofwel de donor of acceptor is onnodig te specificeren. Intensiteit kan worden beïnvloed met een heterogene populatie, maar moet nog steeds ruim voldoende detecteerbaar zijn.
Bij het plannen experimenten, moet de keuze van fluoroforen worden gedicteerd door de R 0 waarde van het paar en het verwachte bereik afstand wordt gemeten. De R waarde 0 wordt gedefinieerd door de volgende vergelijking:
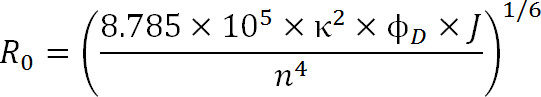 Eq. 3
wanneer R 0 het Förster radius in Angstrom, κ 2 de oriëntatie factor tussen de twee kleurstoffen (gewoonlijk aangenomen dat 2/3), φ D is de quantumopbrengst van de donor, J de spectrale overlap integraal tussen de donor emissiespectrum en de acceptant absorptie spectrum in M - 1cm -1 nm 4, en n de brekingsindex van het medium 1.
Ons laboratorium heeft een wijziging van de gebruikelijke techniek LRET toegevoegd door invoeging van een protease herkenningsplaats tussen de donor en acceptor label plaatsen op het eiwit wordt gesondeerd. Deze modificatie maakt onderzoek niet gezuiverde systemen als geheel zoogdiercellen 7. Deze techniek is bijzonder nuttig bij het gebruik cysteïnen als gebieden te kenmerken, aangezien het proces van labeling met maleïmide geconjugeerd kleurstoffen die binden aan cysteine sulfhydryl groepen, andere eiwitten op de cellen die moeten cysteïnen zijn ook gelabeld. Echter, door op protease splitsingsplaatsen op het eiwit van interesse en meten levensduur voor en na splitsing, de experimentator kan kwantitatief aftrekken van de achtergrond signaal nadat protease klieving van het grove signaal. Dit aftrekken isoleert het signaal gevolg van het eiwit van belang (Figure 2). Met de hierboven beschreven modificatie kan LRET worden om veranderingen afstand tussen de terbium chelaat donor en acceptor probe een eiwit meten toe te zien conformationele veranderingen in het eiwit dichtbij fysiologische toestand zonder de noodzaak voor zuivering.

Figuur 1.Het absorptie en emissie spectra van gecheleerd terbium in zwart, en een vertegenwoordiger acceptor, Alexa 488, in rood. Merk de meervoudige emissiepieken en scherpe, smalle emissiebereik voor elke piek van terbium chelaat. Dit patroon maakt terbium te gebruiken met verschillende acceptor fluoroforen en vergemakkelijkt de meting van gesensibiliseerde emissie binnen deze trajecten waar terbium vertoont geen emissie. Terbium's emissie piek bij 486 nm overlapt heel goed met de een bsorption piek van Alexa 488, waardoor resonantie energieoverdracht plaatsvindt tussen de twee fluoroforen. Een golflengte van 515 nm is een uitstekende keuze om gesensibiliseerd uitstoot te detecteren voor dit pair zoals het is in het dal tussen de terbium uitstoot pieken, en heel dicht Alexa 488's emissie piek van 520 nm. Let op dat in de buurt van de acceptor piek, hoewel wenselijk, niet noodzakelijk 565 nm nog kan Alexa 488 emissie detecteren, zonder ook het detecteren terbium emissie.
| Acceptorfluorofoor | R 0 (a) | Emissie golflengte (nm) |
| Atto 465 | 36 | |
| Fluoresceïne | 45 | 515 |
| Alexa 488 | 46 | 515 |
| Alexa 680 | 52 | 700 |
| Alexa 594 | 53 | 630 |
| Alexa 555 | 65 | 565 |
| Cy3 | 65 | 575 |
Tabel 1: Een overzicht van de meest gebruikte acceptorfluoroforen voor LRET gebruik terbium chelaat als de donor 11. De R 0-waarden werden gemeten wanneer de donor en acceptor werd aan de oplosbare agonist bindend domein van AMPA receptoren. Het is ideaal om de R 0 waarde opnieuw te meten voor elke nieuwe systeem wordt bestudeerd.

Figuur 2 een overzicht van de LRET methode gepresenteerd. (A) De AMPA receptor is een membraaneiwit dat conformationele veranderingen na ligandbinding ondergaat. De clamshell-vormige ligand-binding domein is hier rood omcirkeld. (B) Het ligandbindende gebied van AMPA wanneer niet gebonden aan eiwitten bekend in een open conformatie (links). Wanneer gebonden aan glutamaat ligand, het eiwit sluit rond de ligand (rechts). Door fluoroforen bewijskracht te plaatsen op het LBD, kan de aard van deze conformationele verandering gezien als de afstand tussen de fluoroforen veranderingen, die vervolgens invloed fluorescentie levensduur. (C) Etiketten gehele cellen, labeling van zowel het eiwit van belang en achtergrond membraaneiwitten kan (links) optreden. Na protease splitsing, zal LRET signaal van het eiwit van interesse verdwijnen door het vrijkomen van een oplosbaar fragment, waardoor achtergrondsignaal intact (rechts). Dit achtergrondsignaal kan vervolgens worden afgetrokken van het grove signaal.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1 Maak de construct, die het eiwit van belang
Kloon het gen tot expressie van het eiwit van belang in een geschikte vector. Gebruik vectoren zoals pcDNA series of pRK5 zoals ze zijn geschikt voor expressie in zoogdierlijke systemen zoals HEK293 en CHO-cellen.
2 Selecteer de sites op het eiwit te worden gelabeld met de Fluoroforen
- Kies labeling sites die zij mogelijke conformationele veranderingen in het eiwit weerspiegelen. Indien mogelijk, gebruik maken van een kristalstructuur van het eiwit of van een homologe eiwit om te helpen deze bepaling. Als er geen kristalstructuur, gebruik online software om de mogelijke structuur van het eiwit te voorspellen en derhalve ontvang inzicht in geschikte locaties.
- Kies residuen dat de zijketens van de geselecteerde residuen blootgestelde oppervlak en toegankelijk voor de fluoroforen zodat het eiwit worden gemerkt.
- Kies residuen diezijn niet kritisch voor eiwitfunctie, bijvoorbeeld gebieden die niet betrokken zijn bij ligand binding.
- Bij de invoering van cysteïne mutatie, de voorkeur geven aan sites die vergelijkbaar zijn, bijvoorbeeld serine, dat zou leiden tot minimale verstoring van de eiwitstructuur.
- Na het kiezen van het etiket plaatsen maken de mutaties te zorgen dat het eiwit geeft enige LRET uit deze bestemd sites. Gebruik standaard plaatsgerichte mutagenese protocollen weg muteren niet-disulfide-gebonden cysteïnen die zouden kunnen binden aan fluorescentielabels-maleïmide geconjugeerd. Niet weg muteren disulfide-gebonden cysteïnen en begraven vrije cysteïnen omdat zij niet reageren met fluorescente kleurstoffen in de gevouwen vorm van het eiwit.
- Breng cysteïneresten in de gewenste plaatsen door puntmutaties middels standaard plaatsgerichte mutagenese protocollen.
- Neem een protease splitsingsplaats die specifiek kunnen splitsen van een van de cysteïnen van het eiwit. Indien deeiwitsequentie toelaat, voeren de site van conservatief muteren van het eiwit aan een trombine hebben (herkenningssequentie LVPRGS) of Factor Xa (herkenningssequentie IDGR of IEGR) sequentie nabij het opgenomen cysteïne en toegankelijk voor splitsing protease; anders de tetra- of hexa-peptide sequentie kan worden ingebracht als geheel. Kies de locatie zodanig dat bij splitsing een van de ingevoerde cysteïnen dissocieert van de rest van het proteïne in sommige gevallen, kan twee splitsingsplaatsen flankeren gemuteerd cysteïne vereist.
3 Test de Expression en de functionaliteit van het eiwit
- Voer een western blot voor expressie van het gemuteerde eiwit te bevestigen.
- Voer een functionele test van het eiwit dat de mutaties de eiwitfunctie veranderd slechts minimaal, of helemaal te vermijden bestuderen conformatieveranderingen van een disfunctioneel proteïne.
OPMERKING: Aangezien alle eiwitten hebben verschillende functies, is er geen enkele f unctional assay die specifiek is voor LRET; Sommige voorbeelden van functionele assays omvatten assays voor enzymactiviteit enzymen, ligand-bindingstesten voor Receptoren en elektrofysiologische studies ionkanalen.
4 Selecteer de Fluoroforen worden gebruikt
Select fluoroforen gebaseerd op de verwachte bereik afstand wordt gemeten, zodat het traject tussen 0.5-1x de R 0 van de fluorofoor paar.
Opmerking: Dit maakt een eenvoudiger aftrekken van de achtergrond, dat typisch veel langere levensduur. Bijvoorbeeld, als het verwachte bereik afstand wordt gemeten ongeveer 35 Å, een geschikte fluorofoor paar te gebruiken zou terbium chelaat als donor en Alexa 594 als acceptor, omdat de R 0 voor dit pair 53 Å (tabel 1).
5 Druk de Protein door transiënte transfectie van de benodigde hoeveelheid van zoogdiercellen
ntent "> tijdelijk transfecteren het eiwit van belang in het gekozen zoogdiercellen met een van de gemeenschappelijke transfectie reagens typisch gebruik van vier 10-cm schalen per LRET experiment HEK en CHO cellijnen,. maar Dit bedrag kan variëren naargelang eiwitexpressie , stabiliteit, enzovoort. Laat de cellen om het eiwit tot expressie 36-48 uur voor de oogst.6 Label de Eiwitten
- Maak cellen van de kweekschaal. Trek HEK cellen door simpelweg pipetteren buffer tegen de bodem van de schaal. Los CHO-cellen met een cel schraper, het wassen van het materiaal af met extracellulaire buffer.
- Verzamel de cellen door centrifugatie bij 1100 g gedurende 3 minuten. Gebruik dezelfde centrifuge instellingen verzamelen cellen na labeling, en na de daaropvolgende wasbehandelingen.
- Suspendeer cellen in 3 ml extracellulair buffer, voeg donor en acceptor fluoroforen in equimolaire hoeveelheden tot een eindconcentratie van 100-300 nM. Incubeer op een rotator fof 1 uur bij kamertemperatuur.
- Was deze gelabelde cellen 3-4x met extracellulaire buffer om ongebonden fluoroforen verwijderen en schorsen deze cellen in extracellulaire buffer (meestal 2 ml) voor LRET meting.
- Als controle label een aparte reeks cellen met slechts donorfluorofoor (terbium chelaat) zonder toevoeging van enige acceptor fluorofoor.
Opmerking gegevens uit deze experimenten alleen donor moet analye. Deze experimenten kunnen worden uitgevoerd op dezelfde of verschillende dagen. - Ook voeren validatie, ditmaal met gemerkte mutant eiwit, zoals het etiket werkwijze kan ook interfereren met de functie afhankelijk van de plaats die voor labeling.
Opmerking: Deze experimenten kunnen worden uitgevoerd op dezelfde of verschillende dagen.
7 Stel de LRET Experiment
- Plaats de cellen geresuspendeerd in een kwarts cuvet met een minimum volume van 1 ml.
- Zet de computer en het instrument en stel de parameters van de DAT-een acquisitie programma dienovereenkomstig.
- Stel de golflengte van de absorptie bereik van de donorfluorofoor (330-340 nm goed werkt voor terbium chelaat).
- Stel de emissie golflengte adequaat, in gedachten houden dat de acceptor emissie varieert op basis van de acceptor gebruikt. Belangrijker is, selecteert u een detectiegolflengte dat alleen de acceptor emissie meet en bevat geen door-bloeding van de emissie van de donor. Gebruik bijvoorbeeld een golflengte van 565 nm voor Alexa 555 als acceptor Tabel 1. Alleen voor donor-metingen, waarbij eiwit werd aangemerkt met alleen donor, maar zonder acceptor, gebruik dan een golflengte van 545 nm voor het meten van terbium chelaat emissie.
- Stel de lengte van de emissie-detectie om minstens drie keer de verwachte LRET leven zijn om ervoor te zorgen dat een lange levensduur component niet gemist zal worden.
- Voer de scan. Laat minstens drie scans van 99 sweeps om de consistentie van de resultaten te garanderen. Spaar the resultaten als een tekstbestand (* txt).
- Om conformatieveranderingen van een eiwit met betrekking tot verschillende omstandigheden (zoals de toevoeging van een ligand) te meten, veranderen deze omstandigheden en steeds ten minste drie scans van 99 zwaaien per uitvoeren op hetzelfde monster onder deze nieuwe voorwaarde. Bij het bestuderen van de effecten van glutamaat op de conformatie van glutamaatreceptoren, bijvoorbeeld glutamaat voeg 1 mM tot hetzelfde monster gescand in stap 7.3, en scan daarna.
- Voeg maximaal vijf eenheden van de geschikte protease en neem scans voortdurend tot splitsing is voltooid en er geen verdere verandering is te zien in het leven van drie opeenvolgende scans. Meestal splitsing voltooid in twee tot 3 uur. Als een factor Xa splitsingsplaats wordt gebruikt voor protease splitsing bijvoorbeeld voeg 3 ui van factor Xa aan het monster, en scan elke 30 min gedurende 3 uur.
8 Analyseren van de gegevens die zijn verkregen
- Open de data-analyse software.
- Laad de fluorescentielevensduurgegevens met behulp van Import ASCII om de tekstbestanden te openen. Laad alle replicaten en de uiteindelijke achtergrond metingen in een bestand.
- Middel de gegevens van alle scans voor elke experimentele conditie het uiteindelijke gegevens krijgen. Om dit te doen, selecteert u de kolommen die de individuele proeven bevatten, dan onder het menu Data in de menubalk, klik op Statistieken over Rijen naar de gemiddelde fluorescentie-intensiteit van de proeven, evenals de standaarddeviatie en standaardfout weer.
- Zet de gemiddelde waarden in een lijngrafiek met fluorescentie-intensiteit op de Y-as en de levensduur in microseconden op de X-as naar een curve die de levensduur van de gesensibiliseerde emissie van de acceptor voorstelt creëren. Wijzig de Y-as van de grafiek een logaritmische schaal, om een betere visualisatie van de data.
- Herhaal stap 8.3 op de achtergrond meetgegevens, het gemiddelde van de laatste scans die overlap vertonen wijst op een volledige splitsing.
- Geef het gemiddelde achtergrond gegevens over dehetzelfde perceel dat de gemiddelde ruwe data bevat. Om dit te doen, opent u het dialoogvenster Laagbeheer vinden onder het menu Plot. Dan, de overdracht van de gegevens die de achtergrond betekenen in de lijst van Layer Contents.
- Lijn de gemiddelde achtergrond gegevens naar de gemiddelde ruwe data. Om dit te doen, gebruik dan de Simple Math functie onder het menu Math te vermenigvuldigen of delen van de achtergrond gegevens zonodig om de staart van de achtergrond overlapt met de staart van de ruwe data.
Opmerking: In dit staart, de levensduur van het eiwit van belang moeten al helemaal vervallen veranderen; wat uitgelijnd eenvoudig de achtergrond signaal voor en na protease splitsing. - Trek de lijn achtergrond signaal van de eerste ruwe LRET signaal, opnieuw met behulp van de Simple Math functie.
- Monteer de data van een exponentiële verval (enkelvoudige of meervoudige exponenten, afhankelijk van de sites en proefopzet).
- Stel de start grens voor de montage te beginnen na het eindevan de laserpuls. Gebruik dezelfde startpunt voor alle volgende curve fittingen.
- In het selecteren Fitting Function dialoogvenster kiest exponentiële verval teneinde de levensduur past de volgende vergelijking voor een exponentieel verval:
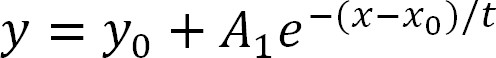 Eq. 4
waar y staat voor de fluorescentie-intensiteit, y 0 de achtergrondintensiteit door lawaai van het systeem A1 is de signaalintensiteit, t is de fluorescentie levensduur, x is de tijd en x 0 is de tijdverschuiving. - Fix x 0-0, start de montage-functie, en past de gegevens.
OPMERKING: Als het experiment is ontworpen om signalen hebben slechts van een paar van de sites, moet de resulterende data past gemakkelijk door een enkele exponentiële verval 8 zijn. Het residu van de pasvorm is een goede methode om de goedheid van de fit te bepalen en of er extra verval levens zijn required.
- Met de verkregen gegevens levens om de afstand tussen fluoroforen met de Förster vergelijking (een herschikking van de vergelijkingen 1 en 2 hierboven) te berekenen:
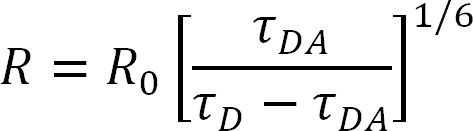 Eq. 5
NB: alle variabelen zijn zoals hierboven vermeld met τ DA te zijn gemeten als de acceptor gesensibiliseerde emissie levensduur. Verdere details en voorbeelden op metingen van R 0 en R kan elders 7,9,10 te vinden. - Herhaal het experiment en gegevensanalyse minstens drie keer om reproduceerbaarheid te waarborgen. Inconsistentie tussen individuele herhalingen van dezelfde meting vraagtekens bij de validiteit van de gegevens; Gebruik extra controle-experimenten of herhalingen. Bereken fouten in de meting met behulp van de gratis Gustaaf Foutenanalyse rekenmachine (ontwikkeld door Dr Thomas Huber) of een soortgelijk systeem dat de fout zich voortplant in depast van de levensduur.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Een succesvolle LRET meting met een lanthanide donor moet een donor hebben slechts leven in de milliseconde tijd bereik. De levensduur van de gesensibiliseerde emissie LRET voor het eiwit gemerkt met zowel de donor en de acceptor is bijzonder korter, met een levensduur in het bereik microseconde na achtergrond aftrek Figuur 3. Protease splitsing resulteert in een toename van de levensduur die stabiel moeten worden in de tijd ( dat wil zeggen niet meer veranderen), waaruit blijkt dat de protease...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
LRET is een techniek waarmee wetenschappers om afstanden te meten tussen domeinen in een enkel eiwit en tussen subeenheden in een multimeer eiwit. Als zodanig is LRET goed geschikt voor onderzoek van de conformationele veranderingen en dynamiek van eiwitten of andere macromoleculen. Het bovenstaande protocol moet het goed uitgerust lab veranderd kunnen testen hun hypotheses; Er zijn echter veel voorkomende foutenbronnen dat de nieuwe onderzoeker kan teisteren. Indien weinig of geen LRET signaal wordt gezien, controleer ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk werd ondersteund door de National Institutes of Health Grant GM094246, de American Heart Association Grant 11GRNT7890004, en de National Science Foundation Grant MCB-1110501.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| LanthaScreen Thiol Reactive Tb Chelate | Life Technologies | PV3579 | |
| Acceptor fluorofoor-Fluoresceïne-5-Maleïmide | Life Technologies | F-150 | Keuze van acceptor hangt af van het specifieke experiment |
| Acceptor fluorofoor-Alexa Fluor 488 C5 Maleïmide | Life Technologies | A-10254 | Keuze van acceptor hangt af van het specifieke experiment |
| Acceptor fluorofoor-Alexa Fluor 555 C2 Maleïmide | Life Technologies | A-20346 | Keuze van acceptor hangt af van het specifieke experiment |
| Acceptor fluorofoor-Alexa Fluor 594 C5 Maleïmide | Life Technologies | A-10256 | Keuze van acceptor hangt af van het specifieke experiment |
| Acceptor fluorofoor-Alexa Fluor 680 C2 Maleïmide | Life Technologies | A-20344 | Keuze van acceptor hangt af van het specifieke experiment |
| QuantaMaster 3-SS | Photon Technology International | Spectrofluorometer moet pulserende excitatie hebben met de mogelijkheid om levenstijden in het millisecondenbereik te meten | |
| FluoreScan 2.0 | Photon Technology International | Gegevensverzameling software gebruikt in manuscript. Software geleverd met fluorescentie-instrument | |
| Origin 8.6 | OriginLab | Origin is de gegevensanalysesoftware die in het protocol wordt gebruikt. Andere vergelijkbare gegevensanalysesoftware kan worden gebruikt | |
| Quartz cuvet | Starna Cells, Inc | 3-Q-10 | |
| Roerbar | Bel-Art Products | F37119-0007 | Gebruikt in cuvet om cellen in suspensie te houden. Kan elke roerbar gebruiken die in de cuvet past |
Referenties
- Selvin, P. R. Principles and biophysical applications of lanthanide-based probes. Annual Review of Biophysics and Biomolecular Structure. 31, 275-302 (2002).
- Stryer, L., Haugland, R. P. Energy transfer: a spectroscopic ruler. Proceedings of the National Academy of Sciences of the United States of America. 58, 719-726 (1967).
- Stryer, L. Fluorescence energy transfer as a spectroscopic ruler. Annual Review of Biochemistry. 47, 819-846 (1978).
- Selvin, P. R., Hearst, J. E. Luminescence energy transfer using a terbium chelate: improvements on fluorescence energy transfer. Proceedings of the National Academy of Sciences of the United States of America. 91, 10024-10028 (1994).
- Chen, J., Selvin, P. R. Thiol-reactive luminescent chelates of terbium and europium. Bioconjugate Chemistry. 10, 311-315 (1999).
- Ge, P., Selvin, P. R. Thiol-reactive luminescent lanthanide chelates: part 2. Bioconjugate Chemistry. 14, 870-876 (2003).
- Gonzalez, J., Rambhadran, A., Du, M., Jayaraman, V. LRET investigations of conformational changes in the ligand binding domain of a functional AMPA receptor. Biochemistry. 47, 10027-10032 (2008).
- Ramaswamy, S. S., Maclean, D. M., Gorfe, A. A., Jayaraman, V. Proton mediated conformational changes in an Acid Sensing Ion Channel. J. Bio. Chem. 288, (2013).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Conformational changes at the agonist binding domain of the N-methyl-D-aspartic acid receptor. The Journal of Biological Chemistry. 286, 16953-16957 (2011).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Subunit arrangement in N-methyl-D-aspartate (NMDA) receptors. The Journal of Biological Chemistry. 285, 15296-15301 (2010).
- Kokko, T., Kokko, L., Soukka, T. Terbium(III) chelate as an efficient donor for multiple-wavelength fluorescent acceptors. Journal of Fluorescence. 19, 159-164 (2009).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
