Het opnemen van Ca2+ stromen op het presynaptische afgiftevlak van het membraan is essentieel voor een nauwkeurig begrip van Ca2+-intrede en neurotransmitterafgifte. We presenteren een acute dissociatie van het rugsmerg van de kaakhaai die functionele geïsoleerde reticulospinale axonen oplevert, waardoor opname direct vanaf het afgiftevlak van het membraan van individuele presynaptische terminalen mogelijk is.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Acute Dissociatie van Lamprey Reticulospinal Axonen naar Opnemen inschakelen van de Release Gezicht Membraan van individuele functionele Presynaptische Terminals
In dit artikel
Samenvatting
Samenvatting
Synaptische transmissie is een zeer snel proces. Actiepotentiaal gedreven instroom van Ca 2 + in de presynaptische terminal, door middel van spanningsafhankelijke calciumkanalen (VGCCs) gelegen in de release gezicht membraan, is de trigger voor de vesikel fusie en de afgifte van neurotransmitters. Cruciaal voor de snelheid van de synaptische transmissie is de ruimtelijke en temporele synchronie tussen de aankomst van de actiepotentiaal, VGCCs en de neurotransmitter vrijkomen machines. De mogelijkheid om direct op te nemen Ca 2 + stromen vanaf de release gezicht membraan van individuele presynaptische terminals is absoluut noodzakelijk voor een juist begrip van de relatie tussen de presynaptische Ca 2 + en neurotransmitters. Toegang tot de presynaptische vrijlating gezicht membraan voor elektrofysiologische opname is niet beschikbaar in de meeste bereidingen en presynaptische Ca 2 + bericht is gekenmerkt met behulp van beeldvormende technieken en macroscopische huidige meteNTS - technieken die niet beschikken over voldoende tijdsresolutie om Ca 2 + toegang te visualiseren. De karakterisering van VGCCs direct bij enkele presynaptische terminals niet mogelijk was in het centrum van synapsen en is tot nu toe met succes alleen bereikt in de kelk-achtige synaps van het kuiken ciliaire ganglion en in kelken rat. We hebben met succes aangepakt dit probleem in de gigantische reticulospinal synaps van de lamprei ruggenmerg door het ontwikkelen van een acuut gedissocieerde voorbereiding van het ruggenmerg dat geïsoleerde reticulospinal axonen levert met functionele presynaptische terminals verstoken van postsynaptische structuren. We kunnen fluorescent labelen en identificeren van individuele presynaptische terminals en richten ze voor opname. Met behulp van deze voorbereiding, hebben we direct gekenmerkt VGCCs bij de release gezicht van individuele presynaptische terminals met behulp van immunohistochemie en elektrofysiologie benaderingen. Ca 2 + stromingen zijn rechtstreeks opgenomen in de release gezicht membraan of individuele presynaptische terminals, de eerste van die opname uit te voeren bij de centrale synapsen uitgevoerd.
Inleiding
Synaptische transmissie is een zeer snelle en nauwkeurige werkwijze. Actiepotentiaal invasie van de presynaptische terminal leidt tot het openen van VGCCs gelegen in de release gezicht membraan, de daaruit voortvloeiende toename van de presynaptische Ca 2 + als de trigger voor de vesikel fusie en de afgifte van neurotransmitters 1. Al deze stappen uitgevoerd binnen honderden microseconden 2, en dus vereisen strakke ruimtelijke koppeling van VGCCs aan de vesikel fusie machine 3. Presynaptische Ca 2 + fluxen zijn voornamelijk gekenmerkt door beeldvorming benaderingen met behulp van Ca 2 + gevoelige kleurstoffen 4. Integratie Ca2 + buffers dat Ca2 + moduleren in presynaptische neuronen is gebruikt om het verband tussen presynaptische calcium en neurotransmissie 3 indirect karakteriseren. Bovendien moduleren presynaptische vrije Ca2 + concentratie uncaging Ca2 + 5 of opname macroscopic Ca 2 + stromingen zijn gebruikt in combinatie met de maatregelen van de vesikel fusie en / of vrijgave; zoals capaciteit metingen 6 of postsynaptische reacties 2 op dezelfde vraag aan te pakken. Echter, het karakteriseren van Ca 2 + stromen direct bij de release gezicht, de gespecialiseerde afdeling van de presynaptische membraan waar membraandepolarisatie wordt vertaald in Ca 2 + stromen triggering synaptische vesikel fusie en de neurotransmitter release, is een integraal onderdeel van het verkrijgen van een nauwkeurige meting van de Ca 2 + vereiste voor synaptische vesikel fusie. Bovendien is de mogelijkheid om direct te karakteriseren Ca2 + stromingen individuele presynaptische terminals, in combinatie met nauwkeurige simultaanmeting van vesikel fusie en vrijheid maakt een nauwkeurige opheldering van de timing tussen het tijdsverloop van de actiepotentiaal, presynaptische Ca2 + stroom, vesikel fusie en de release. De toegang tot de release gezicht membraanis niet beschikbaar in de meeste presynaptische terminals worden gesloten en aanhechting van de postsynaptische dendrieten. Deze ontoegankelijkheid is een belangrijk obstakel in de karakterisering van VGCCs omdat het voorkomt directe metingen van stroom bij individuele presynaptische terminals. Directe karakterisering van presynaptische Ca 2 + stromen op individueel presynaptische terminals is tot nu toe niet mogelijk geweest in het centrum van synapsen en is alleen op twee calyceal soort presynaptische terminals; kelk-achtige synaps van het kuiken ciliaire ganglion 7-10 en rat kelken 11,12. In alle andere presynaptische terminals waaronder de reus reticulospinal synaps in de lamprei ruggenmerg 13, heeft het gebrek aan toegang tot de presynaptische vrijlating gezicht membraan het gebruik van indirecte benaderingen noodzakelijk zoals Ca 2 + imaging aan presynaptische Ca 2 + fluxen te bestuderen.

Figuur 1 Lamprey gigantische reticulospinal synaps. (A) Dwarsdoorsnede van lamprei ruggenmerg aangeeft dorso-ventrale richting. Reticulospinal axonen zijn gemarkeerd met groene asterix. (B) 3-D reconstructie van de reticulospinal synaps in de lamprei ruggenmerg tonen presynaptische reticulospinal axon waardoor talrijke en passant contacten (gemarkeerd met groene pijlen) op de postsynaptische neuron 13. Presynaptische terminals zijn gelabeld met Alexa Fluor 488 hydrazide geconjugeerd phalloidin (groen), terwijl de postsynaptische neuron is gevuld met Alexa Fluor 568 hydrazide (rood).
Lamprei gigantische reticulospinal axonen, gelegen in het ventrale gebied van het ruggenmerg parallel aan de rostrale-caudale as Figuur 1a, vorm meerdere en passant synaptische contacten op neuronen van despinale ventrale hoorn 14 Figuur 1b 13. Macroscopische whole-cell Ca 2 + stromen zijn opgenomen vanuit reticulospinal axonen in de intacte ruggenmerg 13,15. Echter, eerdere blind pogingen directe meting van Ca2 + stromen in reticulospinal axons in de intacte lamprey ruggenmerg middels cel verbonden patch clamp techniek onsuccesvol 13 gebleken wegens gebrek aan toegang tot de presynaptische afgifte gezicht membraan wegens de tegengestelde postsynaptische processen Figuur 1b. De release gezicht membraan eerder ontsloten door verwijdering van het postsynaptische neuron 11, mechanische verstoring van de synaps vóór opname 12 of enzymatische behandeling in combinatie met mechanische dissociatie 16. Gezien de complexe organisatie van het ruggenmerg, zou het uiterst moeilijk blijkt om de postsynaptische neuron te identificeren en schuif het mechanisch of verstoren the synaps. Vandaar dat we besloten om enzymatische behandeling 17, gevolgd door mechanische dissociatie gebruiken.
Met deze aanpak hebben we een acuut gedissocieerde voorbereiding van de lamprei ruggenmerg die levensvatbare geïsoleerde reticulospinal axonen met functionele presynaptische terminals zonder enige postsynaptische processen oplevert ontwikkeld, waardoor onbeperkte toegang tot individuele presynaptische terminals. In combinatie met een standaard omgekeerde microscoop en fluorescentie beeldvorming, het stelt ons in staat om te identificeren en te richten op individuele fluorescent-geïdentificeerde presynaptische terminals, met een patch pipet met een opname oplossing die Ca 2 + stromen Figuur 4c en figuur 4d isoleert, voor het opnemen van het gebruik van cel- bijgevoegde voltage-clamp techniek. Ca 2 + stromingen zijn rechtstreeks opgenomen in de presynaptische vrijlating gezicht membraan van individuele presynaptische terminals figuur 4f. Dit is een significant doorbraak op het gebied van synaptische transmissie omdat het het eerste opname uitgevoerd bij centrale synapsen worden uitgevoerd.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1 Bereiding van poly-D-lysine hydrobromide
- Bereid 1 mg / ml poly-D-lysine hydrobromide in 0,1 M boraatbuffer (pH 8,5).
- Aliquot en bewaar bij -20 ° C.
2 Poly-lysine Coating Coverslips
Opmerking: Voer alle reiniging en coating stappen in een laminaire stroming kamer.
- Plaats dekglaasjes in een petrischaal met 1 N zoutzuur (HCl) gedurende 2 uur.
- Zuig alle HCl en spoel af met 70% ethanol (EtOH) 2-3x.
- Laat in 70% EtOH gedurende 1 uur.
- Zuig al 70% EtOH en spoel af met 100% EtOH 2-3x.
- Laat in 100% EtOH gedurende 2 uur. Aspireren alle EtOH.
- Dep droog met een papieren filter en de lucht drogen voor een paar seconden.
- Plaats O / N in 1 mg / ml poly-lysine oplossing.
- Rinse coverslips volgende dag met Millipore water 4-5x.
- Droging polylysine gecoate dekglaasjes op glas rollen in een schone petrischaal.
- Voor immunohistochemistry Gebruik 35 x 10 mm petrischaal deksels. Bereid Sylgard (polydimethylsilioxane, PDMS) omzoomd maaltijden door gieten PDMS (elastomeer en verharder 10: 1 in gewicht) in de schaal tot een dikte van 0,3 cm en staan bij 30 ° CO / N te stellen. Zodra dit is ingesteld, snijd een 2 cm bij 1 cm inzet in het PDMS. Schoon en de vacht van de inzet met poly-lysine volgens dezelfde stappen als hierboven genoemd voor dekglaasjes.
- Store poly-lysine gecoate dekglaasjes en gerechten vallen in de laminaire stroming kamer tot gebruik (tot 2 weken, maar bereiken het beste lijm resultaten door periodiek het voorbereiden om de 3-4 dagen).
- Bereid een PDMS blok, het ruggenmerg pin in de vibrerende weefsel snijmachine. Mix Elastomeer A en B Elastomeer 1: 1 gew. Giet in een 100 x 15 mm petrischaaltje laten O / N ingesteld op 30 ° C. Snijd een rechthoekig stuk van de PMDS en lijm het aan het snijden bodemplaat met epoxy lijm. Laat de lijm aan de vaststelling van de PDMS op zijn plaats zetten en snijd meerdere dunne delen van het oppervlak van een platte verkrijgenoppervlak om het weefsel op de pin.
3 Acute Dissociatie van Lamprey Spinal Cord naar Geïsoleerde Reticulospinal Axonen Opbrengst
- Verdoven van een ammoecoete of volwassene lamprei (Petromyzon marinus) met tricaïne methaansulfonaat (MS-222, 100 mg / L). Voeg verdoving in het water, in een plastic beker met een deksel afgedekt met het lamprey worden opgeofferd.
- Onthoofden prikken in koude (4 ° C) Ringer's oplossing met de volgende samenstelling (in mM): 130 NaCl, 2,1 KCI, 2,6 CaCl2, 1,8 MgCl2, 4 HEPES, 4 dextrose (pH 7,6, osmolariteit 270 mOsm) en verwijder body muur spieren dorsale oppervlak van het ruggenmerg bloot.
- Verwijder meninx primitiva uit het dorsale oppervlak van het ruggenmerg met behulp van fijne tang. Verwijder niet ventrale meninx primitiva in dit stadium.
- Snijd het ruggenmerg in 1 cm lange stukken.
- Speld een ruggenmerg stuk met behulp van fijne insect pinnen, dorsale zijde naar boven, op een PDMS bekleed snijden basis plate (zie 2.12) in een trillende tissue slicer cupje met ijskoude Ringer's oplossing.
- Verwijder een centraal gedeelte van de dorsale kolom van het ruggenmerg door het snijden langs de rostro-caudale as met het blad, met achterlating intact dorsale kolom secties in de rostrale en caudale einden om als handgrepen tijdens het dissociatieproces Figuur 2a en Figuur 2b. Gebruik langzaamste stand aan dat snijden en een diepte-instelling dat alleen de dorsale kolom verlaten van de onderliggende reticulospinal axon kolom onbeschadigd Figuur 2b verwijdert toelaat.
- Incubeer gesneden ruggenmerg stukjes bij kamertemperatuur gedurende 45 min in een cocktail van 1 mg / ml protease (Type XIV van Streptomyces griseus) en 1 mg / ml collagenase bereid (type IA van Clostridium histolyticum) in Ringer's oplossing (aangepast van El Manira & Bussières , 1997 17).
- Pin-enzymen behandelde ruggenmerg stukken met behulp van fijne pennen in een PDMS gevoerde petrischaal containing koud (4 ° C) oplossing van Ringer.
- Verwijder ventrale meninx primitiva met fijne tang.
- Knip laterale stukken ruggenmerg met een scalpel in het midden van het gesneden dorsale gedeelte waardoor de centrale kolom van reticulospinal axonen intact in het ruggenmerg Figuur 2d.
- Breng een druppel immersie olie op de lens.
- Plaats de poly-lysine gecoate dekglaasje (Figuur 3a, bovenstuk, rode rechthoek) in de gleuf van het opname kamer Figuur 3 en vacuüm smeer alle randen (ruimte tussen rode en blauwe rechthoeken in figuur 3a, om een afdichting te vergemakkelijken. Screw de top op zijn plaats. Plaats de kamer in de inzet van de opname rig.
- Voeg Ringer-oplossing in de opname kamer met behulp van een Pasteur pipet.
- Sluit de uitstroom buis van de druk fles met antivries oplossing voor de thermo-elektrische koeling apparaat ingang buizen. Sluit de output slang van de thermo-elektrische koelinrichting aan het invoereinde van de uitwendige koelmantel en de uitgang naar het reservoir figuur 3b.
- Leg een stukje van het ruggenmerg op een moment in de opname kamer en voorzichtig te scheiden van het ruggenmerg onderhoud ervan langs het dekglaasje te allen tijde het gebruik van Teflon coating tang totdat axonen zijn geïsoleerde figuur 2e en figuur 2f.
- Breng het opnamesysteem temperatuur tot 10 ° C door het passeren van de druk (stikstofgas wordt geduwd in de fles) antivriesoplossing (door verplaatsing), via de thermo koelinrichting, door de buitenste koelmantel van de opname kamer Figuur 3b.
- Laat axonen te herstellen gedurende 1 uur na dissociatie bij 10 ° C.
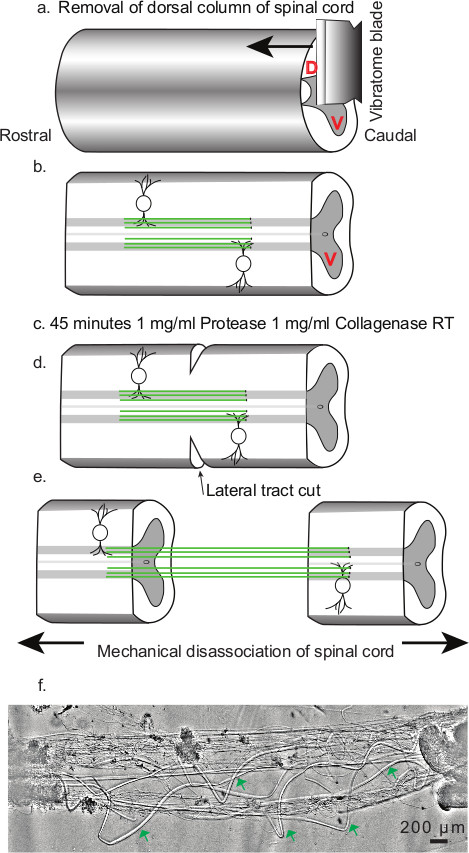
Figuur 2 Schematische beschrijving van dissociatie protocol voor isolatie van reticulospinal axonen. (A) Verwijdering van dorsale kolom. De pijl geeft de richting van snijden van het weefsel. De dorsale hoorns gekenmerkt door het alfabet D (rode tekstkleur), terwijl de ventrale hoorn van het alfabet V (rode tekstkleur). (B) Dorsale kolom verwijderd in het centrale gedeelte van het ruggenmerg blootstellen van de reticulospinal axonen (groene lijnen ). De ventrale hoornen, die intact blijven na het snijproces, worden gekenmerkt door het alfabet V (rode tekstkleur). (C) 45 min behandeling met protease en collagenase enzymen cocktail (1 mg / ml). (D) snijden laterale stukken van het ruggenmerg; aangeeft positie, richting en omvang van laterale snede. (e) mechanische dissociatie van ruggenmerg. Pijlen geven de positie van de tang en de richting van de scheiding van kracht tijdens dissociatie. (F) Franstalve voorbeeld van gedistantieerd reticulospinal axon voorbereiding. Groene pijlen markeren gebieden van acuut los reticulospinal axonen zonder postsynaptische processen.
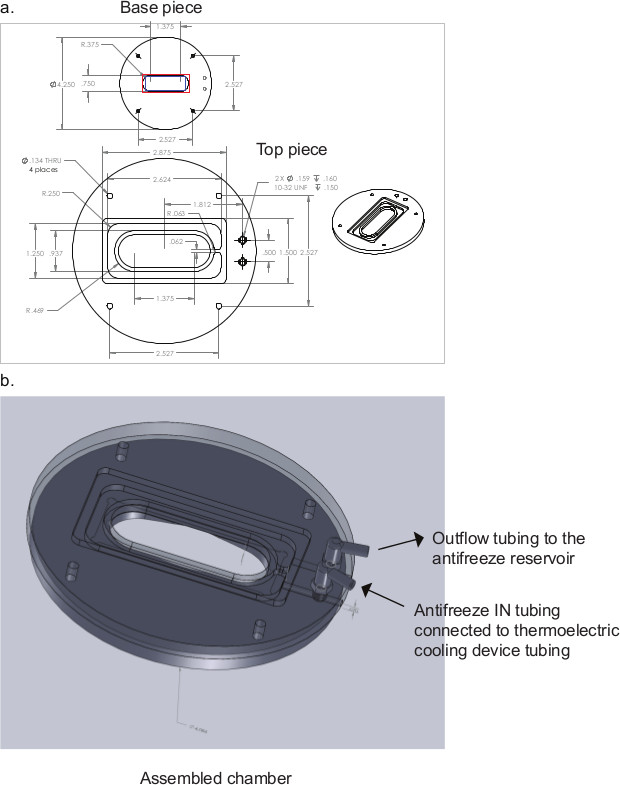
Figuur 3 Schematische voorstelling van de opname kamer voor elektrofysiologische experimenten. Afmetingen zijn uitgedrukt in inches. Rode rechthoek getoond in basepiece diagram (a) geeft positionering van dekglaasje in het dekglaasje groef in de basepiece. Het gebied tussen de rode en blauwe rechthoek, in de basepiece diagram (a) is waar de hoogvacuüm vet toegepast. (B) toont de samengestelde opname kamer.
4 etikettering en identificatie van Presynaptische Terminals met FM 1-43
- Label presynaptische terminals, door het opnemen van FM 1-43 in vesicles tijdens synaptische exo-endocytose tijdens hoge K + depolarisatie. Perfuseren preparaat met 5 uM FM 1-43 (in 5 ml Ringer's oplossing die 30 mM KCl).
- Perfuseren preparaat met 1 mg / ml Advasep-7 (in 5 ml Ringer's oplossing) om overtollig FM kleurstof) 18.
- Perfuse voorbereiding met Ringer-oplossing gedurende 15 minuten aan een Remant kleurstof en de Advasep afgespoeld.
- Afbeelding 100 X olie immersie objectief (NA 1,25) op een omgekeerde fluorescentie microscoop, in combinatie met een digitale CCD camera en beeld acquisitie software micromanager, middels standaard fluorescentie beeldvorming protocollen.
- Identificeer fluorescent gelabelde presynaptische terminals te richten voor het opnemen van figuur 4c en figuur 4d.
5 immunohistochemie van Geïsoleerde Reticulospinal Axonen
- Vul gerecht inzet (Protocol paragraaf 2.10.) Met tweewaardige-ion (Ca 2 + en Mg 2 +) gratisRinger's oplossing.
- Fabriceren patch pipetten in een P-87 micropipet trekker. Plaats een kleine hoeveelheid lijm hechting aan een einde van de poly-lysine bijvoegsel met een patch pipet (1,5 mm glas buitendiameter) en aanzuigleiding (met een siliconenslang 0,89 mm binnendiameter met een micropipet tip aan het zuigeinde).
- Voeren dissociaties volgens dezelfde procedure als genoemd in dienst Protocol 3 Figuur 2. Plaats het ene uiteinde van het ruggenmerg op de hechting lijm en druk deze voorzichtig met een tang om het sterk hechten aan het oppervlak. Breng een druppel lijm hechting aan het andere uiteinde van de inzet en voorzichtig rekken het ruggenmerg tot axonen gedissocieerd en hechten de vrije ruggenmerg uiteinde door voorzichtig te slepen via hechting lijm. Vast te zetten door zachtjes te drukken met de tang.
- Exchange tweewaardige bevrijden Ringer-oplossing met regelmatige Ringer-oplossing door perfusie.
- Laat axonen om te herstellen voor 20 min na dissociation bij 10 ° C.
- Fix gedissocieerd axons in 4% paraformaldehyde (PFA) {bereid in fosfaatbuffer zoutoplossing (PBS, (mM) NaCl 137, KCl 2.7, Na2HPO 4 10, KH 2PO 4 1,8, pH 7,4) gedurende 20 min}. Filter PFA oplossing vóór gebruik door passage door een 0,2 uM spuitfilter.
- Spoel de PFA door perfunderen 0,1 M glycine (in PBS) gedurende 10 minuten.
- Incubeer in 0,1% Triton-X (in PBS) gedurende 10 minuten.
- Was te doorstromen PBS gedurende 20 minuten.
- Blok met 5% niet-vette melk (in PBS) gedurende 6 uur bij 4 ° C.
- Opslaan in primair antilichaam aan VACK plaats (1: 200 verdunning in PBS) en incubeer gedurende 20 uur bij 4 ° C.
- Was te doorstromen PBS gedurende 20 minuten.
- Blok met 5% niet-vette melk (in PBS) gedurende 10 min bij 4 ° C.
- Opslaan in secundair antilichaam (1: 400 verdunning in PBS) en incubeer in het donker gedurende 2 uur bij 4 ° C.
- Was te doorstromen met PBS gedurende 20 minuten.
- Blokkeren met 1% Bovine Serum Albumin (in PBS) gedurende 20 minuten.
- Voeg in Alexa Fluor 488 phalloidin (5 eenheden / ul werken concentratie; voorraad voorbereid in methanol 200 Eenheden / ml).
- Was te doorstromen met PBS gedurende 20 minuten.
- Beeld met behulp van 100X water immersie lens op confocale microscoop.
6 elektrofysiologische opname
- Fabriceren aluminosilicaatglas patch pipetten (pipet weerstand 2-5 MQ) in een P-87 micropipet trekker. Ontwerp patch pipet zodanig dat pipettip omvat hele presynaptische terminal diameter.
- PDMS coat patch pipetten door dompelen van de patch pipet onder 50-60 psi druk in PDMS 23 (voeg een siliconenslang, 0,89 mm binnendiameter, verbonden met stikstofgas cilinder, naar de achterzijde van de patch pipet) en droog met een warmte- gun. Anders handmatig laag de pipet met PDMS, aanbrengen coating zo dicht bij de tip mogelijk, onder een samengestelde microscoop.
- Brand polish patch pipetten met een microforge (een custom-built platina filament gemonteerd op het podium van een samengestelde microscoop).
- Identificeer geïsoleerde axonen demonstreren bestempeld presynaptische terminals met behulp van fluorescentie microscopie.
- Vul opname-oplossing (ontworpen om Ca 2 + stromen te isoleren; 10 mM CaCl2 of 90 mm BaCl2 als ladingdrager, HEPES gebufferde pH 7,6, osmolariteit 270 mOsm) in de patch pipet met behulp van een injectiespuit.
- Steek patch pipet in de pipet houder en positie boven een bad met een gemotoriseerde manipulator MP225. Sluit voorzichtig de patch pipet in het bad en tegen het gezicht van een fluorescent geïdentificeerd presynaptische terminal.
- Vooraf de patch pipet langzaam tot er contact wordt gemaakt met het membraan. Op dit moment bereiken een gigaohm afdichting van zachte mond zuigen door een buis bevestigd aan de pipet houder.
- De extreem lage ruis niveau dat nodig is voor het opnemen van enkel kanaal Ca 2 + stromen te bereiken, gebruikt u een Axopatch 200B met een gekoelde headstage voor de opnames. Voorbeeld data op 20-50 kHz en filter met een 5 kHz Bessel-filter. Uitvoeren van data-acquisitie met een Axograph X.
- Gebruik een standaard stap protocol, in stappen van 10 mV als stimulus. Neem ook een pre-puls in het protocol, voorafgaande aan de stap protocol voor maximale activering van Ca2 + kanalen waarborgen. Voorzien van een 10 mV lek stap in de stap protocol voor post-analyse aftrekken van lekstromen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Deze dissociatie protocol levert gezonde en functionele geïsoleerde reticulospinal axonen verstoken van postsynaptische projecties figuur 2f, maar die toch behouden functionele presynaptische terminals staat opgeroepen synaptischeblaasjeseiwit exo-en endocytose figuur 4c en figuur 4d. Secties van de geïsoleerde regio's van de reticulospinal axonen kan duidelijk worden geïdentificeerd onder een lichtmicroscoop duidelijk van alle andere neuronale processen ongeh...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Onze dissociatie protocol is belangrijk door het afstaan van geïsoleerde reticulospinal axonen verstoken van postsynaptische projecties figuur 2f, maar die toch behouden functionele presynaptische terminals Figuur 4c en figuur 4d. De afwezigheid van postsynaptische processen tegen de presynaptische terminal maakt directe opname toegang tot de presynaptische vrijlating gezicht membraan aan enkele presynaptische terminals, die eerder niet mogelijk in het centrum van syn...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen enkele concurrerende financiële belangen of andere belangenconflicten die bekend moeten worden gemaakt.
Dankbetuigingen
Dit werk is ondersteund door NINDS, RO1NS52699 en MH84874 aan SA.
We willen Dr. Dave Featherstone (Afdeling Biologische Wetenschappen, Universiteit van Illinois in Chicago) bedanken voor het verstrekken van de hechtlijm die we gebruikten in het immunohistochemisch werk. We danken Michael Alpert voor zijn commentaren en het corrigeren van het manuscript.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.2 µm Syringe filter | EMD Millipore | SLGV004SL | |
| 22 x 60 mm Coverslips | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 conjugated goat anti-rabbit secondary antibody | Invitrogen/Life Technologies | A21070 | |
| Antifreeze | Prestone | ||
| Boric acid | Sigma-Aldrich | B7660 | |
| Bovine serum albumin | Sigma-Aldrich | A7906 | |
| Bright field light source | Dolan-Jenner | Fiberlite 180 | |
| Calcium chloride | Sigma Aldrich | C4901 | |
| Collagenase Type IA from Cloristridium Histolyticum | Sigma-Aldrich | C9891 | |
| Cover slip | Fisher-Scientific | 12-545-J | |
| Dextrose | Sigma-Aldrich | D9559 | |
| Digital CCD Camera | Hamamatsu | C8484-03G01 | |
| Dissection fine forceps | Fine Science Tools | 91150-20 | |
| Dissection forceps | Fine Science Tools | 11251-20 | |
| Dissection microscope | Leica Biosystems | Leica MZ 12 | |
| Dissection scissors | Fine Science Tools | 15025-10 | |
| Dissection scissors fine | Fine Science Tools | 91500-09 | |
| Dissection scissors ultra fine | Fine Science Tools | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| Glycine | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| High vacuum grease | Dow-Corning | ||
| Hydrochloric acid | Fisherbrand | SA-56-500 | |
| Immersion oil | Fisher-Scientific | M2000 | |
| Industrial grade nitrogen gas tank | Praxair | UN1066 | |
| Insect pins | Fine Science Tools | 26002-10 | |
| Liquid suture glue | Braun Veterinary Cair Division | 8V0305 | De hechtmiddel voor hechtingen dat we in onze experimenten hebben gebruikt, werd ons door een ander laboratorium verstrekt. Het wordt niet langer geproduceerd. We hebben een Histoacryl Hechtmiddel voor toekomstig gebruik verkregen van Aesculap (Ts1050071FP) |
| Magnesium chloride | Sigma-Aldrich | M2670 | |
| Methanol | Sigma-Aldrich | 154903 | |
| Non-fat dry milk | Cell Signaling Technology | 9999S | |
| P-87 Micropipette puller | Sutter Instruments | ||
| Paraformaldehyde | Sigma-Aldrich | P6148 | |
| Perfusion pump | Cole-Palmer | Masterflex C/L | |
| Petri dish 100 x 15 mm | Fisher-Scientific | 875712 | |
| Petri dish 35 x 10 mm | Fisher-scientific | 875712 | |
| Poly-D-lysine hydrobromide | Sigma-Aldrich | P1024 | MW > 300.000 |
| Potassium chloride | Sigma-Aldrich | P9333 | |
| Potassium phosphate monobasic | Sigma-Aldrich | P5379 | |
| Primary antibodies R-type calcium channel | Alomone Labs | ACC-006 | |
| Protease Type XIV from Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| Scalpel blades | World Precision Instruments | 500240 | |
| Schot Duran Pressure Bottle | Fisher-Scientific | 09-841-006 | |
| Silicone tubing for glue application | Cole-Palmer | 07625-26 | |
| Slicing base plate | Leica Biosystems | 14046327404 | |
| Slicing chamber | Leica Biosystems | 14046230132 | |
| Sodium chloride | Sigma-Aldrich | S7653 | |
| Sodium hydroxide | S8045 | ||
| Sodium phosphate dibasic | Sigma-Aldrich | S9763 | |
| Sodium tetraborate | Sigma-Aldrich | B3545 | |
| Sylgard 160 Silicone Elastomer Kit | Dow Corning | SYLGARD® 160 | Om voor te bereiden, meng elastomer A en elastomer B 10:1 in gewicht |
| Sylgard 184 Silicone Elastomer Kit | Dow Corning | SYLGARD® 184 | Om voor te bereiden, meng elastomer en uithardingsmiddel 10:1 in gewicht |
| Teflon coated forceps | Fine Science Tools | 11626-11 | |
| Tricaine methanesulphonate | Sigma-Aldrich | A5040 | |
| Vibratome blades | World Precision Instruments | BLADES | |
| Xenon lamp | Nikon |
Referenties
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
