De overdracht van bm12-lymfocyten naar een C57BL/6-ontvanger is een gevestigd model van systemische lupus erythematosus. Hier beschrijven we hoe de ziekte kan worden geïnitieerd met behulp van dit model en hoe T-folliculaire helpercellen, germinale centrum B-cellen en plasmacellen kunnen worden gekenmerkt door middel van flowcytometrie.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
De bm12 Induceerbare model van systemische lupus erythematosus (SLE) in C57BL / 6 muizen
In dit artikel
Samenvatting
Samenvatting
Systemische lupus erythematodes (SLE) is een auto-immuunziekte met diverse klinische en immunologische manifestaties. Verschillende spontane en induceerbare diermodellen weerspiegelen veel voorkomende componenten van de menselijke ziekte, waaronder het bm12-overdrachtsmodel. Na overdracht van bm12-splenocyten of gezuiverde CD4 T-cellen, ontwikkelen C57BL/6-muizen snel grote frequenties van T-folliculaire helpercellen (Tfh), kiemcentrum (GC) B-cellen en plasmacellen, gevolgd door hoge niveaus van circulerende anti-nucleaire antilichamen. Aangezien dit model muizen op een pure C57BL/6-achtergrond gebruikt, kunnen onderzoekers snel en gemakkelijk de ziekteprogressie in transgene of knockout-muisstammen bestuderen in een relatief korte periode van tijd. Hier beschrijven we protocollen voor de inductie van het model en de kwantificering van Tfh, GC B-cellen en plasmacellen door middel van multi-kleurig flowcytometrie. Belangrijk is dat deze protocollen ook kunnen worden gebruikt om de ziekte te karakteriseren in de meeste muismodellen van SLE en Tfh, GC B-cellen en plasmacellen te identificeren in andere ziektemodellen.
Inleiding
Systemische lupus erythematosus (SLE) is een auto-immuunziekte complex prototypisch gekenmerkt door anti-nucleaire antilichamen (ANA) productie en glomerulonefritis. Talrijke andere complicaties, waaronder dermale, cardiopulmonale en hepatische laesies zijn geassocieerd met ziekte bij sommige individuen. Prevalentieschattingen in de Verenigde Staten lopen sterk uiteen, van 150,000-1,500,000 1,2, met een bijzonder hoge incidentie bij vrouwen en minderheden 3. Hoewel de etiologie van SLE moeilijk te onderscheiden is, wordt gedacht voortvloeien uit het samenspel van verschillende genetische en omgevingsfactoren, die leiden tot systemische auto-immuniteit.
Talrijke diermodellen toegepast om factoren die leiden tot de ziekte ontstaan en de progressie bestuderen. Classic muismodellen van SLE omvatten genetisch gepredisponeerde muizenstammen inclusief NZB x NZW F1 model en NZM derivaten, de MLR / lpr-stam en de BXSB / Yaa-stam en induceerbare systemen, zoals de pristane en chronische graft-versus-host disease (cGVHD) modellen 4. Vroege meldingen van auto-antilichaam productie in GVHD modellen gebruikt verschillende muizenstammen of hamster stammen voor ouders in de F1 transfers 5-8; meer voorkomende methoden gebruikt om lupus-achtige ziekte te bestuderen momenteel de DBA / 2 ouder → (C57BL / 6 x DBA / 2) F1, en de bm12 overdracht model hier beschreven. Elk model heeft zijn eigen kanttekeningen, maar zij over het algemeen delen een gemeenschappelijke set van kenmerken die correleren met klinische kenmerken van de ziekte bij de mens. De vaakst gerapporteerde parameters in muizenmodellen omvatten splenomegalie, lymfadenopathie, nefritis, ANA productie, en op cellulair niveau, de expansie van T folliculaire helpercellen (Tfh), germinal center (GC) B-cellen en plasmacellen.
De induceerbare bm12 model wordt bereikt door adoptieve overdracht van lymfocyten van IA bm12 B6 (C) - H2 - Ab 1 bm12 / KhEgJ (bm12) muizen, een stam identical naar C57BL / 6 behalve 3 aminozuursubstituties op MHC klasse II, in IA b C57BL / 6 (B6) muizen. Alloactivatie donor CD4 T-cellen door de ontvanger APC leidt tot cGVHD met symptomen die sterk lijkt op SLE. Specifiek omvatten deze uitbreiding van donor afgeleide Tfh, uitbreiding van de ontvanger afgeleide GC B-cellen en plasmacellen en productie van ANA waaronder anti-dsDNA, anti-ssDNA, anti-chromatine en anti-RBC antilichamen 9. Mettertijd ontvangende muizen ontwikkelen glomerulonefritis in verband met IgG in de glomerulaire afzettingen, interstitiële en vasculaire gebieden van de 10 nieren. We hebben onlangs aangetoond dat, vergelijkbaar met humane ziekten, is er ook een cruciale rol van type I IFN in dit model 11. Met name de bepalende criteria voor menselijke SLE omvatten de ontwikkeling van nefritis compatibel met SLE bij aanwezigheid van anti-dsDNA-antilichamen 12, die beide zijn opvallende kenmerken van deze muismodel.
Er zijn seVeral voordelen van de bm12 model over de spontane modellen. Klassieke modellen die SLE-achtige symptomen ontwikkelen spontaan vertrouwen op beide hybride muizenstammen, inteelt muizenstammen niet op de achtergrond B6 of grote genetische loci op de achtergrond B6, waardoor kruising knock-out of andere genetisch gemodificeerde muizen moeilijk en tijdrovend. Met bm12 induceerbare model kunnen genetisch gemodificeerde muizen dienen als ofwel de donor of ontvanger, waarmee snellere identificatie van het cellulaire compartiment waarin bepaalde genen betrokken ziekte kunnen zijn. Bovendien zieketontwikkeling in het bm12 model is veel sneller, die slechts 2 weken tot het verschijnen van ANAS vergelijking tot enkele maanden meest spontane modellen. Bovendien, in tegenstelling tot de spontane modellen die ziekte op verschillende tijdstippen te ontwikkelen, de ziekte ontstaan en de progressie in de bm12 → B6 model is sterk gesynchroniseerd. Dit maakt het genereren van geschikte grootte cohorten die be gebruikt voor interventionele of therapeutische strategieën in elk stadium van de ontwikkeling van de ziekte.
Wat volgt is een gedetailleerd protocol voor het initiëren van SLE-achtige auto-immuniteit door adoptieve overdracht van bm12 lymfocyten in C57BL / 6-muizen of genetische varianten op de B6 achtergrond. Verder beschrijven we een flowcytometrische kleuring protocol opsommen Tfh, GC B-cellen en plasmacellen-celtypen geassocieerd met humane ziekte. Belangrijk, deze protocollen kunnen ook worden gebruikt om de ziekte in de meeste muismodellen van SLE karakteriseren en identificeren Tfh, GC B-cellen en plasmacellen in andere ziektemodellen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Dierlijke werk werd uitgevoerd onder specifieke pathogeen-vrije omstandigheden in overeenstemming met de richtlijnen die door de Vereniging voor evaluatie en accreditatie van Laboratory Animal Care International en onze Institutional Animal Care en gebruik Comite (IACUC) ingesteld.
OPMERKING: Integreer muizen die een congenic merker zoals CD45.1 aan beide donor of ontvanger dieren indien mogelijk, omdat dit zorgt voor de bewaking van donor transplantaat efficiëntie en specifieke uitbreiding van de donor CD4 T-cel populatie. Wanneer zij het gebruik van andere genetisch gemodificeerde muizen als donoren of ontvangers, zorgen de stam goed teruggekruist met de B6 achtergrond of overgedragen cellen kunnen worden-wees dit zal verder in de representatieve resultaten en discussie secties worden.
OPMERKING: De volgende procedures detail volumes voor het oogsten van 4 donor bm12 muizen, die genoeg cellen moeten wijken voor 12-16 muizen te injecteren. Zestot twaalf weken oude bm12 muizen op ongeveer 100-140,000,000 lymfocyten met ongeveer 25% CD4 T-cellen. Als beginnend met verschillende aantallen muizen, of verschillende muizenstammen, schaal volumes omhoog of omlaag dienovereenkomstig. C57BL / 6-muizen algemeen geven vergelijkbare opbrengsten met dichter bij slechts 20% CD4 T-cellen.
OPMERKING: Voer alle stappen bij RT en gebruik RT media om warmte en koude shock, die op lange termijn levensvatbaarheid van de lymfocyten kunnen schaden voorkomen. Voeren weefsel oogsten en weefsel-processing stappen in een weefselkweek kap met behulp van aseptische techniek. Alle media in dit protocol IMDM met 10% door warmte geïnactiveerd FBS, tenzij anders aangegeven, en wordt gewoon aangeduid als "compleet medium".
1. nieuwe methode voor genotypering bm12 Muizen
LET OP: Een korte restrictiedigest-gebaseerd protocol voor genotypering is hier voorzien, als een eenvoudig en goedkoop alternatief voor sequencing, die momenteel de enige gepubliceerde genotyperingsmethodedeze muizen.
- Isoleer genomisch DNA van de muis staarten. Verwijzen naar een vorige Jove artikel voor gedetailleerde protocollen op de muis staart knippen en het genereren van cDNA uit de staart verteert 13.
- Voer een reverse-transcriptase gepolymeriseerde kettingreactie (PCR) 14 een gemeenschappelijk 474 bp DNA-fragment van MHC-II b IA en IA amplificeren bm12 gebruikt in tabel 1 genoemde primers en thermocycling omstandigheden.
- Voer restrictiedigestie op ~ 7 ul van het PCR product met het enzym PsuI of een van zijn isoschizomeren (BstX2I, BstYI, MflI of XhoII) die wildtype snijdt IA b, maar niet IA bm12 mutant. Volg verteren protocol van de fabrikant, waarbij een mengsel van water specificeert, buffer en enzym en een incubatie van 5 min. enkele uren bij 37 ° C 15.
- Laad verteren product en lopen op 1% polyacrylamide gel met ethidiumbromide 14 voor 30-45 min. 150V-hoewel optimale spanning en tijd zal variëren afhankelijk van de PCR gel gebruikte apparatuur. Visualiseer DNA-banden met een UV-verlichting. Representatieve resultaten worden getoond in figuur 1.
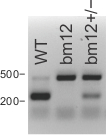
Figuur 1. Representatieve bm12 genotypering resultaten.
Met muizen die homozygoot zijn voor IA bm12 / bm12 identificeren, werd tail DNA gescreend door PCR bm12 / restrictiedigestie genotypering (stap 1). Homozygoot wild type (IA b / b) DNA levert twee banden bij 227 en 247 bp (gevisualiseerd als een dikke band op ~ 250 bp); homozygote bm12 (IA bm12 / bm12) DNA levert een band op 474 bp; en heterozygote (IA bm12 / b) DNA levert twee banden bij ~ 250 en 474 bp. Klik hier om een grotere versie van deze figuur te bekijken.
2. Oogsten DonorCellen
- Offer donormuizen met Institutional Animal Care en gebruik Comite (IACUC) -goedgekeurd primaire en secundaire euthanasie methoden. Bijvoorbeeld, euthanaseren muizen door stikken met CO 2, gevolgd door cervicale dislocatie.
- Met behulp van aseptische techniek, oogst milt en lymfeklieren (oppervlakkige cervicale, onderkaak, arm, oksel, mesenterische en lies) in 15 ml buizen met 10 ml volledige media als in 11-13.
OPMERKING: Raadpleeg de vorige rapporten voor gedetailleerde lymfeklierdissectie protocollen 16-18. Dit model is ook succesvol met alleen muis splenocyten voor de overdracht, maar de toevoeging van lymfeklieren vermindert het benodigde aantal donor muizen. - Genereren van een enkele cel schorsing door stampen lymfeweefsel in stap 2.2 verzameld door middel van 70 micrometer cel zeven met behulp van de zuiger van een injectiespuit. Voor een betere rendementen, niet overbelast filters gebruiken ~ 6 zeven voor elke 4muizen verwerkt, en spoel zeven regelmatig tijdens het verwerken. Combineer weefsel van 4 muizen in twee 50 ml conische buizen centrifugeer cellen gedurende 5 minuten bij 400 xg en decanteer supernatant.
- Resuspendeer cellen uit beide conische buizen van 50 ml compleet medium en transfer naar nieuwe conische buis. Houd deze buis bij RT.
OPMERKING: Vet aan de wand van de buis, en wanneer de buis niet wordt vervangen, kan uiteindelijk cellulaire opbrengsten lijden.
3. Donor Celtelling
OPMERKING: Om de hoogste levensvatbaarheid, rode bloedcellen (RBC) lysis van het gehele monster te behouden wordt niet aanbevolen.
- Meng enkele celsuspensie uit stap 2,4 put, 1 ml verwijderd en overgebracht naar een aparte 50 ml conische. Zet opzij overgebleven, ongerepte cellen (49 ml) bij kamertemperatuur, terwijl het tellen.
- Voeg 3 ml van een ammoniumchloride-gebaseerde rode bloedcellen lysis buffer tot 1 ml donor celmonster. Meng zachtjes gedurende 1 min. door schommelen, vul tot 50 ml met volledige media, eennd centrifugeer 5 min. bij 400 xg en decanteren supernatant.
- Resuspendeer RBC-gelyseerde cellen in 10 ml compleet medium en count (bijvoorbeeld met trypan blauw gebruik van een hemocytometer). Vermenigvuldig-resultaat met 49 is het totale aantal cellen in de resterende niet-gelyseerde monster dat was gereserveerd. Discard RBC-gelyseerde cellen.
4. Donor Cell Labeling en / of CD4 T-cel Zuivering
- Desgewenst zuiveren CD4 T-cellen in dit stadium, hoewel dit niet noodzakelijk. Bovendien, indien gewenst, label cellen met CFSE, zoals in 19, of andere cell tracking kleurstoffen, waarvan een voorbeeld is getoond in figuur 4 de resultaten representatief gedeelte.
NB: Voor CD4 T-cel zuivering, is negatieve magnetische selectie aanbevolen, omdat het hoge zuiverheid kan bereiken en laat cellen onaangetast met een hoge levensvatbaarheid, zoals beschreven in 20. Belangrijk is dat endotoxine vrije buffers worden gebruikt; Daarom, in plaats van BSA, maken scheiding buffer with 2% FBS en de aanbevolen concentratie van EDTA.
5. Injectie van Donor bm12 Cells
- Na het tellen van donor lymfocyten in stap 3 (en gezuiverd en gekenmerkt als in stap 4, zoals gewenst), centrifuge cellen gedurende 5 minuten bij 400 x g. Giet supernatant en resuspendeer cellen in PBS bij 120 miljoen lymfocyten per ml (of 30 miljoen gezuiverde CD4 T-cellen per ml). Overdracht cellen om een steriele 5 ml ronde bodem buis of ander steriel buisje dat gemakkelijk herbergt een 1 ml injectiespuit uitgerust met een 27,5 G x 13 mm naald.
- Voorafgaand aan injectie, vernietiging van een klein monster van donorcellen uit stap 5,1 bij 4 ° C voor stroming kleuring om het percentage van CD4 T-cellen in donor monsters te bepalen. Stain deze monsters zoals in stap 8 met het minimale antilichaam panel (tabel 2).
OPMERKING: Indien cellen van verschillende muizenstammen gebruikt als afzonderlijke donoren Dit is een belangrijke overweging en als CD4 T cel percentages verschillen aanzienlijk, purification kan worden verlangd. - Meng cellen voorzichtig, maar grondig. Dit kan door pipetteren cellen en neer met een injectiespuit 1 ml zonder bevestigde naald. Na het mengen, trekken cellen in de spuit 1 ml. Bevestig de naald na het verwijderen van eventuele luchtbellen. Houd de naald uit tijdens het vullen van de spuit helpt levensvatbaarheid van de cellen te behouden.
- Injecteer 250 pl per muis (die gelijk is aan 30 miljoen lymfocyten of 7.500.000 gezuiverde CD4 T-cellen per muis) intraperitoneaal, zoals beschreven in 21.
Opmerking: In experimenten hier en in ons eerder werk 11, is elke muis geïnjecteerd met 30 miljoen totale lymfocyten van bm12 donors, in plaats van de 100 miljoen splenocyten totale traditioneel gebruikt. In ongepubliceerde gegevens uit ons laboratorium, werd geen verschil waargenomen in serum anti-dsDNA op dag 14 na injectie van 30 miljoen of 100 lymfocyten per muis. Hoewel dit vermindert het aantal muizen nodig voor experimenten, de ontwikkeling van nefritis with dit aantal cellen is niet onderzocht.
6. Bepaal Enten Efficiency
OPMERKING 1: In dit gedeelte wordt beschreven hoe de mate van donor cel enten bepalen in de ontvanger op dag 3 om eventuele muizen die suboptimale injecties heeft ondergaan (bijvoorbeeld het transplantaat in een muis is <10% van die gezien in identificeren elke muis uit dezelfde groep). Deze gegevens kunnen ook helpen bepalen of cellen van een genetisch gemodificeerde muis stam worden afgewezen op latere tijdstippen (voor details, zie representatieve resultaten sectie, figuur 6).
OPMERKING 2: Deze sectie is alleen mogelijk als donoren en ontvangers zijn van muizen op verschillende congenische achtergronden, bijvoorbeeld bij het gebruik van CD45.1 bm12 donoren en CD45.2 C57BL / 6 ontvangers, of als donor cellen zijn gelabeld met een mobiele bijhouden kleurstof. Belangrijk is op 3 dagen na injectie CD4 T-cellen hebben een minimale uitzetting ondergaan (see representatieve resultaten sectie, figuur 4), zodat de verschillen waargenomen in de mate van enten zijn te wijten aan variabiliteit in injecties, niet expansie.
- Verdoven muizen met 4% isofluraan of andere IACUC-goedgekeurde methode. Test achterste voet reflexen muis correct wordt verdoofd alvorens tot de bloedafname.
- Oogst 100-200 ul bloed met behulp van een IACUC-goedgekeurde methode, zoals de retro-orbitale punctie als in 22. Verzamel bloed in afzonderlijke 0,5 ml microcentrifuge buisjes met een anti-stollingsmiddel, zoals plasma verzamelbuizen waarnaar in de tabel materialen die gevriesdroogd dikalium EDTA bevatten. Na bloedafname, zachtjes druk op de muis oog met een steriele doek of gaas zorgen bloeden stopt, plaats de muis weer in de kooi wanneer totdat de laatste weefsel oogst (Stap 7) blijft.
OPMERKING: muizen onbeheerd tot muizen voldoende bewustzijn hebben herwonnen omonderhouden ventrale decubitus, en niet muizen terug te keren naar het gezelschap van anderen, tot volledig hersteld. - Breng bloed volume tot 500 ul met 21 ° C PBS en overdragen aan conische bodem microcentrifugebuis, dan langzaam onderlaag 200 ul van 21 ° C met een hoge dichtheid celscheiding oplossing met een 200 ul pipet, voorzichtig om te mengen tussen de twee fasen te minimaliseren ( zie Materialen Tafel voor aanbevolen oplossingen). Centrifugeer cellen bij 700 xg gedurende 20 min bij 20-25 ° C met centrifuge rem ingesteld op laag.
- Verwijder de bovenste laag met lymfocyten met een 1 ml pipet en transfer naar een nieuwe microcentrifugebuis met 800 ul koud volledige media. Voorzichtig vortex om cellen te mengen. Centrifugeer cellen bij 700 g gedurende 5 min bij 4 ° C en decanteren supernatant.
- Resuspendeer cellen in 200 ul compleet medium, overdracht naar een 96 putjes U bodemplaat en kleuring voor flowcytometrie zoals beschreven in stap 8 met een minimale antilichaam panel (tabel 2) te bepalen tHij relatieve overvloed van CD4 T-cel graft procenten van PBMCs.
7. Final Tissue Harvest
Opmerking: De in het resultaat beschreven experimenten werden 14 dagen na injectie van donor cellen geoogst (of in sommige gevallen minder tijd), omdat ze zich richten op de initiële ontwikkeling van Tfh cellen en plasmacellen; Aangezien dit model een chronische GVHD model van SLE, ziekte kan worden gecontroleerd veel latere tijdstippen. De optimale tijdsduur is afhankelijk van de vraagstelling gesteld in elk individueel experiment.
- Op een vooraf bepaald tijdstip na injectie van bm12 donorcellen (stap 5.4), offeren muizen met een IACUC-goedgekeurde methode van euthanasie. Stikken met CO 2, gevolgd door verbloeding wordt aanbevolen. Cervicale dislocatie kan fungeren als secundaire werkwijze euthanasie, maar dit kan de bloedafname opbrengst verlagen.
- Bevochtig de buik van de muis licht met een spray fles met 70%ethanol. Voeg een kleine, oppervlakkige incisie met chirurgische schaar ongeveer 1 cm boven de genitaliën. Terug te trekken van de huid van de buik in de richting van het borstbeen, let daarbij goed op de peritoneale fascia intact te houden.
OPMERKING: zieke muizen vertonen meestal 0,5-3 ml ascites op dag 14, die weliswaar nog niet goed gekarakteriseerd, kan worden gemeten en als extra parameter ziekte geanalyseerd. - Monteer een 5 ml spuit met een 18 G naald. Steek de naald in de rechter kwadrant van de buik met de naald omhoog gericht naar het hoofd van het dier en bij 15 ° hoek met het vlak van de fascia. Plaats de naald in de buurt van de blindedarm om te voorkomen dat de naald verstopt raakt met darm terwijl aspireren ascites.
- Voorzichtig draai de muis op zijn kant, dan langzaam trekken ascites in de spuit. Nadat ascites is hersteld, verwijder de injectiespuit en noteer het aspireren volume, op basis van de volumetrische markeringen op de zijkant van de syriNSE.
- Lozing ascites in een 5 ml ronde bodem buis en op te slaan op het ijs voor latere verwerking.
- Harvest bloed via trekking uit de inferior vena cava (IVC) in hoofdzaak zoals 22. Met behulp van een tang saai, beweeg darmen naar de linkerkant van de muis, het blootleggen van de IVC. Plaats een 27,5 G naald van een injectiespuit 1 ml ingepast in het IVC en langzaam trekken 400-500 ul van bloed.
- Om hemolyse te minimaliseren, langzaam injecteren bloed in een 0,5 ml microcentrifuge serum of plasma buis. Voor latere serum analyse Anas door ELISA, houden het bloed op het ijs.
- Ontleden en te verkrijgen aanvullende relevante weefsels (milt en, indien gewenst, lymfeknopen en de nieren, met name indien het verzamelen op latere tijdstippen en glomerulonefritis worden gescoord). Verwijder milt Hiertoe plaatst de darm weer aan de rechterzijde van het dier, en trekken aan de pancreas, de milt primaire bindweefsel.
- Verwijder eventuele resterende alvleesklier, weegmilt op een hoge precisieweegschaal onmiddellijk na dissectie, als bruto splenomegalie is een vaak gemeld parameter in muismodellen van SLE. Plaats lymfeweefsel in afzonderlijke 1,5 ml buizen gevuld met 1 ml volledige media op ijs. Fix nieren in 10% neutraal gebufferde formaline of snap nieren voor later histologie bevriezen als in 23.
- Centrifuge bloed binnen 2 uur van de collectie voor 3 min. bij 10.000 xg (4 ° C). Verwijder serum en bewaar bij -80 ° C voor latere analyse van ANA door ELISA. Verwijzen naar eerdere rapporten voor gedetailleerde ANA ELISA-protocollen 24,25. WINKEL serum in meerdere 10-20 ul aliquots aan vries / ontdooi cycli te minimaliseren, en laat een groter aantal toekomstige assays.
- Centrifugeer ascites 400 g gedurende 5 min. Verwijder het supernatant met een pipet 1 ml monster en in enkele 0,5 ml buizen. Freeze bovenstaande vloeistof bij -80 ° C voor latere analyse van antinucleaire antilichamen (ANA) of andere oplosbare ontstekingsmediatoren.
- Resuspendeer cellulaire fract ion bij ongeveer 1 ml compleet medium en breng 200 ui van een 96 putjes U bodemplaat voor stroming kleuring (zoals in stap 8).
- Mash elke milt tot 70 micrometer cel zeven in aparte buizen en spoelen met volledige media. Resuspendeer splenocyten met 1 ml koud RBC lysis buffer gedurende 1 min. en meng voorzichtig door schommelen. Breng volume op 10 ml met koud compleet medium en centrifugeer 5 min bij 400 xg en decanteer supernatant.
- Hersuspenderen celpellet in 5 ml compleet medium en te tellen met een hemocytometer. Stel het volume zodanig dat 200 ul van complete media bevat 1-3.000.000 cellen. Begin kleuring flowcytometrie (Stap 8) via een verlengde paneel (tabel 2) naar donor CD4 T-cel en B ontvangende celdifferentiatie en expansie kwantificeren.
Opmerking: Afhankelijk van welke laser, fotomultiplicatorbuis (PMT) en filterset combinaties beschikbaar, het scheiden van de T- en B-cel analysepaneel in meerdere panelen nodig zijn.
- Overdracht 1-3 miljoen splenocyten in 200 ul compleet medium in afzonderlijke 5 ml round-bottom tubes of in afzonderlijke putjes van een 96 putjes U bodemplaat.
LET OP: Het gebruik van een 96-well plaat is een efficiënte manier om meerdere samples vlekken, maar zorg om monsters plaat in elke andere goed om kruisbesmetting te voorkomen. Een 96-well plaat kan daarom vasthouden 24 monsters. - Centrifuge plaat bij 500 xg gedurende 3 min., Daarna flick supernatans van de plaat in de juiste (biologisch) container.
- Resuspendeer de celpellets met 100 pl stroming buffer (1% FBS in PBS) met een fixeerbaar levensvatbaarheid kleurstof aan aanbevolen concentratie van de fabrikant en gezuiverd anti-CD16 / anti-CD32 antilichaam cocktail in 1 ug / ml. Incubeer gedurende 10 minuten bij 20-25 ° C, voeg vervolgens 100 ul koud compleet medium levensvatbaarheid kleurstof blussen.
OPMERKING: Splenocyten van zieke muizen bevatten meestal relatief hoge aantal dode of stervende cellen;Daarom is de opname van een levensvatbaarheid kleurstof bevelen om niet-specifiek antilichaam labeling van stervende cellen, wat resulteert in schonere, meer betrouwbare gegevens te voorkomen. Ook de anti-CD16 / anti-CD32 cocktail opgenomen om niet-specifieke fluorescentie-gemerkt antilichaam dat binding van Fc-receptoren te blokkeren. - Centrifuge plaat bij 500 xg gedurende 3 min., Daarna flick supernatans van plaat in biohazard container. Resuspendeer cellen in 200 ul buffer stroom. Centrifuge plaat bij 500 xg gedurende 3 min., Daarna flick supernatans van plaat in biohazard container.
- Resuspendeer cellen in 50 pi buffer bevattende stroom antilichaam cocktail (tabel 2). Incubeer gedurende 20 minuten bij 4 ° C, voeg vervolgens 150 ul buffer stroom. Herhaal wasstap 8,4.
- Resuspendeer cellen met 100 gl 2% paraformaldehyde in PBS. Incubeer gedurende 30 minuten bij 4 ° C, voeg vervolgens 100 ul buffer stroom. Centrifuge plaat bij 500 xg gedurende 3 min., Daarna flick supernatans van plaat in biohazard container.
- Resuspend in 200 gl buffer stroom, transfer naar Insteekdoppen of standaard stroombuizen stroomt, voeg extra stroom 100-200 gl buffer en bewaar bij 4 ° C in het donker totdat verkrijgen op flowcytometer.
- Verwerven een stroom cytometer uitgerust met de juiste lasers en PMT voor het gekozen antilichaam panelen binnen enkele dagen na kleuring. Record voorwaartse verstrooiing breedte en / of hoogte in aanvulling op scatter gebied, zijwaartse verstrooiing gebied, en het gebied van de fluorescerende parameters gebruikt doorsturen. Voor betrouwbare resultaten verkrijgen ≥1,000 donorcellen in iedere WT monster, of een gelijkwaardige totale aantal lymfocyten in genetisch gemodificeerde of anderszins gemanipuleerde muizen die een minimale uitbreiding van donorcellen, waar de verzameling van zoveel gebeurtenissen niet haalbaar kunnen tonen.
OPMERKING: Flowcytometrie analyses beschreven in de resultaten representatief gedeelte (Figuren 3 - 6).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Zieke muizen ontwikkelen miltvergroting in slechts 14 dagen, vertonen milten 2-3 maal groter gezonde muizen in termen van massa en cellulariteit (figuur 2).
Splenocyten achtereenvolgens gated op lichtverstrooiing (FSC-SSC A-A), eliminatie van doubletten (FSC-W of -H FSC-A), levensvatbare cellen (lage kleuring van levensvatbaarheid kleurstof) en CD4 + TcR + (Fig 3A). Donorcellen zijn onderscheiden van de ontvanger cellen op basis van CD4...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De bm12 induceerbare model is een relatief eenvoudige en efficiënte manier om de cellulaire en moleculaire processen van SLE bestuderen. Chronische activatie van de adoptief overgedragen T-cellen CD4 gericht tegen eigen antigenen leidt tot de accumulatie van Tfh, GC B-cellen en plasmacellen die kan worden gemeten door middel van flowcytometrie, zoals hier beschreven. Toekomstige studies met dit model snel en eenvoudig ondervragen de rol van kandidaatgenen en nieuwe therapieën in de auto kiemcentrum processen die die voo...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk werd gedeeltelijk ondersteund door het Lupus Research Institute, NCI-subsidie CA138617, NIDDK-subsidie DK090978, Charlotte Schmidlapp Award (aan E.M.J.) en de Albert J. Ryan Fellowship (aan J.K.). We zijn dankbaar voor de ondersteuning en instrumentatie die werd geleverd door de Research Flow Cytometry Core in de afdeling Reumatologie van het Cincinnati Children’s Hospital Medical Center, gedeeltelijk ondersteund door NIH AR-47363, NIH DK78392 en NIH DK90971.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| B6.SJL-Ptprca Pepcb/BoyJ | The Jackson Laboratory | 001162 | CD45.1+ BoyJ muisensoort |
| B6(C)-H2-Ab1bm12/KhEgJ | The Jackson Laboratory | 001162 | Bm12 muisensoort |
| FastDigest PsuI | Life Technologies | FD1554 | Beperkingsdigestie-enzym voor genotypering |
| 1X RBC Lysis Buffer | eBioscience | 00-4333-57 | |
| IMDM | GE Healthcare | SH30228.01 | |
| Plasma Separation Tube (PST) | BD | 365974 | Bloedopnamebuis met Dipotassium EDTA |
| Serum Separation Tube (SST) | BD | 365967 | Bloedopnamebuis met stollingsactivator / SST Gel |
| Ficoll | GE Healthcare | 17-1440-02 | Hogedichtheidscelscheidingsoplossing |
| Lympholyte-M | Cedarlane | CL5030 | Hogedichtheidscelscheidingsoplossing |
| GL-7-biotin | eBioscience | 13-5902-82 | |
| Streptavidin-BUV395 | BD | 564176 | |
| CD138-BV421 | BioLegend | 142508 | |
| CD4-BV510 | BioLegend | 100559 | |
| TCRβ-BV605 | BD | 562840 | |
| CD45.1-BV711 | BioLegend | 110739 | |
| CD45.2-FITC | BioLegend | 109806 | |
| PD-1-PE | BioLegend | 135206 | |
| CD19-PerCP | BioLegend | 115532 | |
| Fas-PE-Cy7 | BD | 557653 | |
| CXCR5-APC | BioLegend | 145506 | |
| Fixable Viability Dye ef780 | eBioscience | 65-0865-18 | |
| CD4-BV421 | BioLegend | 100443 | |
| 1.2 ml FACS tube inserts, racked | USA Scientific | 1412-1400 | |
| BD Falcon™ Round-Bottom Tubes | BD | 352017 |
Referenties
- Helmick, C. G., Felson, D. T., et al. Part I. Arthritis Rheum. Estimates of the prevalence of arthritis and other rheumatic conditions in the United States. 58, 15-25 (2008).
- Lupus Foundation of America Web Site. , Available from: http://www.lupus.org/answers/entry/what-is-lupus (2015).
- Somers, E. C., Marder, W., et al. Population-based incidence and prevalence of systemic lupus erythematosus: The Michigan lupus epidemiology and surveillance program. Arthritis and Rheumatol. 66, 369-378 (2014).
- Perry, D., Sang, A., Yin, Y., Zheng, Y. -Y., Morel, L. Murine models of systemic lupus erythematosus. J Biomed Biotechnol. 2011, 271694(2011).
- Lindholm, L., Rydberg, L., Strannegård, O. Development of host plasma cells during graft-versus-host reactions in mice. Eur J Immunol. 3 (8), 511-515 (1973).
- Fialkow, P. J., Gilchrist, C., Allison, A. C. Autoimmunity in chronic graft-versus-host disease. Clin Exp Immunol. 13, 479-486 (1973).
- Streilein, J. W., Stone, M. J., Duncan, W. R. Studies on the Specificity of Autoantibodies Produced in Systemic Graft-vs-Host Disease. J Immunol. 114 (1), 255-260 (1975).
- Gleichmann, E., Gleichmann, H. Diseases caused by reactions of T lymphocytes to in compatible structures of the major histocompatibility complex. I. Autoimmune hemolytic anemia. Eur J Immunol. 6 (12), 899(1976).
- Morris, S., Cohen, P. L., Eisenberg, R. Experimental induction of systemic lupus erythematosus by recognition of foreign Ia. Clin Immunol Immunopathol. 57 (2), 263-273 (1990).
- Chen, F., Maldonado, M., Madaio, M., Eisenberg, R. The Role of Host (Endogenous) T Cells in Chronic Graft-Versus-Host Autoimmune Disease. J Immunol. 161 (11), 5880-5885 (1998).
- Klarquist, J., Hennies, C. M., Lehn, M. A., Reboulet, R. A., Feau, S., Janssen, E. M. STING-Mediated DNA Sensing Promotes Antitumor and Autoimmune Responses to Dying Cells. J Immunol. 193, 6124-6134 (2014).
- Petri, M., Orbai, A. -M., et al. Derivation and validation of systemic lupus international collaborating clinics classification criteria for systemic lupus erythematosus. Arthritis Rheum. 64 (8), 2677-2686 (2012).
- Zangala, T. Isolation of genomic DNA from mouse tails. J Vis Exp. (6), e246(2007).
- Lorenz, T. C. Polymerase Chain Reaction: Basic Protocol Plus Troubleshooting and Optimization Strategies. J Vis Exp. (63), e3998(2012).
- Product information: Thermo Scientific FastDigest PsuI. , Thermo Scientific. Available from: https://tools.lifetechnologies.com/content/sfs/manuals/MAN0012567_FastDigest_PsuI_UG.pdf (2012).
- Matheu, M. P., Parker, I., Cahalan, M. D. Dissection and 2-photon imaging of peripheral lymph nodes in mice. J Vis Exp. (7), e265(2007).
- Harrell, M. I., Iritani, B. M., Ruddell, A. Lymph node mapping in the mouse. J Immunol Methods. 332 (1-2), 170-174 (2008).
- Covelli, V. Chapter 3, Internal examination. Guide to the necroscopy of the mouse. , Available from: http://eulep.pdn.cam.ac.uk/Necropsy_of_the_Mouse/index.php?file=Chapter_3.html (2009).
- Quah, B. J. C., Parish, C. R. The use of carboxyfluorescein diacetate succinimidyl ester (CFSE) to monitor lymphocyte proliferation. J Vis Exp. (44), e2259(2010).
- Matheu, M. P., Cahalan, M. D. Isolation of CD4+ T cells from mouse lymph nodes using Miltenyi MACS purification. J Vis Exp. (9), e53319(2007).
- Machholz, E., Mulder, G., Ruiz, C., Corning, B. F., Pritchett-Corning, K. R. Manual Restraint and Common Compound Administration Routes in Mice and Rats. J Vis Exp. (67), e2771(2012).
- Hoff, J. Methods of Blood Collection in the Mouse. Lab Animal. 29 (10), 47-53 (2000).
- Cohen, M., Varki, N. M., Jankowski, M. D., Gagneux, P. Using Unfixed, Frozen Tissues to Study Natural Mucin Distribution. J Vis Exp. (67), e3928(2012).
- Cohen, P. L., Maldonado, M. A. Animal models for SLE. Curr Protoc Immunol.. Chapter 15, Unit 15.20(2003).
- Seavey, M. M., Lu, L. D., Stump, K. L. Animal models of systemic lupus erythematosus (SLE) and ex vivo assay design for drug discovery. Curr Protoc Pharmacol. Chapter 5, Unit 5(2011).
- McKenna, K. C., Vicetti Miguel, R. D., Beatty, K. M., Bilonick, R. A. A caveat for T cell transfer studies: generation of cytotoxic anti-Thy1.2 antibodies in Thy1.1 congenic mice given Thy1.2+ tumors or T cells. J Leukoc Biol. 89 (2), 291-300 (2011).
- Scott, D. M., Ehrmann, I. E., et al. Identification of a mouse male-specific transplantation antigen H-Y. Nature. 376, 695-698 (1995).
- Joly, E., Hudrisier, D. What is trogocytosis and what is its purpose. Nat Immunol. 4 (9), 815(2003).
- Brown, D. R., Calpe, S., et al. Cutting edge: an NK cell-independent role for Slamf4 in controlling humoral autoimmunity. J Immunol. 187 (1), 21-25 (2011).
- Morris, S. C., Cheek, R. L., Cohen, P. L., Eisenberg, R. A. Allotype-specific immunoregulation of autoantibody production by host B cells in chronic graft-versus host disease. J Immunol. 144 (3), 916-922 (1990).
- Choudhury, A., Cohen, P. L., Eisenberg, R. A. B cells require “nurturing” by CD4 T cells during development in order to respond in chronic graft-versus-host model of systemic lupus erythematosus. Clin Immunol. 136 (1), 105-115 (2010).
- Slifka, M. K., Antia, R., Whitmire, J. K., Ahmed, R. Humoral immunity due to long-lived plasma cells. Immunity. 8 (3), 363-372 (1998).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
