Een ideaal model voor het bestuderen van de biologie van volwassen stamcellen is de muis haarfollikel. Hier presenteren we een protocol voor het isoleren van verschillende populaties van haarfollikelstamcellen en epidermale keratinocyten, met behulp van enzymatische vertering van de dorsale muishuid gevolgd door FACS-analyse.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Isoleren haarfollikel stamcellen en epidermale keratinocyten van Dorsale Mouse Skin
In dit artikel
Samenvatting
Samenvatting
De haarfollikel (HF) is een ideaal systeem voor het bestuderen van de biologie en regulatie van volwassen stamcellen (SCs). Dit dynamische mini-orgaan wordt aangevuld door verschillende groepen SCs, die zich bevinden in het permanente deel van de HF, een gebied dat bekend staat als de uitstulping. Deze multipotente uitstulpings-SCs werden aanvankelijk geïdentificeerd als langzaam cyclische labelbehoudende cellen; hun isolatie is echter mogelijk gemaakt na identificatie van specifieke celmarkers, zoals CD34 en keratine 15 (K15). Hier beschrijven we een robuuste methode voor het isoleren van uitstulpings-SCs en epidermale keratinocyten uit muis-HF's met behulp van fluorescentie-geactiveerde celsorteringstechnologie (FACS). Geïsoleerde haarfollikel-SCs (HFSCs) kunnen worden gebruikt in verschillende in vivo graftmodellen en zijn een waardevol in vitro model voor het bestuderen van de mechanismen die multipotentie, rusttoestand en activering bepalen.
Inleiding
Volwassen stamcellen (SC's) zijn essentieel voor het behoud van weefselhomeostase vervangen stervende cellen en beschadigd weefsel te herstellen na letsel. Deze SC's worden gedefinieerd door hun vermogen om voortdurende zelfvernieuwing te ondergaan en te differentiëren in verschillende cellijnen 1-3. De best bestudeerde systemen, die afhankelijk zijn van volwassenen SC's voor hun replenishment zijn, zijn onder andere het hematopoietische systeem, de darm en de huid 1,2,4.
Tijdens embryogenese, de huid begint als een enkele laag van epidermale cellen. Morfogenese van de haarfollikel (HF) start wanneer mesenchymale cellen bevolken de huid en vormen een onderliggende dermis collagene 5. Gespecialiseerd mesenchymale cellen, die later de dermal papilla (DP) vormen, rechtstreeks te organiseren onder de epidermale laag en het stimuleren van het epitheel om haar placodes die beginnen naar beneden 6 groeien vormen. Sterk prolifererende cellen matrix, gelegen aan de voet van de HF,envelop deze mesenchymale cellen en vormen de haarwortel, terwijl de binnenlaag begint te differentiëren in concentrische cilinders de haarschacht (HS) en de omringende binnenste schede (IRS) 2,3 vormen.
In het postnatale leven huidepidermis bestaat uit drie compartimenten: de interfolliculaire epidermis (IFE), de talgklier (SG) en HF. In tegenstelling tot de IFE en SG, die in een constante staat van homeostase, de HF is een dynamische mini-orgaan dat continue cycli van groei (anagen), vernieling (catagen) en rust (telogen) 4,7 ondergaat. De haarfollikel stamcellen (HFSCs) die brandstof dit eeuwige cyclus, wonen in een niche binnen de HF die bekend staat als de bobbel 4. Tijdens Anagen de HFSCs verlaat de bobbel, na activering signalen van de DP, beginnen uitdijende en daal af naar beneden waardoor een lange lineaire spoor van cellen bekend als de buitenste wortel schede (ORS) 8-10. De matrix cellen, datomringen de DP aan de basis van het HF, snelle cyclus migreren opwaartse differentiatie ondergaan waardoor de HS en de IRS 10 (figuur 1) genereren. De duur van anagen bepaalt de lengte van het haar en is afhankelijk van de proliferatie en differentiatie capaciteit van de matrix 6 cellen. Wanneer de HF binnengaat catagene, de transit versterken matrix cellen in de bol niet langer te laten groeien, te ondergaan apoptose en regressie geheel, terwijl het trekken van de DP omhoog totdat deze de niet-cycling deel van het HF 8,11 bereikt. Tijdens dit terugtrekken HF vormt een tijdelijke structuur zogenaamde epitheliale streng, die kenmerkend catagene en bevat vele apoptotische cellen. Bij muizen catagen duurt tussen 3-4 dagen en is sterk gesynchroniseerd in de eerste haarcyclus. Wanneer de HF telogen reikt HFSCs geworden rustig. De verschillende fasen van de HF-cyclus worden ook gekenmerkt door veranderingen in de kleur van de huid van de muis vanwege melanin productie. De huid verandert van zwart tijdens anagen tot donkergrijs tijdens catagen naar roze tijdens telogene 6,7,12,13.
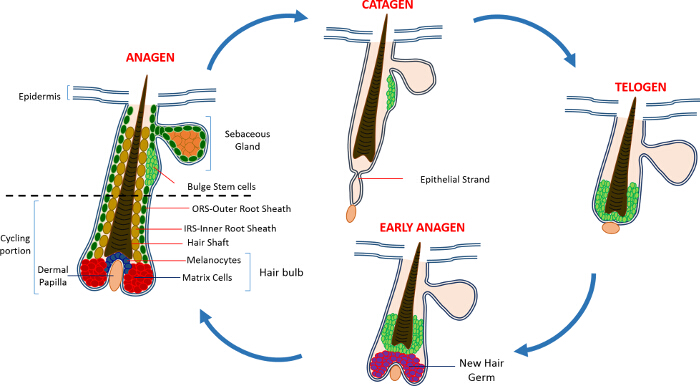
Figuur 1: de haarfollikel Cycle. De HF is samengesteld uit een vast bovenste deel en een onderste voortdurend verbouwen, fietsen gedeelte dat continue cycli van snelle groei (anagen), vernieling (catagen) en een relatieve rust fase of rust (telogene) ondergaat. Klik hier voor een grotere weergave versie van deze figuur.
De SC behoud van de HF werden aanvankelijk geïdentificeerd met behulp van chase experimenten met getritieerd thymidine, dat een bevolking van trage fietsen label behoud van cellen (LRC), die woonde in de permanente regio van de HF net onder de SG 14 geopenbaard. Vooruitgang in HFSCkarakterisatie onthulde een klein aantal markers die kunnen worden gebruikt om specifieke SC identificeren en isoleren van de HF niche 15. Misschien is de beste marker voor de verrijking van HFSCs is CD34, een celoppervlak marker ook geïdentificeerd als een hematopoietische SC marker bij de mens 16. Binnen deze CD34 + populaties twee verschillende populaties ook geïsoleerd gebaseerd op α6 integrine expressie 2. Een andere marker is keratine 15 (K15) die sterk tot expressie gebracht in het bultgebied, co-lokaliseert met CD34 expressie en K15 promoter wordt gebruikt voor het richten en het isoleren HFSCs in transgene dieren 15,17-19. In de afgelopen tien jaar een aantal andere verschillende populaties van HFSCs en voorlopercellen zijn ook gemeld in het HF 17,20-27 te verblijven.
Een extra interessante functie van HFSCs is hun bijdrage aan de huid te herstellen. Onder normale omstandigheden HFSCs vervult de HF en geen deel aan IFE homeostase niet nemen. However, in reactie op verwonding, deze cellen sluiten de SC niche en steun herbevolken IFE 9. We hebben onlangs aangetoond dat muizen verwijderd voor de pro-apoptotische Sept4 / kunst gen weergave een verhoogd aantal CD34, K15 en SOX9 + HFSCs, die een resistentie tegen apoptose te tonen. HFSCs werden geïsoleerd uit Sept4 / kunst - / - dorsale huid gebruikmaking fluorescentie geactiveerde celsortering (FACS) en er was meer dan een tweevoudige toename van het aantal CD34 + en K15 + HFSCs. Deze Sept4 / kunst - / - HFSCs werden geëxpandeerd in vitro en niet alleen gaf aanleiding tot meer kolonies maar konden ook zwaardere omstandigheden te weerstaan in vergelijking met controles 28.
Door met een verhoogd aantal HFSCs, Sept4 / kunst - / - muizen aanzienlijk sneller genezen als reactie op huidexcisie verwondingen. Opvallend Sept4 / ARTS - / - muizen displayeda groot aantal geregenereerd HFs uit de wond bed, en aanzienlijk kleinere littekens. Bovendien, muizen verwijderd XIAP (X-gebonden inhibitor van apoptose), de biochemische doelwit van KUNSTEN, toonde gestoorde genezing 28.
Onze resultaten en de werkzaamheden in andere laboratoria hebben aangetoond dat HFSCs dienen als een ideaal model voor het bestuderen van de biologie en de functie van de volwassen SC. Hier beschrijven we de methode voor de verrijking en isolatie van HFSCs en epidermale keratinocyten basis van de expressie van vier markers: α6 integrine; integrine β1; Sca-1 (een marker voor epidermale keratinocyten) en CD34. Vergelijkbare isolatie van K15 + HFSCs kan ook worden uitgevoerd met behulp van de K15-GFP reporter muis 19.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Deze studie werd uitgevoerd in strikte overeenstemming met de in de Guide geschetst voor de zorg en het gebruik van proefdieren van het ministerie van Volksgezondheid van Israël aanbevelingen. Alle dieren werden behandeld volgens de goedgekeurde institutionele Animal Care protocol IL-02302-2015 van het Technion Israel Institute of Technology.
1. Experimentele Voorbereiding
- Bereiding van gecheleerd foetaal runderserum
Opmerking: Epitheliale cellen zijn erg gevoelig voor calcium dus is het cruciaal om de blootstelling van deze cellen aan calcium controleren. Om te waarborgen dat cellen in de isolatiewerkwijze chelatie geen calcium blootgesteld wordt gebruikt om resten calcium uit het foetaal runderserum gebruikt voor de bereiding van vlekken buffer 29 te verwijderen. Het volgende protocol bereidt ongeveer 1 liter Calcium-vrij foetaal runderserum nodig voor het prepareren FACS kleuring buffer.- Voeg 400 g droog chelerende materiaal, bv., Chelex, in een 4 L beker en voeg gedestilleerd H 2 O tot een totaal volume 4 L. bedekken en roer voortdurend met behulp van een magneetroerder.
- Breng de pH op 7,4 met behulp van 10 N HCl-oplossing onder roeren. Verder roeren gedurende 20 min en opnieuw de pH zonodig om pH stabiel blijft langer dan 20 minuten.
- Incubeer beker bij 4 ° C geïncubeerd om het chelerende materiaal een compacte pellet. Zorgvuldig aspireren H 2 O en voeg vers gedestilleerd H 2 O tot een totaal volume van 4 L.
- Herhaal de pH volgens stap 1.1.2.
- Plaats het bekerglas bij 4 ° C gedurende 1 uur om het chelerende materiaal een compacte pellet. Zorgvuldig aspireren H 2 O.
- Voeg langzaam twee 500 ml flessen foetaal runderserum aan de chelerende materiaal. Roer langzaam bij 4 ° C gedurende 1 uur zodat de snelheid niet belletjes produceert.
- Plaats het bekerglas bij 4 ° C gedurende 1 uur om het chelerende materiaal een comp vormenhandelen pellet.
- Breng voorzichtig het serum in 1 liter glazen fles en filteren door middel van een fles bovenste filter onder steriele omstandigheden. Bewaar de gecheleerde serum bij -20 ° C of onmiddellijk gebruik.
- Bereiding van kleurbuffer
- Bereid 100 ml van 3% gechelateerd FBS in PBS zonder Ca 2+ en Mg 2+ en blijf op ijs.
2. Isolatie van de haarzakjes van Adult Epidermis
- Verdoven muizen met 5% isofluraan met behulp van een inductie-box. De hier beschreven protocol werd geoptimaliseerd met behulp van 50-80 dagen oude muizen die in de telogene fase van de HF-cyclus.
- Euthanaseren muizen volgens de standaard laboratorium procedures. Hier, euthanaseren muizen met behulp van CO 2 overdosis in een euthanasie kamer.
- Scheren alle haren uit de dorsale huid met behulp van elektrische tondeuse. Vermijd het hoofd en ledematen. Houd de tondeuse zo dicht mogelijk bij de huid. Beschadiging van de huid en de onderhuidse laag.
- Als alle haren wordt verwijderd, gebruikt 70% ethanol om eventuele resten te verwijderen haren en de dorsale huid te ontsmetten.
- Plaats de muis op een dissectie pad, en met behulp van een tang trek de huid in de buurt van de staart en een kleine inkeping met een schaar. Snijd de gehele dorsale huid in een posterior-anterior richting door voorzichtig weg te snijden van de huid en het scheiden van de fascia. Beschadiging van de onderhuidse laag.
- Leg de huid op een dissectie mat, haar zijde naar beneden, en vastpinnen twee aangrenzende randen van de huid vast te zetten. Voorzichtig schrapen het vet, met een stomp scalpel tot de dermis is duidelijk en netjes.
Opmerking: Wanneer het afschrapen van het vet, gebruik gebogen pincet om zachte druk uit te oefenen op de huid. Toepassen druk op de huid met het gebogen deel pincetten. Hiermee wordt voorkomen dat de huid tegen scheuren. - Plaats de huid dermis z'n kop, in steriele 100 mm kweekschaal, en strek de huid zodat er geen vouwen. Voeg 10 ml van PBS zonder Ca 2+ en Mg 2+ (PBS -) om de cultuur schotel en strek de huid indien nodig.
- Zuig het PBS en voeg 10 ml van 0,25% trypsine. Zorg ervoor dat de huid is opengevouwen en wordt vrij zwevend. Incubate een stukje huid per 10 ml van 0,25% trypsine.
- Incubeer monsters bij 37 ° C gedurende 30-120 min of bij 4 ° C overnacht.
3. Voorbereiding van enkele celsuspensie van haarzakjes
- Schraap al het haar van de huid met behulp van gebogen pincet en een scalpel, een anterior posterior richting. Houd de huid op zijn plaats met behulp van de gebogen kant van pincet en gebruik maken van de scalpel om af te schrapen het haar.
Opmerking: Schraap het haar in de trypsine oplossing toegevoegd in stap 2,8. Begin bij de staart en volg de richting van de haargroei. Schrapen tegen de richting van de haargroei zal resulteren in een aanzienlijk verlies van HFs en vermindering in cel opbrengst. HFs hebben de neiging om samen te houden aan elkaar en vormen kleine bosjes; teneinde th verminderene grootte van HF clumps proberen te schrapen een klein gebied tegelijk. - Breng de haarloze huid om nieuwe cultuur schotel en voeg 10 ml van PBS - om te voorkomen dat het drogen. Inspecteer de huid en schraap alle resterende haar.
- Breken de HFs met behulp van een scalpel en pincet tot een enkele HF suspensie is verkregen. Krachtig vermaal de HF suspensie met behulp van 10 ml pipet voor een paar minuten te breken alle haren klonten.
Opmerking: Voer alle volgende stappen op ijs. - Breng de HF suspensie in pre-gelabelde 50 ml buis.
- Zuig het PBS - van de huid en gebruik deze om de celkweek gerecht dat de HF schorsing bevatte spoelen; overgebracht in de 50 ml buis.
- het wassen
- Filter de schorsing door het passeren door een 70 um cel zeef gemonteerd op een 50 ml buis. Was de eerste 50 ml buis en het filter met 10 ml vlekken buffer (PBS - met 3% FBS gecheleerde).
- Filter de schorsing door het passerendoor middel van 40 micrometer cel zeef gemonteerd op een 50 ml buis. Was het buisje met 5-10 ml vlekken buffer zodat alle cellen zijn overgebracht naar de nieuwe buis. Houd de suspensie op ijs totdat alle dieren zijn verwerkt.
- Centrifugeer gedurende 15 minuten bij 300 xg bij 4 ° C. Zorgvuldig aspireren supernatant zonder de pellet en resuspendeer pellet in 5 ml vlekken buffer.
- Centrifugeer gedurende 5 minuten 300 xg bij 4 ° C. Zorgvuldig aspireren supernatant en resuspendeer de celpellet in 800 ui buffer kleuring.
Opmerking: De bovengenoemde hoeveelheden voldoende voor het kleuren van cellen afkomstig van twee volwassen muizen.
- Transfer Suspension in Pre-label FACS Tubes.
- Controles buizen, neemt 25-50 ul celsuspensie (of achtergebleven links van de celsuspensie) en vul aan tot een totaal volume van 300 pi met kleurbuffer.
Let op: Bereid controle buizen (totaal volume 300 ul) voor ongekleurd (geen antilichaamen geen DAPI); Alleen DAPI; Integrine β1; Integrine α6; Sca-1; CD34.
- Controles buizen, neemt 25-50 ul celsuspensie (of achtergebleven links van de celsuspensie) en vul aan tot een totaal volume van 300 pi met kleurbuffer.
- Voeg de primaire antilichamen en DAPI (zie Materialen tabel voor geschikte verdunningen) bij de gewenste concentraties om de juiste buisje. Tik zachtjes de buizen aan de celsuspensie te mengen. Het rendement op het ijs en dek af met aluminiumfolie om te beschermen tegen licht.
- Incubeer gedurende 30 min op ijs en voorzichtig flick de buizen elke 10 minuten om te verzekeren cellen in suspensie gehouden.
- Was de cellen door het invullen van elk FACS buis met vlekken buffer (ongeveer 4 ml per buis); centrifugeer 5 min bij 300 xg bij 4 ° C.
- Zorgvuldig aspireren supernatant en resuspendeer de celpellet in 800 ui buffer kleuring.
- Transfer celsuspensie in FACS buis met cel zeef caps om ervoor te zorgen enkele celsuspensie.
4. Flowcytometrieanalyse
- Ga verder met celsortering onmiddellijk met een flowcytometer met de juiste filters voor Signal detectie. Gebruik 405 nm violet (voor metingen van DAPI), 488 nm blauwe (voor metingen van FSC, SSC, PE, PE-Cy7 en FITC) en 633 nm rode laser (voor excitatie van APC)
Opmerking: Zorg ervoor dat het instrument opneemt vanaf detectoren voor alle drie tl-kanalen. - Stel fluorescentie poorten gebaseerd op onbevlekt monsters en compensatie voor de spectrale overlap met behulp van enkele lood controles.
Let op: Gebruik de enkele-lood knoppen voor het aanpassen van de vergoeding tussen de kanalen om eventuele overlap in de fluorescerende signalen te elimineren. Bijstelling zal afhangen van de FACS sorter gebruikt. - Opzetten van primaire poorten gebaseerd op DAPI om dode cellen te sluiten.
- Pas de scatter plot (SSC-A vs FSC-A) om te kiezen voor singlet evenementen.
- Opzetten FSC en SSC hoogte en breedte parameters op te heffen voor het wambuizen en onderscheiding voor singlet evenementen.
- Gate cellen met een hoge α6 en β1 meningsuiting en van deze populatie gate cellen met ofwel CD34 hoge expressie of SCA1 hoge expressie.
- Sorteren cellen in pre-label FACS buis.
Opmerking: Twee algemene celpopulaties kunnen worden geïsoleerd; α6 + / β1 + / CD34 + / Sca-1 - en α6 + / + β1 / Sca-1 + / CD34 -. Gesorteerde cellen op ijs moeten worden bewaard totdat ze gebruikt stroomafwaartse toepassingen zoals celkweek of RNA-isolatie
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Dit protocol beschrijft in detail de verrijking en isolatie van twee soorten populaties. Uitstulping SC's en epidermale keratinocyten Figuur 2 toont de belangrijkste stappen van het protocol. Gebruik makend van de huid verwijderd uit de dorsale achterkant van 8 weken oude muizen, we verrijkt uitstulping SC's met behulp van de CD34 marker, die alleen in HFSCs wordt uitgedrukt; en Sca-1, waarbij epidermale keratinocyten labels. Figuur 3 toont versc...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De hier beschreven protocol is vaste HFSCs voor het isoleren van de dorsale huid van volwassen muizen maar ook kan worden toegepast voor isolatie van andere populaties in de HF structuur, gebaseerd op de selectie van merkers 2,16,23,28,29. Deze werkwijze is bijzonder voordelig ten opzichte van andere methoden voor celisolatie, zoals weefsel dissociatie, dat een specifiek celtype kunnen worden geselecteerd en geoogst uit een mengsel van heterogene celpopulaties. Bovendien is de hier beschreven werkwijze is sne...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te verklaren
Dankbetuigingen
Dit werk werd gedeeltelijk ondersteund door NIH-subsidie RO1GM60124 (aan H.S.). H.S. is een onderzoeker bij het Howard Hughes Medical Institute. Y.F. wordt ondersteund door de Deloro Career Advancement Chair en de German Israeli Foundation (I-2381-412.13/2015). D.S. wordt ondersteund door de Coleman-Cohen post-doctorale fellowship.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Isoflurane | Primal Critical Care | 66794-017-10 | |
| Koolstofdioxide | - | - | |
| Elektroscheerapparaat | Oster | Golden A5 | Scheerapparaten van elk ander bedrijf kunnen worden gebruikt |
| 70% ethanol | Gadot Lab | 830000051 | 96% ethanol verdund met gedistilleerd water |
| Dissectiemat | Dissectie-instrumenten van elke leverancier kunnen worden gebruikt | ||
| Pincet | Dumont | 11251-10 | Pincet van elk ander bedrijf kunnen worden gebruikt |
| Schaar | Dumont | 14094-11 | Scharen van elk ander bedrijf kunnen worden gebruikt |
| Naalden/pins | - | - | |
| Schaar | Albion | 10 | Zorg ervoor dat de schaar een stomp uiteinde heeft |
| Weefselkweekschaaltje 60 mm x 15 mm | Sigma-Aldrich | CLS430166 | |
| PBS | - | In house PBS zonder Calcium en Magnesium | |
| 0,25% Trypsine/EDTA | Biological Industries | 03-050-1A | Trypsine verkregen van een ander bedrijf kan een andere activiteit hebben en de duur van de trypsine-spijsvertering moet dienovereenkomstig worden aangepast |
| Pipetten 10 ml | Sigma-Aldrich | Corning, 4488 | |
| IJs | - | - | |
| 50 ml steriele centrifugeerbuisjes | Minplast Ein-shemer | 35050-43 | |
| 70 µm Celzevener | Fisher | 22362548 | |
| 40 µm Celzevener | Fisher | 22362549 | |
| Kleurbuffer | - | ||
| Centrifuge | Eppendorf 5804 R | 5805 000.017 | |
| FACS-buisjes met Cell strainer-doppen | Falcon | 352235 | |
| FACS-buisjes | Falcon | 352063 | |
| Integrine β1 | eBioscience | 25-0291 | 1:400 |
| Integrine α6 | eBioscience | 15-0495 | 1:600 |
| Sca I | eBioscience | 11-5981 | 1:200 |
| CD34 | eBioscience | 9011-0349 | 1:300 |
| DAPI | Sigma-Aldrich | D9542 | 50 ng/ml |
| Dry Chelex | BioRad | 142-2842 | |
| Kolf | Pyrex | - | |
| Gedestilleerd H2O | - | - | |
| Roerbar | - | - | |
| NHCl | BioLab | 1903059 | |
| Foetaal bovien serum (FBS) | Beit Haemek Biological Industries | 400718 | FBS verkregen van een ander bedrijf kan worden gebruikt |
| 1 L glazen fles | Ilmabor | Boro 3.3 | |
| Flesdopfilter | Autofil | 1102-RLS |
Referenties
- Wagers, A. J., Weissman, I. L. Plasticity of adult stem cells. Cell. 116, 639-648 (2004).
- Blanpain, C., Lowry, W. E., Geoghegan, A., Polak, L., Fuchs, E. Self-renewal, multipotency, and the existence of two cell populations within an epithelial stem cell niche. Cell. 118, 635-648 (2004).
- Fuchs, E. Scratching the surface of skin development. Nature. 445, 834-842 (2007).
- Hsu, Y. C., Fuchs, E. A family business: stem cell progeny join the niche to regulate homeostasis. Nat Rev Mol Cell Biol. 13, 103-114 (2012).
- Blanpain, C., Fuchs, E. Epidermal homeostasis: a balancing act of stem cells in the skin. Nat Rev Mol Cell Biol. 10, 207-217 (2009).
- Alonso, L., Fuchs, E. The hair cycle. J Cell Sci. 119, 391-393 (2006).
- Muller-Rover, S., et al. A comprehensive guide for the accurate classification of murine hair follicles in distinct hair cycle stages. J Invest Dermatol. 117, 3-15 (2001).
- Zhang, Y. V., Cheong, J., Ciapurin, N., McDermitt, D. J., Tumbar, T. Distinct self-renewal and differentiation phases in the niche of infrequently dividing hair follicle stem cells. Cell Stem Cell. 5, 267-278 (2009).
- Ito, M., et al. Stem cells in the hair follicle bulge contribute to wound repair but not to homeostasis of the epidermis. Nat Med. 11, 1351-1354 (2005).
- Hsu, Y. C., Pasolli, H. A., Fuchs, E. Dynamics between stem cells, niche, and progeny in the hair follicle. Cell. 144, 92-105 (2011).
- Fuchs, E. The tortoise and the hair: slow-cycling cells in the stem cell race. Cell. 137, 811-819 (2009).
- Plikus, M. V., Chuong, C. M. Complex hair cycle domain patterns and regenerative hair waves in living rodents. J Invest Dermatol. 128, 1071-1080 (2008).
- Ito, M., Kizawa, K., Hamada, K., Cotsarelis, G. Hair follicle stem cells in the lower bulge form the secondary germ, a biochemically distinct but functionally equivalent progenitor cell population, at the termination of catagen. Differentiation. 72, 548-557 (2004).
- Cotsarelis, G., Sun, T. T., Lavker, R. M. Label-retaining cells reside in the bulge area of pilosebaceous unit: implications for follicular stem cells, hair cycle, and skin carcinogenesis. Cell. 61, 1329-1337 (1990).
- Cotsarelis, G. Epithelial stem cells: a folliculocentric view. J Invest Dermatol. 126, 1459-1468 (2006).
- Trempus, C. S., et al. Enrichment for living murine keratinocytes from the hair follicle bulge with the cell surface marker CD34. J Invest Dermatol. 120, 501-511 (2003).
- Morris, R. J., et al. Capturing and profiling adult hair follicle stem cells. Nat Biotechnol. 22, 411-417 (2004).
- Lyle, S., et al. The C8/144B monoclonal antibody recognizes cytokeratin 15 and defines the location of human hair follicle stem cells. J Cell Sci. 111 (Pt 21), 3179-3188 (1998).
- Liu, Y., Lyle, S., Yang, Z., Cotsarelis, G. Keratin 15 promoter targets putative epithelial stem cells in the hair follicle bulge. J Invest Dermatol. 121, 963-968 (2003).
- Vidal, V. P., et al. Sox9 is essential for outer root sheath differentiation and the formation of the hair stem cell compartment. Curr Biol. 15, 1340-1351 (2005).
- Snippert, H. J., et al. Lgr6 marks stem cells in the hair follicle that generate all cell lineages of the skin. Science. 327, 1385-1389 (2010).
- Nijhof, J. G., et al. The cell-surface marker MTS24 identifies a novel population of follicular keratinocytes with characteristics of progenitor cells. Development. 133, 3027-3037 (2006).
- Jensen, U. B., et al. A distinct population of clonogenic and multipotent murine follicular keratinocytes residing in the upper isthmus. J Cell Sci. 121, 609-617 (2008).
- Jensen, K. B., et al. Lrig1 expression defines a distinct multipotent stem cell population in mammalian epidermis. Cell Stem Cell. 4, 427-439 (2009).
- Jaks, V., et al. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat Genet. 40, 1291-1299 (2008).
- Horsley, V., et al. Blimp1 defines a progenitor population that governs cellular input to the sebaceous gland. Cell. 126, 597-609 (2006).
- Goldstein, J., Horsley, V. Home sweet home: skin stem cell niches. Cell Mol Life Sci. 69, 2573-2582 (2012).
- Fuchs, Y., et al. Sept4/ARTS regulates stem cell apoptosis and skin regeneration. Science. 341, 286-289 (2013).
- Nowak, J. A., Fuchs, E. Isolation and culture of epithelial stem cells. Methods Mol Biol. 482, 215-232 (2009).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
