Eiwitten vaak meerdere domeinen die verschillende cellulaire functies kunnen uitoefenen. Gene knock-outs (KO) beschouw dit niet als functionele diversiteit. Hier melden wij een recombinatie-gemedieerde cassette uitwisseling (RMCE) gebaseerde structuur-functie benadering KO embryonale stamcellen waarmee de moleculaire dissectie van verschillende functionele domeinen of varianten van een eiwit.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Structuur-functie studies in muis embryonale stamcellen gebruiken recombinase-gemedieerde cassette uitwisseling
In dit artikel
Samenvatting
Samenvatting
Genmanipulatie in muizenembryo's of embryonale stamcellen (mESCs) maakt voor de studie van de functie van een bepaald eiwit. Eiwitten zijn de werkpaarden van de cel en vaak uit meerdere functionele domeinen, die kan worden beïnvloed door posttranslationele modificaties. De uitputting van het gehele eiwit in conditionele of constitutief knock-out (KO) muizen geen rekening houden met deze functionele diversiteit en regelgeving. Een mES lijn en een afgeleide muismodel, waarbij een docking site voor FLPe-recombinatie gemedieerde cassette uitwisseling (RMCE) binnen de ROSA26 (R26) locus was ingebracht, werd eerder beschreven. Hier doen we verslag van een structuur-functie benadering die het mogelijk maakt voor de moleculaire dissectie van de verschillende functionaliteiten van een multidomein eiwit. Daartoe moet RMCE compatibele muizen worden gekruist met KO muizen en RMCE-compatibele KO mESCs moeten worden geïsoleerd. Vervolgens kan een panel van vermeende redding constructen worden geïntroduceerd in de R26 locus via RMCE targeting. De kandidaat rescue cDNAs kunnen gemakkelijk ingebracht tussen RMCE plaatsen van de richtende vector door middel van recombinatie klonering. Vervolgens worden KO mESCs getransfecteerd met het richtende vector in combinatie met een FLPe recombinase expressieplasmide. RMCE reactiveert het promoter-loze neomycine-resistentiegen in het ROSA26 aanlegplaatsen en maakt de keuze van de juiste targeting. Daardoor worden hoge targeting efficiëntie bijna 100% verkregen, waardoor het inbrengen van meerdere mogelijke redding constructen in een semi-high throughput manier. Tenslotte kan een veelvoud van R26-aangedreven rescue constructen worden getest op hun vermogen om het fenotype dat waargenomen ouderlijke KO mESCs redden. We presenteren een proof-of-principle structuur-functie studie p120 catenine (p120ctn) KO mESCs behulp endoderm differentiatie embryo lichamen (EB's) als fenotypische uitlezing. Deze benadering maakt de identificatie van belangrijke domeinen vermoedelijke stroomafwaartse routes en ziekte-relevante gegevensmutaties die KO fenotypes voor een bepaald eiwit ten grondslag liggen.
Inleiding
Geschat wordt dat zoogdieren genomen bevatten ongeveer 20.000 eiwitcoderende genen. Alternatief splitsen en posttranslationele modificaties verder te verhogen het eiwit repertoire. Eiwitten een modulaire constructie 1 en bevatten vaak meerdere interactie-domeinen, waardoor hun rekrutering in verschillende eiwitcomplexen en hun deelname aan verschillende celprocessen 2 mogelijk. Een voorbeeld is de multifunctionele eiwit genaamd p120ctn. p120ctn wordt gecodeerd door het gen Ctnnd1 en bestaat uit een groot centraal armadillo herhalende domein geflankeerd door een N-terminale en C-terminale gebied. De armadillo domein van p120ctn bindt aan een sterk geconserveerd juxtamembraandomein klassieke cadherinen, die betrokken zijn bij cel-cel adhesie, maar bindt ook aan de transcriptionele repressor Kaiso. Het N-terminale domein van p120ctn interageert met andere kinasen, fosfatasen, kleine RhoGTPases en microtubule geassocieerde pProteins 3. Interessant is dat als gevolg van alternatieve splicing, p120ctn isovormen kunnen worden gegenereerd uit vier alternatieve startcodons 4. p120ctn isovorm 1A is het langst, zoals vertaald vanaf de meest 5' startcodon en bevat de volledige lengte N-eindstandige segment. In p120ctn isovormen 3 en 4, wordt dit N-eindstandige segment gedeeltelijk en volledig respectievelijk verwijderd. Inzicht in de precieze rol van eiwitten (of eiwit isovormen) en hun domeinen in verschillende cellulaire functies blijft een uitdaging.
Gen-targeting in mESCs maakt het bestuderen van de functie van een proteïne door genetische deletie van het overeenkomstige gen en heeft een grote bijdrage tot de identificatie van ontwikkelings belangrijk en ziekte-relevante genen en pathways. Deze doorbraak in reverse genetics was het gevolg van de ontwikkelingen op het gebied van mES isolatie en gene targeting als gevolg van homologe recombinatie 5 . Homologe recombinatie is een werkwijze waarbij DNA-fragmenten worden uitgewisseld tussen twee gelijkaardige of identieke nucle- resten na dubbelstrengs (ds) DNA-breuken. Normaal gesproken, HR is inefficiënt omdat dsDNA pauzes zijn zeldzaam. Onlangs zou de efficiëntie van homologie gerichte gerichte mutagenese worden verhoogd middels plaatsspecifieke nucleasen 6, 7, maar helaas zijn deze gevoelig voor off-doeleffecten 8. Een meer betrouwbare techniek voor gen targeting inschakelen is RMCE, die gebaseerd is op plaatsspecifieke recombinatie systeem zoals Cre / loxP of FLPe / Frt. LoxP en Frt sequentie in bacteriofaag P1 en Saccharomyces cerevisiae, respectievelijk, en bestaan uit 34 bp, waaronder een asymmetrische 8 bp sequentie die de oriëntatie van de site bepaalt. Anderzijds de oriëntatie van, bijvoorbeeld twee loxP plaatsen in de DNA strook bepaalt of de floxed DNA wordt uitgesneden of inversed upon Cre gemedieerde recombinatie 9. Bovendien kan Cre ook translocatie induceert wanneer twee plaatsen zich op verschillende chromosomen. RMCE maakt hiervan heterospecifiek recombinatie locaties die niet kruisreageren en die zijn ingebed in een genomische locus. In aanwezigheid van een donor plasmide dat een DNA-fragment geflankeerd door dezelfde heterospecifiek plaatsen bevat, zal de recombinase dit DNA-fragment in te voegen in de RMCE-compatibele genomische locus verdubbelen als gevolg van gelijktijdige translocatie (figuur 1). Hier kunnen alleen correct RMCE gerichte klonen render geneesmiddelresistentie door een promotor van de inkomende vector die herstelt een "gevangen" promoter-less neomycine resistentiegen (neo R) in de R26 genoom van het docking cellen (figuur 1) 10, 11. Dit resulteert in een zeer hoge targeting efficiency, vaak in de buurt van 100% 11, </ sup> 12. Concluderend-RMCE gebaseerde targeting is zeer efficiënt en kan worden gebruikt voor structuur-functie studies; echter, het vereist een prefab genomische locus.
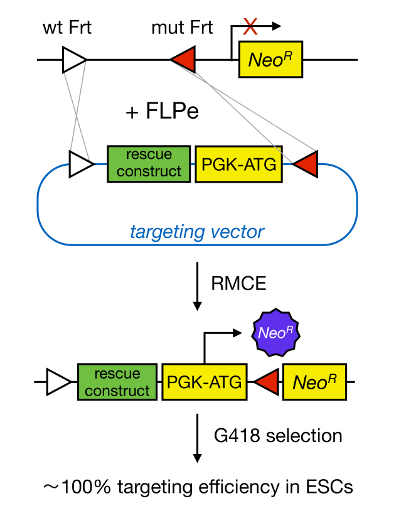
Figuur 1. Schematische weergave van RMCE-gemedieerde targeting. RMCE maakt de uitwisseling van DNA-segmenten uit een inkomend richtende vector op een bepaalde genomische locus als zowel haven heterospecifiek twee FRT-plaatsen (aangegeven door witte en rode driehoekjes). Bovendien, de gemanipuleerde genome locus bevat een promoter en afgeknot neomycine-resistentie (Neo R) gen. Door een promoter en startcodon in het inkomende DNA-fragment, enige juiste recombinatiegebeurtenissen herstellen neomycine resistentie, wat resulteert in hoge rendementen targeting. Klik hier om een grotere versie van t bekijkenzijn figuur.
Genome Engineering in mESCs maakt het mogelijk om het genereren van RMCE-compatibele muizen. In 1981, twee slaagden in het vastleggen van pluripotente cellen van de binnenste celmassa (ICM) van blastocysten en het handhaven in kweek 13, 14. mESCs in staat zijn zelfvernieuwing en differentiatie tot alle embryonale en volwassen cellen, inclusief de geslachtscellen-cellijn. Daarom gen-targeting in mESCs maakt reverse genetische studies door de ontwikkeling van constitutieve of voorwaardelijke (via het Cre / loxP systeem) KO muizen. Echter, de klassieke manier om de muis ES-cellen te isoleren is zeer inefficiënt. Aantal belangrijke verbeteringen sterk verhoogd succes voor het afleiden mES lijnen, inclusief het gebruik van een bepaald serum-vervanging (SR) -medium 15, afwisselend mES medium met SR en foetaal runderserum (FBS) 16 en het gebruik farmacologische verbindingen zoals pluripotin of 17 2i. Pluripotin, een klein synthetisch molecuul, maakt de voortplanting van mESCs in een ongedifferentieerde toestand bij afwezigheid van leukemie remmende factor (LIF) en muis embryonale fibroblasten (MEF) 18. Tenslotte is aangetoond dat mESCs kan worden geïsoleerd met een zeer hoog rendement (bijna 100%) wanneer een SR / FBS medium afwisseling protocol wordt gecombineerd met LIF en pluripotin 19, 20. Deze protocollen maken de efficiënte isolatie van RMCE-compatibele KO mESCs die vervolgens kunnen worden gebruikt voor structuur-functie studies.
Dit artikel beschrijft een werkwijze die het mogelijk maakt om de belangrijkste domeinen of resten te identificeren in een eiwit dat verantwoordelijk is voor specifieke cellulaire processen. Te dien einde, een pijpleiding van geavanceerde technologieën die het mogelijk maken een efficiënte mES isolatie, targeting vector assemblage en mES targeting was creërend. Als zodanig grote panelen met eiwit isovormen, domain mutanten en downstream effectoren in KO mESCs kan worden ingevoerd en kan worden geëvalueerd op hun vermogen om de in vitro KO fenotype te redden.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle experimenten met muizen werden uitgevoerd volgens institutioneel, nationaal en Europees dierenpaspoort regelgeving.
1. Isolatie van RMCE-compatibele KO mESCs
- Ras heterozygote KO muizen met RMCE-compatibele muizen, zoals ROSALUC muizen 10 of ROSA26-iPSC 21 muizen. Beide RMCE-compatibele muizen werden gehouden op een gemengd 129 / C57BL6 / Swiss achtergrond.
LET OP: De kruising met heterozygote KO muizen wordt geadviseerd om embryonale dodelijkheid overwinnen in homozygote KO muizen. - Met PCR heterozygote knock-out muizen die een RMCE cassette in de R26 locus 12 selecteren.
- Ras RMCE-compatibel, heterozygote knock-out muizen met heterozygote KO muizen en isoleren RMCE-compatibel, homozygote KO blastocysten.
- Stel de tijd paringen in de avond en te controleren op copulatie de volgende ochtend stekkers.
OPMERKING: Stekkers zijn gemaakt van gestold afscheiding uit de coagulerende en blaasvormige klieren van de mannelijke.Deze pluggen vul de vagina van het vrouwelijke en aanhouden gedurende 8-24 uur na kweek. Plugged vrouwen worden geacht te zijn het dragen van 0,5 dpc (dagen na coïtus) embryo's.- Om te controleren op stekkers, til de vrouw door de basis van haar staart en door het bestuderen haar vaginale opening voor een witachtige massa. Spreid de schaamlippen enigszins met een schuine probe wanneer de plug is moeilijk te zien. Aparte aangesloten vrouwtjes van hun mannelijke.
- Verzamel blastocysten op 3,5 dpc.
- Euthanaseren zwangere vrouwtjes door de goedgekeurde methode (bijvoorbeeld cervicale dislocatie). Voeg een midventral incisie en ontleden de baarmoeder en eileider (nog aan elkaar) met behulp van fijne schaar en forceps.
- Buig een 26-gauge naald in een hoek van 45 °. Bevestig een 1 ml spuit met M2-medium bij het gebogen naald en gebruik deze om de blastocysten uit de baarmoeder spoelen in de deksel van een 10-cm schaal.
- Steek de naald in het uiteinde van de baarmoeder die het dichtst bijde eileider. Houd de naald vast met fijne tang tijdens het duwen van de plunjer; zwelling van de baarmoeder wijst op een succesvolle blozen.
- Gebruik een mond pipet (met een diameter van 100-200 pm) waardoor alle embryo's te verzamelen en was ze twee keer in een druppel vers M2 medium. Onmiddellijk na het wassen, overdracht van de blastocysten om de cultuur platen (zie hieronder).
OPMERKING: De dissectie en behandeling van blastocysten van moet worden gedaan in laminaire luchtstroom.
- Stel de tijd paringen in de avond en te controleren op copulatie de volgende ochtend stekkers.
- Isoleer RMCE-compatibele KO mESCs
- Bereid een 12-wells plaat met mitomycine-C behandelde DR4 MEF (zie de tabel van Materials) één dag voor de blastocyst isolement.
Opmerking: Deze MEFs werden geïsoleerd uit Tg (DR4) 1Jae / J muizen die vier drug-selecteerbare genen bevatten en resistentie verlenen tegen néomycine, puromycine, hygromycine en 6-thioguanine 22.- Smeer alle kweekplaten met 0,1% gelatine. Voeg 0,1% gelatinede kweekplaten, incubeer gedurende 5 minuten bij 37 ° C in 5% CO2, en zuig de gelatineoplossing. Zaad een kwart flesje P2 MEFs in een 12-putjesplaat en groeien ze in 2 ml MEF medium (zie Tabel 1, Tabel Materials) een confluente monolaag 19.
- Inactiveren ze met mitomycine C (10 ug / ml) gedurende 3 uur en tweemaal wassen met fosfaatgebufferde zoutoplossing (PBS) 19.
- Gebruik mondpipet, plaat de blastocysten op gegelatiniseerde 12-well platen (1 en / embryo), met mitomycine-C behandelde MEFs in SR-ES-celmedium (2 ml / putje) aangevuld met ofwel 2 uM pluripotin of 2i (1 uM remmer Erk PD0325901 en 3 uM GSK3 remmer CHIR99021). Incubeer bij 37 ° C in 5% CO2.
- Vernieuw de SR-ES-cel medium (aangevuld met pluripotin of 2i) om de 2-3 dagen.
- Onderzoek elk blastocyst onder een stereomicroscope in 4,0X vergroting en controleer uitkomen en bevestiging aan de MEF laag.
OPMERKING: Wanneer blastocysten uitkomen, verliezen ze de zona pellucida die hen samenbrengt. Wells met losse blastocysten moeten worden vernieuwd met de mond pipetteren. - Pick individuele ICM uitwassen (met behulp van een stereomicroscoop) na 10 - 12 dagen culture met behulp van een P10 pipet met wegwerp tips. Breng de uitgroei bij ongeveer 10 ul medium om een V-vormig, 96-wells plaat met 30 ul / putje PBS (bij kamertemperatuur).
- Voeg 50 ul van 0,25% trypsine aan elk putje met een multichannel pipet en incubeer gedurende 3 min bij 37 ° C in 5% CO2.
- Voeg 100 ul van FBS bevattend medium mES; dissociëren de ICM uitwassen in afzonderlijke cellen door pipetteren 10-15 keer; en overdragen van de gedissocieerde cellen mitomycine-C behandelde 96-well platen MEF die een dag werden bereid vóór de ICM kolonies worden opgepikt.
- Vanaf deze stap verder, omi t pluripotin of 2i van het mES medium. De volgende dag, verandert het medium uit FBS- tot SR-bevattende mES (100 ul / putje).
- Vouw de gevestigde mES lijnen van 96- tot 24-well formaat 19.
- Spoel de cellen met 200 pl PBS, voeg 50 ul trypsine en incubeer gedurende 5 minuten bij 37 ° C in 5% CO Voeg 100 ul van FBS-gebaseerde mES medium.; dissociëren pipetteren 10-15 keer met een multichannel pipet; en overdragen van de gedissocieerde cellen mitomycine-C behandelde, 24-wells platen MEF.
- Wissel naar-SR medium op basis van de volgende dag. Vouw de mESCs op een vergelijkbare manier van 24- tot en met 6 putjes. Voeg 3-4 freezings uit een confluente 6-well plaat 19.
- Identificeer RMCE-compatibel, homozygote KO mESCs behulp van PCR primers voor de R26 locus 23 en KO allel van keuze (in casu p120ctn; PCRs voor p120ctn waardeloos floxed allelen beschreven vóórlass = "xref"> 12).
- Bereid een 12-wells plaat met mitomycine-C behandelde DR4 MEF (zie de tabel van Materials) één dag voor de blastocyst isolement.
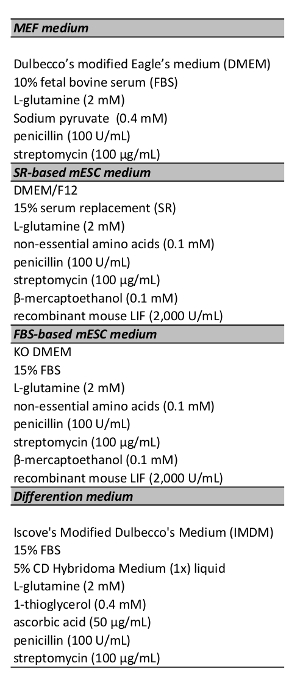
Tabel 1. Culture Media. Alle media werden bij 4 ° C en opgewarmd tot 37 ° C 30 min vóór gebruik.
2. Genereren van een RMCE-compatibele Targeting vector door middel van recombinatie Klonen
- Kloon hulp constructen in recombinatie-verenigbare vectoren onder gebruikmaking van restrictie-enzym (RE) gebaseerde of PCR-gebaseerde 24 kloneringstechnieken. Zorg ervoor dat de cDNA's bevatten een stopcodon.
- Ontwerp AttB-gelabeld primers 24. Zorgen dat de voorwaartse primer bevat de volgende elementen: a GGGG rek, een AttB1 site, een koppelaar, een Kozak sequentie en ongeveer 25 nucleotiden reddings- cDNA (te beginnen met de ATG). Zorg ervoor dat de omgekeerde primer heeft een soortgelijke samenstelling: een GGGG stretch, een attB2 site, een linker, en ongeveer 25 nucleotides van rescue cDNA (omgekeerde complement).
- Amplificeren het cDNA redding via PCR voor AttB-geflankeerd cDNA te verkrijgen.
- Voer een 10-ul BP reactie met 100 ng AttB-geflankeerd cDNA en 150 ng recombinatie-compatibele donor vector, die een kanamycine-resistentiegen bevat.
- Transformatie 5 pl van de BP mengsels warmteschok-competente MC1061 Escherichia coli (E. coli) bacteriën (vergelijkbaar met die in stap 2.3).
- Identificeren van kolonies die de juiste rescue-cDNA bevattende vectoren (vergelijkbaar met die beschreven in stap 2.4)
- Voer een 10-pl LR reactie met 100 ng rescue-cDNA bevattende vector; 150 ng Cre-uitgesneden pRMCE-DV1 vector 11 (LMBP 8195); en 2 pi van recombinase mix, die een faag-gecodeerde integrase en excisionase en bacteriële integratie gastheer factor bevat. Incubeer gedurende 2 uur bij 25 ° C.
Opmerking: Een LR reactie is een recombinatie reactieion waarin een invoer kloon met attL locaties en een bestemmingsvector die attR-plaatsen gerecombineerd worden door de LR-clonase enzymmengsel. Dit leidt tot een expressie kloon die attB locaties flankeren het gen van belang. - Transformatie 5 pl van de LR mengsels warmteschok-competente MC1061 E. coli bacteriën.
- Voeg 5 ul van LR mengsels geribd, rokken, 2 ml schroefdop buis met 40 pl warmteschok-competente E. coli bacteriën en incubeer gedurende 20 minuten op ijs. Incubeer gedurende 5 minuten bij 37 ° C.
- Voeg 1 ml Luria-bouillon (LB) medium en incubeer gedurende 1 uur bij 37 ° C. Plaat 50 pl op ampicilline (Amp; 100 gg / ml) bevattende agarplaten en gedurende de nacht groeien bij 37 ° C.
- Identificeer de kolonies met de juiste targeting vector.
- Pick 5 kolonies willekeurig gebruik van een p200 tip. Breng de tip om een glazen reageerbuis met 2-5 ml LB-medium en gedurende de nacht groeien bij 37 ° C.
- Exdarmkanaal het plasmide DNA van de bacteriële kweken met behulp van commercieel verkrijgbare kits.
- Valideren ze met behulp van RE verteert en sequencing. Cut 0,5-2 pg plasmide gebruik van 0,2 ui RE (20 U / pl) en 1 pi van de overeenkomstige 10x buffer in 10 pi reactie. Incubeer gedurende ten minste 1 uur bij 37 ° C en gescheiden op een 1% agarosegel. Selecteren van kolonies met het voorspelde patroon van DNA fragmenten.
- Analyseer de bevestigde vectoren (50 ng / pl) met Tlox F (ATC ATG TCT GGA TCC CCA TC) en IRES R (GCG GGG GAA TTC GAT ATC AAG) primers (5 pmol / ul) via Sanger sequentiebepaling.
3. RMCE-gemedieerde mES Richten van Rescue Constructen de R26 Locus
- Start een cultuur van RMCE-compatibele KO mESCs en passage hen ten minste tweemaal op MEFs in FBS-gebaseerde mES medium. Splits de mESCs op een ontsloten 6-well plaat.
- Op de volgende dag, vernieuwen van de cellen, op ongeveer 50% samenvloeiing, met 1,5ml FBS-gebaseerde mES medium en het transfecteren mESCs met een Cre-uitgesneden pRMCE-DV1 richtende vector die cDNA redding.
- Maak een DNA-mix. Voeg 1 ug targeting vector en 1 ug FLPe-expressieplasmide 25-250 pl zuivere DMEM medium.
- Maak een lipofectie mix. Voeg 7 pl-lipofectie gebaseerd transfectiereagens (bijvoorbeeld Lipofectamine 2000) 250 pi zuivere DMEM medium en incubeer gedurende 5 minuten bij kamertemperatuur (RT).
OPMERKING: Vergelijkbare RMCE targeting efficiënties werden verkregen met behulp van andere lipofectie-gebaseerde reagentia (bijvoorbeeld Lipofectamine LTX en Effectene). - Meng de DNA mix met lipofectie mix en incubeer gedurende 20 minuten bij kamertemperatuur. Pipetteer de transfectie mengsel op de vernieuwde mESCs. Roer voorzichtig en laat het een nacht.
- Eén dag na transfectie gesplitst alle mESCs van de 6-well plaat op 10 cm kweekschaal een confluente laag van DR4 MEFs en 10 ml FBS-gebaseerde mESC medium.
- Twee dagen na transfectie, selecteert mES klonen met de juiste FLPe-gemedieerde cassette uitwisseling door toevoeging van 0,2 mg / ml G418 (100x) aan het medium.
OPMERKING: Maak een kill curve voor elke partij van de G418 om de laagste concentratie van G418 dat alle mESCs doodt identificeren. - Vernieuw de mESCs dagelijks met G418 bevat mES medium. Kolonies moet verschijnen na 7-10 dagen, dus kies en uit te breiden deze als per stap 1.4.
- Bevestig de correcte klonen door PCR 11.
4. Differentiatie van mESCs in embryoiden lichamen (EB's)
- Start een cultuur van KO mESCs met R26-gedreven rescue bouwt en passage hen ten minste tweemaal op MEFs in FBS-gebaseerde mES medium. Passage de mESCs eenmaal op ontsloten 6-well platen om zich te ontdoen van de MEF.
- Was met PBS en trypsinize de bijna-confluente mES culturen. Plaat gedissocieerd mESCs in verschillende verdunningen (1/20 en 1/40) op niet-hechtende bacteriën kwaliteit petri-gerechten in differentiatie medium.
- Laat EBS te vormen in deze gerechten voor 30 dagen. Vernieuwen het medium elke 2-3 dagen met behulp van de volgende procedure: breng de EB suspensie op 50 ml buis, laat de EBS bezinken door de zwaartekracht, de bovenstaande vloeistof, voeg vers medium en breng de EB suspensie naar een bacterieel-grade schotel.
- Analyseer de beoogde mESCs en EBS immunofluorescentie en transmissie elektronenmicroscopie via protocollen die eerder 12 beschreven.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De procedure voor RMCE-compatibele KO mES lijnen te isoleren is weergegeven in figuur 2. Twee opeenvolgende dekkingen zijn verplicht om RMCE-compatibele KO blastocysten te verkrijgen. Eerst worden heterozygote KO muizen gekruist met RMCE-compatibele muizen om RMCE-compatibele, heterozygote KO muizen te verkrijgen. Deze muizen worden vervolgens gebruikt voor getimede paringen met andere heterozygote KO muizen 3,5 dpc, RMCE-compatibele homozygote KO blastocysten verkregen....
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Onze mES isolatie methode is gebruiksvriendelijk en vereist geen geavanceerde vaardigheden of apparatuur, zoals microchirurgie van blastocysten. Zo, deze technologie is toegankelijk voor een groot deel van de wetenschappelijke gemeenschap. Iedereen met basic celkweek ervaring kan voortplanten ICM uitwassen en stellen mESCs lijnen. Echter, de spoelen en de behandeling van blastocysten enige oefening vereist. Een mond pipet wordt gebruikt om blastocysten overdracht en bestaat uit een micropipet, een micropipet houder, sla...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Wij danken Jinke D'Hont, Frederique Van Rockeghem, Natalie Farla, Kelly Lemeire en Riet De Rycke voor hun uitstekende technische ondersteuning. We danken ook Eef Parthoens, Evelien Van Hamme, en Amanda Goncalves uit de bio-imaging Core Facility van de Ontsteking Onderzoekscentrum voor hun deskundige hulp. Wij erkennen de leden van onze onderzoeksgroep voor waardevolle discussies. Dit werk werd ondersteund door het Federaal Wetenschapsbeleid (Belspo Interuniversitaire attractiepolen - Award IAP VII-07 DevRepair; https://devrepair.be), door de Geneeskundige Stichting Koningin Elisabeth, België (GSKE 2008-2010; http: // www .fmre-gske.be), en door de gecoördineerde Research Actions (GOA 01G01908) van de Universiteit Gent, België (http://www.ugent.be/en/ghentuniv). SG is een postdoctoraal onderzoeker van het Flanders Research Funds (FWO-V).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| ROSALUC Muizen | gemaakt in huis | ingevroren sperma beschikbaar op aanvraag | |
| R26-iPSC muizen | gemaakt in huis | ingevroren sperma beschikbaar op aanvraag | |
| Vessel sonde | Fine Science Tools | 10160-13 | om te controleren op copulatie-plugs |
| M2 medium | Sigma-Aldrich | M7167 | maak aliquots en bewaar bij -20 °C |
| Fijne pincet (Dumont #5 Standaardtip Studenten pincet) | Fine Science Tools | 11251-10 | spuit met 70% EtOH voor gebruik (niet autoclaven) |
| 23 G naalden | Fine-ject | 8697 | |
| 1-mL spuiten | Soft-ject | 6680 | |
| 60-mm bacteriële kwaliteitsplaten (voor flushing) | Gosselin | BB60-01 | |
| Mondpijp | gemaakt in huis | zie discussie | |
| Muizen embryonale fibroblasten (MEFs, TgN (DR4)1 Jae stam) | ATTC | SCRC-1045 | |
| TgN (DR4)1 Jae muizen | The Jackson Laboratory | 3208 | |
| Mitomycin C | Sigma-Aldrich | M0503 | |
| Fosfaat gebufferde zoutoplossing (PBS) zonder calcium of magnesium | Gibco | 14190-094 | |
| Tg(DR4)1Jae/J muizen | JAX | 3208 | muizen die vier drug-selecteerbare genen bevatten en DR4 MEFS biedt weerstand tegen neomycine, puromycine, hygromycine en 6-thioguanine |
| 0.1% Gelatine | Sigma-Aldrich | G1393 | Los 0.5 g op in 500 mL gedistilleerd water, autoclaveer en bewaar bij 4 °C. |
| Trypsine (0.25%) | Gibco | 25200-056 | |
| 2 μM pluripotin | Cayman Chemical | 10009557 | |
| pRMCE-DV1 | BCCM/LMBP collectie | LMBP 08870 | openbaar beschikbaar vanuit de BCCM/LMBP collectie (http://bccm.belspo.be) |
| cre-uitgesneden pRMCE-DV1 | BCCM/LMBP collectie | LMBP 08195 | openbaar beschikbaar vanuit de BCCM/LMBP collectie (http://bccm.belspo.be) |
| pCAG-FlpE-IRES-Puro-pA | Addgene | 20733 | |
| heat-shock competent DH5α bacteriën | gemaakt in huis | ||
| Gateway pDONR221 vector | Thermo Fisher | 12536-017 | bevat kanamycine-weerstandsgen |
| BP clonase II mix | Thermo Fisher | 11789-020 | |
| LR clonase II mix | Thermo Fisher | 11791-020 | |
| Luria Broth (LB) | |||
| Ampicilline | |||
| Applied Biosystems 3730XL DNA Analyzer | Thermo Fisher | 3730XL | |
| G418 | Thermo Fisher | 11811-023 | |
| Lipofectamine 2000 transfectiereagens | Thermo Fisher | 11668027 | |
| Lipofectamine LTX transfectiereagens | Thermo Fisher | 15338100 | |
| Effectene transfectiereagens | Qiagen | 301425 | |
| GATEWAY pENTR 1A vector | Thermo Fisher | A10462 | recombinatie-compatibel vector |
| muis monoklonaal anti-p120ctn antilichaam | BD Transduction Laboratories | 610134 | |
| muis monoklonaal anti-Ecadherin antilichaam | BD Transduction Laboratories | 610181 | |
| Algemein gereedschap | |||
| Steriele dissectietools | fijne schaar en pincet voor het disseceren van de baarmoeder | ||
| Steriele pipetten: 5 mL, 10 mL en 25 mL | |||
| 15-mL en 50-mL conische centrifugeerbuizen | |||
| 96-wells kweekplaten V-vormige bodem en platte bodem) | |||
| Kweekschalen: 24 wells, 12 wells en 6 wells | |||
| Multikanaals pipetten (voor het pipetteren van 30, 50, 100 en 200 µL) | |||
| Steriele multikanaals reservoirs | |||
| Toegang tot een laminaire luchtstroom | |||
| Toegang tot een incubator bij 37 °C met 5% CO2 | |||
| Toegang tot een omgekeerd microscoop | |||
| Toegang tot een tafelcentrifuge | |||
| Toegang tot een stereomicroscoop met doorgelaten licht | |||
| Kweekmedia | |||
| MEF Medium | opgeslagen bij 4 °C; warm 30 min bij 37 °C voor gebruik | ||
| Dulbecco's gemodificeerde Eagle's medium (DMEM) | Gibco | 41965-062 | |
| 10% foetaal bovien serum (FBS) | Sigma-Aldrich | F-7524 | |
| L-glutamine (2 mM) | Gibco | 25030-024 | |
| Natriumpyrovaat (0.4 mM) | Gibco | 11360-039 | |
| penicilline (100 U/mL) | Gibco | 15140-122 | |
| streptomycine (100 µg/mL) | Gibco | 15140-122 | |
| SR-gebaseerd mESC medium | opgeslagen bij 4 °C; warm 30 min bij 37 °C voor gebruik | ||
| DMEM/F12 | Gibco | 31330-038 | gemengd in een 1:1 verhouding |
| 15% knock-out serumvervanging (SR) | Gibco | 10828-028 | |
| L-glutamine (2 mM) | Gibco | 25030-02 |
Referenties
- Gul, I. S., Hulpiau, P., Saeys, Y., van Roy, F. Metazoan evolution of the armadillo repeat superfamily. Cell Mol Life Sci. , (2016).
- Valenta, T., Hausmann, G., Basler, K. The many faces and functions of beta-catenin. EMBO J. 31, 2714-2736 (2012).
- Pieters, T., van Hengel, J., van Roy, F. Functions of p120ctn in development and disease. Front Biosci. 17, 760-783 (2012).
- Keirsebilck, A., et al. Molecular cloning of the human p120ctn catenin gene (CTNND1): Expression of multiple alternatively spliced isoforms. Genomics. 50, 129-146 (1998).
- Capecchi, M. R. Gene targeting in mice: functional analysis of the mammalian genome for the twenty-first century. Nat Rev Genet. 6, 507-512 (2005).
- Wang, H., et al. One-step generation of mice carrying mutations in multiple genes by CRISPR/Cas-mediated genome engineering. Cell. 153, 910-918 (2013).
- Yang, H., et al. One-step generation of mice carrying reporter and conditional alleles by CRISPR/Cas-mediated genome engineering. Cell. 154, 1370-1379 (2013).
- Fu, Y., et al. High-frequency off-target mutagenesis induced by CRISPR-Cas nucleases in human cells. Nat Biotechnol. 31, 822-826 (2013).
- Branda, C. S., Dymecki, S. M. Talking about a revolution: The impact of site-specific recombinases on genetic analyses in mice. Dev Cell. 6, 7-28 (2004).
- Sandhu, U., et al. Strict control of transgene expression in a mouse model for sensitive biological applications based on RMCE compatible ES cells. Nucleic Acids Res. 39, 1(2010).
- Haenebalcke, L., et al. Efficient ROSA26-based conditional and/or inducible transgenesis using RMCE-compatible F1 hybrid mouse embryonic stem cells. Stem Cell Rev. 9, 774-785 (2013).
- Pieters, T., et al. p120 Catenin-Mediated Stabilization of E-Cadherin Is Essential for Primitive Endoderm Specification. PLoS Genet. 12, e1006243(2016).
- Evans, M. J., Kaufman, M. H. Establishment in culture of pluripotential cells from mouse embryos. Nature. 292, 154-156 (1981).
- Martin, G. R. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 78, 7634-7638 (1981).
- Cheng, J., Dutra, A., Takesono, A., Garrett-Beal, L., Schwartzberg, P. L. Improved generation of C57BL/6J mouse embryonic stem cells in a defined serum-free media. Genesis. 39, 100-104 (2004).
- Bryja, V., et al. An efficient method for the derivation of mouse embryonic stem cells. Stem Cells. 24, 844-849 (2006).
- Ying, Q. L., et al. The ground state of embryonic stem cell self-renewal. Nature. 453, 519-523 (2008).
- Chen, S., et al. Self-renewal of embryonic stem cells by a small molecule. Proc Natl Acad Sci U S A. 103, 17266-17271 (2006).
- Pieters, T., et al. Efficient and User-Friendly Pluripotin-based Derivation of Mouse Embryonic Stem Cells. Stem Cell Rev. 8, (2012).
- Yang, W., et al. Pluripotin combined with leukemia inhibitory factor greatly promotes the derivation of embryonic stem cell lines from refractory strains. Stem Cells. 27, 383-389 (2009).
- Haenebalcke, L., et al. The ROSA26-iPSC Mouse: A Conditional, Inducible, and Exchangeable Resource for Studying Cellular (De)Differentiation. Cell Rep. 3, (2013).
- Tucker, K. L., Wang, Y., Dausman, J., Jaenisch, R. A transgenic mouse strain expressing four drug-selectable marker genes. Nucleic Acids Res. 25, 3745-3746 (1997).
- Nyabi, O., et al. Efficient mouse transgenesis using Gateway-compatible ROSA26 locus targeting vectors and F1 hybrid ES cells. Nucleic Acids Res. 37, 55(2009).
- Katzen, F. Gateway((R)) recombinational cloning: a biological operating system. Expert Opin Drug Discov. 2, 571-589 (2007).
- Schaft, J., Ashery-Padan, R., vander Hoeven, F., Gruss, P., Stewart, A. F. Efficient FLP recombination in mouse ES cells and oocytes. Genesis. 31, 6-10 (2001).
- Spencer, H. L., et al. E-cadherin inhibits cell surface localization of the pro-migratory 5T4 oncofetal antigen in mouse embryonic stem cells. Mol Biol Cell. 18, 2838-2851 (2007).
- Stryjewska, A., et al. Zeb2 Regulates Cell Fate at the Exit from Epiblast State in Mouse Embryonic Stem Cells. Stem Cells. , (2016).
- Nagy, A., Gertsenstein, M., Vintersten, K., Behringer, R. Manipulating the mouse embryo: A laboratory manual. , Cold Spring Harbor Laboratory Press. Third edn (2003).
- van den Berghe, V., et al. Directed migration of cortical interneurons depends on the cell-autonomous action of Sip1. Neuron. 77, 70-82 (2013).
- Li, J., et al. The EMT transcription factor Zeb2 controls adult murine hematopoietic differentiation by regulating cytokine signaling. Blood. , (2016).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
