Influenza A virussen (IAVs) zijn belangrijke menselijke respiratoire pathogenen. Om te begrijpen van de pathogeniteit van IAVs en om de preklinische testen van nieuwe vaccin benaderingen, zijn diermodellen nabootsen menselijke fysiologie vereist. Hier beschrijven we technieken om IAV pathogenese, humorale reacties en vaccin werkzaamheid met behulp van een muismodel van infectie te evalueren.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Influenza-A Virus Studies in een muismodel van infectie
In dit artikel
Samenvatting
Samenvatting
Influenza-virussen veroorzaken van meer dan 500.000 sterfgevallen wereldwijd1 en zijn jaarlijks een bedrag van 12-14 miljard USD in de Verenigde Staten overwegen alleen directe medische en kosten van de hospitalisatie en werk absenteïsme2gekoppeld. Dierlijke modellen zijn cruciaal in Influenza-A virus (IAV) studies om te evalueren van virale pathogenese, gastheer-pathogeen interacties, immuunrespons op, en de doeltreffendheid van de huidige en/of nieuwe vaccin benaderingen en antivirale middelen. Muizen zijn een voordelige kleine diermodel omdat hun immuun systeem is evolutionair vergelijkbaar met die gevonden in de mens, ze zijn verkrijgbaar van commerciële leveranciers als genetisch identieke onderwerpen, er zijn meerdere stammen die kunnen worden benut om de evalueren de genetische basis van infecties, en ze zijn relatief goedkoop en gemakkelijk te manipuleren. Om te recapituleren IAV infectie bij de mens via de luchtwegen, zijn muizen eerst verdoofd voordat intranasale inoculatie met besmettelijke IAVs onder goede bioveiligheid insluiting. Na infectie, wordt de pathogenese van IAVs bepaald door het dagelijks toezicht op de morbiditeit (verlies van het gewicht van lichaam) en sterftecijfer (overleving). Virale pathogenese kan daarnaast ook worden geëvalueerd door de beoordeling van de replicatie van het virus in de bovenste (nasale mucosa) of de lagere luchtwegen (longen) van geïnfecteerde muizen. Humorale reacties na IAV infectie kunnen snel worden geëvalueerd door de niet-invasieve bloeden en secundaire antistofdetectie tests gericht op het detecteren van de aanwezigheid van totaal of neutraliserende antilichamen. Hier beschrijven we de veelgebruikte methoden te infecteren muizen intranasaal (i.n) met IAV pathogenese, humorale immuunreacties en bescherming werkzaamheid en evalueren.
Inleiding
IAVs zijn omhuld virussen in de tekenovergedragenorthomyxoviridae familie3ingedeeld. Ze bevatten acht single-stranded RNA-moleculen met negatieve polariteit uitzendt3. Bij de mens, IAVs in seizoensgebonden epidemieën en occasionele pandemieën van belangrijk gevolg veroorzaken wanneer roman virussen worden geïntroduceerd in de menselijke populatie4. Bovendien seizoensgebonden IAVs zijn sterk en snel verzonden tussen mensen produceren een verhoogde economische verlies wereldwijd elk jaar2,5. IAV symptomen zijn hoest, verstopte, koorts, malaise, hoofdpijn, anorexie en spierpijn, maar het virus kan ook een meer ernstige ziekte bij immuungecompromitteerde patiënten6produceren. In feite, berekent de World Health Organization (WHO) dat seizoensgebonden influenza-virussen 300.000-500.000 doden wereldwijd elk jaar1 veroorzaken. Er zijn slechts twee klassen van geneesmiddelen die momenteel goedgekeurd door de Food and Drug Administration (FDA) voor influenza profylaxe en behandeling bij de mens: (NA)-neuraminidaseremmers (bv, oseltamivir) en blockers van de M2 ionkanaal (b.v. amantadine); het ontstaan van resistente virus varianten is echter een toenemende bezorgdheid. Vaccinatie, blijft dus de beste medische optie te beschermen van mensen tegen IAVs infecties. Tot op heden heeft drie soorten griep vaccins in licentie gegeven door de FDA voor menselijk gebruik zijn beschikbaar: recombinante virale hemagglutinine (HA) eiwit vaccins, geïnactiveerd griepvaccins (IIV), en live-verzwakt griep vaccins (LAIV)5, 7. de drie vaccins zijn ontworpen voor het opwekken van adaptieve immuunrespons tegen de virale HA eiwit, het belangrijkste doel van de neutraliserende antilichamen tegen IAVs.
Een gevalideerde muismodel om te studeren IAV infectie in vivo
Dierlijke modellen zijn gebruikt om te studeren, o.a. IAV pathogenese8,9,10,11, virale factoren die aan de ziekte12 en/of virale transmissie13 bijdragen ,14, en voor het testen van de werkzaamheid van nieuwe vaccins of antiviral drugs9,10,15. Muizen (Mus musculus) zijn de meest intensief gebruikte diermodel voor IAV onderzoek om verschillende redenen: 1) het immuunsysteem is evolutionair vergelijkbaar met dat presenteren bij de mens; 2) low-cost, waaronder dierlijke aankoop, huisvesting en voortplanting; 3) kleine grootte om gemakkelijk te manipuleren en opslaan; 4) minimale host variabiliteit te verkrijgen van homogene reacties en resultaten; 5) een grote kennis van de biologie van de muizen, met inbegrip van genoom; 6) vele beschikbare moleculaire biologie en/of immunologie reagentia; 7) de beschikbare knock out (KO) muizen te bestuderen van de bijdrage van een bepaalde host eiwit op virale infectie; en 8) meerdere stammen van de muis die kunnen worden benut om het evalueren van de genetische basis van infecties.
Er zijn verschillende muis-stammen die momenteel beschikbaar zijn om te studeren IAV in vivo. Leeftijd, immuunstatus, geslacht, genetische achtergrond en muis stam evenals routes van de infectie, de dosis en de virale stammen alle beïnvloeden het resultaat van IAV infectie in muizen. De meest voorkomende stammen van de muis gebruikt in IAV onderzoek zijn C57BL/6, BALB/C en, meer recentelijk, DBA.2 muizen omdat ze meer vatbaar voor IAV ziekte dan de twee voormalige stammen16,17,18, 19 , 20. nog belangrijker is, de immuunrespons ook kunnen verschillen naargelang de muis stam18,19,20. Het is dus zeer belangrijk om te herstellen van alle beschikbare informatie over de muis en de IAV spanning te kiezen van de beste optie voor het experiment te worden uitgevoerd.
Hoewel de muis is een goede diermodel van infectie voor in vivo studies met IAV, hebben zij verschillende beperkingen, die moeten worden overwogen in de proefopzet. Bijvoorbeeld, is een belangrijke beperking van het gebruik van muizen voor in vivo studies dat IAVs niet onder muizen versturen. Dus, voor transmissie studies, meer geaccepteerd dierlijke modellen (bijvoorbeeld, fretten of cavia's) zijn gebruikte16,17,21. Daarnaast zijn er enkele verschillen tussen de uitingen van IAV in muizen en mensen. In tegenstelling tot mensen ontwikkelen muizen geen koorts na IAV infectie; omgekeerd presenteren ze met onderkoeling16,17. Bij muizen, is IAV replicatie geconcentreerd in de lagere luchtwegen (longen) in plaats van de bovenste luchtwegen. IAV virulentie bij muizen is dus niet altijd gecorreleerd met dat bij de mens. Over het geheel genomen omdat de voordelen opwegen tegen de beperkte nadelen, vertegenwoordigt muis de eerste diermodel gebruikt griep virale pathogenese, de immunogeniciteit en de beschermende werkzaamheid in vaccin en antiviral studies te evalueren. Bovendien, het is niet ethisch verantwoord onderzoek te verrichten met IAV met behulp van grote dierlijke modellen zonder eerdere bewijzen in een kleine diermodel van IAV infectie. In dit manuscript, beschrijven we hoe muizen intranasaal infecteren (i.n.) met IAV, hoe het toezicht op de ernst en de vooruitgang van virale infectie en het uitvoeren van de proeven vereist ter evaluatie humorale immuunreacties en effectiviteit van de bescherming.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
alle dierlijke protocollen die hier beschreven werden goedgekeurd door de institutionele Animal Care en gebruik Comité (IACUC) en de institutionele Commissie voor bioveiligheid (IBC) aan de Universiteit van Rochester School van geneeskunde en tandheelkunde en in overeenstemming met de aanbevelingen in de gids voor de zorg en het gebruik van proefdieren van het nationale onderzoek Raad 22. De faciliteiten en de programma's van de Vivarium en divisie laboratorium dier geneeskunde van de School of Medicine and Dentistry zijn geaccrediteerd door AAALAC International en voldoen aan de staatswet, federale wet en beleid van de National Institutes of Health (NIH). Soortgelijke eisen moeten worden toegepast op elke instelling zich te houden aan de dierlijke protocollen beschreven in dit manuscript.
1. gebruik van kleine gewervelde dieren
Opmerking: de juiste uitrusting voor persoonlijke bescherming (PBM) is vereist voor het werken met muizen. Minimale vereisten omvatten wegwerp overall, schoen covers, hoofd bonnet, masker en handschoenen.
- Plaats overeenkomstig het IACUC-protocol, een maximum van 5 muizen per kooi. Volgens IACUC protocol, euthanaseren muizen met twee methoden van de euthanasie (de tweede moet een fysieke methode) om ervoor te zorgen dat het dier dood is.
Opmerking: In de experimenten in welke IAV morbiditeit en mortaliteit worden geëvalueerd, muizen die 20% van hun aanvankelijke lichaamsgewicht verloren werden beschouwd als de experimentele eindpunt hebben bereikt, en werden euthanized met CO 2 en cervicale dislocatie als de fysieke secundaire methode. Dit percentage van lichaamsgewicht kan afwijken van de andere instellingen. In de procedures waar de muizen longen en neus mucosa na IAV infectie worden verzameld, muizen zijn euthanized met een dodelijke dosis van 2,2,2-tribromoethanol (FSME), en door het snijden van de hepatische ader als de fysieke secundaire methode. Vrouwelijke 6-tot 8-week-oude C57BL/6 muizen werden gekocht en onderhouden in de faciliteit van de verzorging van de dieren aan de Universiteit van Rochester School van geneeskunde en tandheelkunde onder voorwaarden van specifieke pathogenen vrije.
2. Bioveiligheid
Opmerking: In dit verslag, de IAVs gebruikt voor het infecteren van muizen zijn de gemeenschappelijke muis-aangepast laboratorium-stam van influenza A/Puerto Rico/8/34 H1N1 (PR8 WT) 22 , 23 en een temperatuur gevoelige LAIV variant, PR8 LAIV 8. Uitvoeren van alle procedures die betrekking hebben op IAV infecties (in vitro of in vivo), celculturen en biologische monsters, in een biologische veiligheidskast onder het bioveiligheidsniveau (BSL) -2 voorwaarden. Gebruik maken van andere BSL pakken of insluiting voorwaarden als zeer virulente IAV stammen worden gebruikt.
- Clean het biosafety kast met chloor kooldioxide ontsmettingsmiddel vóór en na het uitvoeren van alle experimentele procedures die worden beschreven in dit manuscript. Steriliseren alle dissectie materiaal (schaar, scalpel en ontleden verlostang) en de homogenizer van de Dounce voor en na het gebruik ervan na goede IBC aanbevelingen. Gooi alle materiaal geproduceerd gedurende de procedures onder juiste IBC en IACUC richtlijnen.
3. Intranasale infectie
- plaats de vrouwelijke 6-tot 8-week-oude C57BL/6 muizen onder de voorwaarden van specifieke pathogenen vrije. Organiseren en labelen van de muis kooien met het virus en de eventueel gebruikte dosis. Het identificeren van de muizen in iedere kooi met behulp van een oor punch code of met een andere goedgekeurde methode zoals schilderij van de staarten. Plaats een maximum van 5 muizen per kooi.
- Maak de verdunning van IAV (fluorescerende vormen eenheden (FFU) / mouse) onder aseptische condities in een totaal volume van 30 µL/muis in steriele 1 x fosfaat buffer zoutoplossing (PBS). Het handhaven van het entmateriaal virus op ijs. Berekenen van de hoeveelheid IAV toe te voegen in de virale verdunning met de formule: ((X FFU per muis/30 µL) x eindvolume) / voorraad virale titer.
- Wegen van de muizen met een schaal en het gewicht van elke muis (dag 0). Houd de muis in een dorsale positie door het oppakken van door het nekvel van de nek tussen de wijsvinger en de duim. Houd de staart tegen de hand met de vinger pinky.
- Anesthetize de muis intraperitoneally (i.p.) met 240-250 mg/kg TBE door het invoegen van de naald in de caudal 2/3 van de rechterkant van de buik. Pauze kort voordat de intrekking van de naald. De muis terug te keren naar de kooi en wacht 5 min.
- Steriel ophthalmic zalf toepassen in de ogen te voorkomen dat droogte, terwijl de muis is verdoofd. Controleer als de muis is verdoofd door gebrek aan pedaal terugtrekking reflex (d.w.z., Teen snuifje). Als het muizen zijn niet volledig verdoofd zal zij het virus hoesten.
- Wanneer de muis is volledig verdoofd, plaatst u de muisaanwijzer in de dorsale ligcomfort. Zet het uiteinde van de pipet met 30 µL van het virus entmateriaal in het neusgat en langzaam maar voortdurend het uitwerpen van de oplossing. Zorg ervoor dat de muis is het inademen van de voorbereiding door het observeren van het entmateriaal drop verdwijnen.
- Controleren dat de muis is ademen zoals FSME de temperatuur en ademhaling tarief drukken kan. Het dier terug naar de kooi in dorsale lighouding plaatst. Controleren van de muizen voor symptomen van respiratoire nood en indien waargenomen, helpen de muis om te ademen door bedrijf dier verticaal en impact gedreven ademhaling 24 induceren. Controleren de muis totdat het herwint bewustzijn (30-45 min nadat het was verdoofd).
4. Karakterisering van virale pathogenese ( Figuur 1)
- evaluatie van morbiditeit en mortaliteit ( Figuur 1 en Figuur 2)
- Infecteren i.n. 3-4 groepen van vrouwelijke 6-tot 8-week-oude C57BL/6 muizen (ten minste 5 muizen per groep, n = 5) met 10-fold doses (10, 10 2, 10 3 en 10 4 FFU/muis) van PR8 WT zoals beschreven in sectie 3.
- Monitor en wegen van de muizen met een schaal in de komende 14 dagen op ongeveer hetzelfde tijdstip te minimaliseren gewicht schommelingen als gevolg van voedsel inname. Euthanaseren van muizen die 20% van hun aanvankelijke lichaamsgewicht verliezen zoals beschreven in sectie 1.
- Na 14 dagen, euthanaseren de muizen die overleven van virale infectie, zoals beschreven in sectie 1.
- Berekenen de virale 50% muis dodelijke dosis (MLD 50) op basis van de gegevens van de overleving opgehaald met de methode van Reed en Muench 25. Ten eerste, het berekenen van de verhouding afstand (PD):
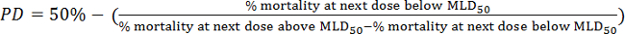
- Vervolgens berekent de MLD 50 door de volgende formule:
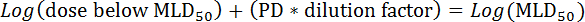
- Vervolgens berekent de MLD 50 door de volgende formule:
- evaluatie van virale titers in longen en neus mucosa ( Figuur 1 en Figuur 2. )
- herstel van longen en neus mucosa
- infecteren i.n. vrouwelijke 6-tot 8-week-oude C57BL/6 muizen (n = 6) met de virale dosis voor het testen van 10-10 4 FFU van PR8 WT zoals beschreven in sectie 3.
- De muis longen en nasale mucosa verzamelen op dagen 2 (n = 3) en 4 (n = 3).
- Euthanaseren de muizen met een dodelijke dosis (i.p.) FSME (500 mg/kg). Plaats het dier in de dorsale lighouding en Desinfecteer de vacht over de thorax met 70% ethanol. Snijd de huid met een scalpel vanaf het borstbeen naar de onderkant van de buik. Snoeien 1 cm vanaf de basis van de incisie aan de laterale delen van de muizen met de schaar.
- Snijd de hepatische ader met een schaar te bloeden de muis als de secundaire euthanasie-methode. Plaats het dier in een ventrale positie en wacht 2 min zodat het bloed naar de afvoer uit. Deze stap is belangrijk voor het verminderen van bloed in de longen.
- Verwijder de huid van het gehele bovenste deel van de muis (inclusief het hoofd) aan de basis van de buik waar de eerste snede werd gemaakt met behulp van de ontrafeling van de Tang en schaar. Het hoofd met de schaar knippen en deze plaatsen in een steriele droge petrischaal.
- Knippen van de kruispunten tussen de maxilla en de onderkaak met de schaar en negeren de onderkaak. Met de schaar, twee sneden aan de uiteinden van de buccale bogen maken en verwijderen. Verwijder de ogen met de hulp van de ontleden verlostang.
- Houden de schedel met het ontleden pincet en snijd de schedel langs de Sagittaal hechtdraad met een scalpel. Til de twee helften van de schedel met de hersenen om te zien de nasale mucosa. De nasale mucosas zijn omgeven door de voorste botten van de schedel, inclusief de nasaal, maxilla, de Palts, buccale, en ethmoid botten.
- Met behulp van de scalpel, snij het gedeelte van de schedel met de hersenen en negeren. Plaats het andere deel van de schedel met de nasale mucosa in een steriele buis. Opslaan van de buis op ijs (4 ° C) als de monsters dezelfde dag verwerkt worden of op droog ijs te bevriezen ze snel als de monsters zal later worden verwerkt.
- Om besmetting te voorkomen van monsters, reinig en Desinfecteer de ontleden tools tussen elk weefsel hersteld en tussen elk dier dissectie met chloor kooldioxide ontsmettingsmiddel.
- Voor het verzamelen van de longen, de plaats van het dier in de dorsale lighouding en snijd het borstvlies met de schaar. Open de ribbenkast door het snijden van de ribben op 1 cm aan beide zijden van het borstbeen. De verlagingen van de boekwaarde van de ribbenkast naar het superieure deel te maken met de schaar.
- Een doorsnede maken met de schaar tussen de twee insnijdingen in het superieure gedeelte van de ribbenkast en verwijder de torsoplaat. Houd de longen met de Tang, renteverlaging aan het einde van de luchtpijp (net voor de longen) met de schaar en de longen in een steriele buis gebracht. Opslaan van de buis op ijs (4 ° C) als de monsters dezelfde dag verwerkt worden of op droog ijs te bevriezen ze snel als de monsters zal later worden verwerkt.
Opmerking: Meng de weefselsteekproeven op dezelfde dag dat zij verzameld worden en opgeslagen bij-80 ° C voor het analyseren van virale titers later. Het is belangrijk dat monsters niet ondergaan herhaalde bevriezen-ontdooien cycli voordat virus titers worden bepaald. U kunt ook slaan de weefselmonsters bij-80 ° C totdat ze worden verwerkt.
- Homogenisering van de longen en neus mucosa
- plaats van de longen of nasale mucosa in een steriele Dounce homogenizer en voeg 1 mL koude infectie media. Meng het monster door het bewegen van de stamper op en neer voor ongeveer 1 minuut bij kamertemperatuur (RT) totdat de longen zijn volledig verstoord. Zet het gehomogeniseerde monster in een steriele buis en winkel bij 4 ° C. gebruik een nieuwe homogenizer van de Dounce voor elk monster.
- Centrifugeren de monsters bij 300 x g gedurende 5-10 min op RT. Collect de bovendrijvende substantie in een nieuwe steriele buis. Bewaar het supernatant bij 4 ° C als virale titratie wordt uitgevoerd op dezelfde dag en negeren de pellet. Als alternatief, bevriezen (-80 ° C) het supernatant van de gehomogeniseerde monsters om te evalueren van virale titers later.
- Virus titratie met indirecte immunofluorescentie
- eergisteren titratie, seed 96-wells-platen met Madin-Darby Canine Kidney (MDCK) epitheliale cellen (4 x 10 4 cellen/well) aan het bereiken van ~ 80-90% samenvloeiing in weefselkweek media. De cellen in een incubator 37 ° C met 5% CO 2 plaatsen. De dag van virale titratie, check de cellen onder de Microscoop om te een enkelgelaagde bevestigen voordat de virale infectie.
- Bereiden 1:10 verdunnen van het supernatans van de gehomogeniseerde monsters (Long of nasale mucosa) infectie media een 96-wells-plaat. De virale titratie uitvoeren door triplicates virale titers nauwkeurig te bepalen.
- Toevoegen 90 µL van infectie media aan elk van de putten in de 96-wells-plaat. Voeg toe 10 µL van een van de bovendrijvende substantie van de gehomogeniseerde monsters aan putjes A1, A2 en A3 te evalueren van de virale titer van elk monster in drievoud. Voeg toe 10 µL van een andere supernatans van de gehomogeniseerde monsters aan putjes A4, A5 en A6. Uitvoeren van de dezelfde verdunning achtereenvolgens met de rest van de monsters.
- Na het toevoegen van het monster supernatant rij A, gebruik een meerkanaals Pipetteer om te mengen door pipetteren omhoog en omlaag. Breng 10 µL van rij A naar rij B. wijzigen de tips tussen verdunningen en meng goed. Herhaal dit tot het bereiken van de laatste rij (H).
- Verwijderen van het weefsel kweekmedium (stap 4.2.3.1) met behulp van een vacuüm aspirator-meerkanaals-adapter van de MDCK-cellen in de 96-wells-platen en wassen tweemaal met 100 µL per putje van 1 x PBS.
- Breng 50 µL per putje van het serieel verdunde supernatans van de gehomogeniseerde monsters aan de 96-wells-plaat met MDCK cellen. Overgezet worden de hogere verdunningen (rij H) naar de lagere verdunningen (rij A). In dit geval is het niet nodig te wijzigen de tips tussen verschillende rijen.
- Zet de 96-wells-platen op een rockende platform voor 1 h bij RT dat virale adsorptie. Na virale adsorptie, Verwijder van het entmateriaal met behulp van een vacuüm aspirator-meerkanaals-adapter en voeg 100 µL per putje van na infectie media. Incubeer geïnfecteerde cellen gedurende 8 uur in een incubator 33 ° C of 37 ° C met 5% CO 2. Ga naar vaststelling, kleuring, imaging en virale titer berekening zoals beschreven in stappen 4.2.3.6 – 4.2.3.12.
- Verwijderen het weefsel kweekmedium aan de 96-wells-platen met behulp van een vacuüm aspirator-meerkanaals-adapter. Lossen en permeabilize van de cellen met 100 µL per putje van fixatie/permeabilization oplossing voor 20 min op RT.
Let op: Gebruik de fixatie/permeabilization-oplossing in een zuurkast om te voorkomen dat formaldehyde. - Verwijderen van de fixatie/permeabilization oplossing met behulp van een vacuüm aspirator-meerkanaals-adapter, wassen met PBS 1 x, en Incubeer de vaste cellen met blocking oplossing voor 1 h op RT. Store de cellen in het blokkeren van de oplossing bij 4 ° C of ga naar de volgende stap.
- Verwijder de blokkerende oplossing. Voeg 50 µL per putje van 1 µg/mL monoklonaal antilichaam (mAb) anti-NP HB-65 verdund in antilichaam verdunning oplossing. Incubeer gedurende 1 uur bij 37 ° C. Different mAb of polyclonal antilichamen (pAb) anti-PR8 inzetbaar.
- Intussen Verdun 1:200 de fluoresceïne-isothiocyanaat (FITC)-geconjugeerd secundair antilichaam van de anti-muis in antilichaam verdunning oplossing. Centrifugeer de oplossing bij 1700 x g gedurende 5-10 min op RT. Andere secundaire antilichamen geconjugeerd met andere fluorophores inzetbaar.
- Verwijderen van het primaire antilichaam en 3 keer wassen met 100 µL per putje van 1 x PBS. Voeg 50 µL per putje van de secundair antilichaam verdunning en incubeer gedurende 30-45 minuten bij 37 ° C. verwijderen het secundaire antilichaam en wassen 3 keer met 100 µL per putje van 1 x PBS. Laat de laatste wasbeurt in de plaat.
- Observeren de cellen onder een fluorescentie Microscoop om te bepalen van het aantal positieve gekleurd (groen) cellen. Bereken de virale titer door te tellen FFU/mL. Berekenen van de virale titer uitgedrukt in FFU/mL uit de verdunning met 30-50 positieve gekleurde cellen met de formule: ((n1 + n2 + n3) / 3) x 20 x 1/verdunning.
- herstel van longen en neus mucosa
5. Evaluatie van de humorale immuunreacties ( Figuur 3)
- infecteren i.n. 3 groepen van vrouwelijke 6-tot 8-week-oude C57BL/6 muizen (n = 5) met de verschillende doses (10 2, 10 3 en 10 4 FFU / muis) van PR8 LAIV, en mock-infecteren één groep (n = 5) met 1 x steriel PBS als negatieve controle. Uitvoeren van de i.n muis infecties zoals beschreven in sectie 3.
- Muis bloeden door submandibulaire punctie
- veertien dagen na immunisatie, verzamelen de muizen bloed submandibulaire bloeden met een 4 mm lancet 26, of met behulp van een andere IACUC goedgekeurde methode.
- Houd de muis door het oppakken van door het nekvel van de nek tussen de wijsvinger en de duim. Houd de staart tegen de hand met de pinky vinger te immobiliseren van de muis.
- Zet de muis in een zijligging te zien van de Wang. Controleer de lekke band op het kruispunt van de retro-orbitaal en submandibulaire aders met de halsslagader. Zinken de lancet (4-mm) en het herstellen van het bloed in een steriele buis (ongeveer 0,2 - 0,4 mL/muis worden hersteld). Oefen druk uit op de punctie met een steriele servet voor een paar seconden. Plaatst u de muisaanwijzer weer in de kooi.
- Zet de buizen gedurende 1-2 uur bij 37 ° C en vervolgens Centrifugeer ze bij 700 x g gedurende 30 min op RT te scheiden van het serum van het bloed. Overdracht van de bovenste laag die uit het serum met een pipet om een nieuwe steriele buis bestaat. Gooi de pellet van rode bloedcellen (RBC). Opslaan van het serum bij -20 ° C.
- veertien dagen na immunisatie, verzamelen de muizen bloed submandibulaire bloeden met een 4 mm lancet 26, of met behulp van een andere IACUC goedgekeurde methode.
- Muis bloeden door submandibulaire punctie
- Analyse van totale antilichamen tegen het virale eiwitten
- voorbereiding van besmette MDCK cel extracten
- eergisteren infectie, zaad een 100 mm schotel met 4-5 x 10 6 MDCK cellen (tot ~ 80-90 % samenvloeiing de volgende dag) in weefselkweek media. De cellen in een incubator 37 ° C met 5% CO 2 plaatsen. De dag van virale infectie, Controleer de cellen onder de Microscoop om te een enkelgelaagde bevestigen voordat de virale infectie.
- Maak een virale verdunning met een lage (0,001) menigvuldigheid van infectie (MOI) van PR8 WT infectie media 4 mL totale eindvolume. Berekenen van de hoeveelheid PR8 WT met de formule ((X MOI x n ° cellen) x eindvolume) / voorraad virale titer.
- Gecombineerd het kweekmedium met weefsel van de MDCK cel plaat en spoel tweemaal met 4 mL 1 x PBS. Voeg van de virale entmateriaal (4 mL) en zet de plaat op een rockende platform voor 1 h bij RT dat virale adsorptie. Verwijderen van de virale entmateriaal met vacuüm en voeg 8-10 mL na infectie media met 1 µg/mL trypsine TPCK behandeld. Incubeer geïnfecteerde cellen gedurende 48-72 uur in een incubator 33 ° C of 37 ° C met 5% CO 2.
- Loskoppelen van de cellen met de hulp van een cel schraper en het verzamelen van de cellen en weefsel kweekmedium met een pipet in een tube van 15 mL. Centrifugeer de buis bij 400 x g gedurende 5-10 min op RT. Aspirate het supernatant en resuspendeer de cel pellet in 1 mL buffer RIPA en zet de mix in een 1.5-mL steriele buis. Incubeer op ijs voor 20-30 min.
- De buis bij 1300 x g centrifuge voor 20-30 min bij 4 ° C. zorgvuldig, herstellen de bovendrijvende substantie. Winkel de cel extraheren in 100 µL aliquots bij -20 ° C.
- Titreer de cel extracten, zoals beschreven door enzyme-linked immunosorbent assay (ELISA) voor het evalueren van de aanwezigheid van antilichamen 9 , 10 , 11 , 27. opnemen cel extracten van mock-geïnfecteerde MDCK cellen (opgesteld zoals hierboven is aangegeven) als een negatieve controle.
- ELISA ( Figuur 4)
- jas van polystyreen 96-wells-platen met de aangewezen verdunning van besmet-MDCK cel in 1 x PBS (meestal tussen de 1:200 - 1:1, 000 extraheren). Jas van een ander bord met de dezelfde verdunning van mock-geïnfecteerde MDCK cel extract als negatieve controle. Incubeer overnachting (O/N) bij 4 ° C.
- Verwijder de bovendrijvende vloeistof met behulp van een vacuüm aspirator-meerkanaals-adapter en een keer wassen met 100 µL per putje van 1 x PBS met een multichannel Pipetteer. Blokkeren van niet-specifieke binding door toevoeging van 100 µL per putje van het blokkeren van de oplossing voor 1 h op RT.
- Ondertussen verdienen 2-fold seriële verdunningen (vanaf verdunning 1:50) van de sera elke muis in stap 5.1 van antilichaam verdunning oplossing in een 96-wells-plaat besmet.
- Verwijder de blokkerende oplossing uit de polystyreen 96-wells-platen met behulp van een vacuüm aspirator-meerkanaals-adapter. Voeg 50 µL van de serumverdunning van elke muis in de passende put en Incubeer 1 uur bij 37 ° C.
- Verwijder de muizen sera met een vacuüm aspirator-meerkanaals-adapter. Was de putjes 3 keer met gedestilleerd water met behulp van een meerkanaals Pipetteer. Voeg 50 µL per putje van een anti-muis secundair antilichaam geconjugeerd met Horseradish Peroxidase (HRP) verdund 1:2,000 in antilichaam verdunning oplossing. Incubeer 1 uur bij 37 ° C.
- Verwijderen het secundaire antilichaam met een vacuüm aspirator-meerkanaals-adapter. Was de putjes 3 keer met gedestilleerd water met behulp van een meerkanaals Pipetteer. Bereid de tetramethylbenzidine (TMB) substraat oplossing door het mengen van 1:1 oplossing A en B. Voeg 100 µL per putje van substraat en incubeer gedurende 5-10 min op RT in het donker.
- Zet de reactie stop door toevoeging van 100 µL per putje van 0,2 N H 2 dus 4. Lees de platen bij 450 nm op een ELISA-afleesapparaat.
- Aftrekken de waarde verkregen in elke verdunning van de MDCK mock-geïnfecteerde 96-wells-plaat van de waarde die is verkregen in de MDCK-geïnfecteerde 96-wells-plaat. Berekenen van de gemiddelde waarden voor elke verdunning met de verschillende sera en hen te vertegenwoordigen in een grafiek met de standaarddeviaties (SD).
- voorbereiding van besmette MDCK cel extracten
- Analyse van neutraliserende antilichamen
- Hemagglutination inhibitie (HAI) assay ( Figuur 5)
- voordat u de HAI assay, behandelen de muis sera met receptor vernietigen van enzym (RDE) te elimineren alle niet-specifieke remmers in het serum aanwezig. Voeg 1 hoeveelheid muis serum toe aan 4 volumes rde-werkverdunning (serumverdunning is nu 1:5). Incubeer O/N (12- 18 h) in een waterbad 37 ° C.
- Warmte de serummonsters bij 56 ° C gedurende 30 minuten naar de inactivering van de RDE.
- Vooraf bepalen de hemagglutination activiteit (HAU) van PR8 WT door standaard HA assay 28. Nadat de virale HAU is vastgesteld, Verdun de virale voorraad 8 HAE per 50 µL in 1 x PBS.
- Maak 2-fold seriële verdunningen (12 verdunningen) van sera RDE-behandeld in een 96-Wells-V-bodemplaat. Gebruik één rij voor elke serummonster (bijvoorbeeld A1 aan A12).
- Toevoegen 25 µL van 1 x PBS van A1 aan A12 putjes. Test elk van de serummonsters in één rij. Voeg toe 25 µL van RDE-behandelde sera (1:5) aan 25 µL van 1 x PBS in het eerste putje van de kolom (A1). De eerste serumverdunning is 1:10.
- Zodra alle RDE-behandelde sera worden toegevoegd aan de eerste kolom (bijvoorbeeld A1, B1, C1), gebruik van een meerkanaals Pipetteer om te mengen de sera en 1 x PBS door pipetteren omhoog en omlaag. Breng 25 µL van de verdunde sera uit de eerste kolom naar de tweede kolom (bijvoorbeeld van A1 naar A2). Wijzigen de tips tussen verdunningen en meng.
- Herhaal stappen 5.3.1.4.2. tot het bereiken van de laatste kolom (bijvoorbeeld, A12, B12, C12). Gooi de 25 µL van de laatste kolom, rekening houdend met het volume consequent alle de putjes (25 µL). Een rij van putten met slechts 25 µL van 1 x PBS zonder enige sera als een negatieve controle opneemt.
- Toevoegen 25 µL van de IAV verdund tot 8 HAE/50 µL aan elk van de putjes met sera in de 96-Wells-V-bodemplaat; het eindvolume in elk goed is 50 µL, met 4 HAE van virus. Meng de inhoud door herhaalde pipetteren. Incubeer gedurende 1 h op RT.
- Toevoegen 50 µL van 0,5% Turkije RBC aan elk van de putten. Meng de inhoud door herhaalde pipetteren. Incubeer de plaat gedurende 30-45 minuten op het ijs. De HAI assay visueel worden afgelezen wanneer de RBC in de controleputjes (1 x PBS) een rood neerslag (dat wil zeggen, pellet) aan de onderkant van de putten vormen.
Opmerking: RBC van andere diersoorten zoals kippen, cavia of paard kan ook gebruikt worden. - Berekenen de titers HAI door het identificeren van de laatste goed waarin de RBC vormen een rode pellet en hemagglutination treedt niet.
Opmerking: De wederzijdse waarde met deze tweevoudige verdunning is de titer HAI. De wederzijdse waarde wordt vermenigvuldigd met een factor 20 om te corrigeren voor de 1:20 verdunning van het serum in de eerste rij.
- Virus microneutralization assay (VNA) ( Figuur 6)
- de dag vóór de VNA, bereiden MDCK cellen in een 96-wells-plaat te bereiken van samenloop van 80-90% de volgende dag, zoals beschreven in stap 5.2.1.1. Maak een verdunning van PR8 WT in infectie media hebben 200 FFU/25 µL.
- Inactivate maken de muis sera bij 56 ° C gedurende 1 h. 2-fold seriële verdunningen (12 verdunning) per muis sera in drievoudige met behulp van een 96-wells-plaat.
- Toevoegen 40 µL van de serum tot 160 µL van infectie media in het eerste putje van de eerste rij, (bijvoorbeeld A1) (serum verdunning 1:5). Meng door pipetteren. Voeg 100 µL van infectie media toe aan de andere putjes (A2 naar H12).
- Transfer 100 µL van de eerste rij aan de tweede rij te maken van 1:2 verdunnen (b.v. van A1 naar A2). Tips tussen verdunningen en meng door pipetteren wijzigen Herhaal dit tot de laatste rij (bijvoorbeeld, A12). Negeren van 100 µL van de laatste rij, rekening houdend met het volume consequent alle de putjes (100 µL).
- Voeg 100 µL van IAV verdunning aan alle putjes. Incubeer 1 uur op RT. Ondertussen, het weefsel kweekmedium verwijderen uit de MDCK-cellen in de 96-wells-plaat met behulp van een vacuüm aspirator-meerkanaals-adapter en wassen tweemaal met 100 µL per putje van 1 x PBS.
- In elke 96-wells-plaat van MDCK cellen, laat twee rijen voor de besturingselementen. Één rij is de negatieve controles (cellen zonder virus en sera), en de andere rij is de positieve controle van de infectie (cellen met het virus in de afwezigheid van sera of sera van mock-geïnfecteerde muizen).
- Transfer 50 µL per putje van de plaat virus-antilichaam aan de 96-wells-platen van MDCK cellen. De platen zetten een rockende platform voor 1 h bij RT dat virale adsorptie.
- Verwijderen van het virus-antilichaam entmateriaal met behulp van een vacuüm aspirator-meerkanaals-adapter en voeg 100 µL per putje van na infectie media met 1 µg/mL trypsine TPCK behandeld.
- Incubeer de cellen gedurende ~ 3-4 dagen in een incubator 33 ° C of 37 ° C met 5% CO 2 totdat cytopathogeen effect (CPE) is waargenomen in de positieve controle (geïnfecteerde cellen in de afwezigheid van sera of met controleserum).
- Verwijderen van het weefsel kweekmedium met behulp van een vacuüm aspirator-meerkanaals-adapter en voeg 100 µL per putje van 0,1% kristalviolet. Incubeer gedurende 1 h RT. verwijderd de Kristalvioletoplossing met behulp van een vacuüm aspirator-meerkanaals-adapter. Was de putjes 3 keer met gedestilleerd water. Droog de platen op RT.
- Berekenen de VNA-titers door het identificeren van de hoogste verdunning die een confluente cel enkelgelaagde MDCK cellen behoudt.
Opmerking: De wederzijdse waarde van deze bijbehorende verdunning is de neutraliserende antilichamen titer. De wederzijdse waarde wordt vermenigvuldigd met een factor 10 te corrigeren van de 1:10 verdunning van de sera in het eerste putje van de rij.
- Hemagglutination inhibitie (HAI) assay ( Figuur 5)
6. Evaluatie van bescherming werkzaamheid vaccins ( Figuur 3)
- vaccineren i.n. een groep van vrouwelijke 6-tot 8-week-oude C57BL/6 muizen (n = 11) met de dosis PR8 LAIV om te testen (FFU/muis) en een andere groep van muizen mock-vaccineren (n = 11) met 1 x steriel PBS. Uitvoeren van de muis i.n. inentingen zoals hiervoor is beschreven in sectie 3.
- Veertien dagen na vaccinatie, bloeden van de muizen en de sera verzamelen zoals beschreven in sectie 3. Analyseren van de aanwezigheid van totaal en neutraliserende antilichamen tegen PR8 WT zoals beschreven in paragraaf 5.1.1.
- Vijftien dagen na vaccinatie, meten en registreren van het lichaamsgewicht van de muis (dag 0). Daag muizen i.n. met een dodelijke dosis van het PR8 WT (homologe challenge) zoals eerder beschreven in sectie 3.
- Meten van het lichaamsgewicht en de overleving (n = 5 / groep) gedurende 14 dagen na de uitdaging om te evalueren van de morbiditeit en mortaliteit geproduceerd door de uitdaging van de PR8 WT in gevaccineerde muizen (punt 4.1).
- Herstellen muis longen en neus mucosa (n = 3/dag) op dag 2 en dag 4 na uitdaging met PR8 pm homogeniseren en analyseren van de longen en nasale mucosa zoals beschreven in punt 4.2 aan beoordeelt de virale replicatie van PR8 WT in gevaccineerde muizen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Karakterisering van virale pathogenese in muizen
De pathogenese van IAV is gerelateerd aan de morbiditeit en mortaliteit veroorzaakt door de infectie. Deze twee parameters kunnen worden geëvalueerd in muizen gemakkelijk: IAV morbiditeit is gekoppeld aan het verlies van het gewicht van het lichaam bij besmette muizen en het percentage van de overleving geeft het sterftecijfer (Figuur 1). Het lichaamsgew...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De muismodel van IAV wordt veel gebruikt voor in vivo onderzoek naar IAV pathogenese, immunogeniciteit en bescherming werkzaamheid. De kleine grootte van muizen maakt hen gemakkelijk te bewerken en op te slaan in vergelijking met andere dierlijke modellen zoals fretten of cavia's. Bovendien, het gemak in termen van dier kosten, huisvesting en voortplanting mogelijk maken hun gebruik in pre-klinische vaccinatie tests waarin grote aantallen dieren nodig zijn. Met name omdat muizen hebben gebruikt meerdere onderzoe...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Onderzoek naar het influenzavirus in LM-S laboratorium wordt gedeeltelijk gefinancierd door The New York Influenza Center of Excellence (NYICE), een lid van de NIAID Centers of Excellence voor Influenza onderzoek en toezicht (CEIRS). Wij danken Wendy Bates voor haar steun in de correcties van het manuscript.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Madin-Darby Canine Kidney (MDCK) epitheelcellen | ATCC | CCL-34 | |
| Zes- tot achtweek oude vrouwelijke C57BL/6 muizen | National Cancer Institute (NCI) | 01XBE | |
| Turkse rode bloedcellen | Biolink Inc | Bewaar bij 4 °C | |
| Dulbecco’s gemodificeerd Eagle’s medium (DMEM) | Corning Cellgro | 15-013-CV | Bewaar bij 4 °C |
| Fetaal bovien serum (FBS) | Seradigm | 1500-050 | Bewaar bij -20 °C |
| Penicilline/Streptomycine/L-Glutamine (PSG) 100x | Corning | 30-009-CI | Bewaar bij -20 °C |
| Penicilline/Streptomycine (PS) 100x | Corning | 30-00-CI | Bewaar bij -20 °C |
| Bovien Albumine oplossing (BA) | Sigma-Aldrich | A7409 | Bewaar bij 4 °C |
| Bovien Serum Albumine (BSA) | Sigma-Aldrich | A9647 | Bewaar bij 4 °C |
| Tosylsulfonyl fenylalanine chloromethyl keton (TPCK)-behandeld trypsine | Sigma-Aldrich | T8802 | Bewaar bij -20 °C |
| Neutraal Gebufferd Formalin 10% | EMD | 65346-85 | Bewaar bij RT |
| Triton X-100 | J.T.Baker | X198-07 | Bewaar bij RT |
| Monoklonaal Antilichaam anti-NP Influenza A Virus HB-65 | ATTC | H16-L10-4R5 | Bewaar bij -20 °C |
| Polyklonaal konijn anti-muis immunoglobulinen/FITC | Dako | F0261 | Bewaar bij 4 °C |
| ECL Anti-muis IgG, Paardenradijs Peroxidase gelinkt volledige antilichaam | GE Healthcare | LNA931V/AG | Bewaar bij 4 °C |
| TMB substraat set | BioLegend | 421101 | Bewaar bij 4 °C |
| Vmax Kinetische plaatlezer | Molecular Devices | ||
| Dounce weefselgrinders | Thomas Scientific | 7722-7 | |
| Receptor vernietigend enzym, RDE (II) | Denka Seiken Co. | 370013 | Bewaar bij -20 °C |
| Kristal Violet | Fisher Scienctific | C581-100 | Bewaar bij RT |
| 96-well celkweekplaat | Greiner Bio-one | 655-180 | |
| Celkweek schalen 100 mm | Greiner Bio-one | 664-160 | |
| Nunc MicroWell 96-Well Microplates | Thermo Fisher Scienctific | 269620 | |
| Nunc 96-Well Polystyrene Conical Bottom MicroWell Plates | Thermo Fisher Scienctific | 249570 | |
| Puralub Vet Ointment | Dechra | 9N-76855 | |
| Fluorescente microscoop | Olympus | Olympus IX81 |
Referenties
- Girard, M. P., Cherian, T., Pervikov, Y., Kieny, M. P. A review of vaccine research and development: human acute respiratory infections. Vaccine. 23 (50), 5708-5724 (2005).
- Arnold, S., Monto, M. D. Epidemiology and Virology of Influenza Illness. Am J Manag Care. 6, Suppl 5. 255-264 (2000).
- Palese, P., Shaw, M. L. Orthomyxoviridae: The Viruses and Their Replication. Fields Virology. Knipe, D. M., Howley, P. M., Griffin, D. E., Lamb, R. A., Martin, M. A. , 5th ed, Lippincott Williams and Wilkins. (2007).
- Li, K. S., et al. Genesis of a highly pathogenic and potentially pandemic H5N1 influenza virus in eastern Asia. Nature. 430 (6996), 209-213 (2004).
- Nogales, A., Martinez-Sobrido, L. Reverse Genetics Approaches for the Development of Influenza Vaccines. Int J Mol Sci. 18 (20), (2017).
- Kunisaki, K. M., Janoff, E. N. Influenza in immunosuppressed populations: a review of infection frequency, morbidity, mortality, and vaccine responses. Lancet Infect Dis. 9 (8), 493-504 (2009).
- Belshe, R. B. Live attenuated versus inactivated influenza vaccine in infants and young children. N Engl J Med. 356 (7), 685-696 (2007).
- Cox, A., Baker, S. F., Nogales, A., Martinez-Sobrido, L., Dewhurst, S. Development of a mouse-adapted live attenuated influenza virus that permits in vivo analysis of enhancements to the safety of live attenuated influenza virus vaccine. J Virol. 89 (6), 3421-3426 (2015).
- Nogales, A., et al. Influenza A Virus Attenuation by Codon Deoptimization of the NS Gene for Vaccine Development. J Virol. 88 (18), 10525-10540 (2014).
- Nogales, A., DeDiego, M. L., Topham, D. J., Martinez-Sobrido, L. Rearrangement of Influenza Virus Spliced Segments for the Development of Live-Attenuated Vaccines. J Virol. 90 (14), 6291-6302 (2016).
- Nogales, A., Huang, K., Chauché, C., DeDiego, M. L., Murcia, P. R., Parrish, C. R., Martínez-Sobrido, L. Canine influenza viruses with modified NS1 proteins for the development of live-attenuated vaccines. Virology. 500 (2017), 1-10 (2016).
- Garcia-Sastre, A., et al. Influenza A virus lacking the NS1 gene replicates in interferon-deficient systems. Virology. 252 (2), 324-330 (1998).
- Lowen, A. C. Blocking interhost transmission of influenza virus by vaccination in the guinea pig model. J Virol. 83 (7), 2803-2818 (2009).
- Mubareka, S. Transmission of influenza virus via aerosols and fomites in the guinea pig model. J Infect Dis. 199 (6), 858-865 (2009).
- Nogales, A., Baker, S. F., Martinez-Sobrido, L. Replication-competent influenza A viruses expressing a red fluorescent protein. Virology. 476C, 206-216 (2014).
- Margine, I., Krammer, F. Animal Models for Influenza Viruses: Implications for Universal Vaccine Development. Pathogens. 3 (4), 845-874 (2014).
- Bouvier, N., Lowen, A. C. Animal Models for Influenza Virus Pathogenesis and Transmission. Viruses. 2 (8), 1530-1563 (2010).
- Pica, N., Iyer, A., Ramos, I., Bouvier, N. M., Fernandez-Sesma, A., García-Sastre, A., Lowen, A. C., Palese, P., Steel, J. The DBA.2 mouse is susceptible to disease following infection with a broad, but limited, range of influenza A and B viruses. J Virol. 85 (23), 12825-12829 (2011).
- Watanabe, H., Numata, K., Ito, T., Takagi, K., Matsukawa, A. Innate immune response in Th1- and Th2-dominant mouse strains. Shock. 22 (5), 460-466 (2004).
- Srivastava, B., Blazejewska, P., Hessmann, M., Bruder, D., Geffers, R., Mauel, S., Gruber, A. D., Schughart, K. Host genetic background strongly influences the response to influenza a virus infections. PLoS One. 4 (3), e4857(2009).
- Lowen, A. C., Bouvier, N. M., Steel, J. Transmission in the Guinea Pig Model. Curr Top Microbiol Immunol. 385, 157-183 (2014).
- Schickli, J. H. Plasmid-only rescue of influenza A virus vaccine candidates. Philos Trans R Soc Lond B Biol Sci. 356 (1416), 1965-1973 (2001).
- Martinez-Sobrido, L., Garcia-Sastre, A. Generation of recombinant influenza virus from plasmid DNA. J Vis Exp. (42), (2010).
- National Research Council (U.S.) Committee for the Update of the Guide for the Care and Use of Laboratory Animals., Institute for Laboratory Animal Research (U.S.). Guide for the care and use of laboratory animals. , 8th ed, National Academies Press (U.S.). (2011).
- Reed, L. J., Muench, H. A simple method of estimating fifty percent endpoints. The American Journal of Hygiene. 27 (3), 493-497 (1938).
- Golde, W. T., Gollobin, P., Rodriguez, L. L. A rapid, simple, and humane method for submandibular bleeding of mice using a lancet. Lab Animal. 34 (9), 39-43 (2005).
- Nogales, A. A temperature sensitive live-attenuated canine influenza virus H3N8 vaccine. J Virol. , (2016).
- Eisfeld, A. J., Neumann, G., Kawaoka, Y. Influenza A virus isolation, culture and identification. Nat Protoc. 9 (11), 2663-2681 (2014).
- Guo, H., Baker, S. F., Martinez-Sobrido, L., Topham, D. J. Induction of CD8 T cell heterologous protection by a single dose of single-cycle infectious influenza virus. J Virol. 88, 12006-12016 (2014).
- CDC: Centers for Disease Control and Prevention. Antigenic Characterization. , Available from: http://www.cdc.gov/flu/professionals/laboratory/antigenic.htm (2017).
- He, W., Mullarkey, C. E., Miller, M. S. Measuring the neutralization potency of influenza A virus hemagglutinin stalk/stem-binding antibodies in polyclonal preparations by microneutralization assay. Methods. , (2015).
- Gulati, U. Antibody epitopes on the neuraminidase of a recent H3N2 influenza virus (A/Memphis/31/98). J Virol. 76 (23), 12274-12280 (2002).
- Beare, A. S., Webster, R. G. Replication of avian influenza viruses in humans. Arch Virol. 119, 37-42 (1991).
- Rowe, T. Detection of antibody to avian influenza A (H5N1) virus in human serum by using a combination of serologic assays. J Clin Microbiol. 37 (4), 937-943 (1999).
- Stephenson, I., Wood, J. M., Nicholson, K. G., Zambon, M. C. Sialic acid receptor specificity on erythrocytes affects detection of antibody to avian influenza haemagglutinin. J Med Virol. 70 (3), 391-398 (2003).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
