Dit manuscript beschrijft methodes voor het toepassen van peptide microarray technologie op specificiteit profilering van antilichamen die histonen herkennen en hun post-translationele modificaties.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Analyse van Histone Antilichaam Specificiteit Met Peptide Microarrays
In dit artikel
Samenvatting
Samenvatting
Post-translationele modificaties (PTM's) op histonproteïnen worden op grote schaal onderzocht voor hun rol bij het reguleren van chromatinestructuur en genexpressie. De massaproductie en distributie van antilichamen die specifiek zijn voor histone PTM's, hebben dit onderzoek op grote schaal vergemakkelijkt. Aangezien histon PTM-antilichamen belangrijke reagentia zijn voor veel chromatin-biochemie toepassingen, is een nauwkeurige analyse van antilichaamspecificiteit noodzakelijk voor nauwkeurige data-interpretatie en voortdurende vooruitgang op het gebied. Dit protocol beschrijft een geïntegreerde pijpleiding voor het ontwerp, fabricage en gebruik van peptide microarrays voor het profileren van de specificiteit van histonantilichamen. De ontwerp en analyse aspecten van deze procedure worden vergemakkelijkt door ArrayNinja, een open source en interactief softwarepakket dat we onlangs ontwikkeld hebben om de aanpassing van microarrayformaten te stroomlijnen. Deze pijpleiding is gebruikt om een groot aantal commercieel verkrijgbare en veel gebruikte histone PTM antibodies te screenenS, en gegevens die gegenereerd worden uit deze experimenten zijn vrij beschikbaar via een online en expanderende Histone Antibody Specificity Database. Naast histonen kan de hierin beschreven algemene methodologie in grote mate toegepast worden op de analyse van PTM-specifieke antilichamen.
Inleiding
Genomisch DNA wordt elegant verpakt in de eukaryote celkern met histonproteïnen om chromatine te vormen. De herhalende subeenheid van chromatine is het nucleosoom, dat bestaat uit 147 basisparen DNA die rond een octamerische kern van histonproteïnen - H2A, H2B, H3 en H4 1 worden gewikkeld. Chromatine is in ruime mate georganiseerd in losgekoppelde euchromatine en strak verpakte heterochromatin domeinen. De mate van chromatine compactie regelt de mate waarin eiwit machines kunnen toegang krijgen tot het onderliggende DNA om fundamentele DNA-templated processen zoals replicatie, transcriptie en reparatie uit te voeren.
Belangrijke regelgevers van de toegankelijkheid van genoom in het kader van chromatine zijn PTM's op de niet-gestructureerde staart- en kerndomeinen van histonproteïnen 2 , 3 . Histon PTM's functioneren direct door de structuur van chromatine 4 en indirecte invloed te beïnvloedenH de aanwerving van lezerproteïnen en hun bijbehorende macromoleculaire complexen die chromatine remodellerende, enzymatische en steigerwerk hebben 5 . Studies van histone PTM functie over de afgelopen twee decennia suggereren overweldigend deze markeringen spelen sleutelrollen bij het reguleren van celfate, organismeontwikkeling en ziekte-initiatie / progressie. Gevoed door de vooruitgang in de massaspectrometrie gebaseerde proteomische technologie, zijn meer dan 20 unieke histon PTM's op meer dan 80 verschillende histonenresiduen ontdekt 6 . In het bijzonder komen deze wijzigingen vaak voor bij combinaties, en in overeenstemming met de hypothese van de histoncodes, zijn tal van studies aan te geven dat lezerproteïnen gericht zijn op discrete gebieden van chromatine door herkenning van specifieke combinaties van histon PTMs 7 , 8 , 9 . Een belangrijke uitdaging voorwaarts is om functies toe te wijzen aan de grDoor een lijst van histon PTM's en om te bepalen hoe specifieke combinaties van histon PTM's de dynamische functies die geassocieerd zijn met chromatine orchestreeren.
Antilichamen zijn de lynchpin reagentia voor de detectie van histon PTMs. Als zodanig zijn meer dan 1000 histon PTM-specifieke antilichamen commercieel ontwikkeld voor toepassing in chromatin biochemieonderzoek. Met de snelle ontwikkeling van DNA-sequencing technologie met hoge doorstroming worden deze reagentia extensief gebruikt door individuele onderzoekers en grootschalige epigenomische "roadmap" -initiatieven ( bijv . ENCODE en BLUEPRINT) in ChIP-seq (chromatine immunoprecipitatie gekoppeld aan volgende generatie sequencing ) Pijpleidingen voor het genereren van hoge-resolutie ruimtelijke kaarten van histone PTM-distributie genoom-breed 10 , 11 . Echter, recente onderzoeken hebben aangetoond dat de specificiteit van histon PTM antilichamen zeer sterk kan zijn en dat deze reagentia onbeschikbaar zijn Waardevolle epitoopherkenning, sterke positieve en negatieve invloed van naburige PTM's en moeilijkheden om de modificatieorde op een bepaald residu te discrimineren ( bijvoorbeeld mono-, di- of tri-methyllysine) 12 , 13 , 14 , 15 , 16 , 17 , 18 . Daarom is strenge kwaliteitscontrole van histon PTM-specifieke antilichaamreagentia nodig om de gegenereerde gegevens met deze waardevolle reagentia nauwkeurig te interpreteren.
Microarray technologie zorgt voor gelijktijdige ondervraging van duizenden macromoleculaire interacties in een high-throughput, reproduceerbare en miniatuurformaat. Om deze reden zijn een verscheidenheid aan microarray platforms gecreëerd om eiwit-DNA 19 te analyseren ,"> 20, eiwit-eiwit 21 en eiwit-peptide interacties 22. Inderdaad, histone peptide microarrays zijn opgevat als een informatief ontdekkingsplatform voor chromatin biochemie onderzoek, waardoor high-performance profielen van de schrijvers, wisers en lezers van histone PTMs 15 mogelijk zijn. , 23, 24, en tevens voor de analyse van histon antilichaamspecificiteit 17, 25. Naast hun toepassing in chromatine en epigenetica onderzoek histonpeptide arrays potentiële bruikbaarheid als een diagnostische / prognostische test voor systemische lupus erythematosus en andere auto-immuun ziekten waarbij anti- Chromatine auto-antilichamen worden gegenereerd 26 , 27 .
Hier beschrijven we een geïntegreerde pijpleiding die we hebben ontwikkeld voor het ontwerpen, fabriceren en queHistone peptide microarrays rijst om specificiteitsprofielen te genereren voor antilichamen die histonen en hun PTM's herkennen. De pijplijn wordt vergemakkelijkt door ArrayNinja, een open source, interactieve software applicatie die we onlangs hebben ontwikkeld, die de ontwerp- en analysestadia van microarray-experimenten 28 integreren. ArrayNinja werkt het best in Google Chrome. In het kort wordt een robot-contact microarray printer gebruikt om een bibliotheek van biotine-geconjugeerde histonpeptiden te deponeren op bepaalde posities op streptavidine-beklede glasmicroscoopschuiven. Arrays kunnen dan in een competitief en parallel assayformaat gebruikt worden om antilichaam-epitoopinteracties te ondervragen ( Figuur 1 ). De peptidebibliotheek bestaat uit honderden unieke synthetische peptiden die PTM's bevatten (lysine acetylering, lysine / arginine methylering en serine / threonine fosforylering) en in relevante combinaties die grotendeels afkomstig zijn uit proteomische datasets. Methoden voor peptidsynthese en validatie Zijn elders gedetailleerd beschreven 23 . Gegevens die worden gegenereerd uit onze lopende histone PTM antilichaam screening inspanningen gebruik maken van dit array platform worden gearchiveerd op een openbare web resource, de Histone Antibody Specificity Database (www.histoneantibodies.com). Met name zijn histonepeptidemicroarrays die zijn vervaardigd met variaties van dit protocol, uitgebreid gebruikt om de activiteit van histone PTM-lezer domeinen 8 , 29 , 30 , 31 , 32 , 33 , 34 , 35 , 36 , 37 en meer recentelijk te profileren histone PTM-schrijver- en gumwerkactiviteiten 24 .
/files/ftp_upload/55912/55912fig1.jpg "/>
Figuur 1: Beeldvertoning van de stapse procedure voor het screenen van antilichamen op een microfoon van een histonpeptide. Biotinyleerde histonpeptiden die gedefinieerde post-translationele modificaties (rode en blauwe cirkels) bevatten, worden geco-gedrukt met biotine-fluoresceïne op streptavidine-gecoat glas. Positieve interacties worden weergegeven als rode fluorescentie. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Installeren en uitvoeren van ArrayNinja
- Download en installeer Oracle Virtual Box van www.virtualbox.org.
- Download en uncomprimeer de ArrayNinja virtuele machine (VM) van http://research.vai.org/Tools/arrayninja.
- Open Virtual Box en voeg de ArrayNinja VM toe door op 'Machine', 'Add' te klikken en selecteer arrayninja.vbox uit de map waar ArrayNinja VM is opgeslagen.
- Start ArrayNinja door deze in Virtual Box te selecteren en op de groene 'start' pijl te klikken.
- Virtual Box zal een nieuw venster openen en een bericht tonen dat de VM kan worden geopend door de webbrowser naar localhost te navigeren: 2080.60; OPMERKING: een container-versie van ArrayNinja is ook verkrijgbaar via hub.docker.com/r/bradley.dickson/arrayninja/
2. Het ontwerpen van de Array Slide en Source Plate Layout
- Klik op de koppeling die overeenstemt met de microarray printer die wordt gebruikt onder de heading 'Plan een dia-indeling' op de interface ArrayNinja.
OPMERKING: ArrayNinja is geprogrammeerd om de robotbeweging van twee veelgebruikte microarrayprinters na te bootsen (zie tabel1). Compatibiliteit met de andere array's kan op aanvraag worden geconfigureerd. - Klik in het dialoogvenster 'Laadplaat', typ 'leeg' en klik op 'invoeren'. Zie afbeelding 2 voor een screenshot van de ontwerpmodule ArrayNinja.
- Pas de plaatsdiameter aan op 275 μm en spotafstand tot 375 μm. De resterende instellingen aanpassen (Plate Blocks / Platenrij, Totaal Platte Rijen, Replicates, Functies in Y, Super Arrays, SuperA Fudge; zie Figuur 2 ) om aan te passen hoe de functies op de microarray slide verschijnen.
OPMERKING: De plaatsdiameter wordt bepaald door de grootte van de microarray pin. Aangezien deze instellingen zijn aangepast, wordt de real-time-update automatisch bijgewerkt. Gebruik deze cartoon om te bekijken hoe elke instelling de definitieve dia-indeling wijzigt. - Nadat de lay-out van de functies op de dia is gefinaliseerd, muis over elke unieke functie en voer de functieidentificatie in in het popup-dialoogvenster.
OPMERKING: Functieidentificatie kan bestaan uit nummers, letters of combinaties. Dit is alleen vereist voor unieke functies, en een dialoogvenster wordt niet weergegeven wanneer replicaten worden geselecteerd. - Nadat alle unieke kenmerken een identificatiecode zijn toegewezen, klikt u op 'invullen'. Voer een naam in voor de dia-lay-out en klik op 'print je bord' om op te slaan. Er wordt een nieuwe pagina geopend waarin het aantal 384-bronplaten wordt weergegeven die nodig zijn om het gekozen dia-ontwerp te fabriceren en een tabel die de fysieke locatie van elke functie in de bronplaat (en) in kaart brengt.
OPMERKING: Onthoud deze naam, aangezien het gebruikt wordt om dit ontwerp te herroepen bij het analyseren van microarray data (zie paragraaf 6.2). Door op 'print je bord' te klikken wordt de lay-out opgeslagen in ArrayNinja.

Figuur 2: ArrayNinja Design Module. Een schermafbeelding van de De ontwerpmodule ArrayNinja wordt getoond in de stippellijn. Het bedieningspaneel (bovenaan) toont alle parameters die op de microarray printer kunnen worden gewijzigd. Naarmate deze parameters worden aangepast, wordt het beeldverhaalbeeld van de dia-indeling (linksonder) in real time bijgewerkt. Nadat de lay-out is ingesteld, kan de gebruiker de muis over individuele plekken invoeren om unieke kenmerkidentificaties in te voeren. ArrayNinja constructies van deze gebruiker invoeren een kaart van de positie van elke functie in de bronplaat (en) (rechtsonder) die nodig is om een gespecificeerde microarray slide layout te fabriceren. Klik hier om een grotere versie van deze figuur te bekijken.
3. Fabricage Microarrays
- Het voorbereiden van de bronplaat
- Gebruik de kaart die is gegenereerd met ArrayNinja in sectie 2.5 om de 384-bronplaatjes te maken.
OPMERKING: Gedetailleerde beschrijvingen van peptiden die op dit platform worden gevraagd, kunnen elders worden gevondenS = "xref"> 17. - Deponeer 1 - 2 μL van elk kenmerk ( bijv . Biotinylated histonpeptide) in de juiste put van de 384-bronplaat (s).
OPMERKING: Biotinyleerde histonpeptiden worden gewoonlijk gedeponeerd van 200 tot 400 μM voorraadoplossingen, die overeenkomt met 10 tot 25 maal molair overmaat van peptide aan streptavidine bindingsplaatsen in een enkele array-plek. Dit wordt berekend aan de hand van de vergelijking: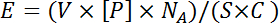
Waar V het volume is van een pin, [ P ] is de concentratie van het kenmerk gedrukt, N A is Avogadro's nummer en S is het oppervlak van een punt. C is de dekking van de dia, uitgedrukt als het aantal streptavidine moleculen per eenheidsruimte vermenigvuldigd met drie (het gemiddelde aantal beschikbare streptavidine bindingsplaatsen). V en C worden verkregen door de respectieve fabrikant. Andere functies kunnenVerschillende concentraties vereisen, afhankelijk van de grootte van de biomolecule, waar men zich kan bezighouden met crowding. Een reeks drukkoncentraties voor elk nieuw type kenmerk moet empirisch getest worden om de optimale drukconcentratie te bepalen. - Verdun elke functie 10 keer met 1x drukbuffer aangevuld met 1% boviene serumalbumine (BSA). Spin de bronplaat (en) bij 500 xg gedurende 2 minuten bij kamertemperatuur.
OPMERKING: De opname van fluoresceïne-gemarkeerde biotine (5 μg / μL) in de drukbuffer wordt aanbevolen als een spottingcontrole en als een visuele hulpmiddel om de correcte array-uitlijning tijdens analyse te vergemakkelijken (zie Figuur 4 ).
- Gebruik de kaart die is gegenereerd met ArrayNinja in sectie 2.5 om de 384-bronplaatjes te maken.
- Printprotocol ( Figuur 3A - B ).
- Bereid de matrix op door de afvalverzamelingsbak leeg te maken en de wasoplossingscontainer en luchtbevochtiger te vullen met steriel gedestilleerd water.
- Voer de parameters u inSed om de dia in ArrayNinja (sectie 2 en figuur 2 ) te ontwerpen in het microarray printer control programma.
- Met behulp van het microarray printerbesturingsprogramma, instelt u de wasprocedure voor een 1 s was met één onderdompeling. Stel de post-wash instellingen in om de pennen 5 keer na elke was opnieuw te duwen. Stel de vochtigheid in op 60%.
OPMERKING: De optimale wasconfiguratie kan variëren afhankelijk van de gebruikte microarray printer. De optimale configuratie voor de afwas van de waspijp kan variëren afhankelijk van de gebruikte microarray printer. - Voeg gefunctionaliseerde glijbanen ( bijv . Streptavidine-gecoat glas) in de substraatplaten en plaats alle platen in de platenlift. Plaats de bronplaat (en) in de plaathouder (en) en plaats in de bronplaatlift.
- Klik op 'afdrukken'. Controleer het afdrukproces voor een paar rondes van de functieafzetting om ervoor te zorgen dat alle was- en dipinstellingen correct zijn. Wanneer het afdrukken is voltooid, verwijderDe substraatplaten van de matrix.
OPMERKING: Wanneer grote afdrukopdrachten binnen een dag de voltooiing van blokkerende stappen verbieden, kunnen gedrukte dia's gedurende een nacht in een bevochtigde kamer bij 4 ° C worden geïncubeerd. Incubeer de glijbanen naast een kleine beker water in een kartonnen doos verzegeld met plastic wrap. - Blok de dia's met blokkeerbuffer gedurende 30 minuten bij kamertemperatuur bij het mengen.
- Was de glijbanen 2 x 10 min bij kamertemperatuur in fosfaatgebufferde zoutoplossing (PBS), pH 7,6 bij mengen. Droog de glijbanen door gedurende 30 s bij kamertemperatuur een micro-glij centrifuge te draaien.
OPMERKING: Voor het verwerken van een groot aantal glijbanen tegelijk, kan een hoge-doorvoermicroscoop-waskamer worden gebruikt, waardoor 50 slides parallel kunnen worden gewassen. - Voor dia's die zijn ontworpen om met wax te worden gesplitst, ga verder naar sectie 4.1. Voor alle andere ontwerpen dient u glijbanen op 4 ° C te beschermen tegen licht en vocht.
OPMERKING: Gedrukte biotinyleerde histonpeptidenZijn tenminste 6 maanden stabiel wanneer deze op deze manier wordt opgeslagen.
4. Partitionering Microarray Slides
- Hydrofobe Wax Pen ( Figuur 3C )
- Breng wassen rond de gebieden die functies bevatten met behulp van een waspen. Laat de was gedurende 5 minuten drogen voordat u verder gaat naar sectie 5.
OPMERKING: na het blokkeren kunnen de array spots erg moeilijk zijn om per oog te visualiseren. Het dia-ontwerp van ArrayNinja kan op schaal gedrukt worden en worden gebruikt als handleiding voor het aanbrengen van was.
- Breng wassen rond de gebieden die functies bevatten met behulp van een waspen. Laat de was gedurende 5 minuten drogen voordat u verder gaat naar sectie 5.
- Silicone pakking ( Figuur 3D )
- Schil de heldere film van de achterkant van de array-pakking en plaats de kleefzijde naar beneden op de microbalkdia.
- Houd de pakking 5 seconden vast voordat u verder gaat naar sectie 5.
- Wax Imprint ( Figuur 3E )
- Voor glijbanen die zijn ontworpen om te worden verdeeld door was, print een testglijbaan op gewoon glas met 10% BSA. Gebruik deze testdia om de wimprintergeleiders of -instellingen te optimaliseren om ervoor te zorgen dat alle functies binnen de wasmaskamers staan.
- Verhit de microarraywasimprinter tot 85 ° C tot alle wassen volledig gesmolten zijn, ongeveer 30 minuten.
- Plaats de dia met de afgedrukte zijde naar beneden gericht en druk de dia helemaal naar de rechtergeleider van de microarray imprinter. Trek de hendel om de vorm in contact te brengen met het oppervlak van de dia. Houd voor 2 s.
OPMERKING: De houdtijd kan worden gewijzigd om de optimale wax grensdikte te bereiken. - Verwijder de glijbaan snel en inspecteer de wasgronden om ervoor te zorgen dat alle putjes zijn ingesloten en dat de gronden niet zo dik zijn dat ze op de plekken raken. Bewaar glijbanen bij 4 ° C, beschermd tegen vocht en licht.
OPMERKING: De houdtijd kan worden verhoogd of verlaagd om dikker of dunner randen te verkrijgen.

Figuur 3: Microarray Fabrication. (A) Histonepeptide microarray fabricage op streptavidine bedekte microscoop dia's met behulp van een contact microarray printer. (B) Microarrays gefabriceerd met 3 subarrays van een 48 x 48 rooster van peptide eigenschappen. Scheiding van (C) 3 subarrays met een hydrofobe waspen, (D) 2 subarrays met een siliconenlijm, en (E) 48 subarrays met een wax afdruk. Alle getoonde microarrays worden vervaardigd met behulp van 25 x 75 mm microscoopschuiven. Klik hier om een grotere versie van deze figuur te bekijken.
5. Hybriliseren van een histon PTM-antilichaam met een peptide microarray
- Bereid hybridisatiebuffer (PBS, pH 7,6, 5% BSA, 0,1% Tween-20).
- Equilibreer de dia in hybridisatiebufferGebruikmakend van een hybridisatievat. Dek de gehele dia volledig in de hybridisatiebuffer en incubeer gedurende 30 minuten bij 4 ° C op een orbitale shaker bij lage snelheid.
- Bereid een oplossing die verdund histon PTM antilichaam in hybridisatie buffer.
OPMERKING: In de voorbeeldgegevens werden beide histonenantibody # 1 en antilichaam # 2 verdund 1: 1000 in hybridisatiebuffer. Een verdunningsbereik vergelijkbaar met die welke gebruikt wordt voor immunoblotting wordt als uitgangspunt aanbevolen. - Incubeer de matrix met de antilichaamoplossing gedurende 1 uur bij 4 ° C. Verwijder de antilichaamoplossing en wasser de matrix 3 keer gedurende 5 minuten bij 4 ° C met koude PBS, pH 7,6.
- Bereid een 1: 5000 - 1: 10.000 verdunning van fluorescerend kleurstofconjugaat secundair antilichaam in hybridisatiebuffer.
- Incubeer de matrix met secundaire antilichaamoplossing gedurende 30 min bij 4 ° C, beschermd tegen licht. Verwijder de secundaire antilichaamoplossing en wasser de microarray dia 3 keer gedurende 5 minuten bij 4 ° C met PBS, pH 7,6. onderdompelingDe microarray in een 50 ml conische buis die 0,1 x PBS, pH 7,6 bevat om overmaat zout bij kamertemperatuur te verwijderen. Droog de dia in een micro-glij centrifuge bij kamertemperatuur.
- Scan de dia met een microarray scanner met een resolutie van 25 μm of hoger, in overeenstemming met het aanbevolen scanprotocol van de microarray scanner.
OPMERKING: Als er een fluoresceïne-gemarkeerde biotin-tracer aanwezig is, scan dan zowel het groene kanaal (ex: 488 nm, em: 509 nm) en het kanaal dat overeenstemt met het fluorescerende kleurstof-geconjugeerde secundaire antilichaam, typisch rood (ex: 635 nm, em : 677 nm). Het doel van het scannen is het verkrijgen van enkele kanalen .tif-bestanden die kunnen worden samengevoegd tot een enkel .png-bestand (zoals beschreven in paragraaf 6.1).
6. Analyse van Microarray Data met behulp van ArrayNinja
- Voorbereiding van een samengevoegde microarray afbeelding
OPMERKING: Het doel van deze sectie is om een .png-beeldbestand te maken dat de twee single-channel .tif-bestanden combineert (verkregen in sectie 5). DezeIs het enige beeldformaat compatibel met de ArrayNinja-analysemodule. De volgende instructies zijn een mogelijke manier om een samengevoegd beeldbestand te verkrijgen. Er zijn echter andere oplossingen beschikbaar ( bijvoorbeeld de freeware ImageJ).- Van de opdrachtregel in een bash-terminal van een computer waarop de freeware ImageMagick is geïnstalleerd, gaat u naar de map die de single-channel .tif-bestanden bevat en kopieert / plakt de volgende stappen, waarbij u tussen elke stap 'enter' past (6.1.4 - 6.1 0,7).
OPMERKING: Bestandsnamen in hoofdletters ( bijv . RED_CHANNEL) moeten worden vervangen door de bestandsnaam van de microarray diabeelden. - Indien nodig, moet u eerst de beelden omzeilen met het commando 'INPUT.tif-negate OUTPUT.tif' converteren. Dit is nodig als de scanner .tif-bestanden opslaat met het signaal in wit en achtergrond in zwart.
- Convert -depth 16 RED_CHANNEL.TIF -clone 0 -kanaal GB -evalueren set 0 -delete 0 out.png 2> error.file.
- convErdiepte 16 CONTROL_CHANNEL.TIF -clone 0 -kanaal RB -evalueren set 0 -delete 0 outa.png 2> error.file.
- Convert -depth 16 CONTROL_CHANNEL.TIF -clone 0 -kanaal RG -evalueren set 0 -delete 0 outB.png 2> error.file.
- Converteren out.png outa.png outB.png -set kleurenruimte RGV -combine merged.png.
OPMERKING: Een bestand genaamd 'merged.png' wordt opgeslagen in dezelfde map als de originele .tif-bestanden.
- Van de opdrachtregel in een bash-terminal van een computer waarop de freeware ImageMagick is geïnstalleerd, gaat u naar de map die de single-channel .tif-bestanden bevat en kopieert / plakt de volgende stappen, waarbij u tussen elke stap 'enter' past (6.1.4 - 6.1 0,7).
- Kwantificeren van gegevens met behulp van ArrayNinja
- Open ArrayNinja en klik op de desbetreffende microarray-printerkoppeling onder "Om beelden met een bekende bronplaat te kwantificeren." Typ de naam van het opgeslagen dia-ontwerp (stap 2.5) in het dialoogvenster 'Laadplaat' en klik op 'Enter'. Zie afbeelding 4 voor een screenshot van de analysemodule ArrayNinja.
- Klik op 'Bestand kiezen' en navigeer naar en selecteer het 'merged.png' bestand dat is gemaakt in sectie 6.1. Het samengevoegde beeldIk zal even laden als een raster voor de dia-indeling.
- Gebruik de schuifregelaars onderaan het bedieningspaneel ArrayNinja om het contrast, de helderheid en het middenpunt aan te passen.
OPMERKING: Deze aanpassingen zijn alleen voor visualisatie doeleinden en hebben geen invloed op kwantificering. - Selecteer 'resolutie' en voer de waarde in die overeenkomt met de resolutie van het gescande beeld. Gebruik de "margezijde" en "marge top" om het raster in de lijn te brengen met de plekken op de array. Pas zo nodig aan om het raster zo dicht mogelijk op elke plaats te plaatsen.
- Klik op 'Spotzoek' en wacht tot de knop terugkeert naar de oorspronkelijke grijze kleur.
OPMERKING: dit kan meerdere malen herhaald worden om de netcirkels op individuele plekken te centreren. De zoekfunctie ontspant het rooster naar elke plaats om de uitlijning af te stemmen. - Wijzig de waarde "Super Arrays" naar "1" om elk sub-array op te stellen (indien gewenst). Als u een 4 gebruiktX 12 wax afdrukglijlayout ( Figuur 3E ), gebruik de "iPin" "jPin" en "subA" regelaars om functies uit te schakelen om elke gewenste combinatie van 4 x 12 putjes te analyseren. Om bijvoorbeeld de linkerboven- en bovenste rechterbronnen als replicaten van elkaar te analyseren, voer "1 4" in iPin, "1 1" in jPin en "1 4" in subA. Druk op Enter'.
- Beweeg de muis over individuele plekken om de identiteit van die functie te bekijken.
- Klik op 'Toggle zoom' om de functies nauwkeuriger te bekijken. Selecteer achtergrondreferenties door op de 'R' -toets te drukken terwijl de muis over een plek is. Referentiepunten worden in oranje gemarkeerd.
OPMERKING: in de modus "schakelen zoom" wordt een vergrote afbeelding van het kenmerk dat de muis over is, in de rechterbovenhoek weergegeven. Een gedetailleerde bespreking van extra achtergrondcorrectiefuncties in ArrayNinja worden elders 28 besproken. - Wissel plaatsen (met veel gevarieerde spotmorfologie of puin die de nauwkeurige kwantificering beïnvloedt) door op de A-toets te drukken terwijl u de muis over de getroffen plekken hoeft te zwenken. Geactiveerde vlekken worden wit.
- Klik op 'Vul', gevolgd door 'Submit' om de spots te kwantificeren.
OPMERKING: op een nieuw tabblad wordt een balkdiagram geopend van de genormaliseerde gegevens naar het helderste spotgemiddelde. Een tabel onder de staafdiagram bevat zowel de genormaliseerde als de ruwe data waarden. Deze tabel kan worden gekopieerd in een spreadsheet voor archivering en verdere analyse.

Figuur 4: ArrayNinja Analyse Module. Een schermafbeelding van de analysemodule ArrayNinja wordt getoond. Het bedieningspaneel (linksboven) toont alle parameters die kunnen worden aangepast om de array te visualiseren, plekken te vinden en een raster in te stellen over deArray afbeelding. Als u de muis over een functie beweegt, wordt een ingezoomde weergave (rechtsboven) weergegeven en wordt een popup weergegeven die de identificatiegegevens bevat die bij die functie zijn gekoppeld (onder). Referentiepunten geselecteerd voor achtergrondcorrectie zijn oranje. Kenmerken die uit de stroomafwaartse analyse worden uitgesloten, zijn wit. ArrayNinja bevat een zoekfunctie op basis van tekst die accentuele eigenschappen in geel markeert, zoals getoond in het voorbeeld voor H4K16. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Dit protocol is gebruikt om een peptide microarray platform te ontwerpen en fabriceren voor de analyse van histon PTM antilichaam specificiteit. De array vraagt een bibliotheek met meer dan 300 unieke peptidefuncties (20 tot 40 resten in lengte), die veel van de bekende combinaties van PTM's vertegenwoordigen, gevonden op kern- en varianthistonproteïnen 38 . Deze pijpleiding is een werkhorst voor het screenen van veel veelgebruikte en in de handel verkrijg...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De betrouwbaarheid van antilichamen in biomedische onderzoekstoepassingen is voornaamste 46 , 47 . Dit geldt met name in chromatin biochemie gezien de positie van antilichamen als belangrijke instrumenten voor de meerderheid van de technieken ontwikkeld om de overvloed en verdeling van histon PTMs te karakteriseren. Het protocol presenteerde hier details een geoptimaliseerde pijpleiding voor het ontwerp, fabricage en gebruik van peptide microarrays om de histon ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk werd gedeeltelijk ondersteund door het Van Andel Research Institute en een onderzoeksbijdrage van de National Institutes of Health (CA181343) naar SBR
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Printing Buffer | ArrayIt | PPB | |
| BSA | Omnipure | 2390 | |
| Streptavidin-coated glass microscope slides | Greiner Bio-one | 439003-25 | |
| polypropylene 384 well plate | Greiner Bio-one | 784201 | |
| Biotin-fluorescein | Sigma | 53608 | |
| contact microarray printer | Aushon | 2470 | Aushon 2470 Microarray Printer |
| contact microarray printer | Gene Machines | OmniGrid 100 | OmniGrid Microarray Printer |
| PBS | Invitrogen | 14190 | |
| Blocking Buffer | ArrayIt | SBB | |
| Hydrophobic wax pen | Vector Labs | H-4000 | ImmEdge Hydrophobic Barrier PAP Pen |
| Silicon Gasket | Grace Bio-labs | 622511 | |
| Hybridization Vessel | Thermo Scientific | 267061 | of soortgelijk vat |
| Fluorescent-dye conjugated secondary antibody | Life Technologies | A-21244 | Alexa Fluor 647 (anti-konijn) |
| Fluorescent-dye conjugated secondary antibody | Life Technologies | A-21235 | Alexa Fluor 647 (anti-muis) |
| Wax Imprinter | ArrayIt | MSI48 | |
| Tween-20 | Omnipure | 9490 | |
| Microarray Scanner | Innopsys | InnoScan 1100AL | of equivalent microarray scanner |
| EipTitan Histone Peptide Microarray | Epicypher | 112001 | |
| AbSurance Pro Histone Peptide Microarray | Millipore | 16668 | |
| MODified Histone Peptide Array | Active Motif | 13001 | |
| Histone Code Peptide Microarrays | JPT | His_MA_01 | |
| Wax | Royal Oak | GulfWax | voor wax imprinter |
| Humidified Microarray Slide Hybridization Chamber | VWR | 97000-284 | |
| High throughput microscope slide washing chamber | ArrayIt | HTW | |
| Microscope slide centrifuge | VWR | 93000-204 | |
| Antibody 1 | Abcam | 8898 | |
| Antibody 2 | Millipore | 07-473 | |
| Biotinylated histone peptide | EpiCypher | 12-0001 | Voorbeeldpeptide. Vergelijkbare peptiden met verschillende modificaties zijn verkrijgbaar bij verschillende commerciële bronnen. |
| ImageMagick | https://www.imagemagick.org/script/index.php | ||
| ArrayNinja | https://rothbartlab.vai.org/tools/ |
Referenties
- van Steensel, B. Chromatin: constructing the big picture. EMBO J. 30 (10), 1885-1895 (2011).
- Kouzarides, T. Chromatin modifications and their function. Cell. 128 (4), 693-705 (2007).
- Rothbart, S. B., Strahl, B. D. Interpreting the language of histone and DNA modifications. Biochim Biophys Acta. 1839 (8), 627-643 (2014).
- Shogren-Knaak, M., Ishii, H., Sun, J. -M., Pazin, M. J., Davie, J. R., Peterson, C. L. Histone H4-K16 acetylation controls chromatin structure and protein interactions. Science. 311 (5762), 844-847 (2006).
- Musselman, C. A., Lalonde, M. -E., Côté, J., Kutateladze, T. G. Perceiving the epigenetic landscape through histone readers. Nat Struct Mol Biol. 19 (12), 1218-1227 (2012).
- Huang, H., Sabari, B. R., Garcia, B. A., Allis, C. D., Zhao, Y. SnapShot: Histone Modifications. Cell. 159 (2), 458(2014).
- Strahl, B. D., Allis, C. D. The language of covalent histone modifications. Nature. 403 (6765), 41-45 (2000).
- Rothbart, S. B., Krajewski, K., et al. Association of UHRF1 with methylated H3K9 directs the maintenance of DNA methylation. Nat Struct Mol Biol. 19 (11), 1155-1160 (2012).
- Wang, Z., Zang, C., et al. Combinatorial patterns of histone acetylations and methylations in the human genome. Nat Genet. 40 (7), 897-903 (2008).
- Stunnenberg, H. G., Hirst, M. International Human Epigenome Consortium. The International Human Epigenome Consortium: A Blueprint for Scientific Collaboration and Discovery. Cell. 167 (5), 1145-1149 (2016).
- ENCODE Project Consortium. An integrated encyclopedia of DNA elements in the human genome. Nature. 489 (7414), 57-74 (2012).
- Egelhofer, T. A., Minoda, A., et al. An assessment of histone-modification antibody quality. Nat Struct Mol Biol. 18 (1), 91-93 (2011).
- Bock, I., Dhayalan, A., Kudithipudi, S., Brandt, O., Rathert, P., Jeltsch, A. Detailed specificity analysis of antibodies binding to modified histone tails with peptide arrays. Epigenetics. 6 (2), 256-263 (2011).
- Busby, M., Xue, C., et al. Systematic comparison of monoclonal versus polyclonal antibodies for mapping histone modifications by ChIP-seq. Epigenetics Chromatin. 9, 49(2016).
- Fuchs, S. M., Krajewski, K., Baker, R. W., Miller, V. L., Strahl, B. D. Influence of combinatorial histone modifications on antibody and effector protein recognition. Curr Biol. 21 (1), 53-58 (2011).
- Kungulovski, G., Jeltsch, A. Quality of histone modification antibodies undermines chromatin biology research. F1000Research. 4, 1160(2015).
- Rothbart, S. B., Dickson, B. M., et al. An Interactive Database for the Assessment of Histone Antibody Specificity. Mol Cell. 59 (3), 502-511 (2015).
- Rothbart, S. B., Lin, S., et al. Poly-acetylated chromatin signatures are preferred epitopes for site-specific histone H4 acetyl antibodies. Sci Rep. 2, 489(2012).
- Berger, M. F., Bulyk, M. L. Universal protein-binding microarrays for the comprehensive characterization of the DNA-binding specificities of transcription factors. Nat Protoc. 4 (3), 393-411 (2009).
- Hu, S., Wan, J., et al. DNA methylation presents distinct binding sites for human transcription factors. eLife. 2, e00726(2013).
- Moore, C. D., Ajala, O. Z., Zhu, H. Applications in high-content functional protein microarrays. Curr Opin Chem Biol. 30, 21-27 (2016).
- MacBeath, G., Schreiber, S. L. Printing proteins as microarrays for high-throughput function determination. Science. 289 (5485), 1760-1763 (2000).
- Rothbart, S. B., Krajewski, K., Strahl, B. D., Fuchs, S. M. Peptide microarrays to interrogate the "histone code" . Methods Enzymol. 512, 107-135 (2012).
- Cornett, E. M., Dickson, B. M., et al. Substrate Specificity Profiling of Histone-Modifying Enzymes by Peptide Microarray. Methods Enzymol. 574, 31-52 (2016).
- Nady, N., Min, J., Kareta, M. S., Chédin, F., Arrowsmith, C. H. A SPOT on the chromatin landscape? Histone peptide arrays as a tool for epigenetic research. Trends Biochem Sci. 33 (7), 305-313 (2008).
- Dieker, J., Berden, J. H., et al. Autoantibodies against Modified Histone Peptides in SLE Patients Are Associated with Disease Activity and Lupus Nephritis. PLoS ONE. 11 (10), (2016).
- Price, J. V., Tangsombatvisit, S., et al. "On silico" peptide microarrays for high-resolution mapping of antibody epitopes and diverse protein-protein interactions. Nat Med. 18 (9), 1434-1440 (2012).
- Dickson, B. M., Cornett, E. M., Ramjan, Z., Rothbart, S. B. ArrayNinja: An Open Source Platform for Unified Planning and Analysis of Microarray Experiments. Methods Enzymol. 574, 53-77 (2016).
- Gatchalian, J., Fütterer, A., et al. Dido3 PHD modulates cell differentiation and division. Cell Rep. 4 (1), 148-158 (2013).
- Cai, L., Rothbart, S. B., et al. An H3K36 methylation-engaging Tudor motif of polycomb-like proteins mediates PRC2 complex targeting. Mol Cell. 49 (3), 571-582 (2013).
- Rothbart, S. B., Dickson, B. M., et al. Multivalent histone engagement by the linked tandem Tudor and PHD domains of UHRF1 is required for the epigenetic inheritance of DNA methylation. Genes Dev. 27 (11), 1288-1298 (2013).
- Ali, M., Rincón-Arano, H., et al. Molecular basis for chromatin binding and regulation of MLL5. Proc Natl Acad Sci U S A. 110 (28), 11296-11301 (2013).
- Kinkelin, K., Wozniak, G. G., Rothbart, S. B., Lidschreiber, M., Strahl, B. D., Cramer, P. Structures of RNA polymerase II complexes with Bye1, a chromatin-binding PHF3/DIDO homologue. Proc Natl Acad Sci U S A. 110 (38), 15277-15282 (2013).
- Klein, B. J., Piao, L., et al. The histone-H3K4-specific demethylase KDM5B binds to its substrate and product through distinct PHD fingers. Cell Rep. 6 (2), 325-335 (2014).
- Kim, H. -S., Mukhopadhyay, R., et al. Identification of a BET family bromodomain/casein kinase II/TAF-containing complex as a regulator of mitotic condensin function. Cell Rep. 6 (5), 892-905 (2014).
- Greer, E. L., Beese-Sims, S. E., et al. A histone methylation network regulates transgenerational epigenetic memory in C. elegans. Cell Rep. 7 (1), 113-126 (2014).
- Andrews, F. H., Tong, Q., et al. Multivalent Chromatin Engagement and Inter-domain Crosstalk Regulate MORC3 ATPase. Cell Rep. 16 (12), 3195-3207 (2016).
- Sidoli, S., Lin, S., Karch, K. R., Garcia, B. A. Bottom-Up and Middle-Down Proteomics Have Comparable Accuracies in Defining Histone Post-Translational Modification Relative Abundance and Stoichiometry. Anal Chem. 87 (6), 3129-3133 (2015).
- Tsukada, Y., Ishitani, T., Nakayama, K. I. KDM7 is a dual demethylase for histone H3 Lys 9 and Lys 27 and functions in brain development. Genes Dev. 24 (5), 432-437 (2010).
- Tachibana, M., Sugimoto, K., Fukushima, T., Shinkai, Y. Set domain-containing protein, G9a, is a novel lysine-preferring mammalian histone methyltransferase with hyperactivity and specific selectivity to lysines 9 and 27 of histone H3. J Biol Chem. 276 (27), 25309-25317 (2001).
- Wu, H., Chen, X., et al. Histone methyltransferase G9a contributes to H3K27 methylation in vivo. Cell Res. 21 (2), 365-367 (2011).
- Koch, C. M., Andrews, R. M., et al. The landscape of histone modifications across 1% of the human genome in five human cell lines. Genome Res. 17 (6), 691-707 (2007).
- Okitsu, C. Y., Hsieh, J. C. F., Hsieh, C. -L. Transcriptional Activity Affects the H3K4me3 Level and Distribution in the Coding Region. Mol Cell Biol. 30 (12), 2933-2946 (2010).
- Zentner, G. E., Tesar, P. J., Scacheri, P. C. Epigenetic signatures distinguish multiple classes of enhancers with distinct cellular functions. Genome Res. 21 (8), 1273-1283 (2011).
- Garske, A. L., Oliver, S. S., et al. Combinatorial profiling of chromatin binding modules reveals multisite discrimination. Nat Chem Biol. 6 (4), 283-290 (2010).
- Baker, M. Reproducibility crisis: Blame it on the antibodies. Nature. 521 (7552), 274-276 (2015).
- Bradbury, A., Plückthun, A. Reproducibility: Standardize antibodies used in research. Nature. 518 (7537), 27-29 (2015).
- Nguyen, U. T. T., Bittova, L., et al. Accelerated chromatin biochemistry using DNA-barcoded nucleosome libraries. Nat Methods. 11 (8), 834-840 (2014).
- Frank, R. Spot-synthesis: an easy technique for the positionally addressable, parallel chemical synthesis on a membrane support. Tetrahedron. 48 (42), 9217-9232 (1992).
- Hilpert, K., Winkler, D. F. H., Hancock, R. E. W. Peptide arrays on cellulose support: SPOT synthesis, a time and cost efficient method for synthesis of large numbers of peptides in a parallel and addressable fashion. Nat Protoc. 2 (6), 1333-1349 (2007).
- Kudithipudi, S., Kusevic, D., Weirich, S., Jeltsch, A. Specificity analysis of protein lysine methyltransferases using SPOT peptide arrays. J Vis Exp. (93), e52203(2014).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
