In dit protocol, fluorescently geëtiketteerde T. cruzi werden ingespoten in transparante zebrafish larven en de beweeglijkheid van de parasiet werd waargenomen in vivo met licht blad fluorescentie microscopie.
Methodenartikel
Oprichting van larvale zebravis als Model van een dier te onderzoeken Trypanosoma cruzi Motility In Vivo
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
De ziekte van Chagas is een parasitische besmetting veroorzaakt door Trypanosoma cruzi, waarvan motiliteit niet alleen belangrijk voor lokalisatie, maar ook voor cellulaire bindend en invasie is. Huidige diermodellen voor de studie van T. cruzi toestaan beperkte waarneming van parasieten in vivo vertegenwoordigen een uitdaging voor begrip parasiet gedrag tijdens de eerste stadia van de infectie bij de mens. Deze protozoan heeft een flagellar fase in zowel vector- als zoogdieren gastheren, maar er zijn geen studies beschrijven haar beweeglijkheid in vivo. Het doel van dit project was om een levende gewervelde zebrafish model voor het evalueren van T. cruzi beweeglijkheid in het vaatstelsel. Transparante zebrafish larven werden ingespoten met fluorescently waargenomen met behulp van licht blad fluorescentie microscopie (LSFM), een noninvasive methode om levende organismen met hoge optische resolutie visualiseren en label trypomastigoten. De parasieten kunnen worden gevisualiseerd voor langere tijd te wijten aan de relatief lage risico van deze techniek van photodamage t.o.v. confocal of epifluorescence microscopie. T. cruzi parasieten werden waargenomen in de bloedsomloop van levende zebrafish in verschillen in de grootte van de bloedvaten en de dooier reizen. Ze kunnen ook gezien worden gekoppeld aan de dooierzak wand en aan de atrioventriculaire klep ondanks de sterke krachten die is gekoppeld aan de contracties van het hart. LSFM van T. cruzi-geënte zebrafish larven is een waardevolle methode die kan worden gebruikt om te visualiseren circuleren van parasieten en evalueren van hun tropisme, migratiepatronen en beweeglijkheid in de dynamische omgeving van het cardiovasculair systeem van een levend dier.
Inleiding
De ziekte van Chagas wordt veroorzaakt door de eencellige parasiet T. cruzi. Ongeveer 6 tot 7 miljoen mensen wereldwijd zijn geïnfecteerd met T. cruzi. De ziekte wordt overgebracht vooral in Latijns-Amerika, maar is gemeld in de Verenigde Staten, Canada, en vele Europese evenals sommige Western Pacific-landen, voornamelijk als gevolg van migratie van geïnfecteerde personen1. Chagas is grotendeels vectoren overgedragen en overgedragen op mensen door contact met de uitwerpselen van hematophagic insecten in de onderfamilie Triatominae, beter bekend als "kissing bugs". T. cruzi kunnen echter ook worden overgedragen via bloedtransfusies, verticale overdracht van moeder naar kind of inname van voedsel besmet met parasieten2. De acute fase van de infectie is vooral asymptomatische of constitutively symptomatisch en duurt van 6 tot 8 weken, waarna de betrokkenheid van het immuunsysteem controleert parasiet belasting, maar doet niet volledig elimineren de infectie3. De meeste individuen voer een chronische asymptomatische fase; echter, bijna 30% van de patiënten ontwikkelen een symptomatische chronische fase, waarin het cardiale systeem en minder vaak de spijsvertering en het zenuwstelsel gecompromitteerd4 zijn. Dit scenario vormt een uitdaging voor de behandeling van de ziekte en de controle, aangezien er geen vaccins beschikbaar, en er slechts twee effectieve medicijnen voor Chagas zijn: benznidazole en nifurtimox. Beide behandelingen kunnen vereist langdurige toediening en ernstige bijwerkingen2.
Toegenomen inzicht in het gedrag van T. cruzi is gedrag in vivo de sleutel tot het bepalen van de parasitaire migratie, cellulaire bijlage en invasie binnen de gastheer; een gebrek in vivo modellen beperkt de ontwikkeling van nieuwe therapeutische benaderingen. In vitro studies van T. cruzi infectie hebben aangetoond dat motiliteit van trypomastigoten belangrijk voor de binding aan host celmembranen en latere cellulaire invasie5 is. Uitputting van de energie in trypomastigoten in co-cultuur met een gevoelig cellijn is aangetoond dat het verminderen van cellulaire invasie6. Interessant, in trypanosomatids, heeft flagellar beweging ook gekenmerkt als een mechanisme van de belastingontduiking tegen parasiet-specifieke antilichamen7.
Flagellar motiliteit is al uitgebreid bestudeerde in vitro in Trypanosoma brucei, een nauw verwante parasiet waardoor Afrikaanse Trypanosomiasis8. In vitro studies van de beweeglijkheid van deze trypanosomen bleek dat de simulatie van de voorwaarden van bloed of lichaamsvloeistoffen, met inbegrip van de viscositeit en de aanwezigheid van obstakels die representatief zijn voor de cellen van het bloed, belangrijk voor de voorwaartse beweging van de parasiet9 is . Als van heeft het nog niet gelukt zijn te visualiseren van het verkeer van parasieten in de bloedbaan in vivo.
Zebravis larven zijn een krachtig model te bestuderen van de gastheer-pathogeen interacties in vivo. Ze zijn kleine, goedkope en relatief gemakkelijk te verhogen in vergelijking met andere gevestigde gewervelde modellen voor de ziekte van Chagas. Zebravis aangeboren en adaptieve immuunsysteem vergelijkbaar met mensen, maar hun adaptieve immuunsysteem begint te ontwikkelen op 4 dagen post bevruchting (dpf) en is niet rijp voor een ander aantal weken10. Tijdens de vroege ontwikkeling, wanneer alleen macrofagen aanwezig, is er een groot raam voor het bestuderen van de parasiet gedrag zonder onmiddellijke immuun interferentie10. Het grootste voordeel van het gebruik van larven van de zebravis als model voor het bestuderen van de pathogeen gedrag gewervelde ligt echter in hun optische transparantie, waardoor ze zich lenen voor microscopische screening en imaging11. Daarnaast zijn er meerdere hulpmiddelen te manipuleren vis genetica. Bijvoorbeeld, is de stam van Casper een mutant lijn van zebravis met geen pigmentatie, waardoor het dier volledig transparant en handig voor visualisatie van afzonderlijke organen en voor real-time tracking van ingespoten cellen12.
Een belangrijke beperking van longitudinale observatie van snel bewegende parasieten in met behulp van live zebrafish confocal of epifluorescence microscopie ligt in de onmogelijkheid van de beeldvorming op hoge acquisitie snelheden en grote penetratie diepten met goede beeldkwaliteit en lage risico van photodamage. Lichte blad fluorescentie micsroscopy (LSFM) is een opkomende beeldvormende techniek die overwint deze beperkingen om deze opmerkingen toe te staan. Met behulp van één doelstelling om fluorescentie en een tweede doelstelling van de orthogonale verlichting die alleen het brandvlak van de detectie-doelstelling verlicht te detecteren, is het mogelijk om hoge resolutie optische secties zoals bij een confocal microscoop, maar met aanzienlijk verlaagd photodamage, zelfs met betrekking tot epifluorescence microscopie13. De techniek van de LSFM die hier wordt gebruikt is één vliegtuig verlichting microscopie (SPIM), waarin een dun blad van licht een enkel vliegtuig binnen de larven van de zebravis verlicht genoemd.
Het doel van deze methodiek is om larvale zebravis als een levensvatbare niet-infectie model voor het begrijpen van T. cruzi beweeglijkheid en werking in vivo. Om dit te bereiken, wij transparante zebrafish larven ingespoten met fluorescently geëtiketteerde trypomastigoten, de cellulaire vorm die verantwoordelijk zijn voor de infectie van de mens, en het verkeer van T. cruzi in de cardiovasculaire circulatie van zebravis geïdentificeerd met behulp van LSFM.
Protocol
de volgende protocollen werden goedgekeurd door de institutionele Animal Care en gebruik Comité van Los Andes Universiteit (CICUAL). Bioveiligheidsniveau 2 (BSL-2) richtsnoeren dient strikt te worden gevolgd om te voorkomen dat besmetting met het pathogene agens T. cruzi.
Opmerking: verzorging van de dieren en onderhoud: Casper zebrafish, een genetisch gemodificeerde stam van zebravis (Danio rerio) wordt gebruikt in dit protocol als gevolg van hun waardevolle optische transparantie in alle ontwikkelingsstadia. Vis worden gemanipuleerd met behulp van optimale voorwaarden voor de soorten 14, in een 14 h licht-10 h donker cyclus, bij 28 ± 1 ° C, in een pH (7.0-7.4) gecontroleerd multi tank recirculatie water zorgsysteem. Dieren worden tweemaal per dag gevoed met levende Artemia (Artemia salina) en verrijkt met het fokken van voedsel. Alle protocollen werden goedgekeurd door CICUAL in Universidad de los Andes (C.FUA_14-017).
1. voorbereiding van de Water van de ei
- voorbereiden 0,6 g/L aquarium zout in reverse osmosis (RO) of gedeïoniseerd water (DI) en 0,01 mg/L methyleenblauw aan de oplossing toevoegen.
Opmerking: De gemeten geleidendheid moet van 400-500 µS/cm en pH niveau 7.2-7,9. Om te lager de pH, beluchten het ei water voor een paar uur.
2. Bereiding van tricaïne Stock oplossing
- voorbereiden 0,4% tricaïne stockoplossing door ontbinding van 400 mg tricaïne (MS-222) in 97.9 mL gedestilleerd water (ddH 2 van O). Nadat het poeder volledig is opgelost, breng de pH op 7.0 met behulp van 2,1 mL 1M Tris (pH 9.0) en de oplossing koelkast.
3. Voorbereiding van 1,0% laag smeltpunt Agarose
- los het lage smeltpunt punt agarose poeder in ei water met een eindconcentratie van 1,0%. Verwarm het mengsel in een magnetron of op een hete plaat met continue roeren totdat de agarose oplossing homogene verschijnt.
- Slaan de aliquots bij 4 ° C niet langer dan een week.
4. Paring Assay en embryo's worden verzameld
- drie dagen vóór de injecties instellen verparingen met behulp van gezonde paren van mannelijke en vrouwelijke vissen in het kweken van tanks. Verrijking met glazen knikkers en kunstplanten verbetert paaien. Verparingen moet worden ingesteld tijdens de middag en 's nachts verlaten.
- De volgende ochtend verzamelen de actieve eieren door aftappen van de tank door een zeef en de eieren met de ei-water wassen. Verwijder alle eieren door de zeef omkeren en ei water door de zeef gieten in een petrischaal. De embryo's om gezond te houden, hun water schoon door het verwijderen van alle vuil en dode embryo's met een plastic pipet van overdracht.
- Worden de embryo's overbrengen in een incubator bij een stabiele temperatuur van 28,5 ° C tot de ontwikkeling van de embryo's volgens de zebravis tijdelijke normen 15. Onderzoeken van de embryo's twee keer per dag, en gooi inviable eieren de koppeling om gezond te houden.
5. Embryo Dechorionation
Opmerking: deze procedure is vereist als de embryo's niet op het moment van de injectie uitgekomen hebben. In deze procedure " larven " zijn dieren uit hun chorion van 48 h post verder bevruchting (hpf).
- Op de dag van het experiment, plaats de petrischaal met de gezonde embryo's onder een ontleden stereoscoop.
- Grijpen tegengestelde uiteinden van het chorion met twee scherpe pincet (Dumont #5), en zachtjes scheur en haal het chorion open. Ongeveer 5-6 larven worden geïnjecteerd tegelijk, en meestal 3-4 zijn beeld.
- De chorions uit het water met behulp van een precisiepipet overdracht verwijderen.
6. Voorbereiding van de injectie materiaal
- bereiden 1.0 mm needles dunne wand glazen capillairen en een micropipet trekker apparaat gebruiken met de volgende instellingen: 2 lichte gewichten 1 zwaar gewicht, 2 mm bovenste pull + 5 mm onderste pull, 75,9 ° C (stap 1) + 78.2 ° C () Stap 2). Naalden in een petrischaal op een strook van het modelleren van klei opslaan. De ideale naald moet een smalle tip, als T. cruzi meten van ongeveer 20 x 1-3 µm en de naald gemakkelijk zal passeren. De lengte van de tip kan variëren: een langere tip is handig te bereiken van de diepere structuren, maar een kortere tip zullen meer rigide gemakkelijker voor de gebruiker van injectie.
Opmerking: De breinaalden tip hangt af van de temperatuur gebruikt: een hogere temperatuur voor stap 2 leidt tot een langer en fijner tip. - Bereid een 1,5% agarose oplossing in ddH 2 O en giet het in een 10 cm petrischaal. Betrekking hebben op een diepte van ongeveer 1,0 cm.
- Plaatst u een geprefabriceerde microinjection schimmel op de agarose en laat het stollen.
- Til de mal van de geprefabriceerde microinjection uit en Voeg ei water voor opslag bij 4 ° C. Dit voorkomt dat de agarose uitdroogt.
- Toevoegen ei water aan de stockoplossing van de tricaïne om een eindconcentratie van 150 mg/L. winkel bij 4 ° C.
7. Cel cultuur voor parasiet groei
- parasieten worden bijgehouden in een menselijke astrocytoom cellijn (CRL-1718) met behulp van de methode beschreven door Vargas-Zambrano et al. 16
- start van de cultuur van menselijke cellen in een T25 cultuur kolven (oppervlakte = 25 cm 2) bij een dichtheid van 2 x 10 5 of 4 x 10, 5 cellen in 4 mL van RPMI-1640 medium met 10% van foetaal kalfsserum (FCS), aangevuld met 2 mM L-glutamine, 4.5 g/L glucose, 10 mM HEPES, 1 mM pyruvaat en 1% penicilline-streptomycine (genoemd " voltooien media "). Incubeer de astrocytoom culturen bij 37 ° C in een omgeving met 5% CO 2.
- Zodra een enkelgelaagde confluente is, loskoppelen van de cellen met behulp van 2 mL van 0,25% van trypsine-EDTA door ze aan het broeden gedurende 3 minuten bij 37 ° C. visueel selectievakje cellen voor detachement en blokkeren van de oplossing van de trypsine 3 mL RPMI-1640 met 10% FCS in een tube van 15 mL.
- Centrifuge de celsuspensie voor 5 min op 1.350 x g.
- Wassen van de resulterende cellulaire pellet in DMEM medium in een tube van 15 mL en Centrifugeer gedurende 5 min bij 1.350 x g bij 22 ° C.
- De cellen in een Neubauer kamer en controle voor leefbaarheid in een lichte Microscoop op 40 X vergroting handmatig tellen.
- Zachtjes opnieuw geschorst de cellulaire pellet in 4 mL volledige media en gebruiken voor het maken van nieuwe celculturen met behulp van 2 x 10 5 cellen per T25 cultuur kolf.
8. T. cruzi cultuur en labelen
- parasieten zijn een stam oorspronkelijk verkregen uit een geïnfecteerde mens en gekenmerkt als een T. cruzi DA stam (MHOM/CO/01/DA), genotype Discrete typen eenheid (DTU) TcI 16. Na 3 of 4 dagen van kweken, verzamel de bewegende parasieten van de menselijke astrocytoom cel cultuur supernatant en Centrifugeer gedurende 5 min op 1.350 x g. negeren de middellange.
Opmerking: Parasieten in volledige medium kunnen worden gebruikt voor het opnieuw cultuur in een 1:1 verhouding met astrocytoom cellen in T25 cultuur kolven. - Zachtjes resuspendeer de pellet in 10 mL steriele 1 x fosfaat Buffer zoutoplossing (PBS) met 0,1% FCS en Centrifugeer gedurende 5 min op 1.350 x g.
- Verwijder het supernatant en resuspendeer in 1 mL PBS. Neem 10 µL voor het tellen van de vrijzwemmende parasieten in een zaal Neubauer.
- Nemen van de rest van het opnieuw gesuspendeerde parasieten (990 µL) en voeg 1 µL van Carboxyfluorescein DIACETAAT SuccinimiDyl Ester (CFSE), eindconcentratie 5.0 µM. Incubate gedurende 10 minuten bij kamertemperatuur.
Opmerking: CFSE voorraad bij 5 mM moet worden aliquoted en onderhouden bij -20 ° C. - Pellet de parasieten (1.350 x g, 5 min). Reconstrueren van de parasiet pellet door flicking de buis en wassen in 10 mL 1 x PBS-0.1% FCS gevolgd door een latere spin (1.350 x g, 5 min).
- Verwijder het supernatant en zachtjes resuspendeer de pellet gelabelde parasiet in 1 X PBS met het juiste volume te verkrijgen van een eindconcentratie van ongeveer 10-20 parasieten/nL voor injectie.
- Gebruiken een klein volume (∼ 10 µL, ongeveer 1 x 10 4 -2 x 10 4 parasieten) van trypomastigoten te beoordelen van de levensvatbaarheid en de etikettering. Een omgekeerde fluorescentie Microscoop kan worden gebruikt voor rechtstreekse visualisatie van de parasieten. In de doorvallend licht, modus, moet u controleren dat de parasieten verplaatsen. In de modus fluorescentie het fluoresceïne-isothiocyanaat (FITC)-filter te gebruiken om te beoordelen parasiet labeling.
9. Injecteren van zebravis larven
- parasiet laden
- nemen 10 µL van parasieten van de resuspensie (100 µL) en laad ze in de naalden van de gesloten glazen met behulp van een 10 µL microloader Pipetteer tip.
- Plaats de naald glas in de kaarthouder van de naald van de micromanipulator, gebruik van een magnetische standaard en plaats naast de stereoscoop.
- De fijne pincet gebruiken onder de stereoscoop, de naald maken een botte open gesneden beëindigen en de grootte van de druppel om te verkrijgen van een injectie hoeveelheid 1 meten nL (dit is gelijk aan de diameter van een kraal van 0.12-0.13 mm wanneer gemeten in minerale olie 17). Een langere tip heeft de voorkeur zodat de naald structuren bereiken kan diep in de vis zonder beschadiging van het weefsel. In dit protocol, een botte naald wordt gebruikt, maar een schuine naald kan ook worden gebruikt.
- Montage
- verdoving larven van 48 hpf, met 150 mg/L tricaïne. Controleer of ze niet reageren te raken, maar zorgen dat het hart klopt.
- Plaats van de larven in de microinjection agarose schimmel in een zijligging.
- Plaats van de houder van de naald naast de stereoscoop en het micromanipulator zodanig aanpassen dat de punt van de naald in het midden van het gezichtsveld is. Verplaats de petrischaal bereid in stappen 6.2 - naar 6.4 zodat de larvale dooier dicht bij het uiteinde van de naald ligt. Controleer de toestand van de larve te zorgen dat het hart kloppen blijft.
- De microinjector-waarden als volgt instellen: injectie druk 9.6 pond per inch (psi); druk houden: 20 psi; 100 ms bereik van gating periode waarde van 1,9 (overeenkomt met 10.9 ms). Het volume van de injectie moet tussen de 1-3 nL, met ongeveer 10-20 parasieten/nL.
10. Injectie van de parasiet
- Injecteer de vis in de superior-voorste gedeelte van de dooier in de koker van Cuvier. Deze stap moet worden beoefend om dierlijke voortbestaan na de injectie. Het duurt ongeveer 10 min te injecteren met succes 5-6 larven.
- Als een besturingselement, 1-2 larven te injecteren met hetzelfde voertuig volume (1 x PBS).
- Overbrengen in de larve vers ei water onmiddellijk.
11. LSFM montage van geïnjecteerd larven
- de larve geïnjecteerd met een lege petrischaal parasieten overbrengen en verwijder voorzichtig het omringende water met een plastic pipet en absorberend papier. Onmiddellijk Voeg 100 µL voorverwarmde 1,0% lage smelten punt agarose (zie stap 3 voor agarose voorbereiding) ter dekking van de larve. Zorgen de agarose is niet meer dan 40 ° C.
- Steek een rechte draad binnen een capillaire 1,0 mm glas en gebruik het als een zuiger te zuigen van de larve in een verticale positie. Zorg ervoor dat u laat een kleine hoeveelheid agarose boven de larve. Wacht totdat de agarose stolt voordat het blootstellen van de larve (dit vergt een paar minuten). Indien nodig, overtollige agarose onder de larve uitduwen en snijd het af
- Plaats van het capillair, in de monsterhouder microscoop en het einde met de larve totdat het hangt vrij van de capillaire uitduwen. Het specimen kamer moet worden gevuld met tricaïne oplossing (150 mg/L) en de temperatuur ingesteld op 28 ° C.
- Plaatst de larve voor de leerling van de doelstelling van de detectie met behulp van een XYZ-micromanipulator-systeem. Voor rotaties over de verticale as, gebruikt u een rotatie-fase. Positionering van de larve moet gebeuren in doorvallend licht, modus duidelijk identificeren larvale structuren.
12. LSFM Imaging van geïnjecteerd parasieten
- verandering aan fluorescentie-modus en de intensiteit van de verlichting, evenals de belichtingstijd te verminderen photodamage en optimaliseren van de resolutie van de tijd aan te passen. Voor deze bijzondere experimenten, we een kracht van 2,8-3.0 mW gebruikt voor het monster en elk frame voor 200 ms met behulp van een camera met 6.45 µm pixels en ~ 70% quantum efficiency bij de detectie golflengten blootgesteld. Deze instellingen moeten leiden tot voldoende belichte beelden op ongeveer 5 frames/s. Zorg ervoor dat u een doel met de hoogste numerieke mogelijk diafragma.
- Start een video acquisitie van de regio van belang (ROI). In ons geval, worden parasieten waargenomen gehecht aan kleppen en vrij bewegen rond het hart gebied. Het wordt aanbevolen om een video van een enkel vliegtuig na verloop van tijd, of het systeem te gebruiken micromanipulator of piëzo-galvo te richten verschillende vlakken terwijl de parasiet beweegt.
Opmerking: Deze procedure is handig voor korte overname tijden van maximaal 2 uur. Voor de lange termijn de verwerving, de larven moeten worden gemonteerd met behulp van alternatieve methoden 20.
13. Afbeelding verwerking en analyse van de verkregen gegevens
Opmerking: beeldverwerking werd uitgevoerd op een personal computer met een 2.90 GHz processor, 8.00 GB geheugen en een videokaart met 1.00 GB geheugen.
- Open de verworven dataset in het beeld processing software van keuze. De open software-FiJi wordt aanbevolen voor de verwerking van de gegevens van de LSFM en analyse 21.
- In de software van de analyse van de afbeelding, het aanpassen van helderheid en contrast niveau ter verbetering van de beelden.
Opmerking: Geen vaste parameters zijn gebruikt in dit geval, maar selecteren de " Auto " optie nuttig kan zijn voor het verkrijgen van een eerste verbetering. - Selecteer de ROI.
Opmerking: Voor het bijhouden van individuele parasieten, FiJi heeft zowel handmatige en automatische tracking plugins beschikbaar.
14. Herstellen beeld larven
- verwijderen de larve zorgvuldig uit het agarose met behulp fijne pincet en een haar lus tool. De vis ook terug overzetten naar vers ei water en controleer voor herstel na 15 min. terug de larve naar incubator bij 28 ± 0,5 ° C. U kunt ook gaan
- euthanaseren de verbeelde larven met een overdosis van tricaïne. Vervolgens, voeren de larven in een oplossing van natriumhypochloriet (6,15% NaClO) gedurende 5 minuten om te doden van de parasiet. Beschikken over volgens de instelling ' s standaardprotocollen.
Resultaten
Optimale omstandigheden voor injectie:
Groepen van zebravis larven waren geïnjecteerd 24, 48, 72, 96 en 120 hpf, op verschillende anatomische locaties, en hun voortbestaan werd elke dag gedurende 5 dagen onderzocht. Na 5 dagen injectie boeken, embryo's geïnjecteerd op 24 hpf had 6,25% (2/32) overleven, overwegende dat 95% (38/40) van larven geïnjecteerd 48 hpf overleefd. Als een besturingselement, waren larven geïnjecteerd met 1 x PBS als een voertuig. Er waren geen verschillen in overleving tussen voertuig-geïnjecteerd en parasiet-geïnjecteerd larven, die aangeeft geen parasitaire-afhankelijke effecten op de overlevingskansen van de vis (p = 0,08). Larven geïnjecteerd tussen 72-120 hpf had vergelijkbare overlevingskans van de patiënt tot 48 hpf-geïnjecteerd larven op constante geïnjecteerde volume. Voor alle procedures die hier gepresenteerd, werden 48 hpf larven gebruikt vanwege hun gemak van manipulatie en hebben ontwikkeld, organen en gemakkelijk penetrable huid zonder duidelijk schade na injectie.
Larven geïnjecteerd 48 hpf waren geïnjecteerd in de pericardvocht ruimte, staart spier, hindbrain ventrikel otic blaasje, chorda en buis van Cuvier in de dooierzak. Er waren geen verschillen in het voortbestaan van larven geïnjecteerd op verschillende anatomische sites. De snelste en gemakkelijkste regio te injecteren was echter dat de koker van Cuvier gelegen in het voorste deel van de dooierzak (Figuur 1, film 1). Injecties op die site mag de invoering van hogere volumes met een lager risico van schade aan vitale structuren. Daarnaast is deze regio tussen 24-72 hpf, een optimale site rechtstreeks toegang tot de ontwikkeling van therapieën en hart11.
Parasiet visualisatie met behulp van LSFM:
Binnen 8-10 minuten na injectie van T. cruzi in de koker van Cuvier, werden parasieten geïdentificeerd in zebrafish larven met behulp van LSFM als gevolg van hun CFSE fluorescent signaal en de optische transparantie van de larven. Na inoculatie, werden parasieten waargenomen dat ofwel nageleefd muren rond de bloedsomloop of reizen in de richting van de bloedstroom (Figuur 2en Figuur 3). Wanneer een parasiet verbonden aan een cardiale structuur, zoals de atrioventriculaire klep blijft, oscilleert het met hart contracties, die aangeeft dat de moleculaire mechanismen voor de hechting van parasieten effectief bij onze gewervelde model (Movie 2, Movie 3 zijn kunnen Aanvullende film 1). T. cruzi ook vasthouden aan de muren van de larvale dooierzak ( Figuur 2, Movie 2), een structuur die later zal worden convergentieperiode en deel uitmaken van de zebravis darm22. Dit zou vergelijkbaar met wat er gebeurt tijdens de fase van de chronische ziekte in geïnfecteerde mensen, waar de parasieten zijn gevonden in cardiomyocytes en in de spijsvertering zenuwstelsel23,24. Wanneer niet is aangesloten, dreef de parasieten via de bloedstroom in dezelfde richting als de erytrocyten ( Figuur 3, film 4). Parasieten kon worden waargenomen in verschillende grootte schepen van de vis, maar waren meer overvloedig in de pericardvocht ruimte en in de regio van de aangrenzende dooier met bloedstroom ( Figuur 2 Figuur 3, aanvullende film 2).
Op 10 min, elektronische post injectie werd het moeilijker om ter plaatse enkele vormen van de parasiet als gevolg van hun distributie langs de therapieën, en een onvermogen om snel scherm verschillende anatomische sites van de vis als gevolg van een beperkt gezichtsveld van de LSFM (bij 40 X vergroting ). Na 24 h post injection (hpi), het CFSE signaal begint te ophopen in de regio in de buurt van de ontwikkelingslanden darm (aanvullende figuur 1).
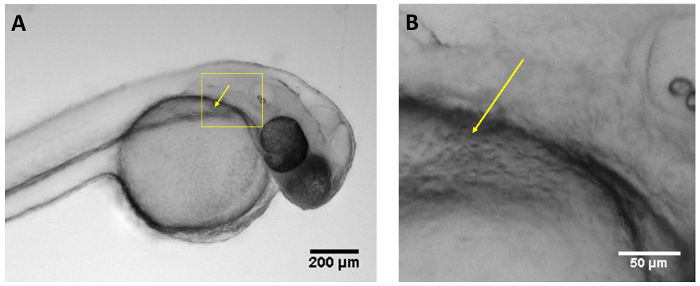
Figuur 1: Optimale injectieplaats. (A) afbeelding van larve 48 hpf tonen de optimale injectieplaats op de koker van Cuvier (gele pijl) met behulp van een regelmatige stereoscoop. (B) Magnified bekijken voor box in een tonen van de koker van Cuvier (gele pijl). Schaal bar = 200 µm (A), 50 µm (B). Klik hier voor een grotere versie van dit cijfer.
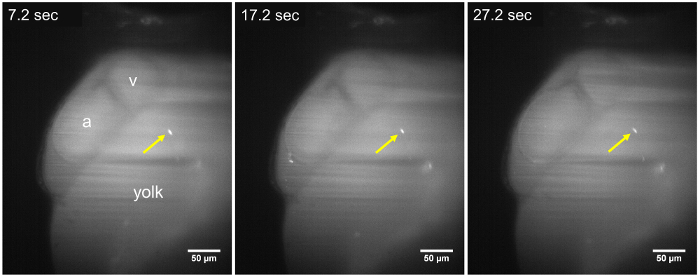
Figuur 2: LSFM beelden van een statische parasiet in een 48 hpf larve. De T. cruzi parasiet (gele pijl) blijft aan de muren van de dooierzak, gedurende de time-lapse opeenvolging zelfklevend (7.2 s, 17.2 s en 27.2 s), ongeveer ~ 15 min na injectie van de parasiet. Geen verandering in de positie van de parasiet wordt geconstateerd gedurende een periode van de verwerving van ten minste 30 s. a, Atrium; v, ventrikel. Schaal bar = 50 µm. Klik hier voor een grotere versie van dit cijfer.
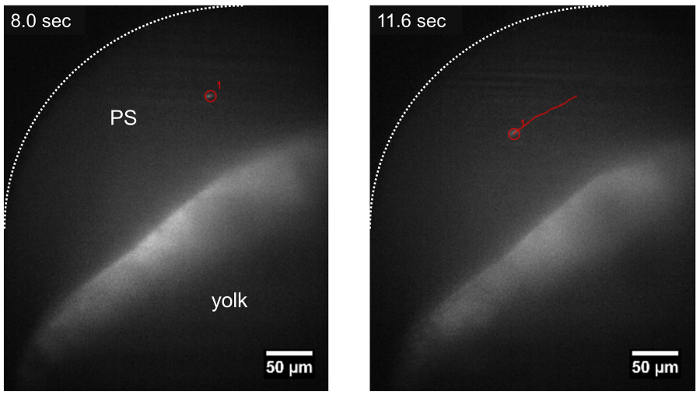
Figuur 3: Traject van een parasiet die reizen in de pericardvocht ruimte met behulp van LSFM. De T. cruzi parasiet kan worden bijgehouden terwijl het drijven in de pericardvocht ruimte (PS), de richting van de bloedstroom (track in het rood weergegeven) volgen ongeveer ~ 15 minuten na de injectie van de parasiet. Schaal bar = 50 µm. Klik hier voor een grotere versie van dit cijfer.
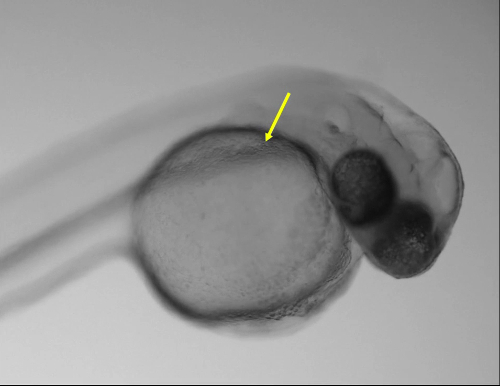
Film 1: bloed omloop vallei van de dooier in een larve 48 hpf. Film van een larve 48 hpf waarin de bloed omloop vallei of koker van Cuvier met behulp van een regelmatige stereoscoop. Verschillende regio's worden geconcentreerd tijdens de video om te laten zien van rode bloedcellen in de koker circuleert. Gele pijl toont de optimale injectieplaats. Film was opgenomen ongeveer 10-15 min na injectie van de parasiet. Klik hier om de video te downloaden.
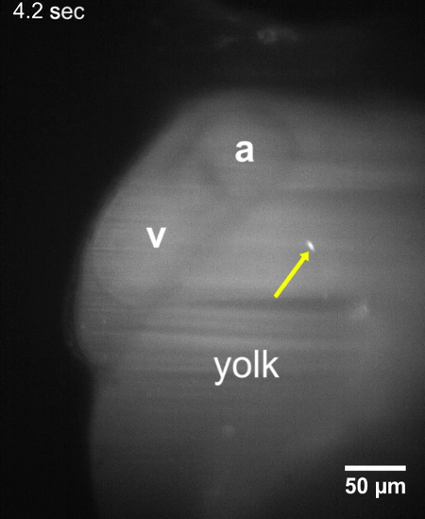
Film 2: T. cruzi parasieten gekoppeld aan wanden van de dooierzak. De film van de LSFM van een larve 48 hpf blijkt dat T. cruzi parasieten zelfklevend aan de dooierzak ongeveer 10-15 min na injectie van de parasiet blijven. Geen verandering in de positie van de parasiet was geconstateerd gedurende een periode van de verwerving van ten minste 30 s. a, Atrium; v, ventrikel. Klik hier om de video te downloaden.
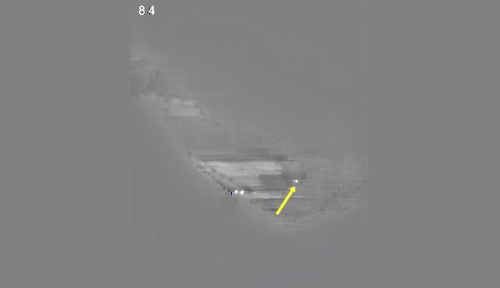
Film 3: T. cruzi parasieten gekoppeld aan de muren van het hart. LSFM film van een larve 48 hpf tonen dat T. cruzi parasieten overigen vastgehouden aan de cardiovasculaire muur, ondanks de sterke hart weeën ongeveer 10-15 min na injectie van de parasiet. Erytrocyten kunnen worden waargenomen als zwarte afgeronde schaduwen. Klik hier om de video te downloaden.
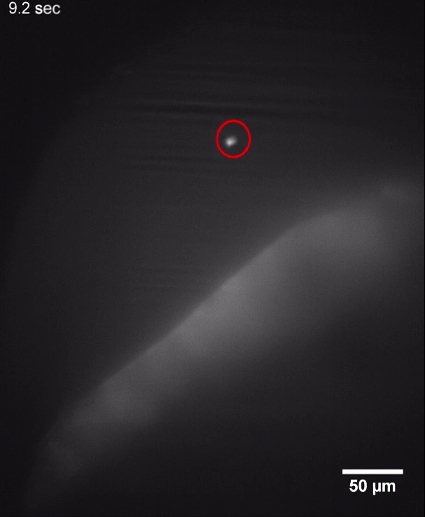
Film 4: parasieten verplaatsen in de pericardvocht ruimte. De film van de LSFM van een larve 48 hpf weergegeven: T. cruzi parasieten drijven in de pericardvocht ruimte. Twee parasieten kunnen worden getraceerd op verschillende tijdstippen (ID 1, in de rode cirkel, en ID 2 in gele cirkel), na een soortgelijk traject. De film werd opgenomen ongeveer 10-15 min na injectie van de parasiet. Klik hier om de video te downloaden.
Aanvullende figuur 1: de fluorescerende signaal accumulatie van CFSE in de dooier. Stereoscoop beelden van een larve van wildtype geïnjecteerd 48 hpf op de koker van Cuvier. CFSE fluorescent signaal geleidelijk hoopt zich op in de dooier, na twee dagen injectie (48 hpi boeken). Schaal bar = 500 µm. Klik hier om te downloaden van de figuur.
Aanvullende film 1: parasieten gekoppeld aan muren en kleppen van de bloedsomloop. Stereoscoop tijd serie beelden van een wild type larve geïnjecteerd 48 hpf. Images zijn geschoten tussenpozen 0,2 s T. cruzi parasieten verplaatsen in synchrony met cardiale spiersamentrekkingen op de atrioventriculaire klep vastleggen. Film was ongeveer 30 minuten na injectie van de parasiet opgenomen. Klik hier om de video te downloaden.
Aanvullende Movie 2: bewegende en zelfklevend parasieten in de periventricular ruimte en dooier. De film van de LSFM van een larve 48 hpf weergegeven: T. cruzi parasieten drijven of de pericardvocht ruimte of de dooier in acht genomen. Een doorvallend licht weergave werd waargenomen voor de eerste 5 s. De weergave van de fluorescentie werd van 5.2-25,8 s waargenomen. De film werd opgenomen ongeveer 10-15 min na injectie van de parasiet. Klik hier om de video te downloaden.
Discussie
Deze studie belicht de voordelen van de zebravis als een dierlijk model voor het bestuderen van pathogeen gedrag in vivo. In het bijzonder, deze studie stelt een methode voor het visualiseren van het pathogene agens T. cruzi in zijn natuurlijke omgeving: hematic verkeer. De omgeving van de bloedsomloop communicatie in vis is vergelijkbaar met die van zoogdieren, en trypanosomatids geëvolueerd mechanismen voor reizen, om het immuunsysteem te ontduiken en koppelen aan cellen voor infectie in dat milieu-25. Dit protocol biedt een beschrijving van een optimale procedure voor cultuur van T. cruzi in een menselijke cellijn en latere Isolatievan flagellar vormen voor het labelen van de tl. Dan blijkt de juiste instellingen voor succesvolle injectie van de parasieten in transparante zebrafish voor later montage en visualisatie met behulp van LSFM. Tot slot, dit protocol biedt suggesties voor efficiënte en effectieve in vivo imaging van parasiet locatie en verplaatsing in omloop met behulp van LSFM.
Het flagellum van trypanosomen naar voren komt uit de eigen posterieure regio, die voortvloeien uit de cel lichaam, en loopt vast op het voorste deel van het organisme26gratis. T. cruzi stuwt zelf door het zwaaien van het flagellum voorafgaand aan het lichaam, die het hele lichaam van de parasiet golft. Flagellar beweging is niet alleen onmisbaar voor de beweeglijkheid van de parasiet, zoals in het geval van T. brucei27 (de verwekker van slaapziekte), maar het wordt ook gebruikt voor cellulaire infectie, zoals is aangetoond in T. cruzi5 ,28. Hoewel zebravis niet de natuurlijke gastheer voor T. cruzi, kan de parasiet de motiliteit bestudeerd worden in een ontwikkelende cardiovasculaire circulatiesysteem met behulp van de protocollen beschreven hier. Daarnaast zijn er trypanosomen soorten die cypriniden, de klasse van de zebravis, zoals T. carassii en T. borreli25. infecteren Deze parasiet soorten kunnen worden gebruikt om te studeren in real-time de bewegingen en de bijlage mechanismen van deze trypanosomatids; dergelijke studies kunnen inzicht in het proces van de infectie zoogdiercellen lenen.
In deze studie, geïnjecteerd u sporenvormende T. cruzi parasieten werden waargenomen reizen door de cardiovasculaire circulatie van geënte vis, samen met ondoorzichtige erytrocyten verplaatsen en vast te houden aan de structuren in de muren van het cardiovasculaire systeem. We gebruikten een huis-gebouwde LSFM met een 10 X Achromatische lange afstand lucht doelstelling (17.6 mm) voor de verlichting-arm met een numerieke diafragma van 0,25. Een 40 X apochromatische water onderdompeling doelstelling met een numerieke diafragma van 0,8 en een afstand van 3,5 mm werd gebruikt voor de detectie-arm. De detectie-doelstelling werd ondergedompeld in de monsterkamer, terwijl het doel van de verlichting buiten de vergaderzaal was. Een poort in de zaal verzegeld met een dekglaasje aan en optische lijm waarbinnen de lichtbundel van de verlichting in te voeren van de kamer, zoals afgebeeld in Lorenzo et al. 18 voor verlichting, gebruikten we een 50 mW DPSS laser op 488 nm waarvan het vermogen was gemoduleerd door een akoestisch-optische Tunable Filter. Het pad van de detectie gebruikt filters compatibel met Green Fluorescent Protein (GFP) of FITC. Een lichte blad Microscoop voorzien van een capillaire monsterhouder (liefst met automatische rotatie) en de temperatuurregeling van de monsterkamer moet geschikt zijn voor deze toepassing. De Microscoop moet worden uitgelijnd en gekalibreerd volgens de instructies van de fabrikant of van gebruiker laboratorium standaardprotocollen voor acquisitie, indien nodig. In dit protocol gecontroleerd we de microscoop met behulp van de software SPIM19.
Het is belangrijk op te merken dat in de omloop van zebravis, larven parasitaire bijlage effectief is. In de kardinaal ader bleef parasieten verbonden voor tot enkele minuten; in het hart hielden zij op kleppen en muren, oscillerende met contracties van het hart. Verdere studies blijven om te verhelderen of T. cruzi samenwerkt met de vloeiende erythrocyten die in de richting van de bloedstroom drijven. Vorige in vitro studies hebben aangetoond dat de aanwezigheid van solide structuren (d.w.z., bloedcellen) of verhoogde viscositeit van de vloeistof om na te bootsen bloed in vitro, heeft een significant effect op de motiliteit en de snelheid van de parasiet 9.
Er zijn veel vragen over het verloop van de ziekte van T. cruzi bij de mens na amastigotes fagocytische cellen, de aanvankelijk geïnfecteerde cel type29 ontsnappen. Bijvoorbeeld, hoe komen ze naar hun doelorganen? Wat zijn de mechanismen voor tropisme aan de aangewezen organen, zoals cardiale, digestief en centraal zenuwstelsel? Interessant is dat in deze studie de parasieten waren aanvankelijk image gemaakt in het hart want het was de site van de hoogste dichtheid van parasieten. Echter het CFSE signaal vervolgens verzameld in de ontwikkelingslanden darm door 7 dagen post injectie. Hoewel de anatomie van vissen en zoogdieren afwijkt, tonen de resultaten van deze studie een vorm van tropisme, zoals naar voren gebracht werd dat parasieten tentoongesteld tropisme naar bekende voorkeur doelorganen ondanks organisch verschillen. Een belangrijke beperking van dit onderzoek heeft betrekking op de temperatuur die in de experimenten worden gebruikt. Zebravis larven moeten worden gehouden van ongeveer 28 °C gedurende de gehele procedure. Hoewel deze temperatuur misschien vergelijkbaar met de vector-host (insecten van de onderfamilie Triatominae), is het vrij verschillend van de warmbloedige zoogdieren die deel uitmaken van de definitieve hosts (rond 37 ° C). T. cruzi is bekend dat flagellar levende vormen in beide hosts; het is echter belangrijk te bedenken dat deze factor een effect zou kunnen in het gedrag van de dieren in vivo hebben.
Hoewel het adaptieve immuunsysteem van fish´s niet volwassen is tot 4 weken bevruchting post, is het aangeboren immuunsysteem actief vroeg in ontwikkeling10. Zo spoedig 48 of 96 hpf, werden fagocytische cellen waargenomen hebben opgeslokt label trypanosomen (gegevens niet worden weergegeven). Dit beperkt de venster van tijd voor visualisatie van de parasiet. Echter, als een studie was om zich te concentreren op een beoordeling van de immuunrespons van de fish´s, injectie in latere stadia kan worden aanbevolen. Injectie van parasieten in transgene vis lijnen met gelabelde macrofagen of andere cellen van het immuunsysteem kunnen ook nuttig zijn bij het bestuderen van de gehechtheid van de parasiet en mogelijk endocytose mechanismen. Het is belangrijk op te merken dat als de parasieten worden aangeduid met CFSE, transgene cel etiketten mag geen GFP en een markering in de gele of rode kant van het spectrum vereist is.
Om te beoordelen van de gedetailleerde richting van de beweging van de parasiet, is het wellicht nuttig om te volgen hun traject in 3 dimensies (3D). 3D-visualisatie en de wederopbouw van het proces is een hogesnelheidssysteem noodzakelijk. Met de in dit protocol gebruikte apparatuur, is het alleen mogelijk om te visualiseren de parasieten in één vlak. In dit geval, prioriteit we onderhouden brandvlak stabiliteit tijdens de beweging van de parasiet en zijn traject opnemen in één vlak.
De hier voorgestelde methodologie effent de weg naar verdere onderzoeken parasiet gedrag in cardiovasculaire circulatie. Kortom zijn de essentiële stappen naar imaging live fluorescerende parasieten binnen zebrafish larven:(i) het gebruik van vroege gearceerde embryo's (24-48 hpf) of larven, of dieren tussen 72-96 hpf met geen pigmentatie zodat ze transparant en eenvoudig te injecteren; (ii) afbeelding larven zo spoedig mogelijk na injectie om parasieten uit fagocytische cellen bestaan; en (iii) richten de LSFM op de site van belang (b.v., pericardvocht regio) en de focus behouden. Deze nieuwe procedure kunnen de visualisatie van trypomastigoten in een omgeving vergelijkbaar is met haar natuurlijke infectie niche, die voor het eerst de mogelijkheid om te studeren T. cruzi in een levend organisme.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk werd gesteund door de Convocatoria Interfacultades van Vicerrectoría de Investigaciones de la Universidad de los Andes, en het USAID onderzoek en innovatie Fellowship-programma. Wij danken Juan Rafael Buitrago en Yeferzon Ardila voor vis onderhoud en bijstand.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.5-10 μL Micropipette | Fisherbrand | 21-377-815 | |
| Agarose RA | Amresco | N605 | Regular |
| Agarose SFR | Amresco | J234 | Low Melting point |
| Aquarium salt | Instant ocean | SS15-10 | |
| Cell Count chamber | Boeco | Neubauer | |
| Cell culture flasks | Corning | 430639 | |
| Centrifuge | Sorvall | Legend RT | |
| CFSE | ThermoFisher | C34554 | |
| Detection objective | Nikon 40x 0.8NA | 40x CFI APO NIR | |
| DMEM medium | Sigma-Aldrich | D5648 | |
| Dumont #5 fine forceps | World precision Instruments | ||
| Ethyl 3-aminobenzoate methanesulfonate salt (Tricaine) | Sigma-Aldrich | A5040 | |
| Fetal calf serum (FCS) | Eurobio | CVFSVF00-01 | |
| Filter | Chroma | ET-525/50M | |
| Glass capillaries for embryo mounting | Vitrez Medical | 160215 | |
| Glass capillaries for pulling needles | World precision instruments | TW100-4 | |
| Glucose | Gibco | A2494001 | |
| HEPES | Gibco | 156300-80 | |
| Incubator | Thermo Corporation | Revco | |
| Larval microinjection mold | Adaptive Science Tools | I-34 | |
| Laser | Crystalaser | DL488-050 | |
| L-glutamine | Gibco | 250300-81 | |
| Methylene blue | Albor Químicos | 12223 | |
| Micromanipulator | Narishige | MN-153 | |
| Micromanipulator system | Sutter Instrument | MP-200 | For LSFM |
| Micropipette puller device | Narishige | PC-10 | |
| Microscope | Olympus | CX31 | |
| Microscope (inverted) | Olympus | CKX41 | |
| Multipurpose microscope | Nikon | AZ100M | |
| Neubauer counting chamber | Boeco Germany | ||
| Penicillin-streptomycin | Gibco | 15140-163 | |
| Petri dish 94x16 | Greiner bio-one | 633181 | |
| Plastic pasteur pipette | Fisherbrand | 11577722 | |
| Rotation stage | Newport | CONEX-PR50CC | |
| RPMI-1640 medium | Sigma-Aldrich | R4130 | |
| Sodium pyruvate | Gibco | 11360-070 | |
| Stereoscope | Nikon | C-LEDS | |
| Tricaine (MS-222) | Sigma-Aldrich | 886-86-2 | |
| TRIS | Amresco | M151 | |
| Trypsin-EDTA (0.25%) | Gibco | R-001-100 | |
| Tubes 15 ml | Corning | 05-527-90 |
Referenties
- WHO. Chagas disease (American trypanosomiasis). , http://www.who.int/mediacentre/factsheets/fs340/en/ (2017).
- Bern, C. Chagas's Disease. New England Journal of Medicine. 373 (5), 456-466 (2015).
- Sosa Estani, S., Segura, E. L., Ruiz, A. M., Velazquez, E., Porcel, B. M., Yampotis, C. Efficacy of chemotherapy with benznidazole in children in the indeterminate phase of Chagas’ disease. The American Journal of Tropical Medicine and Hygiene. 59 (4), 526-529 (1998).
- Rosas, F., Roa, N., Cucunuba, Z. M., Cuellar, A., Gonzalez, J. M., Puerta, J. C. Chagasic Cardiomyopathy. Cardiomyopathies - From Basic Research to Clinical Management. , (2012).
- Finkelsztein, E. J., et al. Altering the motility of Trypanosoma cruzi with rabbit polyclonal anti-peptide antibodies reduces infection to susceptible mammalian cells. Experimental Parasitology. 150, 36-43 (2015).
- Martins, R. M., Covarrubias, C., Rojas, R. G., Silber, A. M., Yoshida, N. Use of L-Proline and ATP Production by Trypanosoma cruzi Metacyclic Forms as Requirements for Host Cell Invasion. Infection and Immunity. 77 (7), 3023-3032 (2009).
- Engstler, M., et al. Hydrodynamic Flow-Mediated Protein Sorting on the Cell Surface of Trypanosomes. Cell. 131 (3), 505-515 (2007).
- Uppaluri, S., et al. Impact of Microscopic Motility on the Swimming Behavior of Parasites: Straighter Trypanosomes are More Directional. PLoS Computational Biology. 7 (6), e1002058(2011).
- Heddergott, N., et al. Trypanosome Motion Represents an Adaptation to the Crowded Environment of the Vertebrate Bloodstream. PLoS Pathogens. 8 (11), e1003023(2012).
- Gratacap, R. L., Wheeler, R. T. Utilization of zebrafish for intravital study of eukaryotic pathogen–host interactions. Developmental & Comparative Immunology. 46 (1), 108-115 (2014).
- Meijer, A. H., Spaink, H. P. Host-Pathogen Interactions Made Transparent with the Zebrafish Model. Current Drug Targets. 12 (7), 1000-1017 (2011).
- White, R. M., et al. Transparent Adult Zebrafish as a Tool for In Vivo Transplantation Analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Huisken, J. Slicing embryos gently with laser light sheets. BioEssays. 34 (5), 406-411 (2012).
- Westerfield, M. The zebrafish book: A guide for the laboratory use of zebrafish (Danio rerio). , University of Oregon Press. Eugene. http://zfin.org/zf_info/zfbook/zfbk.html (2000).
- Kimmel, C. B., Ballard, W. W., Kimmel, S. R., Ullmann, B., Schilling, T. F. Stages of embryonic development of the zebrafish. Developmental Dynamics. 203 (3), 253-310 (1995).
- Vargas-Zambrano, J. C., Lasso, P., Cuellar, A., Puerta, C. J., González, J. M. A human astrocytoma cell line is highly susceptible to infection with Trypanosoma cruzi. Memórias do Instituto Oswaldo Cruz. 108 (2), 212-219 (2013).
- Rosen, J. N., Sweeney, M. F., Mably, J. D. Microinjection of Zebrafish Embryos to Analyze Gene Function. JoVE (Journal of Visualized Experiments). (25), e1115-e1115 (2009).
- Lorenzo, C., et al. Live cell division dynamics monitoring in 3D large spheroid tumor models using light sheet microscopy. Cell Division. 6, 22(2011).
- Edelstein, A. D., Tsuchida, M. A., Amodaj, N., Pinkard, H., Vale, R. D., Stuurman, N. Advanced methods of microscope control using μManager software. Journal of Biological Methods. 1 (2), e10(2014).
- Weber, M., Mickoleit, M., Huisken, J. Multilayer Mounting for Long-term Light Sheet Microscopy of Zebrafish. Journal of Visualized Experiments. (84), (2014).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Ng, A. N. Y., et al. Formation of the digestive system in zebrafish: III. Intestinal epithelium morphogenesis. Developmental Biology. 286 (1), 114-135 (2005).
- Higuchi, M. D. L., et al. Correlation between Trypanosoma cruzi parasitism and myocardial inflammatory infiltrate in human chronic chagasic myocarditis: Light microscopy and immunohistochemical findings. Cardiovascular Pathology: The Official Journal of the Society for Cardiovascular Pathology. 2 (2), 101-106 (1993).
- Vago, A. R., Silva, D. M., Adad, S. J., Correa-Oliveira, R., d'Avila Reis, D. Chronic Chagas disease: presence of parasite DNA in the oesophagus of patients without megaoesophagus. Transactions of the Royal Society of Tropical Medicine and Hygiene. 97 (3), 308-309 (2003).
- Wiegertjes, G. F., Forlenza, M., Joerink, M., Scharsack, J. P. Parasite infections revisited. Developmental & Comparative Immunology. 29 (9), 749-758 (2005).
- De Souza, W. Basic cell biology of Trypanosoma cruzi. Current Pharmaceutical Design. 8 (4), 269-285 (2002).
- Langousis, G., Hill, K. L. Motility and more: the flagellum of Trypanosoma brucei. Nature Reviews. Microbiology. 12 (7), 505-518 (2014).
- Johnson, C. A., et al. Cellular response to Trypanosoma cruzi infection induces secretion of defensin α-1, which damages the flagellum, neutralizes trypanosome motility, and inhibits infection. Infection and Immunity. 81 (11), 4139-4148 (2013).
- Magalhães, L. M. D., Viana, A., Chiari, E., Galvão, L. M. C., Gollob, K. J., Dutra, W. O. Differential Activation of Human Monocytes and Lymphocytes by Distinct Strains of Trypanosoma cruzi. PLoS neglected tropical diseases. 9 (7), e0003816(2015).
Herprints en machtigingen
