Deze methode zorgt voor de generatie van tetraploïde en Triploïde Caenorhabditis nematoden van een diploïde stam. Polyploïde stammen die zijn gegenereerd door deze methode zijn gebruikt voor het bestuderen van chromosoom interacties in Meiotische profase, en deze methode is nuttig voor de behandeling van belangrijke fundamentele vragen in de cel, ontwikkelingsstoornissen, evolutionaire, en Kankerbiologie.
Methodenartikel
Manipulatie van ploïdie in Caenorhabditis elegans
In dit artikel
Samenvatting
Samenvatting
Mechanismen die betrekking hebben op hele genoom polyploïdie spelen een belangrijke rol in de ontwikkeling en evolutie; ook is een abnormale generatie tetraploïde cellen gekoppeld aan zowel de progressie van kanker en de ontwikkeling van resistentie. Tot nu toe, is het niet haalbaar is om de ploïdie van meercellige dieren gemakkelijk te manipuleren zonder te genereren meestal steriele nakomelingen geweest. Gepresenteerd hier is een eenvoudige en snelle protocol voor het genereren van tetraploïde Caenorhabditis elegans dieren van een diploïde stam. Deze methode kan de gebruiker een vooroordeel in chromosoom segregatie tijdens meiose, uiteindelijk verhogen ploïdie in C. elegansmaken. Deze strategie is gebaseerd op de tijdelijke vermindering van de expressie van het gen van de rec-8 voor het genereren van diploïde gameten. Een rec-8 mutant produceert diploïde gameten die potentieel tetraploids op bevruchting kunnen produceren. Deze hanteerbare regeling is gebruikt voor het genereren van tetraploïde stammen uitvoering mutaties en chromosoom herschikkingen inzicht te krijgen in de dynamiek van de chromosomale en interacties tijdens de paring en synapsis in meiose. Deze methode is efficiënt voor het genereren van stabiele tetraploïde stammen zonder genetische tellers, kan worden toegepast op elke diploïde stam, en kan worden gebruikt voor het afleiden van Triploïde C. elegans. Deze eenvoudige methode is handig voor het onderzoeken van andere fundamentele biologische vragen die relevant zijn voor de instabiliteit van het genoom, gene dosering, biologische schalen, extracellulaire signalering, aanpassing te benadrukken, ontwikkeling van resistentie tegen geneesmiddelen, en mechanismen van soortvorming.
Inleiding
Hele genoom polyploïdie bestaat in de gehele natuur en is vaak een noodzakelijke stap in aanpassing, speciatie organogenese, wondgenezing en biologische schalen; het is ook bekend om zowel kanker als weerstand tegen drugs1,2,3,4,5,6,7,8, 9 , 10 , 11 , 12. landbouw- en visserijproducten industrieën genereren polyploïde planten, vis en schaal-en schelpdieren door chemische behandeling (bijvoorbeeld, colchicine en orzalin) voor informatie sneller groeicijfers en omvangrijker gewassen en vee13, 14,15. Experimentele en inefficiënte productie van tetraploids bestaat voor de muis en de zebravis model systemen16,17. Echter, de meeste of alle polyploïde meercellige dieren gegenereerd zijn embryonically letale of steriele en dus niet ideaal voor laboratorium studies over de gevolgen van polyploïdie in een meercellig organisme. Dus, enig begrip van de hele genoom polyploidization in meercellige organismen beperkt gebleven tot nauw verwante soorten van evolutionaire recente polyploidization evenementen18,19,20 . Een pad om query's voor de biologische rol of gevolgen van polyploidization is het gebruik van het systeem van C. elegans model. Belangrijker, C. elegans is een hanteerbare genetische systeem dat normaal gesproken bestaat als een diploïde, bevat slechts vijf autosomes (A) en één geslacht chromosoom (X) per genoom, is transparant waardoor voor in vivo observatie van biologische processen, en heeft een korte levenscyclus van 3-4 dagen (van ei tot seksueel volwassen volwassene). C. elegans is aangetoond te kunnen reproduceren als een tetraploïde, die het meest voorkomende type van hele genoom polyploïdie in de natuur is. Triploïde dieren kunnen worden gegenereerd door overschrijding van de tetraploids met ze, maar hun ploïdie is niet stabiel, en de stammen worden diploïde binnen een paar generaties.
In de afgelopen decennia slechts een handvol van levensvatbare en vruchtbare C. elegans tetraploids stammen werden geïsoleerd in het laboratorium, met behulp van een strategie die is moeizaam en genereert slechts beperkte soorten stammen21,22, 23. deze strategie genereert C. elegans tetraploids door warmte-shock behandelingen, die vermoedelijk is van invloed op chromosoom segregatie in de gameten, gevolgd door een screening voor vermeende polyploïde dieren met behulp van genetische tellers. Deze tetraploids waren uiterst nuttig bij het onderzoek van hoe deze nematode bepaalt of mannelijke of hermafrodiete te worden. Latere studies gebruikt de beschikbare spanningen te onderzoeken van de groei, gene dosis en regulering van de synapsis tijdens de meiose in deze nematode21,24,25,26. Helaas, deze studies werden beperkt door de moeilijkheid bij het genereren van nieuwe tetraploïde stammen en de achtergrond genetische tellers deze stammen bevat. Hieronder is een eenvoudige en snelle protocol voor het genereren van stabiele tetraploids, die is gebruikt voor het genereren van stammen om te bestuderen van de regulering van de synapsis tijdens de meiose27.
Net als in de natuur, kunnen polyploidization ontstaan door de vorming van diploid in plaats van haploïde geslachtscellen. Onze bevinding dat een meiose-specifieke cohesin component mutant rec-8 diploïde zaadcellen genereert en eicellen aangegeven dat neerhalend de rec-8 -gen zou leiden tot de productie van tetraploïde nakomelingen (Figuur 1)27, 28,29. Genereren van tetraploïde stammen omvat neerhalend rec-8 door RNA-interferentie (RNAi) voor twee generaties om phenocopy de rec-8 mutant diploïde gameten. Vermeende polyploids kunnen gemakkelijk worden geïdentificeerd door hun langer dan normale lichaamsgrootte. Polyploids worden bevestigd als volledige of gedeeltelijke tetraploids door het tellen van het aantal chromosomen per kern eenmaal stabiel lijnen zijn gevestigd.
De hier beschreven strategie maakt het mogelijk de generatie van stabiele tetraploïde Caenorhabditis nematode virusstammen uit eerste diploïde genetische achtergrond of karyotype zonder het gebruik van genetische merkers. Aangezien dit protocol meer efficiënte, veelzijdige en eenvoudig dan de regeling die eerder gebruikt is, zal het zich uitbreiden de hulpmiddelen die nodig zijn om te vragen de rol van polyploidization in fundamentele processen van evolutie in meercellige, ontwikkeling en stabiliteit van het genoom genetisch gemodificeerde organismen. De enige begaanbare beperking in het gebruik van dit protocol is in genetische achtergronden resistent tegen RNAi.
Protocol
1. het opzetten van rec-8 RNAi (dag 1-3 in Figuur 2)
Dit protocol is uit Kamath en Ahringer30gewijzigd.
- Voor de inductie van rec-8 dsRNA meningsuiting in Escherichia coli, bereiden Nematode groei Medium (NGM) agar platen31 aangevuld met een eindconcentratie van 1 mM isopropyl-β-D-2-thiogalactopyranoside (IPTG) en 100 µg/mL ampicilline. Bewaren in het donker bij 4 ° C tot gebruik, voor maximaal 4 weken.
- Streak HT115 bacteriën uitvoering van de kloon van de rec-8 (W02A2.6) van de Ahringer laboratorium bibliotheek30 rec-8 kloon op Luria Bouillon (LB) platen aangevuld met 100 µg/mL ampicilline en tetracycline met 50 µg/mL. 'S nachts groeien in een shaker bij 37 ° C.
- Inoculeer op dag 1, enkele kolonies van vers gestreepte enkele kolonies van de HT115 E. coli bacteriën uitvoering van de rec-8 RNAi kloon in 4 mL LB met 100 µg/mL ampicilline en tetracycline met 50 µg/mL. Groeien de bacteriën cultuur overnachting in een shaker of een roller trommel bij 37 ° C.
- De volgende ochtend (dag 2), induceren productie van double-stranded RNA (ds) voor rec-8 W02A2.6 in de HT115 bacteriecultuur door toevoeging van een eindconcentratie van 1 mM IPTG en schudden voor 40 minuten bij 37 ° C.
- Na inductie, seed NGM/IPTG platen met 100-200 µL van HT115 rec-8 bacteriën en platen bij kamertemperatuur worden opgeslagen in het donker 's nachts (dag 3).
- De volgende ochtend (dag 4), voeg de gewenste nematode stam aan de geïnduceerde HT115 rec-8 bacteriën platen zoals beschreven in stap 2.1 hieronder.
2. genereren en het isoleren van Tetraploids (dag 4-16 in Figuur 2)
- Op dag 4, plaats 3-4 jonge L4 (vierde larvale) stadium hermafrodieten van de gewenste diploïde stam op de platen van NMG/IPTG met HT115 rec-8 bacteriën die had eergisteren zijn geïnduceerde agarvoedingsbodem (stap 1.5, hierboven). Nematoden bij 15 ° C in het donker groeien.
- Herhaal stap 1.3 en 1.4 3 dagen na stap 2.1, die drie dagen voordat de eerste nakomelingen (F1s) van die stap L4s worden zal zijn. De timing van deze stap zal afhangen van hoe snel een nematode stam bij 15 ° C. groeit Sommige diploïde gemuteerde stammen zijn traag telers, en deze timing zal moeten fijn afstemmen om te isoleren van de tetraploids.
- Op dag 8 (na 4 dagen van rec-8 RNAi voeding behandeling), overdracht van 20 (2 hermafrodieten/petrischaal) van de F1 (eerste kinderlijke generatie) L4 hermafrodieten geteeld in de HT115 rec-8 bacteriën op vers geïnduceerde HT115 rec-8 RNAi en toestaan ze self-fertilize.
- U kunt ook geïnduceerde overdracht 20 van de F1 L4 hermafrodieten geteeld in de HT115 rec-8 bacteriën op vers HT115 rec-8 RNAi bacteriën samen met onbehandelde mannetjes van dezelfde stam (2 hermafrodieten met 4-6 mannetjes/plaat).
- Op dag 13, start screening voor F2 (tweede kinderlijke generatie) nakomelingen die lange verschijnen (Lon) of over het algemeen groter dan het wild type; Breng individuele Lon dieren op regelmatige OP50 of HB101 stammen van E. coli bacteriën. Continue screening F3 (derde kinderlijke) nageslacht; echter F3 nakomelingen van de dezelfde plaat kan niet worden beschouwd als onafhankelijke stammen als zij worden gevestigd, omdat ze kunnen broers en zussen uit hetzelfde reeds F2 moeder.
Opmerking: Vermeende tetraploids zijn gemakkelijk worden geïdentificeerd omdat ze duidelijk langer dan ze zijn. Wild type hermafrodieten zijn tweederde korter is dan tetraploids. Omdat het langer is, maakt een tetraploïde lichaam een extra beurt als het beweegt naar voren door het genereren van sinusvormige lichaam-buigen golven van kop naar staart (figuur 3A). - Lon wormen verspreiden door het plukken van Lon nakomelingen, totdat alleen Lon nakomelingen zijn gewenste in de afwezigheid van rec-8 RNAi behandeling te self-fertilize toestaan. Dit kan duren twee tot drie extra generaties. Lon wormen vaak steriele en nakomelingen opleveren.
3. controleren tetraploïde stammen (film 1 en figuur 3A, B)
Opmerking: Tetraploïde stammen kunnen worden gevalideerd door het tellen van het aantal chromosomen in hun onbevruchte eicellen. Fluorescent microscopie kan worden gebruikt om het scherm voor het aantal chromosoom paren in onbevruchte diploïde eicellen (vóór de Meiotische divisies), als de stam een fluorescerende marker voor chromosomen heeft. In de afwezigheid van fluorescerende chromosoom markers, kunnen tetraploïde nematoden worden gescreend door de vaststelling van de nematoden en kleuring met een DNA-kleurstof; Zie hieronder voor een protocol voor ethanol vaststelling en geheel-dier 4 ', 6-Diamidine-2′-phenylindole dihydrochloride (DAPI) kleuring.
- Hele dieren DAPI kleuring
Opmerking: Tetraploïde stammen uitvoering 12 verbonden chromosoom paren kunnen worden gevalideerd door de DAPI kleuring van deze dieren en tellen van het aantal DAPI organen in haar onbevruchte eicellen.- 6-10 nematoden overdragen plaats 5 tot en met 10 µL van M9 buffer31 op een microscoopglaasje, vervolgens aan de daling.
- Tekenen onder een Microscoop ontleden, allermeest naar de M9 vanuit naar de waterdruppel zonder de nematoden met een pluisvrije schoonmaak weefsel te verwijderen. Vervolgens voegt u onmiddellijk een daling van de 10 µL van 90% ethanol op de wormen. Toestaan dat de wormen te drogen volledig, maar voor langer dan een paar seconden.
- Zodra de ethanol verdampt (dit kan worden gezien als het gebeurt onder de ontleden Microscoop), voeg een extra 10 µL van 90% ethanol op de wormen.
- Herhaal stap 3.1.3 drie keer.
- Zodra de laatste druppel van ethanol is verdampt, voeg 6 µL van DAPI of Hoechst kleurstof bij de aanbevolen definitieve concentratie in de media van de montage van keuze (bijvoorbeeld de verdunning van een 1:1,000 van de 2 ng/µL DAPI voorraad concentratie in M9). Voor langdurige opslag van de dia's, mogen 0,5% p-fenyleendiamine opgelost in 20 mM Tris-HCl, pH 8,8, in 90% glycerol als een antifade oplossing, in plaats van de M9 alleen worden gebruikt.
- Dekking van de wormen op de dia met een dekglaasje aan en verzegel de rand van het dekglaasje aan met nagellak. Score in een fluorescentie Microscoop (stap 3.1.7) ten minste 10 minuten na het toevoegen van het dekglaasje aan. Dia's zonder antifade kunnen worden opgeslagen voor een paar dagen bij 4 ° C voor scoren, maar de kwaliteit van de fluorescentie begint te dalen na een paar dagen.
- Het aantal interne organen van de DAPI (vermoedelijk één chromosoom paren) met behulp van een fluorescente microscoop op 100 X vergroting, score in de meest volwassen onbevruchte oöcyt, die direct grenst aan de spermatheca en de spermatheca nog niet in werking of de baarmoeder.
- Gebruik van de Microscoop fijne focus om langzaam te bewegen vanaf de bovenkant van de oöcyt kern aan de bodem tijdens het tellen om te scoren individuele DAPI organen binnen een oöcyt nucleus. Dan vertellen de dezelfde kern tijdens het verplaatsen van de focus in de tegenovergestelde richting (dat wil zeggen, van de bodem tot de bovenkant van de kern) om te bevestigen het getelde aantal DAPI organen.
- De meeste volwassen onbevruchte oöcyt scoren in elk van de twee gonaden in ten minste tien hermafrodieten per stabiele Lon stam. Wild type eicellen hebben 6 DAPI organen op gemiddelde, 5 autosome paren en het paar sex chromosoom. De aanwezigheid van 12 DAPI lichamen in de oöcyt van stabiele Lon stammen geeft aan dat de dieren in deze spanning gedeeltelijke (4 sets van Autosomes, 3 chromosomen) of volledig (4 sets van Autosomes, 4 chromosomen) tetraploids.
- Bereken het gemiddelde aantal DAPI organen waargenomen vanaf meerdere (ten minste 10) eicellen per stam. Sommige paren chromosoom zal worden aanraken of rechts op de top van elkaar, zodat het aantal DAPI organen in een oöcyt is vaak kleiner is dan het werkelijke aantal chromosoom paren.
- (Optioneel) Verder valideren stabiele Lon stammen waar het gemiddelde aantal DAPI organen 12 om te testen of ze geheel (4A, 4 X) of gedeeltelijk (4A, 3 X zijn) is tetraploids door immunofluorescentie kleuring tegen chromosoom as proteïnen zoals HTP-332. Deze kleuring wordt een onderscheid gemaakt chromosoom paren door het tonen van een kruisvormige patroon vanuit één los chromosomen in de gedeeltelijke tetraploïde aanwezig.
Resultaten
Bijzondere waardevermindering van de rec-8 Meiotische Cohesin Component functie resultaten in diploïde gameten:
Beeldvorming van de Meiotische divisies van cohesin component mutant rec-8 bleek zaadcellen en eicellen mogelijke mechanismen voor het genereren van tetraploïde dieren (Figuur 1)27,29,33. Mechanistically, zijn de gebreken van de Meiotische divisie van rec-8 mutant sperma en oöcyt verschillend; echter, zowel de mannelijke als de vrouwelijke diploïde gameten worden geproduceerd door de mutant rec-8 .
In wild type meiose, homologe chromosomen worden tijdelijk met elkaar verbonden door crossover recombinatie en voer de eerste Meiotische klasse als een eenheid of tweewaardig (figuur 1A)34. Tijdens de eerste divisie, homologe chromosomen (homologen) scheiden van elkaar, overwegende dat zuster chromatiden in elke homolog samen tot de tweede divisie blijven. Hoewel het patroon van chromosoom segregatie hetzelfde in vrouwelijke en mannelijke gameten is, zijn oöcyt divisies asymmetrische terwijl spermatocyte divisies symmetrisch zijn en een gespecialiseerde cytokinese ondergaan. In elke afdeling, de oöcyt om de teruggooi de helft van de afdeling product in een klein lichaam van polar. Dus, de voorloper van elke oöcyt geeft aanleiding tot een enkele haploïde oöcyt en twee poollichaampjes (figuur 1B, C)35. Omgekeerd, een voorloper van één spermatocyte geeft aanleiding tot vier functionele spermatids door het ondergaan van de twee symmetrische divisies. De tweede divisie culmineert met vier spermatids ontluikende af uit een residuele lichaam. Deze cytokinese is speciaal in die zin dat het patroon en het aantal spermatids wordt bepaald door de centrosomes36.
In de voorloper van de rec-8 mutant gameten, cross-over tussen homologe chromosomen recombinatie niet plaatsvindt en homologen zijn niet verbonden als een tweewaardig aan het begin van de eerste Meiotische divisie29,34. Zuster chromatiden van elk homolog scheiden van elkaar in de eerste klasse in plaats van het gaan samen tot de tweede divisie, zoals ze in wild type gameten doen. Interessant is dat verschilt het fenotype rec-8 mutant tijdens de tweede divisie in mannelijke en vrouwelijke gameten dat eicellen niet ondergaan de cytokinese overwegende dat spermatocyten ondergaan een relatief normale cytokinese (figuur 1B- F) 27 , 28 , 29. diploïde eicellen ontstaan omdat in de tweede divisie verzuimen zowel chromosoom segregatie en cytokinese, dus ze doen niet het extruderen van de tweede polar lichaam (figuur 1B, C). Spermatocyten in rec-8 germlines spermatid ontluikende of cytokinese ondergaan, maar vaak beide sets chromosomen aan één van de spermatids tot een diploïde spermatid en een spermatid ontbreekt chromatine scheiden (Figuur 1 d- F)27. Kwantificering van het aandeel van de rec-8 sperma ontbreekt chromatine is afgebeeld in figuur 1F.
De vorming van vrouwelijke en mannelijke diploïde gameten in rec-8 mutanten gesuggereerd dat deze mutant fenotype potentieel kan worden gebruikt voor het genereren van volledige genoom tetraploïde stammen.
Rendering van tetraploïde C. elegans stammen:
De aanwezigheid van een mutatie in het gen van de rec-8 in alle gegenereerde tetraploïde spanningen kan worden vermeden door Transient neerhalend rec-8 door RNAi29,37. Hierbij wordt ervan uitgegaan dat de vermindering van de rec-8 functie door RNAi diploïde gameten die potentieel aanleiding tot hele genoom tetraploïde dieren geven kunnen, produceren zou, zoals rec-8 mutanten29,37 doen. Essentieel voor dit protocol is dat rec-8 mutanten zowel aanleiding tot diploïde gameten geven en sire een redelijk groot aantal jonge, in tegenstelling tot andere Meiotische mutanten, die aanleiding tot aneuploid gameten en zijn meestal steriel of embryonale/larvale dodelijk geven.
Meerdere tetraploïde stammen werden gegenereerd door C. elegans bacteriën uiting van rec-8 dsRNA met behulp van één van beide één van twee strategieën (Zie Protocol, Figuur 2en tabel 1) voeding27. Tetraploids kunnen worden gegenereerd door zelf waardegevende bestanddelen hermafrodieten voor twee tot drie generaties in petrischalen met bacteriën rec-8 dsRNA uitdrukken. Door deze strategie een hermafrodiet is geplaatst in vers is gemaakte rec-8 RNAi platen en de nakomelingen ervan een paar dagen later op nieuwe borden met vers geïnduceerde rec-8 RNAi waarin bacteriën (Zie Protocol) overgedragen. Bovendien kunnen tetraploids worden gegenereerd door de overschrijding van de eerste generatie van hermafrodieten gevoed bacteriën uiting van rec-8 dsRNA met onbehandelde mannen dezelfde genotype in petrischalen met bacteriën uiting van rec-8 dsRNA ( Figuur 2). In dit geval worden de mannetjes in het Kruis blootgesteld aan de rec-8 RNAi bacteriën uit het werkgebied van L4, tijdens de paring. Beide systemen leiden tot tetraploïde dieren27. Tabel 1 toont tetraploïde stammen verkregen met behulp van de hier gepresenteerde regeling. Triploïde en tetraploïde C. elegans groter in omvang dan ze zijn, maar Triploïde stammen onstabiel zijn en de neiging om in één of twee generaties, diploïde overwegende dat tetraploïde stammen relatief stabiel22,23 zijn. Vermeende tetraploïde stammen werden geïdentificeerd als groter dan de oorspronkelijke spanning (Lon) hermafrodieten die alleen Lon nakomelingen (figuur 3A gewenste). Lon dieren gemakkelijk worden geïdentificeerd - wild type diploïde dieren zijn twee derde van de lengte van tetraploids en hun lichaam Maak niet een extra bocht, die kan worden opgemerkt tijdens de voorwaartse sinusvormige beweging (figuur 3A).
Tetraploïde stammen werden bevestigd door screening op de aanwezigheid van 12 chromosoom paren in eicellen van de tetraploïde hermafrodieten in vergelijking met zes paren chromosomen in eicellen diploïde hermafrodieten (figuur 3B, C, en film 1).
Tetraploïde klassen:
Twee soorten tetraploïde hermafrodieten waren geïdentificeerd: één ouders mannetjes op soortgelijke frequenties als diploïde hermafrodieten en de andere gewenste mannetjes bij veel hogere frequenties (tabel 1). Deze twee soorten tetraploïde hermafrodieten is aangetoond dat het verschil is dat de klasse produceren frequenties vergelijkbaar met die van diploïde mannetjes tetraploïde voor alle de chromosomen (4A, 4 X), zijn terwijl de klasse produceren hoge frequenties mannen zijn hermafrodieten die tetraploïde voor de autosomes maar de Triploïde voor de sex-chromosoom (4, 3 X). De latere klasse van tetraploids zijn stabiel en produceren 4A, 3 X hermafrodieten en 4A, 2 X reuen.
Tetraploïde stammen groeien langzamer en minder brood omvang in vergelijking met de ze die ze waren afgeleid van, zoals gezien voor de stammen die zijn gegenereerd met de vorige methode22,23te produceren. Madl en Herman22 gesuggereerd dat het toegenomen aantal dode embryo's in de tetraploïde stammen kon te wijten zijn aan aneuploïdie in de oöcyt, maar oppervlakkige inspectie van tetraploïde stammen openbaarde niet voldoende verhoogde aantallen aneuploid eicellen noch abnormale oöcyt of spermatocyte divisies ter verantwoording voor de waargenomen daling brood grootte (Movie 2en Figuur 3 c, D).
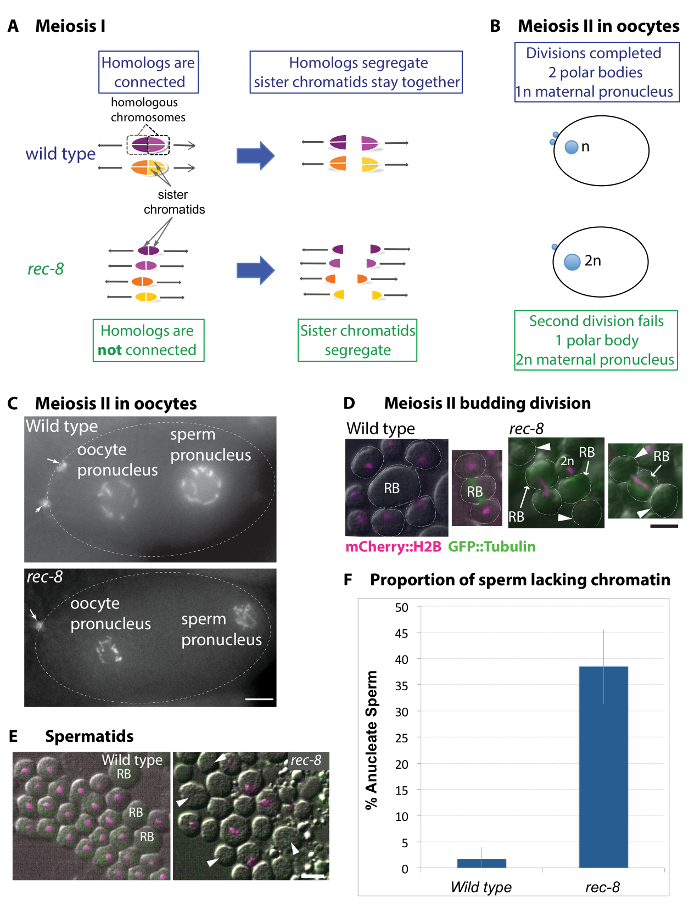
Figuur 1: Geslachtscel in rec-8 mutant impliceert mogelijke mechanismen voor het genereren van stabiele polyploïde vlekken. (A) Diagram van het chromosoom organisatie en segregatie patroon in wild type en rec-8 mutant Meiotische divisies. In het wild type meiose scheiden homologe chromosomen in de eerste Meiotische klasse. Zuster chromatiden in elke homolog oriënteren naar de dezelfde spindel paal en blijft samen tot de tweede divisie. In rec-8 mutanten, homologen vormen geen cross-overs en zo zijn niet aangesloten. In tegenstelling tot wild type, rec-8 zuster chromatiden oriënteren afstand van elkaar en scheiden in de eerste Meiotische klasse. (B) Diagram van wild type en mutant eicellen toont het vrouwelijke pronucleus en geëxtrudeerde poollichaampjes (mannelijke pronucleus is niet afgebeeld). In wild type eicellen resulteren twee asymmetrische Meiotische divisies in de extrusie van twee poollichaampjes. In rec-8 mutanten echter de tweede polar lichaam extrusie mislukt wat resulteert in een diploïde oöcyt. (C) afbeeldingen van wild type en rec-8 mutant eicellen mCherry::histone H2B uitdrukken. Pijlen geven aan twee poollichaampjes in de oöcyt wild type en één in de rec-8 mutant. De bar van de schaal is 5 µm. (D en E) Live beelden van de spermatids van wild type en rec-8 mutant dieren mCherry::histone H2B (magenta) uitdrukken. Pijlpunten geven anucleate spermatids. De bar van de schaal is 2 µm. (D) spermatocyten in de tweede divisie van de (beginnende) in het wild type en rec-8 mutant. De wild type spermatocyten ondergaan symmetrische divisies, resulterend in vier ontluikende spermatids, elk met een haploïde chromosoom aanvulling. Chromosoom segregatie is in rec-8 mutant spermatocyten verminderde in de tweede divisie. Meestal een enkele massa van de chromatine, blijft in het residuele lichaam (RB) of in één van de twee zuster spermatids in de tweede meiosemetafase divisie. Dit geeft aanleiding tot anucleate rec-8 mutant sperma (aangegeven door pijlpunten) of diploïde sperma. (E) Live beelden van post ontluikende spermatids in wild type en rec-8 mutanten gevisualiseerd met behulp van differentiële interferentie contrast (DIC) en fluorescentie microscopie. Wild type spermatids alle hebben soortgelijke chromatide massa's. REC-8 mutant spermatids vormen anucleate sperma. (F) kwantificering van wild type en rec-8 mutant anucleate sperma. REC-8 mutanten 38,5% van anucleate sperma in vergelijking met minder dan 1,6% in wild type geproduceerd. Fisher's exacte test geeft aan dat een rec-8 mutant aanzienlijk hogere incidentie van anucleate sperma (p ≤0.0001) in vergelijking met de wild-type. Foutbalken vertegenwoordigen standaarddeviaties. Klik hier voor een grotere versie van dit cijfer.
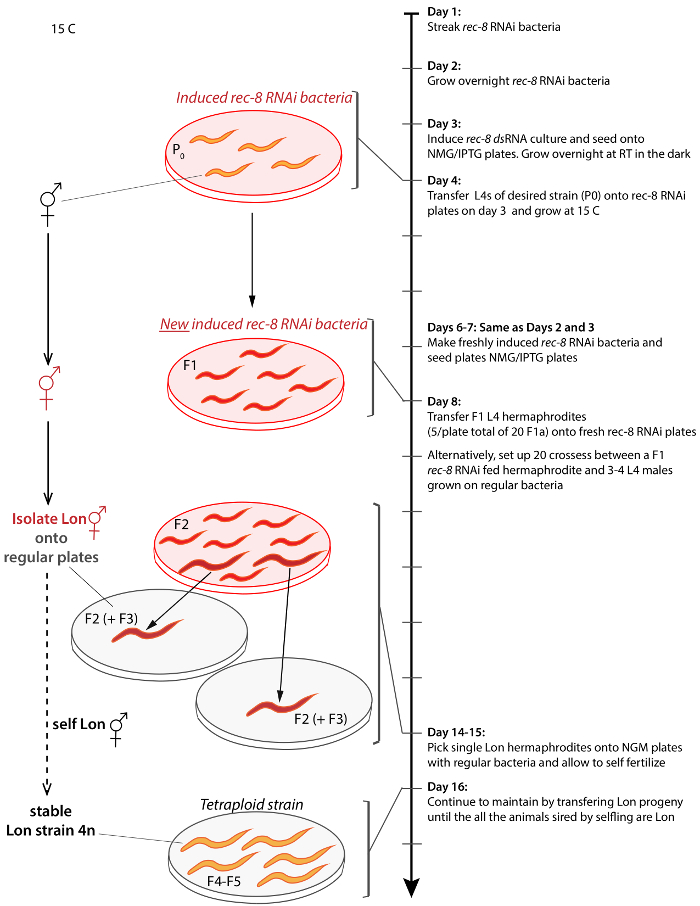
Figuur 2: Schema voor het genereren en isoleren tetraploïde C. elegans van elke stam. Pijl aan de rechterkant vertegenwoordigt de tijdlijn van protocol vanaf dag 1 en dag 17 verlopen. Vergelijkbare resultaten kunnen worden bereikt door Overstekende hermafrodieten voor onbehandelde mannetjes op dag 9. Haakjes sluit de afbeelding van een stap naar de tijdlijn. Onbehandelde dieren zijn oranje behandelde dieren zijn rood, Lon dieren zijn groter in omvang, rec-8 dsRNA uiting van bacteriën wordt afgebeeld zoals transparante platen met transparant rode achtergrond en regelmatige OP50 bacteriën is afgebeeld op transparant grijs achtergrond platen. Procedure wordt gedaan bij 15 ° C, tenzij anders vermeld. Klik hier voor een grotere versie van dit cijfer.

Figuur 3: tetraploïde voorbeelden. (A) helder veld beeld van een tetraploïde dier (MSC2) en de diploïde stam die het is afgeleid van (AV740). Tetraploïde C. elegans zijn over het algemeen groter en langer (Lon) dan het diploïde. Dit verschil in lichaamsgrootte resulteert in een extra sinusoïdale curve van het lichaam van de bewegende tetraploïde en kan worden gebruikt als een criterium op scherm voor tetraploïde derivaten. Schaal bar is 0.1 mm. (B, C) fluorescentie beelden van diploïde (AV740) en tetraploïde (MSC1) meest volwassen onbevruchte oöcyt nulcei, voorafgaand aan de Meiotische divisies. Secundaire screening wordt uitgevoerd door het observeren van het aantal paren van het chromosoom in onbevruchte eicellen van de gevestigde Lon stammen, zoals in 1 van de film voor een spanning van de MSC1 uiting van Mcherry::H2B en GFP::β-tubuline in de kiemcellen. Schaal bar is 5 µm. (D) beelden van een time-lapse (Movie 2) tetraploïde oöcyt Meiotische divisies beeltenis van een over het algemeen normale meiose. Pijlpunten mark poollichaampjes en een gestippelde lijn markeert de cortex van de oöcyt binnen de spermatheca en omgeven door sperma; t = tijd vervallen in minuten. De bar van de schaal is 10 µm. Klik hier voor een grotere versie van dit cijfer.
| Genotype | Tetraploïde afgeleide (sets van Autosomes: aantal chromosomen) * | Ouderlijke stam (diploïde) |
| meIs16 [pie-1p::mCherry:: zijn-58 + unc-119(+)]; | MSC1 (4A:4 X) | MSC0 |
| ruIs57 [pie-1p::GFP::b-tubuline + unc-119(+)] | MSC2 (4A:3 X) | |
| MSC3 (4A:4 X) | ||
| MSC5 (4A:3 X) | ||
| MSC6 (4A:4 X) | ||
| MSC8 (4A:4 X) | ||
| UNC-119(ed3) III; ddIs6; ddIs6 [tbg-1::GFP + unc-119(+)]; ltIs37; ltIs37 [pAA64; pie-1p::mCherry::HIS-58 + unc-119(+)] IV | MSC14 (4A:3 X) | TMR17 |
| MSC15 (4A:3 X) | ||
| MSC16 (4A:4 X) | ||
| SPO-11 (me44) / nT1 IV; +/ nT1 [qIs51 [myo-2::gfp persoonliijke-10::gfp, PF22B7.9::gfp]] V | AV800& | AV776 |
| meIs8 [pie-1p::gfp::cosa-1 + unc-119(+)] II; | AV809& | AV727 |
| ltIs37 [pie-1p::mCherry:: zijn-58 + unc-119(+)] IV; | ||
| ltIs38 [pie-1p::gfp::ph(PLC1delta1) + unc-119(+)] | ||
| meIs8 [pie-1p::gfp::cosa-1 + unc-119(+)] II; mnT12 (X; IV) | AV826& | AV695 |
| mIn1 [dpy-10(e128) mIs14 [myo-2::gfp pes-10::gfp]] / | AV810& | DR2078 |
| bli-2(e768) unc-4(e120) II | ||
| ruIs32 [pie-1::GFP::H2B + unc-119(+)] III | AV822& | AZ212 |
| AV823& | ||
| C. briggsae - mfIs42 [Cel-sid-2 + Cel-myo-2::DsRed] | AV824& | JU1018 |
Tabel 1: tetraploïde stammen gegenereerd. * Afgeleid door het aantal bivalents (aangesloten homologe paren) en univalents (individuele homologen) scoren in eicellen vóór de Meiotische divisies naast het aandeel van de mannetjes gewenste.
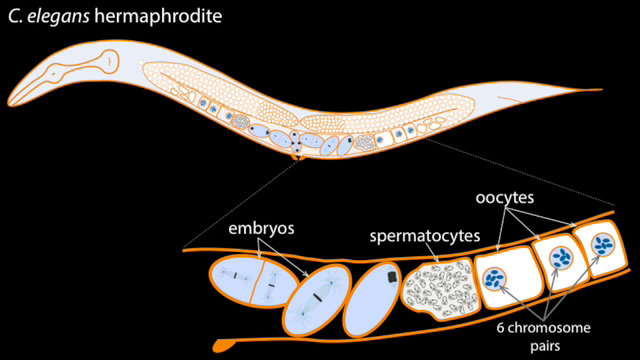
Film 1: Screening om te bevestigen of stabiele Lon stammen zijn volledige of gedeeltelijke tetraploids. Film begint met een diagram van een wild type hermafrodiet markeren de regio beeld (onbevruchte eicellen) te identificeren van tetraploids door het tellen van chromosoom paren. Naar aanleiding van het diagram een reeks Z-stapel films en projecties Toon geslachtsklieren van diploïde en tetraploïde dieren vast en DAPI gekleurd of live beelden van spanningen uiten Mcherry::H2B Histon. Screening wordt gedaan door het tellen van het aantal aangesloten homologe chromosoom paren in onbevruchte eicellen. Tellen van MCherry of DAPI gebeitst organen wordt gedaan in de onbevruchte oöcyt dichtst bij het sperma spermatheca (de "-1 oöcyt") op te slaan. Chromosomen in deze oöcyt zijn meest gecondenseerd en gescheiden van elkaar, waardoor voor meer accurate homolog graven paren. Meer dan 10 dieren per stam werden gescreend om ervoor te zorgen dat de graven van de chromosoom-1 oöcyt juist waren. De dikte van de stapel is 0,2 µm. gelieve Klik hier om deze video te bekijken. (Klik met de rechtermuisknop om te downloaden.)
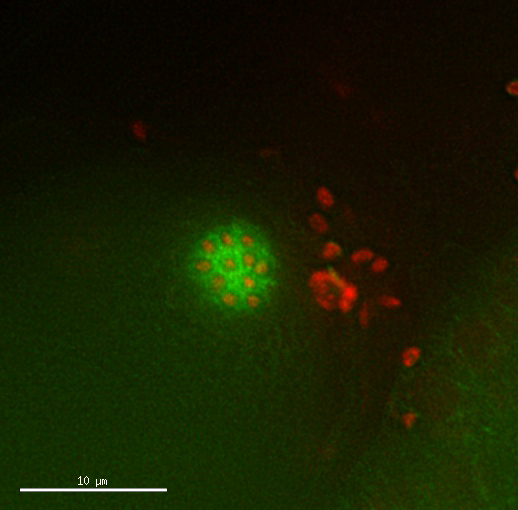
Movie 2: tetraploïde oöcyt divisies normale weergegeven. Time-lapse oöcyt van een tetraploïde stam Mcherry::H2B histone en GFP::β-tubuline te verdelen. Timing en patroon van de divisies worden normaal weergegeven. Foto's genomen elke 2.5 min. gelieve Klik hier om deze video te bekijken. (Klik met de rechtermuisknop om te downloaden.)
Discussie
Productie van haploïde geslachtscellen van (n) is de sleutel tot het genereren van een diploïde (2n) zygote op bevruchting. Deze verlaging van het genoom is bereikt tijdens de meiose met twee opeenvolgende celdelingen na een enkele genoom duplicatie. Voor het genereren van haploid gameten, C. elegans, zoals met de meeste andere metazoans, scheiden maternally - en paternally-afgeleide homologen in de eerste klasse, overwegende dat zuster chromatiden van elk homolog in de tweede divisie scheiden. Een manier die hele genoom polyploïdie ontstaat in de natuur is door middel van de generatie van de gameten, die niet de helft van hun genoom grootte tijdens de meiose.
Het is gekend voor meer dan 50 jaar dat tetraploïde C. elegans nematoden zijn levensvatbaar en vruchtbaar. Nigon23, en later Madl en Herman22, gegenereerd en een handvol C. elegans tetraploids door verstoren Meiotische chromosoom segregatie geïdentificeerd gebruik van warmte-shock behandelingen en het gebruik van genetische markers, respectievelijk. Een extra honkslag C. briggsae tetraploïde stam was afgeleid met behulp van dit protocol meer dan 30 jaar later24. Deze tetraploids werden gebruikt om te onderzoeken hoe C. elegans bepalen of mannelijke of hermafrodiete, hoe ploïdie regelt de groei en grootte, en om te analyseren in paren rangschikken en synapsis in meiose25,26,, 38 , 39 , 40. maar deze en andere studies waarbij het gebruik van specifieke tetraploids of Triploïde stammen werden beperkt door de moeilijkheid bij het genereren van tetraploïde stammen door deze methode.
Het protocol beschreven hier stelt de generatie van stabiele volledige 4A, 4 X en gedeeltelijke 4A, 3 X tetraploïde Caenorhabditis nematode stammen uit een eerste diploïde genetische achtergrond of karyotype zonder het gebruik van genetische merkers.
Tetraploidy kunnen ontstaan door meer dan één mechanisme in C. elegans:
Madl en Herman gesuggereerd dat de tetraploïde stammen die ze gegenereerd waarschijnlijk ontleend aan een Triploïde tussenfase. Hun stammen werden verkregen door selectie over meerdere generaties of door overschrijding van de vermeende Triploïde intermediair met diploïde mannetjes22. De gebreken in het chromosoom partitioneren in rec-8 mutanten dat aanleiding geeft tot diploïde eicellen en zaadcellen suggereren een ander mogelijk mechanisme waarmee tetraploïde dieren zich met de rec-8 RNAi regeling27 voordoen kunnen.
De rec-8 RNAi behandeld hermafrodieten kon produceren diploïde oöcyten en spermatocyten, die aanleiding tot tetraploïde dieren op bevruchting geven zou. Overeenstemming met deze mogelijkheid is het feit dat sommige van de gekloonde F2 hermafrodieten gaf aanleiding tot stabiele Lon stammen in de volgende generatie, die dat suggereert de gekloonde Lon F2 hermafrodieten waar al tetraploïde. In de kruising-regeling, is de eerste generatie van rec-8 RNAi behandeld hermafrodieten gekruist met onbehandelde mannen. Diploïde spermatocyten kunnen nog steeds voordoen bij mannetjes, omdat het Kruis wordt gedaan in de aanwezigheid van bacteriën uiting van rec-8 dsRNA en dus, mannetjes worden blootgesteld aan rec-8 RNAi tijdens de paring gedurende ten minste 3 dagen. De Lon polyploids in de cross-fertilizing regeling kon daarom ook hebben gevormd uit de bevruchting van eicellen diploïde door diploïde sperma. Stabiele tetraploïde spanningen kunnen ontstaan vanuit beide bevruchting tussen diploïde gameten of vanaf kruising Triploïde dieren met eicellen van variabele ploïdie met diploïde dieren haploïde sperma produceren.
Belangrijke overwegingen:
Zelf-versus kruisbestuiving regelingen:
De regeling van de zelfstandigen Bemestings- rec-8 RNAi behandeld F1 hermafrodieten en de regeling met betrekking tot de overschrijding van de behandelde hermafrodieten met onbehandelde mannetjes beide gaf aanleiding tot 4A, 4 X en 4A, 3 X tetraploïde stammen. Hoewel meer polyploids oorspronkelijk geïsoleerd van de regeling zelf waardegevende bestanddelen waren, meer van deze polyploïde dieren waren steriele en dus beide systemen zijn ook efficiënt op het produceren van tetraploïde stabiele stammen. De reden voor de toegenomen succes en steriliteit in de zelfstandige waardegevende bestanddelen regeling blijft onbekend. Hoewel beide systemen ook efficiënt zijn, is de zelfstandige waardegevende bestanddelen regeling makkelijker als het niet dat de isolatie van mannen voor de paring vereist. Bovendien, wanneer de spanning van belang is inefficiënt of defect bij de paring, zou de zelfstandige waardegevende bestanddelen regeling wenselijk zijn. De cross-fertilizing regeling mogen worden gebruikt voor het genereren van complexe tetraploids met meer dan twee versies van een één chromosoom.
Wijzigingen en beperkingen:
Momenteel, omvat dit protocol rec-8 RNAi behandeling door het voeren van de bacteriën uiten dsRNA voor de rec-8 -gen. Dus, dit protocol werkt niet in Caenorhabditis soorten niet reageert op RNAi door het eten, of in mutanten defect in milieu- of systemische verspreiding van RNAi tussen weefsels41,42,43. Dit probleem kan mogelijk worden opgelost door de invoering van RNAi behandeling door directe inspuiting van de dsRNA van belang rechtstreeks in de kiemcellen.
Triploïde dieren moeten worden gegenereerd door een tetraploïde overtocht naar een diploïde dier waarvan het afkomstig is, omdat deze regeling geen stabiele Triploïde stammen44,45 genereert. Slechts 15% van de eieren gewenste door triploids hatch, en hun nageslacht zijn meestal steriele nageslacht als gevolg van aneuploïdie. Daarnaast enkele overlevende vruchtbare nakomelingen zijn vaak volledig of in de buurt van ze binnen een paar generaties. Dit is waarschijnlijk, tenminste gedeeltelijk, omdat eicellen gedeeltelijk Trisomie corrigeren zijn door het scheiden van het derde chromosoom in het lichaam van de polar in de eerste Meiotische klasse.
Een onoverkomelijke beperking van dit protocol is dat het niet werkt voor het maken van tetraploids van mutanten die invloed hebben op onderdelen van de machine RNAi omdat ze resistent zijn tegen RNAi behandeling46.
Problemen oplossen:
REC-8 RNAi:
Een paar overwegingen zijn cruciaal voor dit protocol om succesvol te zijn. De eerste is het gebruik van verse IPTG en vers bereide IPTG NMG platen voor inductie van rec-8 dsRNA productie in de bacteriën van de bacteriën HT115 uitvoering van de kloon van rec-8 (W02A2.6). IPTG is lichtgevoelig en het is belangrijk om te verminderen blootstelling aan licht aan platen. IPTG platen kunnen maximaal één maand bij 4 ° C in het donker worden opgeslagen. Ten tweede, de rec-8 (W02A2.6) RNAi HT115 bacteriestammen uit de Ahringer-bibliotheek (Kamath en Ahringer 2003) leverde een sterkere rec-8 fenotype dan andere beschikbare rec-8 HT115 klonen.
Tetraploïde stam onderhoud:
Tetraploïde stammen groeien heel langzaam en produceren van hoogstens 50 nakomelingschap per generatie47. Alle geïdentificeerde tetraploïde stammen zijn relatief stabiel, maar ze kunnen breken en geworden diploïde wanneer benadrukt (Jonathan Hodgkin persoonlijke communicatie en onze niet-gepubliceerde opmerkingen). Daarom is het belangrijk op te merken dat wanneer tetraploïde soorten worden gekweekt bij 25 ° C, warmte-geschokt, uitgehongerd, of bevroren en ontdooide, ze snel naar de diploidy, terugkeren kunnen dus het is belangrijk te blijven halen de Lon dieren wanneer deze stammen ontdooien of wanneer bloot van deze stammen aan de stressvolle omstandigheden die kunnen veroorzaken hen om terug te keren.
Mogelijke toepassingen:
Onderzoek naar het effect of de rol van hele genoom polyploidization in evolutie, celcyclus, genuitdrukking en ontwikkeling in meercellige organismen heeft vertrouwd op vergelijkingen tussen: cellen in een organisme waarin verschillende ploïdie, dezelfde cel typen in nauw verband met verschillende ploïdie, of soorten die hebben ondergaan evolutionair recente polyploidization gebeurtenissen en fysieke isolatie3,5,6,7,8 ,11,18,19,20,48,49,50. Hoewel tetraploids kan worden afgeleid uit de zebravis en muis modelsystemen, zijn hun nageslacht steriel of embryonically dodelijke16,17. Bovendien, deze modelsystemen hebben lange levenscycli t.o.v. C. elegans, en de beschikbare methoden voor het genereren van polyploïde dieren zijn ingewikkeld en inefficiënt. C. elegans spanningen afgeleid door deze methode zal dus instrumentale voor het bevorderen van een onderzoek naar de effecten en de rollen van hele genoom polyploïdie in meercellige organismen.
Aangezien een Triploïde kan worden afgeleid uit een tetraploïde door de tetraploïde overtocht naar de oorspronkelijke diploïde, biedt een vergelijking tussen ze, triploids en tetraploids die alleen in het aantal exemplaren van het genoom verschillen, een unieke en ongekende gelegenheid om evalueren van gelijkwaardige dieren/organen/cellen met verschillende genoom grootte (of gene dosis). De flexibiliteit en het gemak van de hier beschreven regeling heeft ons voor het genereren van tientallen tetraploïde stammen van verschillende genetische diploïde achtergronden of karyotypes toegestaan. Sommige van deze stammen werden reeds gebruikt om query mechanismen voor paring van de homologe chromosoom en synapsis tijdens de meiose27.
Wild type en mutant tetraploïde stammen uitvoering van fluorescente markeringen zal bieden nieuwe mogelijkheden van onderzoek te begrijpen van relaties tussen genoom grootte en nucleaire/cytosol verhouding op intracellulaire/mobiele/orgel en hele dier schalen, hele genoom polyploidization op de aanpassing, soortvorming, gene dosis en expressie en weefsel- en orgaanbanken ontwikkeling. Naast de studie van biologische schalen zal de generatie van tetraploïde stammen verder aanzienlijk query's voor fundamentele biologische vragen relevant zijn voor de extracellulaire signalering, instabiliteit van het genoom, endoreduplicatie, hele genoom dubbel, gene dosering, aanpassing aan stress, ontwikkeling van resistentie tegen geneesmiddelen, en mechanisme soortvorming.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Wij danken de Caenorhabditis genetica Center (gefinancierd door het National Institute of Health (NIH) Office van onderzoek infrastructuur programma's P40 OD010440) voor stammen. De auteurs bedank Baptiste Roelens en Eli Lessman, voor het verstrekken van ons met constructieve feedback en de Mano-Lab op CCNY, CUNY voor het gebruik van hun laboratorium voor een deel van het filmen en voor hun hulp. Dit werk werd gesteund door een PVC-CUNY award TRADB-46-113 en NIH grant 1SC2GM118275-01. M.S. was slechts gedeeltelijk ondersteund door een Canadese Instituut van gezondheid (CIHR) postdoctoral fellowship, en E.K. werd gesteund door de NIH/NIGMS stijgen GM062981 verlenen.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Dissecting Microscope | Motic Microscopy | SMZ171 | |
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
| NGM agar platen | |||
| 60 mm x 15 mm Petri-schaaltjes, steriel | Tritech Research | T3305 | |
| 35 mm x 15 mm Petri-schaaltjes, steriel | Tritech Research | T3500 | |
| Bacteriologisch Agar, 5 kg | VWR | 89140-850 | |
| Natriumchloride, Biotechnologiekwaliteit | VWR | 97061-278 | |
| Pepton, BD Bacto | VWR | 90000-368 | |
| Ampicilline Trihydraat | VWR | 97062-300 | |
| IPTG, dioxaan-vrij | Thermo Scientific | R0391 | |
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
| Groeicultuur | |||
| LB Lennox Bouillon | IBI Scientific | 89126-176 | |
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
| LB Agar platen | |||
| LB Agar Lennox | IBI Scientific | 89126-182 | |
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
| Antibiotica | |||
| Ampicilline Trihydraat | VWR | 97062-300 | |
| Tetracycline Hydrochloride | Fisher Scientific | BP912-100 | |
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
| Kleuren | |||
| Hoechst 33258, Pentahydraat | Biotium | 40045 | |
| DAPI | Biotium | 40011 | |
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
| Ethanol Fixatie | |||
| Ethanol, Zuiver, 190 Proof (95%), USP | Koptec, VWR | 89125-166 | |
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
| M9 Buffer | |||
| Natriumchloride, Biotechnologiekwaliteit | VWR | 97061-278 | |
| Kaliumfosfaat, Monobasisch Anhydrisch | VWR | 97062-346 | |
| Natriumfosfaat, monobasisch dihydraat | Fisher Scientific | AC271750025 | |
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
| RNAi Klonen | |||
| HT115 bacteriën die rec-8 dsRNA tot expressie brengen | Source Bioscience | W02A2.6 | |
| HT115 bacteriën die rec-8 dsRNA tot expressie brengen | Dharmacon | RCE1182-202299820 |
Referenties
- Ricke, R. M., van Ree, J. H., van Deursen, J. M. Whole chromosome instability and cancer: a complex relationship. Trends Genet. 24, 457-466 (2008).
- Frawley, L. E., Orr-Weaver, T. L. Polyploidy. Curr Biol. 25, R353-R358 (2015).
- Orr-Weaver, T. L. When bigger is better: the role of polyploidy in organogenesis. Trends Genet. 31, 307-315 (2015).
- Otto, S. P. The evolutionary consequences of polyploidy. Cell. 131, 452-462 (2007).
- Davoli, T., de Lange, T. The Causes and Consequences of Polyploidy in Normal Development and Cancer. Annu Rev Cell Dev Biol. 27, 585-610 (2011).
- Adams, K., Wendel, J. Novel patterns of gene expression in polyploid plants. Trends Genet. 21, 539-543 (2005).
- Adams, K. L., Wendel, J. F. Polyploidy and genome evolution in plants. Curr Opin Plant Biol. 8, 135-141 (2005).
- Berman, J. Ploidy plasticity: a rapid and reversible strategy for adaptation to stress. FEMS Yeast Res. 16, (2016).
- Levy, D. L., Heald, R. Mechanisms of Intracellular Scaling. Annu Rev Cell Dev Biol. 28, 113-135 (2012).
- Breneman, A., Cande, J., Dunn, J., Burbank, K., O'toole, E. Genome-wide genetic analysis of polyploidy in yeast. Nature. 443, 541-547 (2006).
- Kuznetsova, A. Y., et al. Chromosomal instability, tolerance of mitotic errors and multidrug resistance are promoted by tetraploidization in human cells. Cell Cycle. 14, 2810-2820 (2015).
- Taylor, J. S., Van de Peer, Y., Meyer, A. Genome duplication, divergent resolution and speciation. Trends Genet. 17, 299-301 (2001).
- Younis, A., Hwang, Y. -J., Lim, K. -B. Exploitation of induced 2n-gametes for plant breeding. Plant Cell Rep. 33, 215-223 (2014).
- Ihssen, P. E., McKay, L. R., McMillan, I., Phillips, R. B. Ploidy Manipulation and Gynogenesis in Fishes: Cytogenetic and Fisheries Applications. Trans Am Fish Soc. 119, 698-717 (2011).
- Stanley, J. G., Allen, S. K., Hidu, H. Polyploidy induced in the American oyster, Crassostrea virginica, with cytochalasin B. Aquaculture. 23, 1-10 (1981).
- Eakin, G. S., Behringer, R. R. Tetraploid development in the mouse. Dev Dyn. 228, 751-766 (2003).
- Heier, J., Takle, K. A., Hasley, A. O., Pelegri, F. Ploidy manipulation and induction of alternate cleavage patterns through inhibition of centrosome duplication in the early zebrafish embryo. Dev Dyn. 244, 1300-1312 (2015).
- Arnold, B., Kim, S. -T., Bomblies, K. Single Geographic Origin of a Widespread Autotetraploid Arabidopsis arenosa Lineage Followed by Interploidy Admixture. Mol Biol Evol. 32, 1382-1395 (2015).
- Session, A. M., et al. Genome evolution in the allotetraploid frog Xenopus laevis. Nature. 538, 336-343 (2016).
- Gallardo, M. H., Bickham, J. W., Honeycutt, R. L., Ojeda, R. A., Köhler, N. Discovery of tetraploidy in a mammal. Nature. 401, 341(1999).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, Suppl . 5-16 (1987).
- Madl, J. E., Herman, R. K. Polyploids and sex determination in Caenorhabditis elegans. Genetics. 93, 393-402 (1979).
- Nigon, V. Polyploidie experimentale chez un nematode libre, Rhabditis elegans maupas. Bull Biol Fr Belg. 95, 187-225 (1951).
- Woodruff, G. C., Eke, O., Baird, S. E., Félix, M. -A., Haag, E. S. Insights Into Species Divergence and the Evolution of Hermaphroditism From Fertile Interspecies Hybrids of Caenorhabditis Nematodes. Genetics. 186, 997-1012 (2010).
- Mlynarczyk-Evans, S., Roelens, B., Villeneuve, A. M. Evidence That Masking of Synapsis Imperfections Counterbalances Quality Control to Promote Efficient Meiosis. PLoS Genet. 9, e1003963(2013).
- Lozano, E., Sáez, A. G., Flemming, A. J., Cunha, A., Leroi, A. M. Regulation of Growth by Ploidy in Caenorhabditis elegans. Curr Biol. 16, 493-498 (2006).
- Roelens, B., Schvarzstein, M., Villeneuve, A. M. Manipulation of Karyotype in Caenorhabditis elegans Reveals Multiple Inputs Driving Pairwise Chromosome Synapsis During Meiosis. Genetics. 201, 1363-1379 (2015).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Severson, A. F., Ling, L., van Zuylen, V., Meyer, B. J. The axial element protein HTP-3 promotes cohesin loading and meiotic axis assembly in C. elegans to implement the meiotic program of chromosome segregation. Genes Dev. 23, 1763-1778 (2009).
- Kamath, R. S., Ahringer, J. Genome-wide RNAi screening in Caenorhabditis elegans. Methods. 30, 313-321 (2003).
- Wood, W. B. The Nematode Caenorhabditis Elegans. , Cold Spring Harbor Laboratory Press. New York. (1988).
- MacQueen, A. J., et al. Chromosome Sites Play Dual Roles to Establish Homologous Synapsis during Meiosis in C. elegans. Cell. 123, 1037-1050 (2005).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Schvarzstein, M., Wignall, S. M., Villeneuve, A. M. Coordinating cohesion, co-orientation, and congression during meiosis: lessons from holocentric chromosomes. Genes Dev. 24, 219-228 (2010).
- Kim, S., Spike, C., Greenstein, D. Germ Cell Development in C. elegans. , Springer. New York, NY. 277-320 (2013).
- Peters, N., et al. Control of mitotic and meiotic centriole duplication by the Plk4-related kinase ZYG-1. J Cell Sci. 123, 795-805 (2010).
- Pasierbek, P. A Caenorhabditis elegans cohesion protein with functions in meiotic chromosome pairing and disjunction. Genes Dev. 15, 1349-1360 (2001).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, 5-16 (1987).
- Flemming, A. J., Shen, Z. -Z., Cunha, A., Emmons, S. W., Leroi, A. M. Somatic polyploidization and cellular proliferation drive body size evolution in nematodes. Proc Natl Acad Sci U S A. 97, 5285-5290 (2000).
- Meneely, P. M. Sex determination in polyploids of Caenorhabditis elegans. Genetics. 137, 467-481 (1994).
- Whangbo, J. S., Hunter, C. P. Environmental RNA interference. Trends Genet. 24, 297-305 (2008).
- Imae, R., Dejima, K., Kage-Nakadai, E., Arai, H., Mitani, S. Endomembrane-associated RSD-3 is important for RNAi induced by extracellular silencing RNA in both somatic and germ cells of Caenorhabditis elegans. Sci Rep. 6, 28198(2016).
- Tijsterman, M., May, R. C., Simmer, F., Okihara, K. L., Plasterk, R. H. A. Genes required for systemic RNA interference in Caenorhabditis elegans. Curr Biol. 14, 111-116 (2004).
- Cortes, D. B., McNally, K. L., Mains, P. E., McNally, F. J. The asymmetry of female meiosis reduces the frequency of inheritance of unpaired chromosomes. Elife. 4, e06056(2015).
- Vargas, E., et al. Autosomal Trisomy and Triploidy Are Corrected During Female Meiosis in Caenorhabditis elegans. Genetics. 207, 911-922 (2017).
- Tabara, H., et al. The rde-1 gene, RNA interference, and transposon silencing in C. elegans. Cell. 99, 123-132 (1999).
- Hodgkin, J. Karyotype, ploidy, and gene dosage. , University of Oxford. (2005).
- Schoenfelder, K. P., Fox, D. T. The expanding implications of polyploidy. J Cell Biol. 209, 485-491 (2015).
- Levy, D. L., Heald, R. Biological Scaling Problems and Solutions in Amphibians. Cold Spring Harb Perspect Biol. 8, a019166(2015).
- Taylor, J. S., Van de Peer, Y., Braasch, I., Meyer, A. Comparative genomics provides evidence for an ancient genome duplication event in fish. Philos Trans Royal Soc B. 356, 1661-1679 (2001).
Herprints en machtigingen
