Dit protocol beschrijft het gebruik van één keten MHC klasse I complexen te onderzoeken van de moleculaire interacties in menselijke CD8 + T cel activatie: generatie van gemanipuleerde antigeen presentatie van cellen uiten van één keten bouwt, cultuur van menselijke CD8 + T cel kloon en T-cel activatie experimenten.
Methodenartikel
Gebruik van één keten MHC technologie te onderzoeken van Co-agonisme in menselijke CD8 + T cel activatie
In dit artikel
Samenvatting
Samenvatting
Non-stimulerend zelf peptide MHC (pMHC) complexen doen niet het induceren van T-cel activatie en effector functies, maar T cel reacties op agonist pMHC, door middel van een proces genoemd co-agonisme kunnen verbeteren. Dit protocol beschrijft een experimenteel systeem te onderzoeken van co-agonisme tijdens menselijke CD8 + T cel activatie met het uitspreken van menselijke MHC klasse I moleculen presenteren van vooraf bepaalde peptiden als single polypeptiden (één keten MHC) in een XENOGENECELLEN cellijn. Wij hebben één keten MHCs onder omstandigheden waar lage agonist één ketencomplexen p-MHC en hoge niveaus van niet-stimulerend één ketencomplexen p-MHC naar voren zijn gebracht. Gebruik van deze experimenteel systeem toegestaan ons te vergelijken van CD8 + T cel reacties op agonist pMHC in de aanwezigheid of afwezigheid van niet-stimulerend pMHC. Het protocol beschrijft cel lijn transfectie met één keten MHC constructies, generatie van stabiele cel lijnen, cultuur van hepatitis B virus-specifieke menselijke CD8 + T cellen en T-cel activatie experimenten gelijktijdig quantifying cytokine productie en degranulatie. De gepresenteerde methoden kunnen worden gebruikt voor onderzoek op verschillende aspecten van CD8 + T cel activatie in menselijke T cel systemen met bekende peptide MHC specificiteit.
Inleiding
MHC klasse I (MHC-ik) moleculen presenteren korte (8-10 aminozuren) peptiden afgeleid van eiwitten gesynthetiseerd door elke cel. MHC-ik moleculen op gezonde cellen presenteren zelf peptiden afgeleid van endogene eiwitten. Virale infectie leidt tot de presentatie van niet-zelf virus afkomstige peptiden op MHC-ik, maar zelfs geïnfecteerde cellen aanwezig niet-zelf peptiden in de aanwezigheid van grote hoeveelheden zelf peptide-MHC (pMHC). MHC-ik wordt herkend door de T cel receptor (TCR) en de receptor CD8 mede op T cellen. TCR bindende affiniteit met peptide pMHC is sterk afhankelijk van de volgorde van de gepresenteerde peptides, terwijl CD8-bindend peptide-onafhankelijke. TCR binding aan niet-zelf-agonist pMHC complex leidt tot T-cel activatie en effector functies. Non-stimulerend zelf pMHC complexen doen niet het induceren van T-cel activatie en effector functies, maar T cel reacties op agonist pMHC, door middel van een proces genoemd co-agonisme1,2,3kunnen verbeteren. Co-agonisme geconstateerd in muis CD4 + T cellen4,5,6 , alsmede in muizen en menselijke CD8 + T cellen7,8,9,10, 11 , 12 , 13. onder fysiologische omstandigheden, T-cellen moeten erkennen van beperkte hoeveelheden van agonist pMHC op antigeen presentatie van cellen (APCs) mede presentatie van hoge niveaus van niet-stimulerend pMHC complexen, suggereren dat co-agonisme draagt bij aan optimale T cel reacties in vivo. Cel Totaal oppervlakte MHC klasse ik niveaus zijn vaak werden tijdens virale infecties14 en op tumoren15. Deze immuun belastingontduiking strategie vermindert agonist pMHC presentatie, maar ook vermindert de hoeveelheid CO agonist pMHC ik beschikbaar voor T-cel activatie verhoging. Bovendien, hoge cel oppervlakte expressie niveaus van de MHC klasse I molecuul HLA-C is gebleken dat te correleren met verbeterde HIV controle16, suggereert een cruciale rol voor totale MHC klasse I meningsuiting in T-cel activatie. Ondanks de fysiologische betekenis van co-agonisme, is nog steeds onvolledig zijn moleculaire mechanisme begrepen. Dit is grotendeels te wijten aan technische uitdagingen van de hoeveelheid gepresenteerde co agonist pMHC experimenteel te bepalen terwijl agonist pMHC-constante.
We ontwikkelden een experimenteel systeem te onderzoeken van co-agonisme tijdens menselijke CD8 + T cel activatie met het uitspreken van menselijke MHC klasse I moleculen presenteren van vooraf bepaalde peptide als één polypeptide (enkele keten MHC-I, figuur 1A) in een XENOGENECELLEN cel lijn9,10. Één keten (sc) agonist pMHC was uitgedrukt onder controle van tetracycline-afleidbare promotor in de hamster afkomstige T-REx CHO cellijn uiting van tetracycline onderdrukker; Hierdoor zeer laag "lekke" expressie van sc agonist pMHC in de afwezigheid van tetracycline en hoge sc agonist pMHC expressie na toevoeging van tetracycline (figuur 1BC). De sc agonist uiting van pMHC T-REx CHO cellen werden vervolgens supertransfected met niet-stimulerend, co agonist sc pMHC-ik onder controle van een constitutively actieve promotor (figuur 1BC). Gebruik van deze experimenteel systeem toegestaan ons te vergelijken van CD8 + T cel reacties op agonist pMHC in de aan- of afwezigheid van hoge niveaus van niet-stimulerend pMHC. Kritisch, sinds peptide en MHC-ik zware ketting hangen covalent in de scMHC-ik opmaken, hierdoor introducties van mutaties in MHC moleculen presenteren van vooraf bepaalde peptiden. Gebruik van scMHC-ik technologie dus konden we specifiek moduleren TCR of CD8-bindende eigenschappen van agonist of co agonist pMHC.
Co-agonisme in CD8 + T cel activatie is waargenomen met behulp van gezuiverde MHC-ik complexen presenteren agonist en co agonist peptiden in de vorm van heterodimers11,17 of gepresenteerd op quantum dots12,,13. Vroege werk op het co-agonisme in CD8 + T cel activatie in de context van de agonist pMHC erkenning op APC TAP2-deficiënte cellijnen als APCs gebruikt. TAP is vereist voor transport van de peptide van het cytoplasma naar het endoplasmatisch reticulum en TAP-deficiency ernstig vermindert de pool van beschikbare MHC klasse-bindende peptiden. Bij het ontbreken van peptiden, het ontluikende complex van de MHC klasse I zware ketting en β2- microglobulin is instabiel, wat resulteert in zeer lage MHC-ik cel oppervlakte expressie. Aanvankelijk, deed vergelijking van T cellen gestimuleerd met antigeen geladen TAP-voldoende - deficiënte muis RMA en RMA-S cellijnen, respectievelijk als APCs, niet onthullen enig bewijs voor co-agonisme tijdens muis T-cel activatie18. Gebruik van dit experimenteel systeem heeft echter niet toestaan dat nauwkeurige controle over het bedrag van de agonist pMHC gepresenteerd onafhankelijk van niet-stimulerend zelf pMHC. Bovendien kunnen deze twee cellijnen ook verschillen in expressie of andere moleculen die T-cel activatie, zoals liganden aan T-cel co-stimulatory of remmende receptoren moduleren, celadhesie-moleculen.
Vervolgens, ontwikkelden we een protocol voor het laden van TAP2-deficiënte RMA-S cellen met exogene peptiden presentatie van een vast bedrag van agonist pMHC toestaan in de aanwezigheid of afwezigheid van niet-stimulerend pMHC. Dit werd bereikt door het volgende: incubatie van TAP2-deficiënte RMA-S cellen bij lagere temperaturen (28 ° C, in plaats van de gebruikelijke 37 ° C) te stabiliseren lege MHC klasse I zware ketting/β2 microglobulin complexen19; incubatie bij 28 ° C met exogene agonist peptide; incubatie bij 28 ° C in de aanwezigheid of afwezigheid van exogene niet-stimulerend peptide; en incubatie bij 37 ° C te verminderen cel oppervlakte expressie van de lege MHC klasse I complexen8,9. Gebruik van deze experimentele set-up is gebleken dat de aanwezigheid van niet-stimulerend pMHC activering van muis thymocytes, naïef perifere CD8 + T cellen en CTL's8verbeterd. Mechanistically, de aanwezigheid van niet-stimulerend pMHC CD8 werving voor de T cel: APC immuun SYNAPS zelfs in de afwezigheid van agonist pMHC kan veroorzaken, en niet-stimulerend pMHC TCR interactie met CD8 co-receptor7,8kunt verbeteren. Echter kan dit experimenteel systeem geen testen van de relatieve bijdragen van TCR en CD8 co-receptor binding aan agonist en co agonist pMHC in het bemiddelen van de verhoging van de activering, als wijzigingen TCR of CD8 binding met de MHC klasse die ik zou veranderen invloed zijn op alle MHC moleculen, ongeacht de gepresenteerde peptide. Daarom gebruikten we de MHC klasse ik enkele keten technologie om dit probleem te verhelpen.
De één keten (sc) MHC klasse die ik formaat is gebruikt voor verbetering van de antigene pMHC presentatie voor therapeutische strategieën, te antwoorden op fundamentele vragen over de mechanismen van de TCR en NK-cel receptor activering en werken van20,21 . scMHC-ik bestaat uit peptide, β2- microglobulin en MHC-ik zware ketting vergezeld door twee flexibele serine/glycine-rijke linkers (figuur 1A), diverse verschillende linker sequenties zijn ontwikkeld en getest van22. scMHC-ik kan onafhankelijk van de kraan complexe vouwen en chaperonnes eiwitten nodig voor conventionele pMHC complexe vergadering20. scMHC-ik heb aangetoond te vouwen correct, zoals bepaald met behulp van bevleesdheid-specifieke antilichaam kleuring22 en door het oplossen van sc structuur met röntgendiffractie23. De elementaire scMHC-ik ontwerp is gewijzigd ter verbetering van de binding van lage affiniteit peptiden24,25.
Dit protocol beschrijft het gebruik van menselijke scMHC-I te onderzoeken van co-agonisme tijdens menselijke CTL kloon activering. Het protocol is geoptimaliseerd voor menselijke CTL kloon specifiek voor een epitoop van Hepatitis B-virus (HBV). HBV is een zware gezondheidszorg last wereldwijd, want er zijn 350 miljoen mensen besmet met HBV en chronische HBV-infectie kan leiden tot ontwikkeling van hepatocellulaire carcinoom (HCC). HCC cellen ten gevolge van HBV-infectie meestal HBV-afgeleide epitopes kunnen presenteren en kunnen worden herkend door specifieke menselijke T-cellen. HBV en HCC goedkeuring is gebaseerd op de menselijke T cel reacties26, maar HCC-patiënten vaak lijden aan T cel uitputting en verminderde T cel reacties27. Binnenbrengen van TCR HBV-specifieke T-cellen van HBV is geprobeerd als een potentiële immunotherapie strategie om te elimineren chronische HBV-infectie28. Echter, het is onbekend of deze methode effect sorteren in een klinische setting, als gevolg van de lage niveaus van oppervlakte MHC zullen-ik in menselijke hepatocyten29. Daarom kan inzicht in het mechanisme van coagonism bepalen alternatieve perspectieven voor de immunotherapie van HBV, eventueel door het verbeteren van de presentatie van endogene pMHC voor het opwekken van co-agonisme-gemedieerde T cel reacties. Het protocol bestrijkt alle nodige stappen voor onderzoek op menselijke co-agonisme: transfectie van T-REx CHO cellen met agonist en co agonist sc pMHC, generatie van stabiele T-REx CHO cellijnen, cultuur van HBV-specifieke menselijke CTL CD8 + T cellijn en CTL activering experimenten cytokine productie en degranulatie in reactie op de T-REx CHO cellen te kwantificeren. Hoewel we ons richten op het gebruik van de sc-MHC klasse I technologie te onderzoeken van co-agonisme tijdens HBV T cel activatie, opgemerkt moet worden dat de gepresenteerde methoden kunnen gemakkelijk worden aangepast voor onderzoek op andere aspecten van T cel activatie in menselijke T cel systemen met bekende pMHC-ik specificiteit.
Dit protocol maakt gebruik van een menselijke CD8 + CTL lijn specifiek voor HBV-afgeleide peptide E183-91 (FLLTRILTI: "E183")30 gepresenteerd op HLA-A2. SC HLA-moleculen dat bestaat uit een reeks signaal van menselijke β2-microglobulin, een HLA-A2 bindend peptide van belang, een linker glycine/serine, een menselijke β2-microglobulin, een glycine/serine linker en een A2 zware ketting commercieel kan worden gesynthetiseerd (figuur 1A ). Plasmiden codering scA2 constructies met agonist E183 peptide of coagonist HIV GAG (SLYNTVATL)31 peptiden zijn verkrijgbaar bij de auteurs op aanvraag. De volgorde van de peptide kan worden gewijzigd met behulp van plaats-geleide mutagenese. Een tetracycline-afleidbare vector werd pcDNA5/aan gebruikt om uit te drukken van de agonist één keten HLA-A2 met E183 peptide (sc E183-HLA-A2). In aanwezigheid van tetracycline onderdrukker, de pcDNA5/naar plasmide kunt alleen zeer laag, "lekke" uitdrukking van de proteïne van belang; hoge expressie kan worden opgewekt door toevoeging van tetracycline (figuur 1BC). Gebruik van een systeem van tetracycline-afleidbare expressie geeft u controle over het bedrag van de cel oppervlakte agonist pMHC expressie. Een constitutief expressie plasmide pcDNA3.1 gewend was express coagonist scA2 met GAG peptide (sc GAG-HLA-A2). De expressie van tetracycline-gereglementeerde (T-REx) CHO cel (lijn hamster cel, geen endogene menselijke MHC) gewend was express agonist en co agonist sc-HLA-A2-constructies. Dit experimenteel systeem maakt nauwkeurige controle over pMHC presentatie (Figuur 1 c): geen pMHC presentatie (untransfected T-REx), een hoge hoeveelheid CO agonist pMHC presentatie (constitutieve sc GAG-HLA-A2 expressie), een lage hoeveelheid agonist pMHC presentatie (sc E183-HLA-A2 in de afwezigheid van tetracycline), een hoge hoeveelheid agonist pMHC presentatie (sc E183-HLA-A2 in aanwezigheid van tetracycline), een lage hoeveelheid agonist pMHC presentatie en hoge uitdrukking van co agonist pMHC (sc E183-HLA-A2 in de afwezigheid van tetracycline en constitutieve sc GAG-HLA-A2 expressie). Gebruik van deze experimenteel systeem maakt nauwkeurige controle van de oppervlakte bedragen van de cel van agonist en coagonist pMHC.
Protocol
Opmerking: Alle stappen waarbij gebruik voor live, niet-vaste cellen moet worden uitgevoerd in een bioveiligheid kap, en biohazardous afval moet worden afgevoerd volgens de lokale gezondheids- en veiligheidsreglementering.
1. CHO cel transfectie en generatie van stabiele CHO cellijnen
-
CHO cel transfectie
Opmerking: hier beschreven CHO cel transfectie met behulp van polyethylenimine (PEI). Echter alternatieve methoden kunnen worden gebruikt, zoals CHO cellen relatief gemakkelijk zijn te transfect met behulp van commercieel verkrijgbare lipide transfectie reagentia.- Cultuur CHO cellen in volledige F12 (cF12, aangevuld met 5% FBS, 100 U/mL penicilline, 100 μg/mL streptomycine en 10 µg Fe/mL blasticidin F12 om de uitdrukking van de onderdrukker tetracycline). Passage van de cellen om 3-4 dagen op een 1:10 verhouding.
- Één dag voor transfectie, bereiden de celsuspensie CHO. Wassen CHO cellen in de kolf met PBS (10 mL voor PBS voor een T75 kolf, 5 mL PBS voor een kolf T25). Toevoegen van 0,05% Trypsin/0.02% EDTA in PBS (2 mL voor een T75 kolf, 1 mL voor een kolf T25) aan op de maatkolf en incubeer gedurende 5-10 minuten bij kamertemperatuur (RT). Met behulp van een lichte Microscoop, Controleer of de cellen hebben losgemaakt, en stoppen van trypsinebehandeling door de cF12 toe te voegen aan de kolf (8 mL voor een T75 kolf, 4 mL voor een kolf T25).
- De celsuspensie CHO overbrengen in een tube van 15 mL en centrifuge op 300-400 x g gedurende 5 minuten bij 4 ° C of RT. verwijderen supernatant en resuspendeer in cF12 (10 mL voor een T75 kolf, 5 mL voor de kolf van een T25) tellen met behulp van een hemocytometer.
- Aanpassen van cel concentratie tot 60.000-100.000 CHO cellen/mL. Voeg 5 mL celsuspensie CHO (300.000-500.000 CHO cellen) per putje in een 6 goed bord. Na een nacht bebroeden bij 37 ° C, 5% CO2.
- Op de dag van de transfectie, toevoegen 400 μL serumvrij F12 medium of lage serum media tot een 1,5 mL koker. 3 μg plasmide aan 400 μL van media toevoegen. Meng door pipetteren. Toevoegen van 6 μg PEI (6 μL van 1 mg/mL PEI oplossing) naar de media/DNA mix en vortex onmiddellijk voor 10 s.
- Incubeer de media/DNA/PEI mix op RT voor 10-15 min. Tijdens deze incubatie, door CHO media van de cel in de 6 goed plaat te vervangen door 5 mL verse cF12 media.
- De oplossing media/DNA/PEI aan CHO cellen toevoegen. Voeg de oplossing ontkleuring en gelijkmatig over de put. Na een nacht bebroeden bij 37 ° C, 5% CO2.
-
Generatie van stabiele CHO cellijnen
- Een dag na de transfectie, verwijder medium van de putten en voeg 5 mL van de cF12 met de juiste selectie antibiotica aan elk putje. Gebruik van 0,3 mg/mL hygromycin voor pcDNA5TO gebaseerde plasmiden en 1 mg/mL geneticin voor pcDNA3 gebaseerde plasmiden.
- Als de cellen bereik van meer dan 90% confluentie op 24u transfectie boekt, trypsinize de cellen.
- Was de putjes met 1 mL PBS per putje, voeg 1 mL 0,05% trypsin/0.02% EDTA in PBS en incubeer gedurende 5-10 min op RT. Using een lichte Microscoop, Controleer of de cellen hebben losgemaakt en trypsinebehandeling stoppen door toevoeging van 3-4 mL cF12 per putje.
- De celsuspensie CHO overbrengen in een tube van 15 mL en centrifuge op 300-400 x g gedurende 5 minuten bij 4 ° C of RT. Verwijder het supernatant en resuspendeer in 10 mL cF12. Voeg 5 mL celsuspensie per putje in 6 goed plaat. Gebruik twee putten om te maximaliseren van de opbrengst van transfected cellen.
- Incubeer de platen 6 goed bij 37 ° C, 5% CO2. De dood van de cel van de monitor en de groei van resistente kolonies met behulp van een lichte Microscoop. Media verwijderen en vervangen door verse medium met de juiste antibiotica na 4-5 dagen, of wanneer aanzienlijke celdood wordt waargenomen.
- Zodra de resistente cellen bereik van meer dan 70% samenvloeiing, trypsinize de cellen zoals beschreven in stap 1.2.2 en breng over in een maatkolf T25 voor uitbreiding. De antibiotica selectie duurt 1-2 weken.
- Zodra de antibiotica-resistente CHO-cellen in de kolf T25 70-80% samenvloeiing bereiken, uitvoeren antilichaam vlekken om te controleren of de oppervlakte uitdrukking van de cel van de constructies van belang. Één dag vóór het antilichaam kleuring, trypsinize de cellen zoals beschreven in stap 1.2.2 en aanpassen van de concentratie van de cel tot 200.000 cellen/mL, voeg 1 mL celsuspensie tot 12 goed plaat. Voeg voor het testen van tetracycline-afleidbare constructies, 50-60 ng/mL tetracycline. Na een nacht bebroeden bij 37 ° C, 5% CO2.
- Cel schraper met u loskoppelen van CHO cellen uit de bodem van de put. Deze methode is beter dan trypsinebehandeling, zoals het vermindert het risico van epitoop schade als gevolg van Proteolytische decollete.
- Breng de 1 mL van media met de CHO-cellen die een FACS buis. Spin down op 300-400 x g, 4 ° C gedurende 5 min. resuspendeer in 100 μl van anti-HLA antilichaam verdund in FWB. Incubeer 30 min bij 4 ° C op ijs. Voeren deze kleuring met anti-A2 antilichaam te detecteren totale A2 cel oppervlakte expressie niveaus en TCR-achtige antilichaam specifiek voor A2 in complex met E183 peptide te detecteren agonist pMHC-ik cel oppervlakte expressie niveaus.
- Na verificatie van MHC expressie, FACS-sorteren de positieve cellen, en onderhouden van de gesorteerde cellen in media met antibiotica tegen de transgenic verlies. Voor CHO cellen uiten agonist pMHC, wordt eencellige sorteren aanbevolen, om vergelijkbare agonist pMHC expressie met en zonder supertransfection met mede agonist pMHC. 2-3 weken zijn vereist voor CHO celgroei na de eencellige sorteren.
2. HBV-specifieke CTL cultuur
-
Voorbereiding van PBMCs als feeders voor HBV-specifieke menselijke CTL opnieuw stimulatie
Opmerking: voor de A2-E183-specifieke CTL-kloon, hernieuwde stimulatie met vers geïsoleerde PBMCs, in plaats van ontdooide PBMCs, het beste resultaat geeft.
Let op: Krijgen alle nodige ethische goedkeuringen voordat het werven van vrijwilligers voor bloeddonaties. Met het oog op dit werk, PBMC werden verzameld uit gezonde vrijwilligers onder het protocol goedgekeurd door NUS IRB. Geïnformeerde toestemming was verkregen van alle donoren. Volg de nodige voorzorgsmaatregelen nemen bij het werken met menselijk bloed te verminderen risico van overdracht van bloed overgedragen ziekten.- Voordat u begint, de temperatuur van de centrifuge ingesteld op 19-20 ° C en vooraf warm het verloop (bijvoorbeeld densiteitgradiënt) van de dichtheid aan RT.
- Voeg toe 15 mL room temperatuurgradiënt dichtheid aan tube 50 mL. Centrifugeer bij 400 x g gedurende 5 min op 19-20 ° C. Dit is om ervoor te zorgen dat er geen kleurovergang dichtheid aan de kant van de buis.
- 20 mL bloed van een gezonde vrijwilligers donor via Venapunctie verzamelen. Voeg toe 15 mL PBS tot 20 mL bloed in een tube van 50 mL. Meng door pipetteren omhoog en omlaag.
- Voeg langzaam, de 35 mL bloed verdund in PBS op de top van de 15 mL van dichtheid verloop vanaf stap 2.1.2. Zorg ervoor dat het bloed en het verloop van de dichtheid niet vermengen. Centrifugeer de buizen bij 19 ° C en 1200 x g gedurende 20 minuten met de remmen af.
- Ongeveer 70% van de plasma laag verwijderen. Zorgvuldig de laag met de PBMC (de bewolkt laag op de top van de gradiënt laag van duidelijke dichtheid) gecombineerd met behulp van een Pasteur Pipetteer en breng dit in een nieuwe tube van 50 mL.
- PBS toevoegen aan PBMCs te verkrijgen van een totaal volume van 50 mL. Centrifugeer buis bij 4 ° C, 300-400 x g voor 10 min. Verwijder voorzichtig de bovendrijvende vloeistof met behulp van de vacuüm aspirator en steriele glazen pipet van Pasteur, of door decanteren.
- Resuspendeer de cellen in 50 mL PBS. Centrifugeer buis bij 4 ° C, 300 x g voor 10 min. Verwijder voorzichtig de bovendrijvende vloeistof met behulp van de vacuüm aspirator en steriele glazen pipet van Pasteur, of door decanteren.
- Resuspendeer de cellen in 2 mL zuiver volledige menselijke T cel media (serum mediagroep aangevuld met 2% menselijk serum). Met behulp van de hemocytometer cellen te tellen. Dit protocol geeft gemiddeld 1-2 x 10⁶ PBMCs per 1 mL bloed gebruikt.
-
CTL opnieuw stimulatie met behulp van PBMCs als feeder cellen
- Bestralen PBMCs op 30 Gy voor de remming van de proliferatie in reactie op latere stimulatie.
Let op: Zorgen voor adequate opleiding en naleving van het laboratorium veiligheidseisen bij het gebruik van de irradiator. - Resuspendeer de bestraalde PBMCs in volledige menselijke T cel media bij 2 x 10⁶ cellen/mL. Cytokines en lectine vanaf Phaseolus vulgaris (PHA) toevoegen voor de stimulatie CTL opnieuw 2 x concentratie in de PBMC schorsing. De definitieve cytokine en PHA concentraties zijn: 20 U/mL recombinante menselijke IL-2, 10 ng/mL recombinant IL-7, 10 ng/mL recombinante menselijke IL-15 en 1,5 mg/mL PHA.
- Ontdooi de bevroren CTL ampul in een waterbad 37 ° C. Breng de ontdooide cellen in een tube van 15 mL met 10 mL van volledige menselijke T cel media. De spin naar beneden bij 300-400 x g bij 4 ° C voor 5 min. Verwijder voorzichtig de bovendrijvende vloeistof met behulp van de vacuüm aspirator en steriele glazen pipet van Pasteur, of door decanteren.
- Resuspendeer CTL's in 2 mL zuiver volledige menselijke T cel media. Met behulp van de hemocytometer cellen te tellen. Volledige menselijke T cel media om te verkrijgen van cel concentratie van 106 cellen/mL toevoegen.
- In een 24 goed bord, Voeg 0,5 mL van bestraalde PBMCs (106 cellen) met 2 x cytokines PHA (stap 2.2.2) en 0,5 mL per putje CTL's (0.5 x 10⁶ cellen). Het aantal putten gebruikt, hangt af van het totale aantal CTL's of PBMCs beschikbaar. Incubeer bij 37 ° C, 5% CO2.
- Na 4-5 dagen, wanneer de ontploffingen van de CTL zichtbaar zijn en de media wordt geel, de culturen overboeken naar 6 goed platen, en aanvulling van het volume van de aanvankelijke 1 mL met 4 mL volledige menselijke T cel media met 20 U/mL IL-2, 10 ng/mL IL-7 en 10 ng/mL IL-15 (geen PHA).
- Na 2-3 dagen, overbrengen van de culturen in een maatkolf van T75, voeg 40 mL van volledige menselijke T cel media met cytokines (stap 2.2.2, geen PHA) en cultuur in een verticale positie.
- Zorg ervoor dat u CTL's bij een concentratie van 1-2 x 10⁶ cellen/mL door toevoeging van nieuwe media, aangevuld met cytokines (stap 2.2.2, geen PHA) een volume gelijk is aan die van de bestaande cultuur volume op elke andere dag. CTL's kunnen worden gebruikt voor experimenten 7-14 dagen na een hernieuwde stimulatie.
- Bestralen PBMCs op 30 Gy voor de remming van de proliferatie in reactie op latere stimulatie.
3. T-cel activatie experimenten
Opmerking: Een typisch experiment vereist verscheidene verschillende lijnen van de T-RExCHO: untransfected T-REx CHO cellen (negatieve controle), T-REx CHO cellen waarin niet-stimulerend pMHC alleen (scA2-GAG; negatieve controle), T-REx CHO cellen waarin lage hoeveelheid agonist pMHC-ik () scA2-ENV zonder tetracycline, experimentele monster), T-REx CHO cellen uiten van lage en hoge bedragen voor niet-stimulerend co agonist pMHC (scA2-ENV en scA2-GAG, zonder tetracycline, experimentele monster), van agonist pMHC en T-REx CHO cellen uitdrukken van grote hoeveelheden agonist pMHC-ik scA2-ENV met tetracycline, positieve controle), zoals aangegeven op Figuur 1 cD.
-
Plating CHO cellen als antigeen voorstellende cellen
- Cultuur CHO cellen in T75 kolf, zoals beschreven in stap 1.1.1. Cellen bij 70-90% samenvloeiing gebruiken voor de beste resultaten. Een dag voordat de T cel activatie experiment, trypsinize van de cellen, zoals beschreven in punt 1.1.2. Na trypsinebehandeling, overdracht van de celsuspensie in een tube van 15 mL, centrifuge op 400 x g gedurende 5 minuten bij 4 ° C of RT, bovendrijvende vloeistof verwijderen door pipetteren of decanteren.
- Resuspendeer de pellet cel in 5 mL cF12. Graaf CHO cellen met behulp van een hemocytometer.
- Aanpassen van de concentratie van de cel tot 2 x 10⁵/mL met behulp van cF12. Voeg 50-60 ng/mL van tetracycline aan de agonist alleen monsters om te induceren hoge bedragen van agonist pMHC-ik uitdrukking als positieve controle (Figuur 1 c). CHO cellen zal settelen in 15 mL buizen, dus zorg ervoor om ze te mixen door pipetteren of vortexing voordat plating.
- Voor T-cel activatie assay, voegt 100 μl van de CHO celsuspensie per putje aan U beneden 96 goed plaat, en gebruikt triplicates per cellijn van CHO. CHO cel anti-MHC kleuring, voeg 1 mL celsuspensie tot 12 goed plaat en triplicates per cellijn gebruiken. Na een nacht bebroeden bij 37 ° C, 5% CO2.
-
T-cel activatie assay
Opmerking: deze T cel activatie test kunt gelijktijdige kwantificering van T cel degranulatie (CD107a kleuring, een maat voor de cytotoxiciteit van T-cel) en cytokine productie.- De dag voordat het experiment, centrifugeer CTL's cellen bij 400 x g bij 4 ° C gedurende 5 minuten, rekenen met behulp van hemocytometer en resuspendeer de cellen bij 106 cellen/mL in volledige menselijke T cel media zonder cytokines of PHA. Incubeer bij 37 ° C, 5% CO2. Het doel van deze rest-stap is om de gevoeligheid van de CTL, zoals we hebben gezien dat maximale activering in reactie op lage hoeveelheid antigeen zonder deze stap.
- Op de dag van het experiment, centrifuge T cellen bij 400 x g bij 4 ° C gedurende 5 minuten, verwijder het supernatant door decanteren of pipetteren en resuspendeer de cellen in 2 mL volledige serumvrij media (zonder cytokines of PHA). Tellen van levende T cellen met behulp van een hemocytometer en aanpassen van T cel concentratie tot 106 levende cellen/mL met behulp van de volledige menselijke T cel media (zonder cytokines of PHA).
- Toevoegen van anti-menselijke CD107a antilichaam bij een verdunning 1:100 (eindconcentratie van 2,5 μg/mL), voeg brefeldin A bij een verdunning 1:1000 (eindconcentratie van 1 μg/mL).
- Media uit de CHO-cellen in de 96 goed plaat verwijderen door zuigen met glazen pipet van Pasteur of door flicking de plaat. Voeg per putje, 200 μL van de T cel schorsing (0,2 x 10⁶ cellen) met anti-CD107a en brefeldin A. co cultuur T cellen met CHO cellen voor 3-4 h.
- Aan het einde van de co cultuur, uitvoeren T cel surface antigeen kleuring Spin down de 96 goed plaat op 300-400 x g, 5 min bij 4 ° C, en verwijder de bovendrijvende substantie te zuigen of flicking. Voeg 2.5 μL van CD3 en 2.5 μL van CD8 antilichamen in 50 μl van 0,5% BSA in PBS (stroom was buffer, FWB) per putje voor cel surface antigeen kleuring. Incubeer monsters op het ijs gedurende 30 min. in het donker.
- Wassen monsters door 150 μl van FWB per putje toe te voegen. Spin down de 96 goed plaat op 300-400 x g, 5 min bij 4 ° C, en verwijder de bovendrijvende substantie te zuigen of flicking.
- Fixatie/permeabilization stappen met behulp van een fixatie/permeabilization kit. Voeg 100 µL van fixatie/permeabilization-oplossing (van de fixatie/permeabilization kit) per putje, Meng door pipetteren. Incubeer op ijs gedurende 20 minuten.
- Centrifugeer bij 300-400 x g en 4 ° C gedurende 5 minuten en verwijder de bovendrijvende substantie te zuigen of flicking. Voeg 200 l 1 x perm/afwas buffer (de 10 x de voorraad buffer perm/afwas uit de kit vóór gebruik verdund) per putje. Herhaal deze stap.
- Resuspendeer de pellet cel in 50 μl van 1 x perm/afwas buffer met anti-IFN-γ antilichaam 0,3 μg/ml. Incubeer op ijs gedurende 30 min. in het donker.
- Voeg 150 l 1 x perm/afwas buffer. Centrifugeer bij 300-400 x g voor bij 4 ° C gedurende 5 minuten en verwijder de bovendrijvende substantie te zuigen of flicking. 200 μL van 1 x perm/was buffer, centrifugeren van 300-400 x g voor bij 4 ° C gedurende 5 minuten en verwijder de bovendrijvende substantie te zuigen of flicking toevoegen.
- Resuspendeer elk monster in 200 μL van FWB. Doorgaan met flow cytometrische analyse.
-
CHO cel MHC klasse I kleuring
Opmerking: is het essentieel om te controleren of de scMHC-cel ik oppervlakte niveaus op cellen die worden gebruikt op elk experiment, zoals cellijnen transgenic expressie kunnen verliezen. Bij de voorbereiding van 96 goed plaat voor stimulatie van de T cel, instellen 12 goed plaat voor CHO cel kleuring, zoals uiteengezet in sectie 3.1.4.- Gebruik een cel schraper loskoppelen van CHO cellen uit de bodem van de put. Deze methode is beter dan trypsinebehandeling, zoals het vermindert het risico van epitoop schade als gevolg van Proteolytische decollete.
- Breng de 1 mL van media met de CHO-cellen die de FACS buis. Spin down bij 300-400 x g bij 4 ° C gedurende 5 min. resuspendeer in 100 μl van anti-HLA antilichaam verdund in FWB. Incubeer gedurende 30 minuten bij 4 ° C op ijs.
- Voeren deze kleuring met anti-A2 antilichaam te detecteren totale A2 cel oppervlakte expressie niveaus en TCR-achtige antilichaam specifiek voor A2 in complex met E183 peptide32 te detecteren agonist pMHC-ik cel oppervlakte expressie niveaus.
- 1 mL van FWB toevoegen aan elk monster CHO, spin down op 300-400 x g, 4 ° C, 5 min, en vervolgens resuspendeer de steekproef in 0.3 mL FWB. Stroom cytometry analyse voortzetten.
Resultaten
De sc MHC klasse I hier gebruikte technologie maakt nauwkeurige controle van de oppervlakte expressie van de cel van de MHC klasse I met bekende, covalent gekoppelde peptides, voor het opwekken van T cel activatie. We hebben een gemanipuleerde XENOGENECELLEN APC systeem (figuur 1A, B, C) waarmee de presentatie van lage niveaus van agonist pMHC in de aanwezigheid of afwezigheid van co agonist pMHC (Figuur 1 d, E) gegenereerd. Kritisch, hebben we een TCR-achtige antilichaam specifiek voor HLA-A2 voorstellende E183 peptide gebruikt dat presentatie van de agonist-sc die e183-HLA-A2 wordt niet gewijzigd door co expressie van co agonist sc GAG-HLA-A2 (figuur 1E) wilt weergeven. Echter moet worden opgemerkt dat het E183-HLA-A2 specifieke TCR-achtige antilichaam enkele binding met HLA-A2 voorstellende GAG peptide (figuur 1E toont). Soortgelijke gemanipuleerde antigeen presentatie van cel systemen kan worden geconstrueerd met behulp van verschillende peptiden of MHC moleculen te onderzoeken van moleculaire eisen voor TCR en/of co-receptor interacties in menselijke T cellen met verschillende specificiteit.
We gebruikten deze gemanipuleerde APCs ter stimulering van een E183-HLA-A2-specifieke menselijke CD8 + T cel kloon. Drie negatieve controles werden gebruikt: T cellen alleen, untransfected T-REx CHO-cellen en T-REx CHO cellen uiten grote hoeveelheden mede agonist sc GAG-HLA-A2 om te testen voor potentiële T cel activatie door alle moleculen uitgedrukt op T-REx CHO cellen (untransfected T-REx CHO cellen ten opzichte van de T cel alleen), en voor T-cel activatie door sc-GAG-HLA-A2 (T-REx CHO cellen uiten van hoge niveaus van sc-GAG-HLA-A2 ten opzichte van untransfected T-REx CHO cellen). Untransfected T-REx CHO cellen of van cellen van de T-REx CHO uiten sc-GAG-HLA-A2 deed niet induceren activering van E183-HLA-A2-specifieke CD8 + CTL kloon, zoals bepaald door het kwantificeren van IFN-γ productie en expressie van degranulatie markering CD107a als een maatregel van T-cel cytotoxiciteit (figuur 2AB). Expressie van hoge niveaus van agonist sc E183-HLA-A2, gebruikt als positieve controle, geïnduceerde zeer efficiënte productie van IFN-γ en degranulatie (figuur 2AB), waaruit blijkt dat de sc HLA-A2 constructie kan worden herkend door een specifieke TCR te activeren T cel effector functies. Expressie van lage niveaus van sc E183-HLA-A2 geïnduceerde lagere niveaus van IFN-γ productie en degranulatie, en dit werd versterkt door de aanwezigheid van co agonist sc GAG-HLA-A2 (figuur 2AB). Opgemerkt moet worden dat zeer hoge percentages van CD107a + T cellen werden waargenomen zelfs in reactie op lage niveaus van antigene pMHC (figuur 2B), overeenstemming met vorige verslagen van relatief lage eisen voor de hoeveelheid agonist pMHC voor inductie van T-cel cytotoxiciteit33. De CD107a MFI, met vermelding van de hoeveelheid degranulatie op basis van eencellige, biedt een beter dynamisch bereik (figuur 2B). De T-cel activatie assay gebruikt kunt gelijktijdige kwantificering van twee grote effector functies: cytokine productie en cytotoxiciteit, en biedt zeer gevoelige uitlezing met goede dynamisch bereik.
Hebben we de één keten-technologie gebruikt om te testen of TCR binding aan mede agonist pMHC vereist voor de verhoging van de pMHC-afhankelijke activering co agonist is. We gemuteerd valine op positie 152 aan de rand van de HLA-A2 peptide bindende groef (figuur 3B) naar glutaminezuur maken V152E de mutant, als deze mutatie heeft gemeld om af te schaffen TCR binding met HLA-A234. Wij vervolgens getest als de V152E mutatie TCR bindend voor de kloon van de E183-HLA-A2 CTL gebruikt afschaffen kan, door de invoering van deze mutatie in agonist sc E183-HLA-A2 en uiting geven aan de constructie van de sc mutant agonist in cellen van de T-REx CHO. Wild type, maar niet V152E, sc E183-HLA-A2 geïnduceerde activering van de kloon van de E183-HLA-A2-specifieke CTL gebruikt (figuur 3A). Opgemerkt moet worden dat eventuele mutatie van de TCR-bindende op MHC klasse ik afzonderlijk worden getest voor elke individuele TCR/T cel kloon gebruikt moet, zoals het effect van mutatie van de precieze moleculaire interacties tussen TCR en pMHC complex afhangen zal, en dit tussen verschillen zal verschillende TCRs. Bijvoorbeeld, we getest acht mutaties, hetzij eerder gemeld TCR-bindende mutaties of mutaties voorspeld te verstoren TCR bindende zonder intrekking van peptide bindende in HLA-A2. Van deze was V152E de enige mutatie die activering van de E183-specifieke T cel kloon afgeschaft gebruikt10. Vervolgens leidt de V152E mutatie in de co agonist sc GAG-HLA-A2, en mede uitgedrukt WT of V152E sc GAG-HLA-A2 met lage niveaus van agonist sc E183-HLA-A2. Zowel de V152E als de WT sc GAG-HLA-A2 verbeterde IFN-γ productie en degranulatie (Figuur 3 cD), suggereren dat TCR binding aan mede agonist pMHC niet vereist voor co agonist pMHC-afhankelijke CD8 + T cel activatie verhoging is. Één keten MHC klasse I technologie, zoals hier gepresenteerd, kan worden gebruikt voor het wijzigen van de TCR en/of co-receptor binden aan de MHC klasse I met bekende peptide te onderzoeken van de moleculaire eisen voor T cel antigeen erkenning en activering.
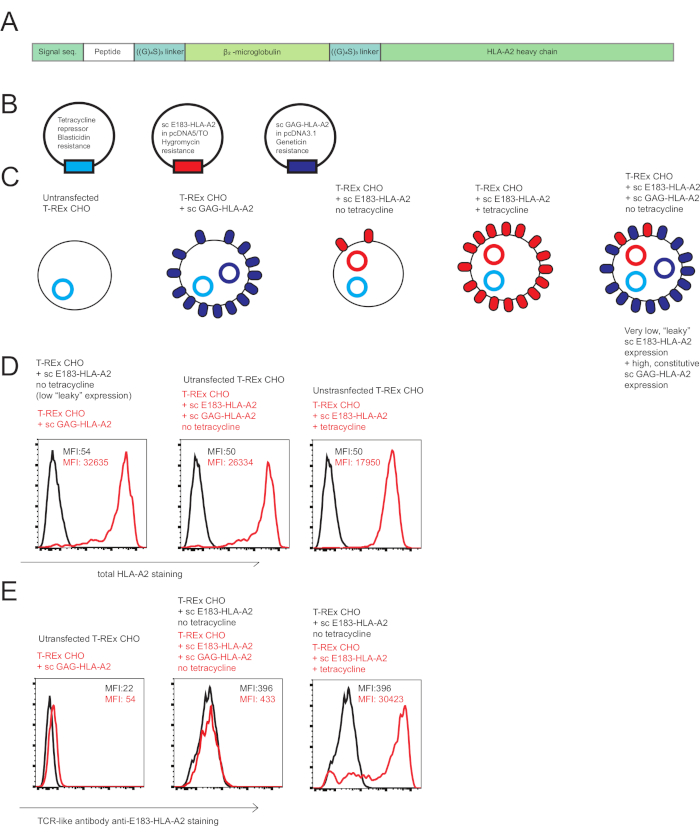
Figuur 1: Single ketting HLA-A2 construeert gebruikt om te onderzoeken co agonist in menselijke CD8 + T cel activatie. (A) schematisch diagram van een scHLA-A2-constructie, bestaande uit covalent signaal opeenvolging van gesmolten menselijke β2 microglobulin, peptide van keuze, flexibele glycine-serine linker (GGGGSGGGGS GGGGS), menselijke β2 microglobulin, flexibele Glycine-serine linker en HLA-A2 zware ketting. (B) schematisch diagram van de plasmiden, gebruikt voor het genereren van gemanipuleerde antigeen presentatie van cellen onderzoeken co-agonisme in menselijke CD8 + T cel activatie: tetracycline onderdrukker, agonist sc E183-HLA-A2 onder controle van tetracycline-afleidbare promotor, niet-stimulerend co agonist sc GAG-HLA-A2 onder controle van de constitutively actieve promotor. (C) schematisch diagram van de gemanipuleerde antigeen presentatie van cellen die gebruikt worden om te onderzoeken van co-agonisme: T-REx CHO cellen (geen menselijke MHC expressie), T-REx CHO cellen uiten constitutively hoge niveaus van sc GAG-HLA-A2 (niet-stimulerend co agonist pMHC), T-REx CHO cellen uiten "lekke" lage sc E183-HLA-A2 in de afwezigheid van tetracycline (lage niveau van de agonist peptide), cellen T-REx CHO cellen uiten van hoge niveaus van sc E183-HLA-A2 in aanwezigheid van tetracycline (hoge niveau van de agonist peptide), T-REx CHO lage niveaus van sc E183-HLA-A2 en hoge niveaus van sc GAG-HLA-A2 (lage niveau van de agonist peptide) en hoog niveau van co agonist peptide uitspreken. (D) cel oppervlakte kleuring van het gemanipuleerde antigeen presentatie van cellijnen, met behulp van anti-HLA-A2 antilichaam. De getallen aanduiden MFI waarden voor MHC-vlek in de poort van levende cellen. Gegevens vertegenwoordiger van 5 onafhankelijke experimenten (E) cel oppervlakte kleuring van het gemanipuleerde antigeen presentatie van cellijnen, met behulp van TCR-achtige antilichaam specifiek tegen HLA-A2 voorstellende E183 peptide. De getallen aanduiden MFI waarden voor MHC-vlek in de poort van levende cellen. Gegevens vertegenwoordiger van 5 onafhankelijke experimenten. Klik hier voor een grotere versie van dit cijfer.
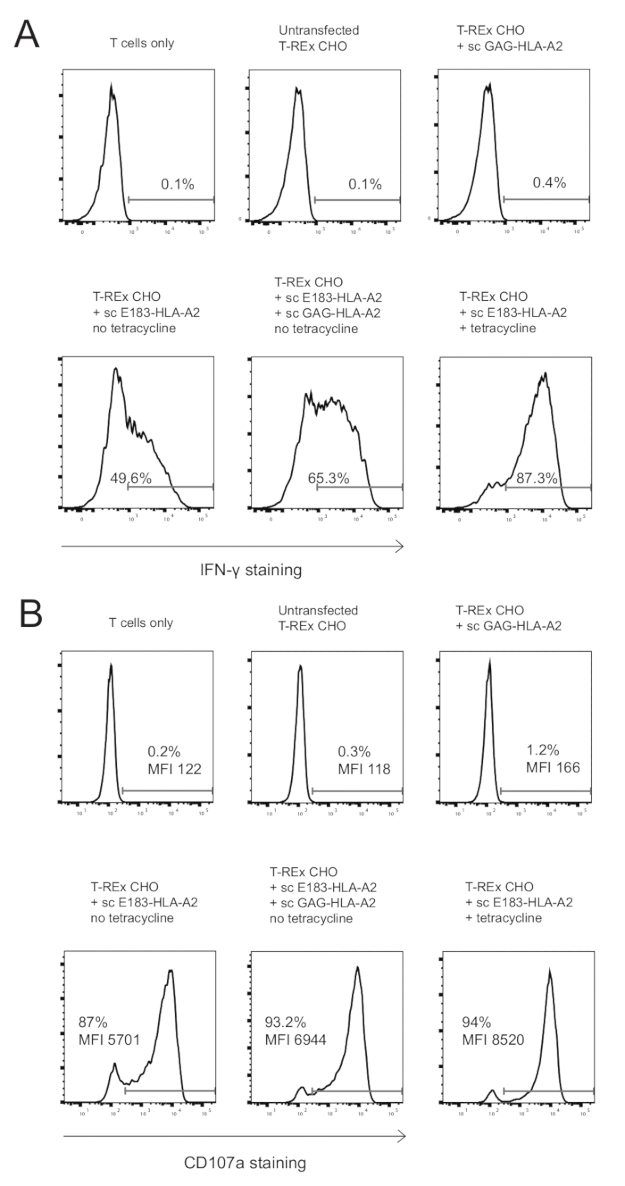
Figuur 2: aanwezigheid van co agonist pMHC uitgebreide cytokine productie en degranulatie van E183-HLA-A2-specifieke menselijke CD8 + CTL kloon. (A) intracellulaire IFN-γ kleuring van HLA-A2-specifieke menselijke CD8 + CTL kloon na 3U stimulatie met de aangegeven ontworpen antigeen presentatie van cellen. De getallen geven het percentage positieve voor IFN-γ kleuring. Gegevens vertegenwoordiger van 3 onafhankelijke experimenten, elk uitgevoerd met technische triplicates. (B) cel oppervlakte CD107a kleuring van HLA-A2-specifieke menselijke CD8 + CTL kloon na 3U stimulatie met de aangegeven ontworpen antigeen presentatie van cellen. De getallen geven het percentage positieve voor de kleuring van de CD107a of de CD107a MFI voor de bevolking van CD8 + T cel. Gegevens vertegenwoordiger van 3 onafhankelijke experimenten, elk uitgevoerd met technische triplicates. Klik hier voor een grotere versie van dit cijfer.
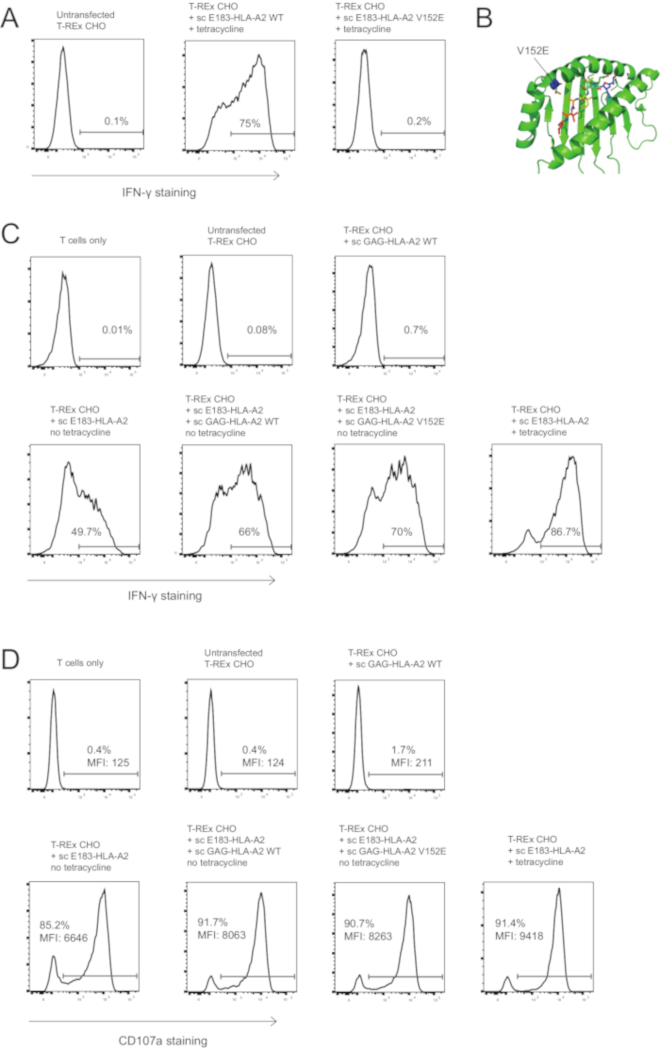
Figuur 3: Co agonist-gemedieerde T-cel activatie verbetering vereist geen TCR binding aan de complexe co agonist-pMHC. (A) V152E-mutatie bij sc E183-HLA-A2 schaft activering van de E183-HLA-A2-specifieke menselijke CD8 + CTL kloon. T-REx CHO cellen uiten van hoog niveau (tetracycline inductie) voor de WT of V152E mutant sc E183-HLA-A2 werden gebruikt om het stimuleren van E183-HLA-A2-specifieke menselijke CD8 + CTL kloon voor 3u. T-cel activatie werd gekwantificeerd aan de hand van de intracellulaire IFN-γ kleuring. De getallen geven het percentage positieve voor IFN-γ kleuring. Gegevens vertegenwoordiger van 3 onafhankelijke experimenten, elk uitgevoerd met technische triplicates. (B) locatie van mutatie van de V152E binnen de peptide bindende groef van HLA-A2. (C) V152E mutatie op sc GAG-HLA-A2 co agonist pMHC complexe doet niet af te schaffen aan verhoging van de co-agonist-afhankelijke activering. Intracellulaire IFN-γ kleuring van HLA-A2-specifieke menselijke CD8 + CTL kloon na 4 uur stimulatie met de aangegeven ontworpen antigeen presentatie van cellen. De getallen geven het percentage positieve voor IFN-γ kleuring. Gegevens vertegenwoordiger van 3 onafhankelijke experimenten, elk uitgevoerd met technische triplicates. (D) V152E mutatie op sc GAG-HLA-A2 co agonist pMHC complexe doet niet af te schaffen aan verhoging van de co-agonist-afhankelijke activering. Cel oppervlakte CD107a kleuring van HLA-A2-specifieke menselijke CD8 + CTL kloon, nadat 3h stimulatie met de aangegeven ontworpen antigeen presentatie van cellen. De getallen geven het percentage positieve voor de kleuring van de CD107a of de CD107a MFI voor de bevolking van CD8 + T cel. Gegevens vertegenwoordiger van 3 onafhankelijke experimenten, elk uitgevoerd met technische triplicates. Klik hier voor een grotere versie van dit cijfer.
Discussie
Het gepresenteerde protocol biedt een robuust instrument voor onderzoek naar de moleculaire interacties tijdens menselijke CD8 + T cel activatie. Een cruciale stap voor onderzoek van co-agonisme tijdens menselijke T-cel activatie is controle over agonist pMHC cel oppervlakte expressie om gelijke agonist pMHC presentatie over de APCs met of zonder co agonist pMHC expressie. In onze experimenteel systeem, dit wordt bereikt met behulp van een enkele cel kloon uiting geven aan lage hoeveelheden agonist pMHC, gevolgd door supertransfection met een co agonist pMHC construct en agonist pMHC kwantificering met behulp van TCR-achtige antilichaam10, 32. als agonist sc pMHC expressie na verloop van tijd veranderen kunt, het is van cruciaal belang te kwantificeren agonist pMHC oppervlakte expressie op APCs gebruikt in elk experiment met TCR-achtige antilichamen. Als beschikbaar, is geen specifiek antilichaam van TCR-achtige agonist scMHC-ik kan worden uitgedrukt als tl proteïne fusion en de cel-oppervlakte expressie kan vervolgens worden gekwantificeerd aan de hand een gevoelige microscopie methode, zoals de totale interne reflectie fluorescentie microscopie 35 , 36. Bovendien cel oppervlakte uitdrukking van co agonist pMHC vermindert na verloop van tijd, als gevolg van methylering-afhankelijke en -onafhankelijke monddood maken van de CMV promotor37, en moet worden gecontroleerd met behulp van antilichaam kleuring en stroom cytometry analyse, met herhaalde FACS-sorteren wanneer nodig. We hebben CHO cellen gekweekt voor maximaal 5 weken met relatief weinig verlies van sc pMHC expressie. Het is raadzaam de CHO-cellen bevriezen kort na selectie/sorteren om een betrouwbare voorraad van cellen met bekende sc MHC expressie.
De verschillende stappen van de gepresenteerde protocollen kunnen worden gewijzigd, afhankelijk van de beschikbaarheid van apparatuur of afhankelijk van de doelstellingen van het specifieke onderzoek. Bijvoorbeeld PBMC proliferatie potentiële kunt geremde (stap 3.2.1) met behulp van alternatieve methoden die vereisen geen een gamma (of X-) irradiator, zoals behandeling met mitomycine C38. Een niet-enzymatische cel dissociatie buffers met metalen chelaatvormers39 kunnen worden gebruikt in plaats van cel schrapen in stap 3.3.1. Bovendien, het antigeen presentatie systeem kan worden gewijzigd zodat het geschikter voor menselijke CTL klonen uiting van verschillende CHO TCRs. cellen uitdrukkelijke hamster MHC klasse I moleculen, en hoewel dit zijn irrelevant voor de lijn van de CTL studeerde hier (figuur 2A en Figuur 3A, we waargenomen geen T cel reacties op untransfected CHO cellen), bestaat de mogelijkheid dat andere menselijke TCRs sommige xenoreactivity kunnen weergeven. In dat geval, hamster MHC klasse I expressie kan worden verminderd door het uitsparen van hamster β2-microglubulin of tik op met behulp van CRISPR/Cas9; of een menselijke APC-lijn kan worden gebruikt nadat β2-microglubulin CRISPR/Cas9-gemedieerde of TAP knock-out.
Het experimentele systeem hier gepresenteerde maakt nauwkeurige controle van TCR en CD8-interacties met MHC moleculen presenteren van vooraf gedefinieerde peptiden. Bijvoorbeeld, hebben we eerder getoond dat mutaties afschaffing van CD8 bindende40 tot en met pMHC van de coagonist geëlimineerd de verhoging van de coagonist-gemedieerde activering in lymfkliertest en menselijke CD8 + T cellen9,10, overwegende dat de intrekking van de TCR interactie met mede agonist pMHC had geen effect op coagonist-gemedieerde activering toebehoren10. Het gebruik van één keten MHC constructies heeft echter verschillende beperkingen. Bijvoorbeeld, het is tijd en arbeid-verbruiken voor het testen van meerdere co agonist peptide sequenties met behulp van deze experimenteel systeem, als dit gaat om generatie van meerdere plasmiden codering sc MHC met verschillende peptides, en de daaropvolgende transfections en de cel sorteren. Eerder, we de lymfkliertest TAP-deficiënte cellijn RMA-S gebruikt voor het testen van meerdere co agonist peptiden in muis T-cel activatie8,9, maar deze aanpak was niet succesvol met de TAP-deficiënte menselijke T2 cel lijn10, waarschijnlijk Als gevolg van de presentatie van de kraan onafhankelijk peptiden41. Een andere beperking van onze experimenteel systeem is dat het voorziet niet in een snelle methode voor het wijzigen van de hoeveelheid CO agonist pMHC moleculen met het oog op de bepaling van de kritische hoeveelheid CO agonist pMHC nodig om te activeren van T cel activatie. Bovendien, het tetracycline-afleidbare systeem gebruikt staat geen titratie van agonist pMHC hoeveelheid op de eencellige niveau door het veranderen van de concentratie van tetracycline, zoals verschillende tetracycline concentratie het aandeel van HLA-A2 positieve cellen verandert, in plaats van HLA-A2 niveau op basis van per cel. Een alternatieve benadering die wij momenteel onderzoeken is het gebruik van ondersteunde lipide bilayers42, vroeger co-agonisme onderzoeken tijdens lymfkliertest CD4 + T cel activatie4 of kralen voorstellende vaste hoeveelheid agonist pMHC in de aanwezigheid van wisselende hoeveelheden mede agonist pMHC. Wanneer gebruikt in combinatie met UV-cleavable peptide technologie-4,43, mag deze alternatieve experimentele systemen snel testen van meerdere co agonist peptide reeksen evenals verschillende hoeveelheden mede agonist pMHC .
De sc MHC technologie kan gelden ook onderzoek naar co-agonisme in menselijke of lymfkliertest CD4 T-cellen, zoals één keten MHC klasse II moleculen presenteren vooraf bepaalde peptiden zijn geuit op zoogdiercellen oppervlakken44. Bovendien, het gebruik van sc MHC technologie kan worden uitgebreid tot onderzoek van niet-klassieke MHC moleculen zoals HLA-E. SC HLA-E is beschreven vóór, en haar expressie is gebleken voor de remming van menselijke T-cel activatie45. Een andere niet-klassieke MHC molecule van belang is CD1, waarin lipiden in plaats van peptiden46. SC constructies bestaande uit zware ketting CD1 en β2-microglobulin is aangetoond te worden uitgedrukt op het celoppervlak en binden van relevante lipide liganden47. Één keten MHC technologie heeft een groot potentieel als een onderzoeksinstrument voor het onderzoeken van moleculaire interacties tijdens de activering van T en NK-cel.
Openbaarmakingen
De auteurs verklaren geen concurrerende belangen.
Dankbetuigingen
Dit onderzoek werd gesteund door de Singapore ministerie van volksgezondheid nationale Medical Research Council onder haar CBRG/0064/2014 te N.R.J.G., door maken onder haar R571-002-012-592 P.A.M., nationale onderzoek Stichting Investigatorship R571-000-272-281 aan P.A.M ., en door een Singapore translationeel onderzoek (ster)-Detective Award (NMRC/ster/013/2012) naar A.B. We zijn dankbaar Dr Paul Hutchinson en Mr. Teo Guo Hui van NUS immunologie programma Flow Core faciliteit voor de deskundige cel sorteren. Wij zijn dankbaar aan Elijah Chen voor kritische lezing van het manuscript.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Aim-V (serum free media) | Gibco | 12055091 | |
| Blasticidin | Gibco | R21001 | |
| Cytofix/Cytoperm (fixatie/permealibisatie kit) | BD | 554714 | |
| F12 | Gibco | 10565-018 | |
| Fetaal bovien serum (FBS) | HyClone | SH3007103 | |
| Geneticin | Gibco | 10131035 | |
| GolgiPlug (Brefeldin A) | BD | 555029 | |
| Humaan serum | Sigma-Aldrich | H4522 | |
| Hygromycin | Gibco | 10687010 | |
| Lectin uit Phaseolus vulgaris (PHA) | Sigma-Aldrich | L4144 | |
| Opti-MEM (lage serum media) | Bibco | 31985070 | |
| 10x PBS | Vivantis | PB0344 – 1L | |
| Penicilline/Streptomycine | HyClone | SV30010 | |
| Polyethyleenimide (PEI) | Sigma-Aldrich | 408727 | |
| Recombinant humaan IL2 | R&D Systems | 202-IL | |
| Recombinant humaan IL7 | R&D Systems | 207-IL | |
| Recombinant humaan IL15 | R&D Systems | 247-ILB | |
| Tetracycline | Sigma-Aldrich | T7660 | |
| T-REx CHO cellijn | Thermo Fisher Scientific | R71807 | |
| 10 x Trypsine/EDTA | Gibco | 15400054 | |
| Antilichamen | |||
| CD3 | BD | 347347 | Clone SK7, RRID:AB_400287 |
| CD8α | BD | 563795 | Clone RPA-T8, RRID:AB_2722501 |
| CD107a | BD | 566261 | Clone H4A3, RRID:AB_2739639 |
| HLA-A2 | eBioscience | 17-9876-41 | Clone BB7.2, RRID:AB_11151522 |
| IFN-γ | eBioscience | 12-7319-41 | Clone 4S.B3, RRID:AB_1311250 |
Referenties
- Gascoigne, N. R. Do T cells need endogenous peptides for activation? Nature Reviews. Immunology. 8 (11), 895-900 (2008).
- Gascoigne, N. R., Zal, T., Yachi, P. P., Hoerter, J. A. Co-receptors and recognition of self at the immunological synapse. Current Topics in Microbiology and Immunology. 340, 171-189 (2010).
- Krogsgaard, M., Juang, J., Davis, M. M. A role for "self" in T-cell activation. Seminars in Immunology. 19 (4), 236-244 (2007).
- Krogsgaard, M., et al. Agonist/endogenous peptide-MHC heterodimers drive T cell activation and sensitivity. Nature. 434 (7030), 238-243 (2005).
- Ebert, P. J., Jiang, S., Xie, J., Li, Q. J., Davis, M. M. An endogenous positively selecting peptide enhances mature T cell responses and becomes an autoantigen in the absence of microRNA miR-181a. Nature Immunology. 10 (11), 1162-1169 (2009).
- Lo, W. L., et al. An endogenous peptide positively selects and augments the activation and survival of peripheral CD4+ T cells. Nature Immunology. 10 (11), 1155-1161 (2009).
- Yachi, P. P., Ampudia, J., Gascoigne, N. R., Zal, T. Nonstimulatory peptides contribute to antigen-induced CD8-T cell receptor interaction at the immunological synapse. Nature Immunology. 6 (8), 785-792 (2005).
- Yachi, P. P., Lotz, C., Ampudia, J., Gascoigne, N. R. T cell activation enhancement by endogenous pMHC acts for both weak and strong agonists but varies with differentiation state. The Journal of Experimental Medicine. 204 (11), 2747-2757 (2007).
- Hoerter, J. A., et al. Coreceptor affinity for MHC defines peptide specificity requirements for TCR interaction with coagonist peptide-MHC. The Journal of Experimental Medicine. 210 (9), 1807-1821 (2013).
- Zhao, X., et al. Nonstimulatory peptide-MHC enhances human T-cell antigen-specific responses by amplifying proximal TCR signaling. Nature Communications. 9 (1), 2716(2018).
- Juang, J., et al. Peptide-MHC heterodimers show that thymic positive selection requires a more restricted set of self-peptides than negative selection. The Journal of Experimental Medicine. 207 (6), 1223-1234 (2010).
- Anikeeva, N., et al. Quantum dot/peptide-MHC biosensors reveal strong CD8-dependent cooperation between self and viral antigens that augment the T cell response. Proceedings of the National Academy of Sciences of the United States of America. 103 (45), 16846-16851 (2006).
- Anikeeva, N., Gakamsky, D., Scholler, J., Sykulev, Y. Evidence that the density of self peptide-MHC ligands regulates T-cell receptor signaling. PloS One. 7 (8), e41466(2012).
- Schuren, A. B., Costa, A. I., Wiertz, E. J. Recent advances in viral evasion of the MHC Class I processing pathway. Current Opinion in Immunology. 40, 43-50 (2016).
- Bubenik, J. MHC class I down regulation, tumour escape from immune surveillance and design of therapeutic strategies. Folia Biologica. 51 (1), 1-2 (2005).
- Apps, R., et al. Influence of HLA-C expression level on HIV control. Science. 340 (6128), New York, N.Y. 87-91 (2013).
- Cebecauer, M., et al. CD8+ cytotoxic T lymphocyte activation by soluble major histocompatibility complex-peptide dimers. The Journal of Biological Chemistry. 280 (25), 23820-23828 (2005).
- Sporri, R., Reis e Sousa, C. Self peptide/MHC class I complexes have a negligible effect on the response of some CD8+ T cells to foreign antigen. European Journal of Immunology. 32 (11), 3161-3170 (2002).
- Ljunggren, H. G., et al. Empty MHC class I molecules come out in the cold. Nature. 346 (6283), 476-480 (1990).
- Kotsiou, E., Brzostek, J., Gould, K. G. Properties and applications of single-chain major histocompatibility complex class I molecules. Antioxidants & Redox Signaling. 15 (3), 645-655 (2011).
- Hansen, T. H., Connolly, J. M., Gould, K. G., Fremont, D. H. Basic and translational applications of engineered MHC class I proteins. Trends in Immunology. 31 (10), 363-369 (2010).
- Yu, Y. Y., Netuschil, N., Lybarger, L., Connolly, J. M., Hansen, T. H. Cutting edge: single-chain trimers of MHC class I molecules form stable structures that potently stimulate antigen-specific T cells and B cells. Journal of Immunology. 168 (7), Baltimore, Md. 3145-3149 (2002).
- Mitaksov, V., et al. Structural engineering of pMHC reagents for T cell vaccines and diagnostics. Chemistry & Biology. 14 (8), 909-922 (2007).
- Truscott, S. M., et al. Disulfide bond engineering to trap peptides in the MHC class I binding groove. Journal of Immunology. 178 (10), Baltimore, Md. 6280-6289 (2007).
- Truscott, S. M., et al. Human major histocompatibility complex (MHC) class I molecules with disulfide traps secure disease-related antigenic peptides and exclude competitor peptides. The Journal of Biological Chemistry. 283 (12), 7480-7490 (2008).
- Bertoletti, A., Ferrari, C. Innate and adaptive immune responses in chronic hepatitis B virus infections: towards restoration of immune control of viral infection. Postgraduate Medical Journal. 89 (1051), 294-304 (2013).
- Boni, C., et al. Characterization of hepatitis B virus (HBV)-specific T-cell dysfunction in chronic HBV infection. Journal of Virology. 81 (8), 4215-4225 (2007).
- Gehring, A. J., et al. Engineering virus-specific T cells that target HBV infected hepatocytes and hepatocellular carcinoma cell lines. Journal of Hepatology. 55 (1), 103-110 (2011).
- Gehring, A. J., et al. The level of viral antigen presented by hepatocytes influences CD8 T-cell function. Journal of Virology. 81 (6), 2940-2949 (2007).
- Bertoni, R., et al. Human histocompatibility leukocyte antigen-binding supermotifs predict broadly cross-reactive cytotoxic T lymphocyte responses in patients with acute hepatitis. The Journal of Clinical Investigation. 100 (3), 503-513 (1997).
- Goulder, P. J., et al. Patterns of immunodominance in HIV-1-specific cytotoxic T lymphocyte responses in two human histocompatibility leukocyte antigens (HLA)-identical siblings with HLA-A*0201 are influenced by epitope mutation. The Journal of Experimental Medicine. 185 (8), 1423-1433 (1997).
- Sastry, K. S., et al. Targeting hepatitis B virus-infected cells with a T-cell receptor-like antibody. Journal of Virology. 85 (5), 1935-1942 (2011).
- vanden Berg, H. A., et al. Cellular-level versus receptor-level response threshold hierarchies in T-cell activation. Frontiers in Immunology. 4, 250(2013).
- Moots, R. J., Matsui, M., Pazmany, L., McMichael, A. J., Frelinger, J. A. A cluster of mutations in HLA-A2 alpha 2 helix abolishes peptide recognition by T cells. Immunogenetics. 34 (3), 141-148 (1991).
- Crites, T. J., Chen, L., Varma, R. A TIRF microscopy technique for real-time, simultaneous imaging of the TCR and its associated signaling proteins. Journal of Visualized Experiments. (61), (2012).
- Axmann, M., Schutz, G. J., Huppa, J. B. Single Molecule Fluorescence Microscopy on Planar Supported Bilayers. Journal of Visualized Experiments. (105), e53158(2015).
- Mariati,, Koh, E. Y., Yeo, J. H., Ho, S. C., Yang, Y. Toward stable gene expression in CHO cells. Bioengineered. 5 (5), 340-345 (2014).
- Matsushita, S., Tanaka, Y., Matsuoka, T., Nakashima, T. Clonal expansion of freshly isolated CD4T cells by randomized peptides and identification of peptide ligands using combinatorial peptide libraries. European Journal of Immunology. 31 (8), 2395-2402 (2001).
- Heng, B. C., Cowan, C. M., Basu, S. Comparison of enzymatic and non-enzymatic means of dissociating adherent monolayers of mesenchymal stem cells. Biological Procedures Online. 11, 161-169 (2009).
- Smith, K., et al. Sensory adaptation in naive peripheral CD4 T cells. The Journal of Experimental Medicine. 194 (9), 1253-1261 (2001).
- Wei, M. L., Cresswell, P. HLA-A2 molecules in an antigen-processing mutant cell contain signal sequence-derived peptides. Nature. 356 (6368), 443-446 (1992).
- Vardhana, S., Dustin, M. Supported Planar Bilayers for the Formation of Study of Immunological Synapses and Kinapse. Journal of Visualized Experiments. (19), (2008).
- Bakker, A. H., et al. Conditional MHC class I ligands and peptide exchange technology for the human MHC gene products HLA-A1, -A3, -A11, and -B7. Proceedings of the National Academy of Sciences of the United States of America. 105 (10), 3825-3830 (2008).
- Rhode, P. R., et al. Single-chain MHC class II molecules induce T cell activation and apoptosis. Journal of Immunology. 157 (11), Baltimore, Md. 4885-4891 (1996).
- Crew, M. D., Cannon, M. J., Phanavanh, B., Garcia-Borges, C. N. An HLA-E single chain trimer inhibits human NK cell reactivity towards porcine cells. Molecular Immunology. 42 (10), 1205-1214 (2005).
- Van Kaer, L., Wu, L., Joyce, S. Mechanisms and Consequences of Antigen Presentation by CD1. Trends in Immunology. 37 (11), 738-754 (2016).
- Im, J. S., et al. Direct measurement of antigen binding properties of CD1 proteins using fluorescent lipid probes. The Journal of Biological Chemistry. 279 (1), 299-310 (2004).
Herprints en machtigingen
