Hier gepresenteerd is een protocol om de CRISPR-Cas9 systeem te gebruiken voor het verminderen van de productie van een eiwit in de volwassen honingbij hersenen om antilichaam specificiteit te testen.
Methodenartikel
Anti-RDL en Anti-mGlutR1 Receptoren Antibody Testen in Honingbij Hersensecties met behulp van CRISPR-Cas9
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Cluster Regelmatig interspaced Short Palindrmic Repeats (CRISPR)/CRISPR-geassocieerd eiwit 9 (Cas9) is een genbewerkingstechniek die veel wordt gebruikt in studies van genfunctie. We gebruiken deze methode in deze studie om te controleren op de specificiteit van antilichamen ontwikkeld tegen het insect GABAA receptor subunit Resistance to Dieldrin (RDL) en een metabotropic glutamaat receptor mGlutR1 (mGluRA). De antilichamen werden gegenereerd bij konijnen tegen de geconjugeerde peptiden die specifiek zijn voor fruitvliegjes(Drosophila melanogaster) en bij honingbijen (Apis mellifera). We gebruikten deze antilichamen in honingbijhersensecties om de verdeling van de receptoren in honingbijhersenen te bestuderen. De antilichamen werden tegen het peptide gezuiverd en getest met immunoblotting en de klassieke methode van preadsorptie met peptideconjugaten om aan te tonen dat de antilichamen specifiek zijn voor de overeenkomstige peptide conjugaten waartegen ze werden opgevoed. Hier ontwikkelden we de CRISPR-Cas9 techniek om te testen op de vermindering van eiwitdoelen in de hersenen 48 uur na CRISPR-Cas9 injectie met gids RNAs ontworpen voor de overeenkomstige receptor. De CRISPR-Cas9 methode kan ook worden gebruikt in gedragsanalyses bij de volwassen bijen wanneer een of meerdere genen moeten worden gewijzigd.
Inleiding
Het recent ontdekte CRISPR/Cas9 systeem is een krachtig instrument dat is gebruikt om genomic DNA te veranderen in verschillende modelsystemen en organismen. Het heeft het biomedische onderzoek en belangrijke technologische doorbraken versneld door genoommodificatie efficiënter en robuuster te maken dan eerdere methoden1. Inheems in S. pyogenes bacteriën, het systeem is gebaseerd op een Cas9 endonuclease, waarvan de activiteit leidt tot dubbel-gestrande pauzes (DSBs) in DNA, en een gids RNA (gRNA) dat de Cas9 eiwit stuurt naar een specifieke, sequentie-afhankelijke locatie2. Dubbelgestrande onderbrekingen gegenereerd door CRISPR/Cas9 kunnen worden gerepareerd via niet-homologe eindtoetreding (NHEJ), een foutgevoelig proces dat kan leiden tot frameverschuivingen of directe reparatie van homologie wanneer een donorsjabloon aanwezig is. Het gRNA zelf bestaat uit een doelspecifiek CRISPR RNA (crRNA) en een universeel transactiverend crRNA (tracrRNA) dat chemisch kan worden gesynthetiseerd en geleverd met gezuiverde Cas9 nuclease als ribonucleoprotein complex (RNP)2,3. Fluorescerende etikettering van de gRNA of Cas9 nuclease kan de detectie en intracellulaire visualisatie van moleculaire componenten mogelijk maken via fluorescerende microscopie4.
In ons huidige werk maken we gebruik van het CRISPR-Cas9 systeem om het eiwitgehalte in volwassen honingbijhersenen te verminderen. We bestudeerden de metabotropische glutamaatreceptor (mGluR) en anti-mGlutR1 receptorantilichamen en de GABAA receptor subunit RDL en anti-RDL antilichamen. We ontwikkelden een eenvoudige methode om de hoeveelheid eiwit in de hersenen van de volwassen honingbij te verminderen en gebruikten het om extra tests van de antilichamen ontwikkeld tegen de overeenkomstige eiwitten te stimuleren. Door de fluorescentie van CRISPR-Cas9 te monitoren, konden we de gebieden en cellen die betrokken zijn bij de reductie van het eiwit inschatten.
Met behulp van deze methode hebben we ook de anti-mGlutR1-antilichamen gekarakteriseerd die bij konijnen werden gemaakt tegen het geconjugeerde peptide. Het honingbijgenoom codeert een sterk geconserveerde AmGluRA (mGlutR1 volgens NCBI-nomenclatuur) metabotropische glutamaatreceptor5. Het honeybee mGlutR1-gen heeft vier voorspelde splicevarianten volgens de NCBI-database. Er is gemeld dat het wordt uitgedrukt in het centrale zenuwstelsel (CNS) van zowel de pop- als de volwassen bijenstadia en het is betrokken bij langdurige geheugenvorming5. Antilichamen ontwikkeld tegen mGlutR1 kan een essentieel instrument voor het bestuderen van de glutamatergic systeem in het leer-en geheugenproces bij honingbijen.
In onze studies hebben we ook anti-RDL-antilichamen gekarakteriseerd die werden ontwikkeld bij konijnen die zijn geïmmuniseerd met geconjugeerde peptiden uit de Apis mellifera RDL receptor subunit. Het honeybee Rdl-gen, AmRdl (XM_006565102.3, NCBI-database), heeft 14 voorspelde splicevarianten. Een gedeeltelijk gekloond fragment is gemeld in de NCBI-database AF094822.1. De RDL-receptorfunctie en de fysiologie ervan worden goed bestudeerd bij insecten6,7,8, inclusief honingbijen9,10,11. Antilichamen ontwikkeld tegen anti-RDL kan een essentieel instrument voor het bestuderen van de GABAergic systeem in het leer-en geheugenproces bij honingbijen.
Een eerdere studie over de rol van octopamine en tyramine receptoren gebruikt RNAi geïnjecteerd in de hersenen met een latere test van de hoeveelheid eiwit door westerse vlek12,13. RnAi heeft echter een aantal belangrijke beperkingen. Er is slechts een korte tijd venster na RNAi injectie waarbinnen een vermindering van eiwit optreedt13. CRISPR-Cas9 werd zeer recent gebruikt in honingbijembryo's om genen in het hele dier te verwijderen of te wijzigen14,15,16. We rapporteerden het gebruik van CRISPR-Cas9 om de hoeveelheid eiwit in de volwassen honingbij te verminderen. We ontwikkelden deze aanpak voor honingbijen vanwege de mogelijkheid om het te koppelen aan gedragsstudies van leren en geheugen onder gecontroleerde laboratoriumomstandigheden17.
In het huidige werk ontwikkelden we antilichamen tegen twee receptoren en testten ze op de volwassen honingbijhersensecties nadat het eiwit werd verminderd door CRISPR-Cas9-injectie. Tegelijkertijd hebben we een experimenteel ontwerp opgesteld dat het gebruik van de methode voor gedragsexperimenten mogelijk maakt.
Protocol
Het hier beschreven protocol volgt de richtlijnen voor de dierenverzorging van de Arizona State University.
1. Totale eiwitisolatie van hersenen van apis mellifera
LET OP: Gebruik Apis mellifera New World Carniolan foragers van onbekende leeftijd voor dit experiment.
- Plaats een aluminium mesh scherm over de ingang van de korf om vervalbijen te vangen17. Leg elke bij vast in een flacon met een klein gaatje in elke dop. Plaats de flesjes met de bijen in ijs om hun lichaamstemperatuur te verlagen en te immobiliseren. Laat de bijen niet langer dan 3 min in ijs.
- Beveilig de geïmmobiliseerde bijen in eerder bereide metaalhouders. Zorg ervoor dat de metalen houders zo zijn gebouwd dat de bij kan worden vastgezet met kleine stukjes duct tape, maar nog steeds zijn rugthorax, vleugels en hoofd kan bloot.
LET OP: Zorg ervoor dat de bijen volledig geïmmobiliseerd zijn voordat ze in de houders proberen te plaatsen. - Voer de bijen met een 1 M sacharose oplossing met behulp van een 5 mL spuit totdat ze niet langer honger. Plaats de beveiligde bijen in een doos met een natte papieren handdoek om een vochtige omgeving te garanderen.
- Ontleed de hersenen van de bij snel door het hoofd af te snijden met een Barraquer Iris-schaar (zie Tafel van Materialen)en gebruik de schaar om het hoofd van de voorkant te openen.
- Snijd de hersenen af van de hoofdcapsule, neem de hersenen met #5 tangen en plaats deze in 100 μL koude (4-8 °C) lysisbuffer. De lysisbuffer bestaat uit 120 mM Tris-HCl, 2% natriumdodecylsulfaat (SDS), 5% glycerol, 0,2 mM dithiothreitol, 1% Triton X-100 en 1-5 μg/mL van de proteaseremmers PMSF (fenylmethylsulphonylfluoride), aprotineine, benzamidine (pH 6,8) bij 4 °C. Homogeniseren van de hersenen in de lysis oplossing door het draaien in een stamper voor ongeveer 2 min.
- Centrifugeer het monster op 12.000 x g gedurende 20 min. Aanzuigen 90 μL van de supernatant en gooi de pellet weg.
- Neem 1 μL van het supernatant om het totale eiwit te kwantificeren met behulp van een fluorimeter. De geschatte concentratie van het totale eiwit lag tussen 2-3 mg/mL per bij. Neem 10 μL van de supernatant en voeg 10 μL van de lysisbuffer en 10 μL van een 6x Laemmli buffer18. Draai kort en kook 3 min en koel af op ijs. Draai 1 min bij 10.000 x g om al het vuil te verwijderen. Een tiende van een bijenbrein bevat ongeveer 25 ng van totaal eiwit.
2. Western Blotting19
- Maak 30 mL 10% loopgel met 12,15 mL ultrazuiver gedestilleerd water, 7,5 mL van 1,5 m Tris-HCl (pH 8,8), 0,3 mL van 10% SDS, 10 mL van 30% acrylamide-bis acrylamideoplossing, 0,15 mL van 10% ammoniumpersulfaat (APS) en 20 μL tetramethylethylethyliamine (TEMED ).
- Giet de gel tussen twee glazen platen gescheiden door afstandhouders.
- Maak een 20 mL stapelgel met 12,1 mL ultrazuiver gedestilleerd water, 5,0 mL van 0,5 M Tris-HCl (pH 6,8), 0,2 mL van 10% SDS, 2,6 mL acryl-bis acrylamide, 0,1 mL van 10% APS en 20 μL TEMED.
- Wanneer de lopende gel stolt giet een stapelen gel. Voeg voorzichtig de plastic separator toe om de laadbaan te werpen, waardoor bellen worden vermeden. Wacht 15-30 min, totdat de gel is gestold.
- Begin met het laden van de gel met behulp van 5 μL eiwitnormen. Laad 20 μL van het lysaatmengsel van stap 1,8 per rijstrook, wat overeenkomt met ~1/15 van een bijenbrein of ~16 ng van totaal eiwit per rijstrook. Voer de monsters voor 3,5-4 uur totaal op 16 mA in de stapelen gel en 32 mA in de lopende gel. Stop wanneer de kleurstof de gel verlaat.
- Breng de eiwitten over op nitrocellulosemembranen in transferbuffer (25 mM Tris-HCl, 192 mM glycine, 15% methanol) bij 0,45 mA gedurende 1 h 30 min bij 4 °C.
- Voeg ponceau S-kleuroplossing toe (voeg 0,1 g Ponceau S en 5 mL azijnzuur toe aan water aan water tot een eindvolume van 100 mL). Bewaar bij 4 °C gedurende 1 min en spoel snel af met gedestilleerd water.
- Label elke rijstrook met een balpen, snijd het membraan met twee rijstroken met hersenen homogenaat en een rijstrook met eiwit marker en plaats elk in een westerse vlek uitbroeden doos. Was 3x voor 5 min elk in fosfaat gebufferde zoutoplossing (PBS) met 0,1% Tween 20 (PBS-Tw).
- Blokkeer het membraan met 10% NGS (1 mL normaal geitenserum tot 10 mL PBS-Tw) in een westerse blot incubatiedoos voor 1 uur. Maak een anti-mGlutR1 verdunning (5 μL antilichaam in 10 mL van 10% NGS). Maak anti-RDL1 en anti-RDL2 verdunningen (5 μL antilichaam in 10 mL van 10% NGS per stuk). Vervang de blokkeringsoplossing in elke doos door de verdunde antilichamen en laat 's nachts (16-24 uur) bij 4 °C.
- Was het membraan 3x voor 5 min elk in PBS-Tw. Incubeer het membraan met anti-konijn IgG HRP-geconjugeerde secundaire antilichamen op 1:10.000 in 10% NGS PBS-Tw voor 2 uur bij kamertemperatuur (RT). Was membranen 3x in PBS-Tw, dan 1x in PBS.
- Detecteer de banden met behulp van westerse chemiluminescentHRP substraat. Meng twee substraten 1:1 (v/v) bij RT, doe alle membranen in dezelfde doos en bedek ze met de substraatmix voor 2 min (in een donkere kamer met rood licht) bij RT. Ga over tot eiwitdetectie met behulp van een autoradiografiefilm met meerdere belichtingstijden. Meestal wordt één antilichaam getest op één membraan dat dezelfde verdunning van de hersenen bevat op twee of drie rijstroken en één rijstrook met de gewichtsmarker.
3. Immunocytochemische procedures
- Om honingbijhersenen te ontleden voor immunocytochemie, immobiliseer de honingbijen in ijs voor 30 s. Nadat de bijen zijn geïmmobiliseerd, onthoofd de bij met een schaar en plaats het hoofd in een oplossing van 4% paraformaldehyde in PBS. Werk onder de rookkap.
LET OP: Het lichaam moet zorgvuldig worden verwijderd omdat de buik kan nog steken na onthoofding. - Verwijder voorzichtig maar snel de antennes, samengestelde ogen, en snijd rondom het bovenste exoskelet met Barraquer Iris schaar. Laat de koppen 10 minuten in de fixatieve oplossing zitten. Verwijder de rest van het exoskelet van het hoofd en snijd alle resterende luchtpijp.
- Plaats elk brein in een microcentrifugebuis van 1,5 mL met ten minste 1 mL van 4% paraformaldehyde-oplossing en laat 's nachts bij 4-8 °C.
- Maak een 7,6% agarose oplossing door het mengen van 3,8 g agarose en 50 mL gedestilleerd water in een Erlenmeyer kolf. Magnetron de oplossing tot de agarose vloeibaar maakt.
OPMERKING: Een klein stukje tissuepapier kan in de opening van de kolf worden geplaatst om te voorkomen dat de agaroseoplossing tijdens het verwarmen overloopt. - Plaats de vaste honingbijhersenen (3-4 hersenen) in een petrischaal van 35 mm en verwijder de overtollige fixatieve met tissuepapier. Giet de vloeibare agarose oplossing over de hersenen. Oriënteer de hersenen in de agarose, zodat de antenne kwabben naar boven worden gericht. Laat de agarose afkoelen en stollen.
- Nadat de agarose is gestold, uitgesneden blokken van agarose elk met een hersenen.
- Voor vibratoom sectie, bereid een 24 goed plaat met elk goed met een mand met een hydrofobe gaas aan de onderkant. Vul elke put met 600 μL PBS.
- Snijd elk blok in 70 μm dwarsdoorsnedes met behulp van de vibratome machine en plaats de secties in de mand met PBS.
OPMERKING: Zorg ervoor dat secties uit dezelfde hersenen in hetzelfde mandje worden geplaatst. - Was de hersendelen 6x voor 10 min elk met PBS-TX om ervoor te zorgen dat er geen fixatieve blijft in de secties. Plaats de multiwell plaat op een orbitale shaker en was de hersenen bij 210 rpm. Zorg ervoor dat u voor elke wasbeurt de PBS-TX-oplossing vervangt door een verse PBS-TX-oplossing. Blok met 1% normaal ezelserum tijdens de laatste wasbeurt.
- Om het anti-mGlutR1 primaire antilichaam te testen, bereid je een 1:112 verdunning van anti-mGlutR1 antilichamen voor door 9 mL PBS-TX toe te voegen aan 80 μL anti-mGlutR1 antilichamen in een centrifugebuis van 15 mL. Vortex de buis kort om grondig te mengen. De werkende verdunning van antilichamen werd bepaald in voorbereidende experimenten.
- Om het primaire antilichaam anti-RDL te testen, bereidt u een verdunning van 1:100 anti-RDL-antilichamen voor door 30 μL anti-RDL peptide 1, 30 μL anti-RDL peptide 2 en 6 mL PBS-TX toe te voegen in een centrifugebuis van 15 mL. Vortex de buis kort om grondig te mengen. De werkende verdunning van antilichamen werd bepaald in voorbereidende experimenten.
- Voeg 800 μL antilichaamoplossing toe aan elke put in de plaat. Bedek de multiwell plaat en wikkel deze in aluminiumfolie om degradatie van blootstelling aan licht te voorkomen. Plaats de plaat gewikkeld in aluminiumfolie op een orbitale shaker en schud bij 210 rpm voor 2 uur. Laat dan 's nachts bij RT zonder te schudden.
- Nadat de hersendelen 's nachts zijn achtergelaten, was met PBS-TX gedurende 10 min. Herhaal de wasstap 6x.
- Bereid de secundaire antilichamen (antikonijn van ezel) door het maken van een 1:225 verdunning van secundaire antilichamen door het toevoegen van 40 μL secundaire antilichamen aan 9 mL PBS-TX.
- Voeg 800 μL van de secundaire verdunning van het lichaam toe aan elke put. Bedek de plaat en wikkel het in aluminiumfolie. Plaats de plaat gewikkeld in aluminiumfolie op de orbitale shaker en schud bij 210 rpm voor 2 uur. Laat het dan 's nachts bij RT.
- Was de hersendelen 3x voor 10 min elk met PBS-TX en 3x met regelmatige PBS-oplossing.
- Voor het inbedden van de secties in de dia's, bereiden de montage media / glycerol inbedding oplossing gewijzigd van Rodriguez et al.20. Voeg 5 g van het montagemedium toe in 20 mL PBS en roer gedurende 16 uur met een magnetische roerstaaf. Voeg 10 mL glycerol toe en roer nog 16 uur met een magnetische roerstaaf. Centrifugeer gedurende 15 min bij 4.000 x g,neem de vloeibare homogene supernatant en aliquot in 1 mL buizen. Houd op -20 °C
- Sluit de secties in op de dia's met een druppel van het montagemedium dat in stap 3.17 is voorbereid, zodat elke dia secties uit één brein bevat.
- Preadsorptiecontrole van immunovlekken met geconjugeerde peptiden
- Voor anti-RDL en geconjugeerde peptiden, de werkende verdunning van anti-RDL-antilichamen met de bijbehorende peptide conjugaat 's nachts bij RT op shaker: conditie 1) 500 μg peptide geconjugeerd met Keyhole Limpet Hemocyanin (KLH) via glutaraldehyde; voorwaarde 2) zonder vervoeging.
- Centrifugeer elk mengsel gedurende 10 min bij 10.000 x g en verzamel de supernatant uit beide omstandigheden (stap 3.19.1).
- Incubeer de seriële secties van honingbijhersenen met elke supernatant en proces met de secundaire hierboven beschreven antilichamen. Seriële secties zijn secties die elkaar volgen tijdens de vibratome sectioning procedures, dus hetzelfde deel van de hersenen zal worden blootgesteld aan positieve en negatieve controles.
- Voor anti-mGlutR1 en geconjugeerd peptide, uitbroed de werkende verdunning van anti-mGlutR1 antilichamen bij RT met de KLH geconjugeerd peptide met de 10-4 M peptide (voorwaarde 1) en zonder vervoeging (voorwaarde 2).
- Centrifugeer elk mengsel gedurende 10 min bij 10.000 x g en verzamel de supernatant van beide bedieningselementen.
- Incubeer de seriële delen van de honingbijhersenen met supernatant uit beide omstandigheden en proces met de secundaire antilichamen (stappen 3.14-3.15).
- Secties van beide voorwaarden op de dia insluiten met inbeddingsmedia (stap 3.17).
4. Test van RDL en mGlutR1 Eiwitexpressie door Immunocytochemie (sectie 3) in honingbijenhersenen na injectie van het overeenkomstige CRISPR-Cas9-systeem
- Ontwerp de gidsen met behulp van een online CRISPR-Cas9 ontwerptool21 met behulp van de genomische DNA-sequenties van AmRdl (XM_006565102.3) en sequenties van mGlutR1 (XM_006566244.3) (Tabel 1). Bestel als Cas9 crRNA en Cas-9 tracrRNA met de fluorescerende kleurstof ATTO550 aan het einde van 5' einde. Bestel de Cas9 Nuclease V3 (Zie Tabel met materialen).
- Bereid de componenten voor op het CRISPR-Cas 9-systeem door een 100 μM voorraad van elke gids crRNA en tracrRNA te maken met nuclease-vrij water. Aliquot en opslaan bij -20 °C. Bereid de werkconcentratie van cas-9-oplossing voor door 2,5 μL Cas 9 nuclease V3 (10 mg/mL) toe te voegen aan 47,5 μL nucleotidevrije buffer om een eindconcentratie van 0,5 μg/μL te verkrijgen. Maak gRNA en RNP voor injectie.
- Bereid gRNA complexe vorming voor elke gids RNA afzonderlijk (guideRNA:tracrRNAATTO550)
- Label een reageerbuis met de naam van het gRNA, voeg 92 μL nucleotidevrije buffer, 4 μL van 100 μM CRISPR-Cas9 tracrRNA- 5'ATTO550 en 4 μL van de gids crRNA-oplossing toe. Meng voorzichtig en draai.
OPMERKING: Voorbeeld van etikettering van gRNA-buizen voor RDL: GRDL1, GRDL2, GRDL3 (overeenkomend met RDL-gidsen RNA in tabel 1). Voorbeeld van etikettering van gRNA-buizen voor mGlutR1: GMGL1, GMGL2, GMGL3 (tabel 1). - Verwarm de oplossing gedurende 5 min tot 95 °C om gRNA te creëren. Koel het mengsel bij RT gedurende 10 min.
- Label een reageerbuis met de naam van het gRNA, voeg 92 μL nucleotidevrije buffer, 4 μL van 100 μM CRISPR-Cas9 tracrRNA- 5'ATTO550 en 4 μL van de gids crRNA-oplossing toe. Meng voorzichtig en draai.
- Bereid RNP complexe formatie (gRNA: S.p Cas9Nuclease), levering mengsels, en controle.
- Label een reageerbuis met de naam van de RNP, voeg 6 μL gRNA-oplossing en 6 μL van 0,5 μg/μL S.p Cas9 Nuclease V3 toe. Meng voorzichtig en incubeer de oplossingen bij 37 °C gedurende 10 minuten voor injectie.
OPMERKING: Voorbeeld van RNP-buislabels: RRDL1, RRDL2, RRDL3. - Maak een RNPRDLmix. Voeg 4 μL van elke RNP van RDL toe om het uiteindelijke mengsel voor te bereiden dat voor injecties wordt gebruikt. RNP/RDL mix = 4 μL RRDL1 + 4 μL RRDL + 4 μL RRDL3.
- Maak een RNPmGlutR1mix. Meng 4 μL van elke RNP van mGlutR1 samen om het uiteindelijke mengsel voor te bereiden dat wordt gebruikt voor injecties (RNPmGlutR1mix) = 4 μL RMG1 + 4 μL RMG2 + 4 μL RMG3.
OPMERKING: Voorbeeld van RNP buislabels: RMG1, RMG2, RMG3. - Maak een control noguideRNA-oplossing door 4 μL tracrRNA, 92 μL buffer en 4 μL water in plaats van guideRNA te mengen (zie punt 4.3). Meng 6 μL van deze noguideRNA-oplossing en 6 μL van 0,5 μg/μL Cas9 Nuclease V3 (stap 4.4.1) om de besturingsinjectieoplossing te produceren.
- Label een reageerbuis met de naam van de RNP, voeg 6 μL gRNA-oplossing en 6 μL van 0,5 μg/μL S.p Cas9 Nuclease V3 toe. Meng voorzichtig en incubeer de oplossingen bij 37 °C gedurende 10 minuten voor injectie.
5. Injectieprocedure
- Immobiliseer elke bij zoals beschreven in stap 1.3 en voer ze als in stap 1.4. Bereid vervolgens twee sets van twee houten kisten voor om de bijen na injectie los te laten: een witte doos (experimentele toestand) en een zwarte doos (controle). Elke doos moet een kleine kam en een voedende petrischaal bevatten. Een kant van elke doos is gemaakt van glas om observatie mogelijk te maken.
- Maak het voeden van petrischaaltjes. Neem de deksel van een 35 mm petrischaal, plaats was binnen in het oppervlak en plaats het onderste deel van de Petri schaal op de was. Zet de plaat in de doos.
- Injecteer met behulp van een 5 mL spuit de 1M sacharoseoplossing tussen de afdekking en het onderste deel van de schotel. Bijen kunnen snel hun slurf tussen de twee platen en zal droog blijven voor een 48 uur incubatietijd. Doe één gerecht in elke doos.
- Om het micro-injectiesysteem voor te bereiden, vul de haarvaten met minerale olie zonder luchtbellen. Plaats de haarvaten in de injectorhouder van het microinjectiesysteem. Om de capillaire te laden met de gewenste injectieoplossing, plaatst u een hydrofobe folie op een vlakke ondergrond en pipetert u de oplossing erop. Injecteer de olie uit de haarvaten en vervang het mengsel door de bijbehorende RNP-mix.
- Injecteer met behulp van het microinjectiesysteem 345 nL RNP-mengseloplossing rechtstreeks in de mediane ocelli van elke bij.
- Injecteer voor RDL-CRISPR-Cas9 injectie acht bijen met de RNPRDLmix bereid zoals beschreven in stap 4.4.2. Voer ze 1M sacharose na de injectie. Laat ze in de witte (experimentele) doos met de kleine kam en voeding Petrischotel voor 48 uur. Gebruik nog eens acht bijen als controles zonder injecties, voeden ze, en laat ze in de zwarte (controle) doos.
- Injecteer voor mGlutR1 CRISPR-Cas9 negen bijen met de RNPmGlutR1mix, zoals beschreven in stap 4.4.3. Voor controle injecteren acht bijen met RNA mengsel zonder gids (RNAmix_noguide) bereid zoals beschreven in stap 4.4.4. Voer ze 1M sacharose na de injectie. Laat bijen van hun houders los in de witte doos (experimentele toestand) of de zwarte doos (controle) die is opgesteld zoals beschreven in punt 5.1.
- Plaats de dozen in een polystyreencontainer met nat papier erin voor vocht. Laat bijen 48 uur en observeer 2x per dag om ervoor te zorgen dat ze voldoende voedsel en een goede luchtvochtigheid hebben.
- Ontleed de hersenen van elke bij na 48 uur (stap 3.1) en proces voor immunocytochemie zoals beschreven in sectie 3. Gebruik voor anti-mGlutR1 immunostainings stap 3.11 en voor anti-RDL immunovlekken stap 3.12.
- Voer confocale beeldvorming uit om het niveau van fluorescentie in de immuungekleurde hersensecties te evalueren.
- Om de vermindering van eiwit in immunolabeled hersenen te evalueren, gebruik confocale beeldverzameling op hetzelfde niveau van winst voor zowel controle als geïnjecteerde hersenen.
6. qPCR-gebaseerde Drop-off Assay om de Modified Genomic RDL DNA 48 H te evalueren na CRISPR Cas9 RNPRDLmix Injectie
- Ontwerp de primers, control probe en drop-off sonde om de hoeveelheid DNA te evalueren die is gewijzigd door CRISPR-Cas9-injectie. Elke primer is zo ontworpen dat hij ten minste één CRISPR-Cas 9-geleider flankeert en de amplicongrootte 132 bp is. De gebruikte primers en sondes worden hieronder gegeven:
RDL1_For: CTCGGAGTGACCACCGT
RDL1_Rev: CAACGAGGCGAACACCAT
RDL1_control_probe: /5HEX/CGA+C+G+TTT+A+C+CT/3IAbkfq/
RDL1_Drop-off_probe: /56-FAM/CCTA+C+G+T+CA+A+GT/3IAbkfq/- Zorg ervoor dat de primers overeenkomen met unieke sequenties die specifiek zijn voor het gebied. Zorg ervoor dat de drop-off sonde is ontworpen voor het gebied dat overlapt met RDL-CRISPR-Cas9-gids.
- Om te testen of het gDNA in het geleidegebied is gewijzigd, injecteert u 12 bijen in de ocelli met het RNP_RDL-mengsel beschreven in stap 5.3.1 en gebruikt u acht niet-geïnjecteerde bijen als controles.
- Ontleed de bijenhersenen zonder de optische lobben 48 uur na de injecties en haal het gDNA van elke geïnjecteerde en controlebijhersenen (zonder optische lobben) uit met behulp van de kit volgens het protocol van de fabrikant (zie Tabel met materialen).
- Evalueer de hoeveelheid, kwaliteit en zuiverheid van het geëxtraheerde gDNA met behulp van een spectrofotometer.
- Kwantificeer de relatieve expressie van gemodificeerde gDNA van AmRDL met behulp van het qPCR-gebaseerde drop-off protocol en real-time PCR-cycler.
- Schors de oligos tot 100 μM, verdun de primers tot 10 μM en de sondes tot 5 μM.
- Stel de PCR-reactie in de 96-putplaat in zoals hier wordt weergegeven voor één monster van gDNA (3 herhalingen): 10 μL mastermix (zie Tabel met materialen), 1 μL voorwaartse primer, 1 μL omgekeerde primer, 1 μL controlesonde, 1 μL drop-off sonde, 2 μL gDNA (50 ng), 4 μL nuclease-vrij water om het uiteindelijke reactievolume op 20 μL te brengen.
OPMERKING: Controles zijn de oplossing in plaats van de monsters en water in plaats van de sondes. - Stel het fietsprogramma als volgt in voor een real-time PCR-fietser: 95 °C gedurende 3 min gevolgd door 40 cycli van 95 °C voor 15 s, 60 °C gedurende 1 min.
- Evalueer de relatieve genmodificatie met behulp van de 2-ΔΔCt-methode,
 En

7. Relatieve kwantificering van RDL RNA 48 H na RNPRDLmix Injection
- Om te testen of het RDL mRNA wordt verlaagd, injecteert u 20 bijen in de ocelli met RNP_RDL meng zoals beschreven in stap 5.3.1 en gebruikt u 12 niet-geïnjecteerde bijen als de controles. Ontleed de bijenhersenen (zonder optische kwabben) 48 uur na de injecties, haal het totale mRNA uit elke geïnjecteerde bij en scheid ze met behulp van het protocol van de fabrikant (zie Tabel met materialen).
- Verwijder alle DNA-resten die nog in het monster zitten met behulp van een DNA-vrije kit (zie Materiaaltabel).
- Evalueer de kwaliteit en de zuiverheid van het geëxtraheerde RNA met behulp van een spectrofotometer.
- Kwantificeer de expressie van AmRDL met behulp van een commercieel beschikbare fluorescerende groene RT-PCR kit(Table of Materials)op een real-time PCR-cycler met behulp van het protocol van de fabrikant voor een 384 goed plaat.
OPMERKING: In dit experiment werden eerder gepubliceerde primers gebruikt. Voor AmRDL (AmRDL_F GGTCGATGGGCTACTACCTG; AmRDL_R TCGATCGACTTGACGTAGGA)22 en actinprimers als referentiegen [AmActin_F TGCCAACACTGTCCTTTCTG; AmActin_R GAATTGACCCACCAATCCA]23. De relatieve genexpressie werd berekend met behulp van de 2-ΔΔCt-methode (stap 6.6).
8. qPCR Gebaseerde drop-off Assay om de Gewijzigde Genomic DNA 48 H evalueren na RNPmGlutR1mix Injectie
- Ontwerp de primers, controle en drop-off sondes om de hoeveelheid DNA te evalueren die is gewijzigd door CRISPR-Cas9-injectie. Ontwerp de primers zodat ze ten minste één CRISPR-Cas 9-gids flankeren en de amplicon grootte is 96 bp.
mGlutR1_For: GGTGAAACGAACGACGGA
AmGlurR1_Rev: GGAGAGAGGGAGCGAGAA
AmGlurR1_control_probe: /5HEX/CGAGG+G+AAA+CGA+GT/3IAbkfq/
AmGlurR1_Drop-off_probe: /56-FAM/CGA+C+A+C+CG+TC/3IABkFQ/
OPMERKING: Zorg ervoor dat primers overeenkomen met unieke sequenties die specifiek zijn voor het gebied dat had moeten worden gewijzigd. De drop-off sonde is ontworpen voor het gebied dat overlapte met de CRISPR-Cas9-gids. - Om te testen of het gDNA in het geleidegebied is gewijzigd, injecteert u 12 bijen in de ocelli met RNP_ Glutr1-mix zoals beschreven in stap 5.3.1 en gebruikt u acht niet-geïnjecteerde bijen als controles.
- Ontleed de bijenhersenen (zonder optische kwabben) 48 uur na de injecties en haal het gDNA uit elke geïnjecteerde en controlebijenhersenen (zonder optische kwabben) met behulp van het protocol van de fabrikant (zie Tabel met materialen).
- Evalueer de hoeveelheid, kwaliteit en zuiverheid van het geëxtraheerde gDNA met behulp van een spectrofotometer.
- Kwantificeren van de relatieve wijziging van gDNA AmGlutR1 met behulp van qPCR drop-off protocol en voor real-time PCR cycler zoals beschreven in stap 6.5.
- Evalueer de relatieve genmodificatie met behulp van de 2-ΔΔCt-methode,
 En

9. Kwantificering van mGlutR1 RNA 48 h Na RNPmGlutR1mix Injectie
- Om te testen of er een vermindering van het mGlutR1 RNA mRNA is, injecteert u zes bijen in de ocelli met het RNP_RDL mix zoals beschreven in stap 5.3.2 en gebruik zes niet-geïnjecteerde bijen als controles. Ontleed de bijenhersenen (zonder optische kwabben) 48 uur na de injecties, haal het totale mRNA uit elke geïnjecteerde bij en scheid met behulp van het protocol van de fabrikant voor RNA-isolatie (zie Tabel met materialen).
- Verwijder alle DNA-resten die nog in het monster zitten met behulp van een DNA-vrije kit (zie Materiaaltabel).
- Evalueer de kwaliteit en de zuiverheid van het geëxtraheerde RNA met behulp van een spectrofotometer.
- Kwantificeer de expressie van mGlutR1 met behulp van een SYBR Green RT-PCR kit (zie Tabel met materialen)op een real-time PCR-cycler met het protocol dat is voorzien voor de 384 well kit. Gebruik de volgende primers voor mGlutR1 (mGlut_F CCTCCTCAGTGTCTCCTTCATA; mGlut_R TGCCGTTGTGTTCCGATTT) en actinprimers als referentiegen [AmActin_F TGCCAACACTGTCCTTCTG; AmActin_R GAATTGACCCACCAATCCA]. Bereken de relatieve genexpressie met behulp van de 2-ΔΔCt-methode (stap 8.6).
Resultaten
Anti-RDL antilichaamtests
De antilichamen werden geproduceerd tegen de RDL peptide conjugaten zoals weergegeven in figuur 1A. De eerste stap in het karakteriseren van de anti-RDL-antilichamen is het homogenaat van het eiwit dat uit de bijenhersenen wordt gewonnen met behulp van een westerse vlek met anti-RDL-antilichamen en een hrp-gelabelde geitantikonijnigig antilichaam(figuur 1A, insert). Beide anti-RDL antilichamen herkenden de band op ~ 50-60 kD (pijl), wat overeenkomt met het geschatte gewicht van de RDL subunit isoform eiwitten. Om aan te tonen dat anti-RDL-antilichamen het peptide in de hersenschijf herkenden, gebruikten we een preadsorptiecontrole (figuur 1B,C). Wanneer antilichamen werden voorbebroed met geconjugeerde peptiden, was de kleuring op de sectie afwezig. Hieruit bleek dat de anti-RDL-antilichamen het geconjugeerde peptide erkenden waartegen ze werden opgevoed. Om aan te tonen dat de anti-RDL-antilichamen het eiwit in het vaste hersenweefsel herkennen, gebruikten we CRISPR-Cas9 om het RDL-gen dat het RDL-eiwit in de cellen produceert uit te schakelen. Figuur 1D1-3, toont controle frontale bijen hersensecties die werden gelabeld met anti-RDL antilichamen. Deze bij werd niet geïnjecteerd met RDL-CRISPR-Cas9 RNP. In figuur 1D1labelt anti-RDL neuropils in het frontale gedeelte van de bijenhersenen. Dezelfde frontale sectie in figuur 1D2 toont de afwezigheid van fluorescentie van ATTO550, omdat het RDL-CRISPR-Cas9-complex niet werd geïnjecteerd.
Figuur 1E1-E3 toont een hersensectie van een bij geïnjecteerd met RDL-CRISPR-Cas 9 en vervolgens verwerkt met dezelfde hoeveelheid antilichamen als de controlehersenen in figuur 1D1-D3. De anti-RDL kleuring werd aanzienlijk verminderd in de hele hersenen 48 uur na de injectie, en de verdeling van de ATTO550 kleuring in de hersenen (figuur 1E2) toont het succes van de RDL-CRISPR-Cas 9 injecties in de bijen mediaan ocelli. De meerdere verspreide cellen van de hersenen vertonen ATTO550. De succesvolle injectie van RDL-CRISPR-Cas 9 verminderde de eiwitexpressie in vergelijking met de controle (figuur 1E1-3). Van acht immunocetained bee hersenen, slechts een hersenen had een hoog niveau van distributie van de RDL-CRISPR-Cas9 in de cellen van paddestoel lichaam, protocerebrum, en antennekwab, terwijl andere hersenen hadden cel vlekken met ATTO550 in de paddestoel lichaam kelk, centraal complex, maar niet antennekwab. Het is belangrijk op te merken dat bij deze bijen de reductie anti-RDL-immunovlekken niet zo dramatisch was als in de hersenen die in figuur 1E1worden vertoond.
Vervolgens hebben we na de RDL-CRISPR-Cas9-injectie een qPCR-drop-off test uitgevoerd om het niveau van het gewijzigde RDL-gDNA in de bijen 48 uur na de RDL-CRISPR-Cas9-injectie te schatten. In deze experimenten, in de bijenhersenen geïnjecteerd met RDL-CRISPR-Cas 9, kwam de relatieve vermindering van de fluorescentie overeen met het aantal gemodificeerde gDNA in de monsters. In onze tests was het gebied dat overeenkomt met deze gids in gDNA bij 12 bijen geïnjecteerd met RDL-CRISPR-Cas9 64 % ± (gemiddelde ± 30 %SD) vergeleken met gDNA bij niet-geïnjecteerde bijen (figuur 3A).
Vervolgens hebben we qRT-PCR uitgevoerd in een aparte groep bijen (figuur 3B). We vergeleken het niveau van RDL RNA van RDL-CRISPR-Cas 9 geïnjecteerde bijen (n = 19) met het niveau van RNA bij bijen die niet werden geïnjecteerd (n = 12). In deze experimenten was de relatieve reductie van de mRNA RDL 59% ± (gemiddelde ± 15% SE) vergeleken met het niveau van RNA bij niet-geïnjecteerde bijen. Toen we het niveau van RDL RNA in elke bij afzonderlijk onderzochten, vertoonden slechts 13 bijen van de 19 bijen een significante vermindering van het RNA. Deze gegevens geven aan dat injectie van RDL-CRISPR-Cas9 via de ocelli misschien niet altijd een groot aantal hersencellen bereikt, wat de gegevens bevestigt met RDL immuun-gekleurde RDL-CRISPR-Cas9 geïnjecteerde bijen. In deze preparaten had slechts één op de 8 RDL CRISP-Cas9 in veel hersencellen (champignonlichaam, protocerebrum en antennekwab) vergeleken met andere bijenhersenen, waarbij de verdeling van de RDL-CRISPR-Cas9 geconcentreerd was in cellen in de protocerebrum (champignonlichaamkkel en centraal complex) maar niet de antennelkwab (figuur 4A-D).
Anti-mGlutR1 antilichamen tests
We gebruikten de anti-mGlutR1 antilichamen geproduceerd in konijn tegen geconjugeerde peptiden specifiek voor Drosophila melanogaster (Figuur 2A). De volgorde van dit peptide toont een 94% identiteit met de bijenpeptide (CLSDKTRFDYFARTVPPD) Figuur 2A. Eerst controleerden we de antilichamen tegen het bijenherseneiwit met behulp van immunoblotting. Het bijenbrein homogenaat werd gescheiden door 10% SDS-PAGE en elektroforretisch overgebracht van een nitrocellulosemembraan en bevlekt met anti-mGlutR1. De insert in figuur 2A toont twee banden met geschatte gewichten (103 en 83 kD) die overeenkomen met twee isovormen. Toen we dit antilichaam testten op honingbijhersenen, ontdekten we dat ze neuropilarprofielen en cellen in de bijenhersensecties labelen, zoals geïllustreerd in figuur 2B,D. Na preadsorptie van het anti-mGlutR1-antilichaam met geconjugeerd mGlutR1 peptide, verdween de specifieke kleuring in het bijenhersensegment (figuur 2C). Dit bevestigt dat anti-mGlutR1 antilichamen herkennen het peptide (Figuur 2C). Vervolgens injecteerden we een mix van mGlutR1-CRISPR-Cas9 in de mediaan ocelli en gebruikten we de control noguideRNA. Bij controlebijen (n = 7) was de fluorescentie van ATTO550 niet geconcentreerd in de cellen. Sommige hersenen hadden verspreid fluorescentie ATTO550 etikettering. Zo toont het controlepreparaat in figuur 2D1-3 anti-mGlutR1-vlekken in de hersenen, maar niet de FLUORESCENTie van atto550. Toen mGlutR1-CRISPR-Cas9 in de ocelli werd geïnjecteerd en door veel cellen werd opgenomen, werd het fluorescentieniveau van de secundaire antilichamen aanzienlijk verminderd in het gebied dat de functionele mGlutR1RNP(figuur 2E1-3) inneemt. De bijen werden gecontroleerd voor 48 uur, en een bij uit elke experimentele toestand werd dood gevonden. Zo hebben we in dit experiment zeven controlebijen en acht CRISPR-Cas9-bijen gecontroleerd. Alle bijen geïnjecteerd met CRISPR-Cas9 hadden cellen die mGlutR1-CRISPR-Cas9 in zich opnamen. De meeste van deze cellen waren in de paddestoel lichaam kelk, centraal complex, en achterste protocerebrum. Slechts twee van de zeven bijen toonden ATTO550 labeling in vele cellen in het paddestoellichaam, centraal complex, en de antennekwab. Een voorbeeld van een van deze bijen is te zien in figuur 2E. De vermindering van het niveau van mGlutR1 kleuring in deze preparaten was significant. De andere vijf bijen hebben ATTO550 labeling die overeenkomt met de succesvolle levering van de mGlutR1 CRISPR-Cas9 in de paddestoel lichaam en achterste protocerebrum, maar niet in de antennel kwabben.
Vervolgens hebben we na injectie het niveau van de gemodificeerde mGlutR1 gDNA in de bijen 48 uur na injectie geschat, een qPCR-gebaseerde drop-off test uitgevoerd, waarbij de drop-off sonde is ontworpen om zich in het gebied in de buurt van de mGlutR1-gids te bevinden. In deze experimenten, in de bijenhersenen geïnjecteerd met mGlutR1-CRISPR-Cas 9, was de relatieve modificatie van gDNA bij 12 bijen 59% ± (gemiddelde ± 33 %SD) vergeleken met gDNA bij niet-geïnjecteerde bijen (figuur 3A).
Deze resultaten werden ook bevestigd door qRT-PCR-tests in een andere groep bijen, waarbij we de mGlutR1 RNA-niveaus met qRT-PCR bij de bijen 48 uur na injecties met RNPmGlutR1mix(figuur 3B )schatten. We vergeleken het niveau van mGlutR1 RNA van de mGlutR1-CRISPR-Cas9 geïnjecteerde bijen (n = 6) met de RNA-niveaus bij bijen die niet werden geïnjecteerd (n = 6). In deze experimenten was de relatieve reductie van het mRNA mGlutR1 bij geïnjecteerde bijen 53% ± (gemiddelde ± 18% SE) in vergelijking met niet-geïnjecteerde bijen (figuur 3B).
De sectie van vier verschillende bijen die de RNP RDL-CRISPR-Cas9 in Kenyon cel van paddestoel lichaam uitgedrukt is weergegeven in figuur 4A-D. Het voorbeeld bij met ATTO550 fluorescentie in het paddestoellichaam en de antennekwab wordt weergegeven in figuur 4E,F.
| Gidsen | Sequenties | gRNA | RNP (RNP) |
| [guideRNA:tracrRNA] | [gRNA:Cas9 Nuclease] | ||
| RDL_Guide1 | ACCGTAACGCGACCCCCGCT ACCGTAA | GRDL1 GRDL1 | RRDL1 RRDL1 |
| RDL_Guide2 | AACGTCGATCGACTTGACGT | GRDL2 GRDL2 | RRDL2 RRDL2 |
| RDL_Guide3 | CCATGACGAAACACGTGCCC | GRDL3 GRDL3 | RRDL3 RRDL3 |
| mGlu_Guide 1 | CGAAAGTTATCTGACGGTGT | GMGL1 | RMGL1 |
| mGlu_Guide 2 | TTCAACGAGAGCAAGTTCAT | GMGL2 | RMGL2 RMGL2 |
| mGlu_Guide 3 | GCAAACGTCGGTAGGAGTGA | GMGL3 GMGL3 | RMGL3 RMGL3 |
Tabel 1: Nucleotidesequenties van hulplijnen ontworpen voor RDL en mGlutR1.
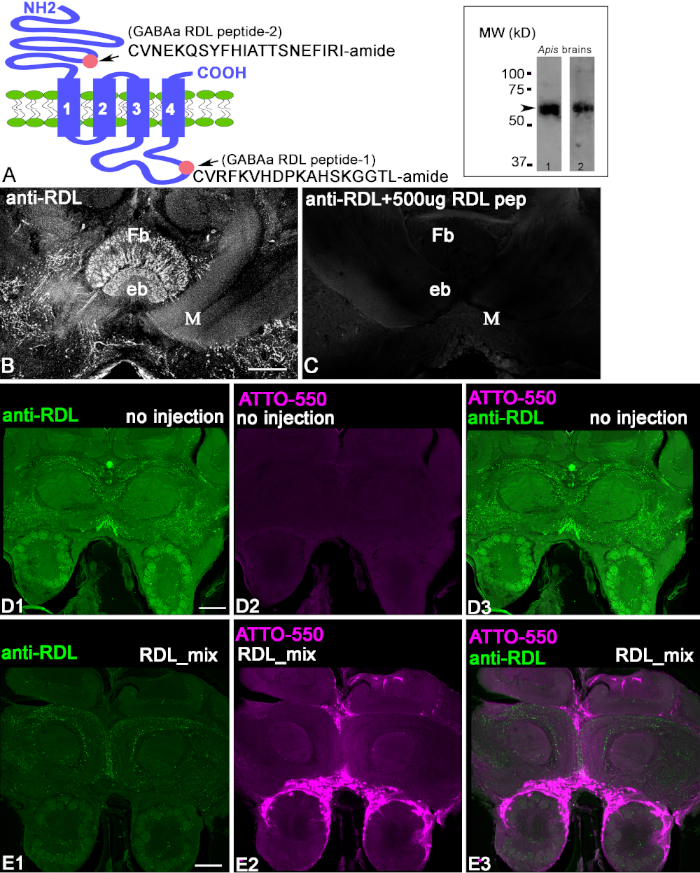
Figuur 1: Karakterisering van anti-RDL-antilichamen. (A) Schematisch van de RDL subunit, waarbij de roze cirkels wijzen op de lokalisatie van peptide 2 (extracellulaire CVNEKQSYFHIATTSNEFIRI-amide) in de N-terminus en peptide 1 (intracellulaire CVRFKVKVPKAHSKGGTL-amide) in de C-terminus. De insert in A toont de banden in de westerse vlek van honingbij hersenextracten verwerkt met overeenkomstige anti-RDL antilichamen (een met anti-RDL pep1 en anti-RDL pep2). Elke immunoblot toont de schijnbare grootte van het eiwit ~ 50-60 kD, wat overeenkomt met de geschatte gewichten van de verschillende isoform van de RDL subeenheden. (B,C) Preadsorptie van de anti-RDL antilichamen met geconjugeerde peptide 1. Het beeld in C toont een vermindering van kleuring in de sectie toen de antilichamen werden voorbebroed met geconjugeerd peptide 1. Het ventilatorvormige lichaam (Fb) en Ellipsoïde lichaam (eb) zijn centrale complexe structuren in de hersenen. M = mediale kwab van paddestoellichaam. (D1-3) Anti-RDL kleuring van een controle, niet-geïnjecteerde bijenhersensectie na 48 uur. Groen geeft het anti-RDL positieve profiel in de hersenen aan. (D2) Deze bij is niet geïnjecteerd en bevat geen ATTO550 fluorescentie. (D3) Samengevoegde afbeeldingen van D1 en D3. (E1-3) De injectie van RDL-CRISPR-Cas9 verminderde anti-RDL-vlekken na 48 uur (E2) ATTO550 fluorescentie in de celkernen wees op een succesvolle RDL-CRISPR-Cas9 levering. (E3) Het samengevoegde beeld van anti-RDL (groen) en ATTO550 (rood). Schaalbalk = 100 μm (B-E). Klik hier om een grotere versie van dit cijfer te bekijken.
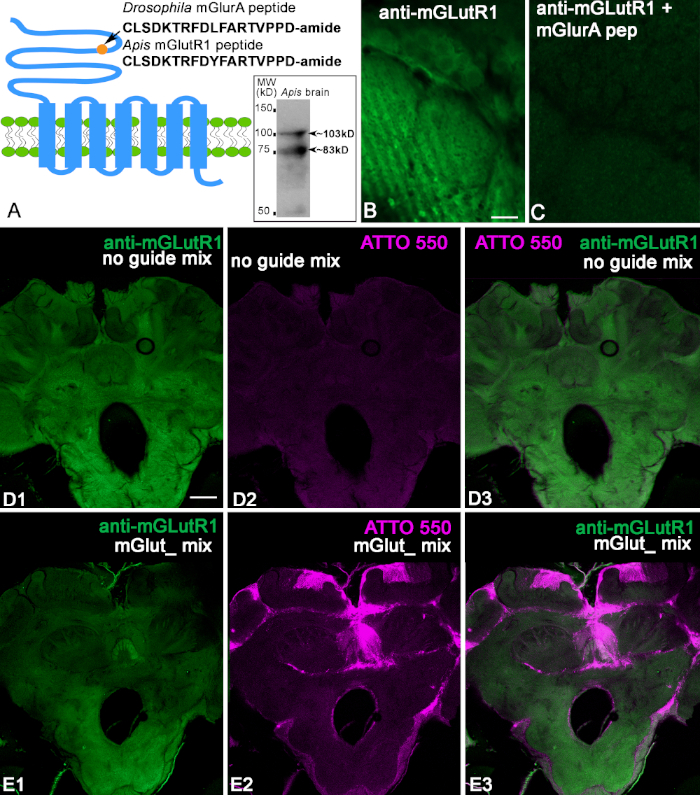
Figuur 2: Karakterisering van anti-mGlutR1 antilichamen. (A) Schematisch van GCPR mGluR dat de Drosophila melanogaster peptide gebruikt voor immunisatie toont. Ter vergelijking, de Apis mellifera peptide wordt hieronder weergegeven. De cirkel geeft de lokalisatie van het peptide in het N-terminus van de mGlutR1 receptor extracellulair domein. De insert in A toont aan dat de anti-mGlutR1 antilichamen herkende twee banden in de westerse vlek van bijenhersenen ~ 103 kD en ~ 83 kD die overeenkomen met de geschatte gewichten van bekende isovormen. (B,C) Preadsorptie regeling van het anti-mGlutR1 antilichaam in twee opeenvolgende delen van de antennekwab glomeruli. Afbeelding van anti-mGlutR1 in de antenneglomeruli sectie in C toont de vermindering van de kleuring als gevolg van preincubatie van het anti-mGlutR1 peptide met het anti-mGlutR1 antilichaam. Deze procedure zorgt ervoor dat het antilichaam uit de oplossing neerslaat, waardoor vlekken in vergelijking met B (controle, afwezigheid van het peptide in de preincubatie) worden afgeschaft. (D1) toont vlekken van anti-mGlutR1 in een bijenhersenschijf na een controle-injectie in de mediaan ocellus. Deze injectie miste de mGlutR1 gRNA die het mogelijk maakt het neerhalen van mGlutR1 receptoren door CRISPR-Cas9, en dus de kleuring van de anti-mGlutR1 antilichaam werd niet verminderd (groen). (D2) De afwezigheid van ATTO550 fluorescentie duidt op de afwezigheid van functionele CRISPR-Cas9 in de hersenen. (D3) Samengevoegde beelden van anti-mGlutR1 en ATTO550. (E1-E3) tonen de kleuring van anti-mGlutR1 in een hersensectie waar mGlutR1 permanent is neergehaald 48 uur na injectie met mGlutR1-CRISPR-Cas 9 in de mediaan ocellus. Dus, de kleuring in deze hersenen is sterk verminderd als gevolg van de succesvolle knock-out van de mGlutR1 in veel cellen. (E2) ATTO550 kleuring in vele celkernen in de bijenhersenen geeft aan dat injectie van mGlut1-CRISPR-Cas 9 succesvol was. (E3) Samengevoegd beeld van ATTO550 (rood) en anti-mGlutR1 (groen). Schaalbalk = 10 μm (B,C); 100 μm (D,E). Klik hier om een grotere versie van dit cijfer te bekijken.
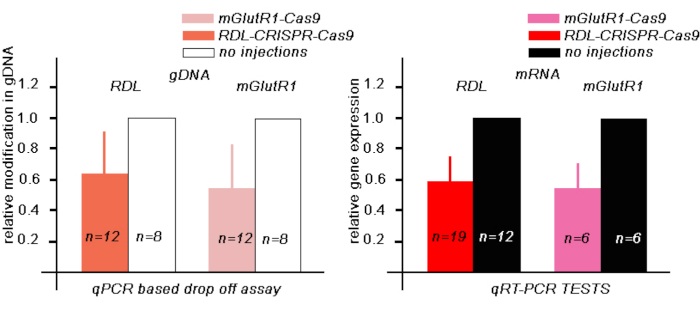
Figuur 3: Evaluatie van gemodificeerde gDNA en expressie van mRNA van RDL en mGlutR1 mRNA in bijenhersenen 48 uur na injectie met 345 nL van overeenkomstige RPN CRISPR-Cas9. (A) De qPCR-gebaseerde drop-off test om de hoeveelheid gDNA met een wijzigingsgebied te evalueren, werd berekend met behulp van de2-ΔΔCt-methode en genormaliseerd tegen controle, niet-geïnjecteerde hersenen. De gegevens worden uitgedrukt als gemiddelde + SD. (B) TheqRT-PCR test werd gebruikt om de hoeveelheid mRNA in CRISPR-Cas9 geïnjecteerde en niet-geïnjecteerde bijen te evalueren. AmActin werd gebruikt als referentiegen. De relatieve genexpressie werd berekend met behulp van 2-ΔΔCt methoden en genormaliseerd tegen controle, niet-geïnjecteerde hersenen. De gegevens worden uitgedrukt als gemiddelde + SE. Klik hier om een grotere versie van dit cijfer te bekijken.
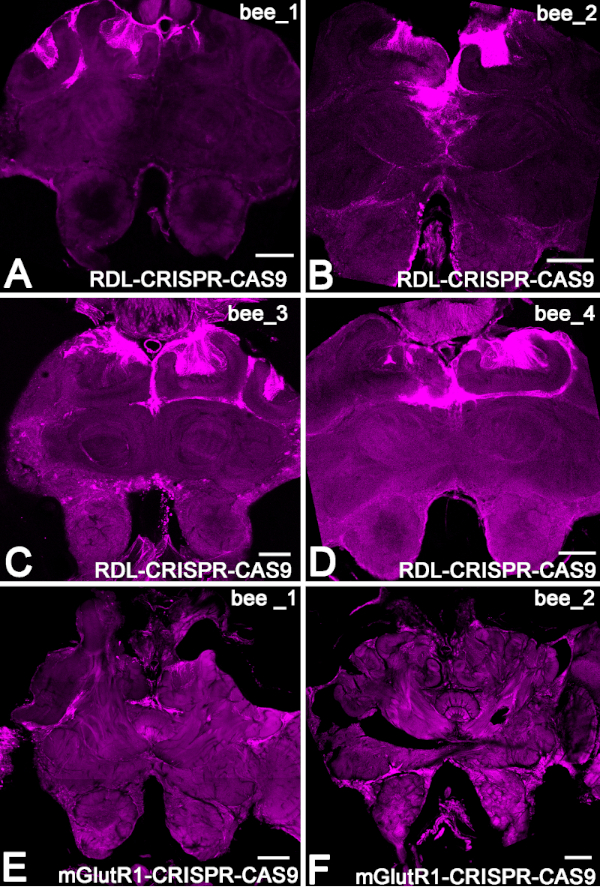
Figuur 4: Voorbeeld van de verdeling van RNP CRISPR-Cas9 in bijenhersenen via ATTO550 fluorescentie. (A-D) De hersendelen van vier verschillende bijen die de RNP RDL-CRISPR-Cas9 uitdrukten in de Kenyon cel van het paddenstoelenlichaam. (E,F) Voorbeeld van twee hersenen 48 uur na injectie met RNPmGlutR1 CRISPR-Cas9. Schaalbalk = 150 μm (A-F). Klik hier om een grotere versie van dit cijfer te bekijken.
Discussie
Karakterisering van de anti-RDL en anti-mGlutR1
Ten eerste hebben we de anti-RDL en anti-mGlutR1 antilichamen gekarakteriseerd door immunoblot en pre-adsorptie op de plakjes vaste honingbijhersenen. Elk antilichaam werd gemaakt om al zijn bekende isoforms te herkennen, en westerse analyse laat zien dat ze banden herkennen die overeenkomen met hun voorspelde moleculaire gewichten. Vervolgens werden beide antilichamen geblokkeerd door het geconjugeerde peptide waartegen ze werden geproduceerd op honingbijenhersensecties.
Een van de eerste doelstellingen in onze studie was om vast te stellen dat de antilichamen geproduceerd tegen de specifieke geconjugeerde peptide zijn specifiek voor zijn eiwit in vaste hersenweefsel. Daarvoor maakten we gebruik van het CRISPR-Cas9 systeem. We ontwierpen specifieke gidsen voor honingbij RDL en mGlutR1 en gebruikten elk van hen om CRISPR-Cas9 gelabeld te maken met de fluorescerende sonde ATTO550. Voor elke receptor injecteerden we een mengsel van drie verschillende CRISPR-Cas9 ribonucleoproteïnen in de ocelli om de hoeveelheid van het beoogde eiwit in de volwassen honingbijhersenen te verminderen door het overeenkomstige gen te elimineren in cellen die ons ontworpen Cas9-systeem in namen. In onze studie hebben we deze stap volbracht.
Een van de eerste cruciale stappen voor het succes van deze experimenten is het ontwerpen van de juiste gids RNAs. We raden u aan maximaal vijf geleidings-RNA's te ontwerpen, gelegen aan het begin, midden en het einde van de gensequentie. In ons voorbereidende werk testten we ze in verschillende combinaties op drie tot vijf bijen. We hebben ook geprobeerd verschillende concentraties van injecties, evenals tijden na injectie, en verschillende mengsels van RNP in de injecties. We ontleedden hersenen en verwerkten ze met anti-RDL en anti-mGlutR1 antilichamen. In deze eerste tests hebben we de juiste combinatie, post-injectietijd, evenals de concentratie en hoeveelheid CRISPR-Cas9 voor injectie vastgesteld. Deze eerste tests waren de basis voor het opzetten van de experimenten die we hier in detail beschreven.
Het doel was tweeledig: 1) om in een bij aan te tonen dat onze antilichaamkleuring na behandeling met CRISPR-Cas9 en 2) werd verminderd om de beste experimentele omstandigheden voor gedragsstudies te doorlopen. Zo tonen we aan dat als veel celkernen CRISPR-Cas9 48 uur na injectie bevatten, de reductie van de anti-RDL en anti-mGlutR1 kleuring significant is. Bovendien, dat toont aan dat de geteste antilichamen specifiek herkennen de mGlut1 en RDL eiwit in de honingbij hersenen voorbereiding en dat ze kunnen worden gebruikt voor lokalisatie studies in de honingbij hersenen.
Experimentele setting CRISPR-Cas9 voor gedragsstudie
Vervolgens hebben we de experimenten zo opgezet dat CRISPR-Cas9 gebruikt kon worden in gedragsstudies. Acht of negen honingbijen werden verzameld voor controle en experimentele behandelingen. Ze werden gedragsmatig getest voor en na de injectie, en vervolgens hun hersenen werden verwerkt voor ATTO550 en / of immunocytochemie om de hersenen regio's die vermindering van het doeleiwit toonde te bepalen. Hier is het van essentieel belang op te merken dat het aantal bijen dat voor één reeks experimenten wordt genomen, beperkt was tot niet meer dan 8-9 bijen voor de controle- en experimentele omstandigheden. Op deze manier kunnen beide omstandigheden op dezelfde dag worden getest. Ook, zodra we de CRISPR-Cas9 mengsels voorbereid voor injectie, we nooit bevroor ze. Het CRISPR-Cas9 mengsel veranderde niet in potentie bij gebruik 3 dagen op rij en bleef bij 4-8 °C. Echter, we hebben het niet testen na 3 dagen.
Zoals we beschreven in de sectie Resultaten voor beide sets van experimentele injecties en voor beide antilichamen, slechts drie bijen van 16 getest toonde een grote verdeling ATTO550 in de paddestoel lichaam, protocerebrum, en antennekwabben. Bij alle andere bijen was de verdeling van CRISPR-Cas9 beperkt tot het champignonlichaam, het centrale complex en/of de achterste protocerebrum. Het is essentieel om te begrijpen voor alle gedragsstudies dat het gebruik van deze injectiemethode de vermindering van doeleiwit alleen beperkt zal zijn tot het paddestoellichaam bij de meeste bijen. Het zal niet uitbreiden tot de antennekwab of sub-oesofageale ganglion. Zo is de injectietechniek die we gebruiken geschikt om het effect van de vermindering van receptoren in het paddestoellichaam en het centrale complex in gedragsexperimenten te bestuderen, terwijl een andere methode voor de invoering van CRISPR-Cas9 meer geschikt zal zijn voor het bestuderen van andere hersengebieden.
Tot slot toonde onze studie de succesvolle toepassing van CRISPR-Cas9 aan als een controle voor antilichaamvlekken in de hersenen. Voor zowel antilichamen (anti-RDL als anti-mGlutR1), toen de opname van mGlutR1-CRISPR-Cas9 of RDL-CRISPR-Cas9 succesvol was, werd ook het niveau van overeenkomstige vlekken van antilichamen aanzienlijk verminderd. Ook is het essentieel op te merken dat injectie in de ocelli leidde tot een verdeling van CRISPR-Cas9 in de hersenen die niet homogeen was. De verdeling varieerde van een minimaal gebied rond de ocelli en paddestoel lichaam om vele cellen in de hele hersenen. De variabiliteit van de opname van de mGlutR1-of RDL-CRISPR-Cas9 door de cellen was waarschijnlijk te wijten aan variatie in de injecties. Uit onze gegevens blijkt dat het CRISPR-Cas9-systeem werkt bij honingbijen, maar dat de injectiemethode moet worden verbeterd om de variabiliteit van crispr-cas9-opname in individuele bijenhersenen te verminderen. Binnen deze beperkingen is het nu mogelijk om deze techniek te gebruiken om genen bij volwassen bijen te manipuleren voor gedragsexperimenten.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk werd ondersteund door de volgende prijzen aan BHS: Human Frontiers Science Program; NIH NIGMS (R01 GM113967); NSF Ideas Lab (1556337). Het peptide en de antilichamen voor DmGluRA werden ontworpen in het laboratorium Dr. Serge Birman (Marseille, Luminy, Frankrijk) toen IS werd ondersteund door Programme d'Urgence FRM/Postdocs UFP20060306548 van de Fondation pour la Recherche Medicale. We zijn Daniela Junqueira Marosi en Alex Hanter van Integrated DNA Technology (IDT) dankbaar voor de hulp bij het ontwerp van RDL-gidsen en qPCR drop-off tests.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Azijnzuur | Sigma-Aldrich | A6283_100 mL | western blotting |
| Acrylamid-bis Acrylamide | Bio-Rad | 500 mL 1610156 | western blotting |
| Agarose | Sigma-Aldrich | A0169-250g | gebruikt met gedistilleerd water om honingbijenhersenen in blokken te fixeren |
| Alexa Fluor 488 AffiniPure F(ab')2 Fragment Donkey Anti-Rabbit IgG (H+L) | Jackson Research Laboratories | 711-546-152 | secundaire antilichaam om de primaire antilichamen van konijn te onthullen |
| Alt-R CRISPR-cas9 tracrRNA-5'ATTO | IDT | 1075934 | met ontworpen guide RNA, het creëert gRNA |
| Alt-R S.p. Cas9 nuclease V3 | IDT | 1081058 | enzym gebruikt om ribonucleoproteïne voor CRISPR-systeem te maken |
| Ammoniumpersulfaat | Bio-RAD | 10 g 1610700 | western blotting |
| Anti-mGlutR1 antilichamen | Covalab (FRANCE)/21st Century Biochemical | gekarakteriseerd door auteurs in het huidige artikel | Gebruikt voor primaire incubatie van mGlut 1 in honingbijen |
| Anti-RDL antilichamen | 21st Century Biochemical | gekarakteriseerd door auteurs in het huidige artikel | Gebruikt voor primaire incubatie van RDL in honingbijen |
| Aprotinine | Sigma-Aldrich | Y0001154 | proteaseremmer |
| Barraquer Iris Scissors 7mm Blade Sharp point | World Precision Instruments | 14128-G | gebruikt voor het disseceren van honingbijenhersenen |
| Benzamidine | Sigma-Aldrich | 12072 | proteaseremmer |
| Mes (breekbaar) voor meshouder | Fine Science Tool | 10050-00 | dissectie voor western blotting |
| Meshouder en breker | Fine Science Tool | 15309 | dissectie voor western blotting |
| Borosilicaat glas capillairen | World Precision Instruments | 1B100 F | voor injectieprocedure |
| Chemiluminescerend western blot detectie substraat | Bio-Rad | 1705062 | western blotting |
| Chloroform | Sigma-Aldrich | 472476-50mL | RNA isolatie |
| Dithiothreitol | Bio-Rad | 1610611 | western blotting |
| DNA easy kit | QIAGEN | 69504 | DNA extractie |
| DNA-free kit | INVITROGEN | AM1907 | Gebruikt om DNA te verwijderen |
| Eppendorf Research plus pipette, 3-pack | Sigma-Aldrich | Z683884 | |
| Falcon 24 Well Polystyrene Multiwell | Falcon | 351147 | Multiwell |
| Flat Bottom Embedding Capsules, Polyethylene | Electron Microscopy Science | 70021 | mand voor hersensecties |
| Forceps Dumont #5 (paar) | Fine Science Tool | 11254-20 | voor het disseceren van het honingbijenhersenen uit het hoofd |
| Forceps Dumont #5S (paar) | Fine Science Tool | 11252-00 | om de hersenen te reinigen van trachea voor dissectie |
| Gene Expression Master Mix | Integrated DNA Technologies | 1055770 | qPCR drop off assay |
| Glutaraldehyde | EMS | 16220 | gebruikt voor de bereiding van peptideconjugaten voor controle peabsorptie |
| Glycerol | Sigma-Aldrich | G5516-500 mL | western blotting, inbeddingsmedium |
| Glycine | Bio-Rad | 1610718 | western blotting |
| Hydrofobe gefilterde nylonmesh | Spectrum Labs | 145910 | voor de bodem van de mand voor hersensecties |
| Isopropylalcohol | Sigma-Aldrich | I9030-50mL | RNA isolatie |
| Keyhole limpet hemocyanine | Sigma-Aldrich | H7017 | gebruikt voor de bereiding van conjugaten voor controle |
| LSM800 cofocal microscoop | Zeiss | ||
| mGlu_Guide 1 | IDT | ontworpen guide RNA voor CRISPR-Cas 9. Target mGlutR1 genoomsequenties | |
| mGlu_Guide 2 | IDT | ontworpen guide RNA voor CRISPR-Cas 9. Target mGlutR1 genoomsequenties | |
| mGlu_Guide 3 | IDT | ontworpen guide RNA voor CRISPR. Target mGlutR1 genoomsequenties | |
| methanol | Sigma-Aldrich | 34860 | western blotting |
| 96-well PCR microplate | Applied biosystem | 4346907 | qPCR drop off assay en qRT-PCR |
| 384-well PCR microplate | Sigma-Aldrich | Z374911 | qRT-PCR |
| Mineralolie | Sigma-Aldrich | M5904_500mL | voor injectieprocedure |
| Model p87 Flaming Brown Micropipette Puller | Sutter Instrument Co. | Capillaire voorbereiding | |
| Mowiol 4-88 | Sigma-Aldrich | 81381 | voor inbeddingsoplossing |
| Nanoliter 2000 | World Precision Instruments Nanoliter | Injectie Apparatuur | |
| Normal Donkey Serum | Jackson Research Laboratories | AB_2337258 | blokkagens voor immunocytochemie |
| Non-immune Goat Serum | Invitrogen | 50-062Z 100 mL | blokkagens voor immunoblotting |
| Nuclease-vrij buffer | IDT | 1072570 | Nuclease-vrije buffer die wordt gebruikt bij de bereiding van CRISPR-Cas9 injectie |
| Nuclease-vrij water | IDT | AM9337 | nuclease-vrij water dat wordt gebruikt bij de bereiding van CRISPR-Cas 9 systeem |
| OrbitalShaker Mp4 | Genemate | ||
| Paraformaldehyde | Sigma-Aldrich | 158127-500 g | gebruikt met PBS om fixatief voor bijenhersenen te maken |
| Phenylmethylsulphonyl fluoride (PMSF) | Sigma-Aldrich | P7626-250 mg | proteaseremmer |
| Fosfaat Buffer Saline | Sigma-Aldrich | P4417-100TAB | Gebruikt met Paraformaldehyde als fixatief; buffer voor antilichamen |
Referenties
- Harms, D. W., et al. Mouse Genome Editing Using the CRISPR/Cas System. Current Protocols in Human Genetics. 83 (15), 7-27 (2014).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Kouranova, E., et al. CRISPRs for Optimal Targeting: Delivery of CRISPR Components as DNA, RNA, and Protein into Cultured Cells and Single-Cell Embryos. Human Gene Therapy. 27 (6), 464-475 (2016).
- Schubert, M., et al. Fluorescently labeled tracrRNA provides efficient genome editing while allowing cellular microscopy and FACS analysis. Genome Editing. , www.idtdna.com 1-3 (2017).
- Kucharski, R., Mitri, C., Grau, Y., Maleszka, R. Characterization of a metabotropic glutamate receptor in the honeybee (Apis mellifera): implications for memory formation. Invertebrate Neuroscience. 7 (2), 99-108 (2007).
- Aronstein, K., Auld, V., Ffrench-Constant, R. Distribution of two GABA receptor-like subunits in the Drosophila CNS. Invertebrate Neuroscience. 2 (2), 115-120 (1996).
- Thompson, M., Steichen, J. C., ffrench-Constant, R. H. Conservation of cyclodiene insecticide resistance-associated mutations in insects. Insect Molecular Biology. 2 (3), 149-154 (1993).
- Chung, B. Y., Kilman, V. L., Keath, J. R., Pitman, J. L., Allada, R. The GABA(A) receptor RDL acts in peptidergic PDF neurons to promote sleep in Drosophila. Current Biology. 19 (5), 386-390 (2009).
- Taylor-Wells, J., Hawkins, J., Colombo, C., Bermudez, I., Jones, A. K. Cloning and functional expression of intracellular loop variants of the honeybee (Apis mellifera) RDL GABA receptor. Neurotoxicology. 60, 207-213 (2017).
- Jones, A. K., Sattelle, D. B. The cys-loop ligand-gated ion channel superfamily of the honeybee, Apis mellifera. Invertebrate Neuroscience. 6 (3), 123-132 (2006).
- Dupuis, J. P., et al. Homomeric RDL and heteromeric RDL/LCCH3 GABA receptors in the honeybee antennal lobes: two candidates for inhibitory transmission in olfactory processing. Journal of Neurophysiology. 103 (1), 458-468 (2010).
- Farooqui, T., Robinson, K., Vaessin, H., Smith, B. H. Modulation of early olfactory processing by an octopaminergic reinforcement pathway in the honeybee. Journal of Neuroscience. 23 (12), 5370-5380 (2003).
- Guo, X., Wang, Y., Sinakevitch, I., Lei, H., Smith, B. H. Comparison of RNAi knockdown effect of tyramine receptor 1 induced by dsRNA and siRNA in brains of the honeybee, Apis mellifera. Journal of Insect Physiology. 111, 47-52 (2018).
- Roth, A., et al. A genetic switch for worker nutrition-mediated traits in honeybees. PLOS Biology. 17 (3), e3000171(2019).
- Kohno, H., Suenami, S., Takeuchi, H., Sasaki, T., Kubo, T. Production of Knockout Mutants by CRISPR/Cas9 in the European Honeybee, Apis mellifera L. Zoological Science (BIOONE). 33 (5), 505-512 (2016).
- Hu, X. F., Zhang, B., Liao, C. H., Zeng, Z. J. High-Efficiency CRISPR/Cas9-Mediated Gene Editing in Honeybee Apis mellifera Embryos. G3: Genes, Genomes, Genetics. 9 (5), 1759-1766 (2019).
- Smith, B. H., Burden, C. M. A Proboscis Extension Response Protocol for Investigating Behavioral Plasticity in Insects: Application to Basic, Biomedical, and Agricultural Research. Journal of Visualized Experiments. (91), e51057(2014).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Protein Blotting Guide. , BIO-RAD. http://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_2895.pdf (2019).
- Rodriguez, J., Deinhardt, F. Preparation of a semipermanent mounting medium for fluorescent antibody studies. Virology. 12, 316-317 (1960).
- Custom Alt-R® CRISPR-Cas9 guide RNA. , Integrated DNA Technologies. https://www.idtdna.com/site/order/designtool/index/CRISPR_CUSTOM (2019).
- Bonnafe, E., et al. Effect of a thymol application on olfactory memory and gene expression levels in the brain of the honeybee Apis mellifera. Environmental Science and Pollutant Research (International). 22 (11), 8022-8030 (2015).
- Wang, Y., et al. Regulation of behaviorally associated gene networks in worker honeybee ovaries. Journal of Experimental Biology. 215 (Pt 1), 124-134 (2012).
Herprints en machtigingen
