Dit protocol Details over het implementeren en uitvoeren van multi-Fiber fotometrie opnames, hoe te corrigeren voor calcium-onafhankelijke artefacten, en belangrijke overwegingen voor Dual-Color photometrie beeldvorming.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Multi-Fiber fotometrie om neurale activiteit op te nemen in vrij bewegende dieren
In dit artikel
Samenvatting
Samenvatting
Het vastleggen van de activiteit van een groep neuronen in een vrij bewegend dier is een uitdagende onderneming. Bovendien, als de hersenen wordt ontleed in kleinere en kleinere functionele subgroepen, het wordt essentieel om op te nemen van projecties en/of genetisch gedefinieerde subpopulaties van neuronen. Fiber photometrie is een toegankelijke en krachtige aanpak die deze uitdagingen kan overwinnen. Door het combineren van optische en genetische methodologieën, neurale activiteit kan worden gemeten in diepe hersenstructuren door het uitdrukken van genetisch gecodeerde calcium indicatoren, die neurale activiteit vertalen in een optisch signaal dat gemakkelijk kan worden gemeten. Het huidige protocol Details van de onderdelen van een multi-Fiber photometrie systeem, hoe toegang tot diepe hersenstructuren te leveren en verzamelen van licht, een methode om rekening te maken voor bewegings artefacten, en hoe te verwerken en analyseren van fluorescerende signalen. Het protocol Details experimentele overwegingen bij het uitvoeren van single en Dual Color Imaging, van één of meerdere geïmplanteerde optische vezels.
Inleiding
De mogelijkheid om te correleren van neurale reacties met specifieke aspecten van het gedrag van een dier is essentieel om te begrijpen van de rol die een bepaalde groep van neuronen speelt bij het regisseren of reageren op een actie of stimulus. Gezien de complexiteit van dierlijk gedrag, met de talloze interne toestanden en externe stimuli die zelfs de eenvoudigste acties kunnen beïnvloeden, kan het opnemen van een signaal met een enkele proef resolutie onderzoekers voorzien van de nodige instrumenten om deze te overwinnen Beperkingen.
Fiber photometrie is uitgegroeid tot de techniek van de keuze voor veel onderzoekers op het gebied van systemen neurowetenschappen vanwege de relatieve eenvoud in vergelijking met andere in vivo opnametechnieken, de hoge signaal-ruis verhouding, en de mogelijkheid om op te nemen in een verscheidenheid van gedrags paradigma's1,2,3,4,5,6,7,8. In tegenstelling tot traditionele elektrofysiologische methoden, is photometrie de optische benadering die het vaakst wordt gebruikt in combinatie met genetisch gecodeerde calcium indicatoren (GECIs, de GCaMP-serie)9. GECIs veranderen hun vermogen om te fluoresceren op basis van of ze zijn gebonden aan calcium. Omdat de interne concentratie van calcium in neuronen zeer strak gereguleerd en voltage-gated calcium kanalen open wanneer een neuron een actiepotentiaal vuurt, voorbijgaande verhogingen van de interne calciumconcentratie, die resulteren in voorbijgaande verhogingen in de vermogen van een GECI tot fluorescentie, kan een goede proxy voor neuronale afvuren9.
Met Fiber photometrie, excitatie licht is gericht naar beneden een dunne, multimode glasvezel in de hersenen, en een emissie signaal wordt verzameld terug via dezelfde vezels. Omdat deze optische vezels lichtgewicht en buigzaam zijn, kan een dier grotendeels ongehinderd bewegen, waardoor deze techniek compatibel is met een breed scala aan gedrags tests en-voorwaarden. Sommige voorwaarden, zoals snelle bewegingen of buigen van het Fiber-Optic patch snoer buiten de straal waarop het totale inwendige reflectie kan behouden, kunnen signaal artefacten introduceren. Om een signaal van lawaai te maken, kunnen we een eigendom van GCaMP exploiteren dat bekend staat als het "isosbestic Point". In het kort, met GCaMP, naarmate de golflengte van het excitatie lampje naar links verschuift, neemt de uitstoot in de calcium-gebonden toestand af en neemt de emissie in de calcium-afhankelijke toestand marginaal toe. Het punt waarop de relatieve intensiteit van deze twee emissies gelijk is, wordt het isosbestic-punt genoemd. Wanneer GCaMP op dit punt opgewonden is, wordt de emissie niet beïnvloed door veranderingen in interne calciumconcentraties en is de variantie in het signaal meestal te wijten aan verzwakking van het signaal van overbuiging van het Fiber-Optic patch snoer of de beweging van het zenuwweefsel ten opzichte van de geïmplanteerde vezels.
Elektrofysiologie van één eenheid is nog steeds de gouden standaard voor vrij bewegende in vivo opnames vanwege zijn eencellige en single-Spike niveau resolutie. Het kan echter moeilijk zijn om de moleculaire identiteit van de cellen die worden opgenomen te lokaliseren, en de post-hoc analyse kan behoorlijk moeizaam zijn. Hoewel Fiber photometrie geen eencellige resolutie heeft, staat het onderzoekers toe om vragen te stellen die onmogelijk zijn om te adresteren met traditionele technieken. Het combineren van virale strategieën met transgene dieren, de uitdrukking van GECIs kan worden gericht aan genetisch gedefinieerde neuronale typen te registreren populatie-of projectie gedefinieerde neurale activiteit, die kan worden uitgevoerd door het monitoren van calcium signaal direct bij axon terminals10,11. Bovendien, door het implanteren van meerdere Fiber-Optic cannulas, het is mogelijk om tegelijkertijd te bewaken neurale activiteit uit verschillende hersengebieden en trajecten in hetzelfde dier12,13.
In dit manuscript beschrijven we een techniek voor single en multi-Fiber fotometrie, hoe te corrigeren voor calcium-onafhankelijke artefacten, en gedetailleerd hoe om mono-en Dual-Color opnames uit te voeren. We geven ook voorbeelden van de soorten vragen die het mogelijk maakt om te vragen en hun toenemende complexiteit (Zie Figuur 1). De fiber fotometrie Setup voor multi-Fiber opnames gedetailleerd in dit protocol kan worden gebouwd met behulp van een lijst van materialen gevonden op https://sites.Google.com/View/multifp/hardware (Figuur 2).
Het is essentieel dat het systeem wordt uitgerust voor zowel 410 nm als 470 nm excitatie golflengten voor calcium-onafhankelijke en calcium afhankelijke fluorescentie emissie van GCaMP6 of de varianten daarvan. Voor op maat gebouwde opstellingen of als er geen software beschikbaar is om het systeem uit te voeren, kan het vrije, open source programma Bonsai (http://www.open-ephys.org/bonsai/) worden gebruikt. Als alternatief kan Fiber photometrie worden uitgevoerd via MATLAB (bijv. https://github.com/deisseroth-lab/multifiber)12 of andere programmeertaal14. De software en hardware van het systeem moet het mogelijk maken manipulatie van zowel de 410 nm en 470 nm LEDs en de camera, extractie van beelden (Figuur 2), en berekening van de gemiddelde fluorescentie intensiteit in de regio's van belang (Rois) getekend rond de vezels op de afbeeldingen. De uitvoer moet een tabel zijn met gemiddelde intensiteitswaarden die zijn vastgelegd met de 470 nm-en 410 nm-Led's van elke vezel in het patch snoer. Bij het uitvoeren van multi-Fiber experimenten, 400 μm gebundelde vezels kunnen het verkeer van muizen te beperken. In dergelijke gevallen raden we aan om 200 μm patch koorden te gebruiken, wat meer flexibiliteit biedt. Het kan ook mogelijk zijn om kleinere dummy kabels te gebruiken tijdens het trainen van muizen.
Het is van cruciaal belang om tijdpunten voor gebeurtenissen van belang te kunnen extraheren tijdens de overname van Fiber photometritry. Als het systeem niet direct voorziet in een ingebouwd systeem voor het integreren van Ttl's voor specifieke gebeurtenissen, is het een alternatieve strategie om een tijdstempel toe te wijzen aan afzonderlijke tijdpunten die zijn vastgelegd om af te stemmen op specifieke tijden en gebeurtenissen tijdens het experiment. Tijdstempel kan worden gedaan met behulp van de computerklok.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle experimenten werden gedaan in overeenstemming met de institutionele Dierenzorg en gebruik comités van de Universiteit van Californië, San Diego, en de Canadese gids voor de zorg en het gebruik van proefdieren en werden goedgekeurd door de Université Laval Animal Protection Commissie.
1. uitlijning van het optische pad tussen de CMOS-camera (Complementary Metal Oxide Semiconductor) en het individueel of vertakkings snoer
- Draai alle schroeven op de 5-assige vertaler (11, Figuur 2B).
- Schroef het patch snoer (12, Figuur 2B) op de adapter [SMA (sub-miniatuur A) of FC (Fiber Optic connector)] dat is aangebracht op de 5-assige vertaler.
- Schakel het 470 nm excitatie lampje (1, Fig. 2b) bij een laag vermogen (100 μW) in en plaats de punt van het patch snoer dat naar een autofluorescerende plastic glijbaan wijst. Dit heeft geen invloed op toekomstige opnames, maar is alleen bedoeld voor het visualiseren van het uitlijnings proces.
- Opnemen van de CMOS-camera (13, Figuur 2b) in de Live-modus. Verhoog de versterking of pas de opzoektabel (LUT) aan totdat de afbeelding niet volledig zwart is. Het punt is om een beeld te kunnen zien op het brandpunt van de doelstelling (10, Figuur 2b).
- Vooruit de 5-assige vertaler naar de doelstelling, ervoor te zorgen dat de 470 nm licht is gecentreerd op de vezel aan de SMA of FC uiteinde van het patch snoer, totdat een beeld kan worden opgelost op de camera.
- Pas de X-en Y-as aan totdat de afbeelding is gecentreerd en goed is opgelost.
- Visualiseer het licht uitgezonden door de Ferrule-end van het patch snoer. Het moet verschijnen als een isotrope cirkel. Als een vertakkende pleister snoer wordt gebruikt, moet de hoeveelheid licht die wordt uitgestoten aan de uiteinden van elk patch snoer gelijk zijn. Als de cirkel niet isotropisch is of als het uitgezonden licht ongelijk is, past u de 5-assige vertaler aan op de X-Y-as.
2. opstelling van ROIs rond vezels voor meting van de gemiddelde fluorescentie intensiteit
- Zet alle excitatie lampjes aan om de vezels beter te visualiseren. Pas de camera Gain aan zodat er geen pixels verzadigd zijn en er een duidelijk beeld van de vezels aanwezig is.
- Live record of neem een voorlopige afbeelding.
- Teken ROIs rond de vezels en bewaar ze voor de meting van de gemiddelde intensiteitswaarden tijdens opnames (Figuur 2A).
- Voor meerdere glasvezel opnames, test voor onafhankelijkheid in signalen.
- Live record van alle vezels.
- Punt één vezel naar een lichtbron en tik met een vinger. Zeer grote schommelingen moeten zich uitsluitend in dat kanaal voordoen (acceptabele lekkage 1:1000).
- Als de signalen niet onafhankelijk zijn, hertrek dan meer conservatieve ROIs en herhaal de onafhankelijkheids test.
- Om te labelen en bijhouden van welke ROI overeenkomt met welke vezels, gekleurde tape of nagellak kan worden toegepast op het einde van de vezels. Maak een foto vóór het begin van een experiment als secundaire herinnering.
3. instellen van de opname Arena
- Hang het patch snoer boven de arena met behulp van standen, klemmen of houders.
- Zorg ervoor dat het dier vrij kan bewegen in de hele Arena, ongeremd door de lengte van de vezel.
- Of een Operante conditionering box of een open veld gebruikt wordt, zorg ervoor dat het pleister snoer het dier met minimale buiging kan bereiken. Als dit een neus Poke vereist, zorg er dan voor dat er voldoende ruimte is om buigen van de vezel te voorkomen. Vermijd overmatig buigen of draaien van het patch snoer.
4. in vivo opnames
Opmerking: de procedure van optische vezel canule implantatie voor Fiber fotometrie experimenten is identiek aan de procedure voor optogenetica zoals beschreven in Sparta et al15. Wij raden het gebruik van tandheelkundige cement (Zie tabel van materialen), die zorgt voor robuuste verankering van de headcap aan de schedel bot. Tandheelkundige cement zal vooral nuttig zijn in gevallen waar verankerings schroeven niet kunnen worden gebruikt.
- Inspecteer het distale uiteinde van de vezels van het patch snoer visueel met de ogen en met een minifiber Microscoop. Als het oppervlak van de vezels bekrast is, repolijsten de vezels met behulp van Fiber polijsten/lapping film met fijne korrel (1 μm en 0,3 μm).
- Reinig de distale uiteinden van het patch snoer met 70% ethanol en een katoenen tip applicator.
- Reinig de Fiber-Optic canules met 70% ethanol en een katoenen tip applicator.
- Sluit het Ferrule-uiteinde van het patch snoer aan op de geïmplanteerde vezel met behulp van een keramische Split-Sleeve bedekt met een zwarte Krimpkous. Zorg er tijdens de verbinding voor dat de huls strak zit, gebruik anders een nieuwe huls.
Opmerking: er zal een grote hoeveelheid signaalverlies zijn als er ruimte is tussen het patch snoer Ferrule en het implantaat, en de opnames zullen niet werken. - Laat het dier een paar minuten vóór aanvang van de gedrags test herstellen.
- Begin met het opnemen van het optische signaal en voer het experiment uit.
- Houd tijdens het opnemen de Live-Trace nauwlettend in de gaten om kwaliteits opnames te garanderen. Het signaal wordt naar verwachting snel verlaagd als functie van de tijd in de eerste 2 min van de opname. Dit effect wordt veroorzaakt door warmtegemedieerde LED-verval, waarbij de toename van de warmte de weerstand van het optische element verhoogt.
- Als een sprong in het signaal dat de aan/uit kinetiek van GCaMP overschrijdt optreedt, is dit vaak een indicatie dat de huls niet strak genoeg is en de ruimte tussen het patch snoer en het implantaat verandert. Stop in dit geval het experiment en sluit het dier opnieuw aan met een nieuwe huls.
5. Fiber photometrie data-analyse
Opmerking: dit is een methode voor gegevensanalyse die goed werkt voor de meeste opnames. Er kunnen echter alternatieve benaderingen worden toegepast. Voorbeeldcode voor gegevensanalyse u hier vinden: https://github.com/katemartian/Photometry_data_processing.
- Extract gemiddelde fluorescentie intensiteitswaarden opgenomen van 470 nm (int470) en 410 nm (int410) led's, overeenkomend met elke afzonderlijke vezel.
- Elk signaal glad maken met een bewegend gemiddelde algoritme (Figuur 3a).
- Voer de basislijn correctie van elk signaal uit (Figuur 3A en 3B) met behulp van het adaptieve iteratief Geregewogen penalized kleinste kwadraten (airpls)-algoritme (https://github.com/zmzhang/airPLS) om de helling en de lage frequentie te verwijderen schommelingen in de signalen.
- Standaardiseer elk signaal met de gemiddelde waarde en standaarddeviatie (Figuur 3C):
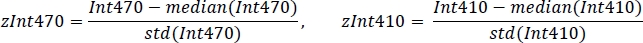
- Met behulp van niet-negatieve robuuste lineaire regressie, passen gestandaardiseerde zint410 tot zint470 signalen (Figuur 3D) naar de regressie-functie:
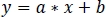
- Gebruik de parameters van de lineaire regressie (a, b) om nieuwe waarden van zint410 gemonteerd op zint470 (fitint410, Figuur 3D, E) te vinden:
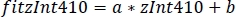
- Gebruik de parameters van de lineaire regressie (a, b) om nieuwe waarden van zint410 gemonteerd op zint470 (fitint410, Figuur 3D, E) te vinden:
- Bereken de genormaliseerde DF/f (z DF/f) (Figuur 3F):
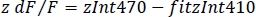
6. simultane dual-Color opnames
- Voeg toe aan het fotometrie systeem a 560 Nm LED om de rode fluorescerende calcium sensor en passende dichroïde spiegels en filters te prikkelen (zie Kim et al., 2016 voor een gedetailleerde beschrijving)12.
- Voeg een afbeelding Splitser toe tussen de doelstelling en de CMOS-camera om de groene en rode emissie golflengten te scheiden (Zie Figuur 5). De afbeelding splitter zal twee gespiegelde beelden op de camerasensor vormen, overeenkomend met de rode en groene signalen (bijv. een patch snoer met 3 takken zal een afbeelding maken met 6 vezels).
- Teken ROIs rond alle vezels in beide kleuren zoals hierboven beschreven. Zorg ervoor dat u elke ROI duidelijk identificeert met de corresponderende fiber en het bijbehorende kanaal (groen en rood) (Figuur 4A).
- Trigger gelijktijdige excitatie met 470 nm en 560 Nm Led's en afwisselen met 410 nm LED (Figuur 5A).
7. dubbele kleurgegevens analyse
- Volg de stappen in sectie 5 om Fitint410 voor het int470 signaal te vinden en z DF/Fte berekenen.
- Omdat het isosbestic-punt voor rood verplaatste GECIs over het algemeen onbekend is, kan het signaal dat met 410 nm-LED in het groene kanaal is opgenomen, worden gebruikt voor bewegings correctie over beide kanalen. Volg de stappen in sectie 5 om Fitint410 voor het int560 signaal te vinden en z DF/Fte berekenen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Neurale correlaten van gedrags responsen kunnen variëren afhankelijk van verschillende factoren. In dit voorbeeld gebruikten we in vivo glasvezel fotometrie om de activiteit van Axon-terminals te meten van het laterale hypothalamische gebied (LHA) dat eindigt in de laterale habenula (LHb). Wild type muizen werden geïnjecteerd met een adeno-geassocieerde virus (AAV) encoding GCaMP6s (AAV-hSyn-GCaMP6s) in de LHA en een glasvezel werd geïmplanteerd met de punt direct boven de LHb (Figuur 4
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Fiber photometrie is een toegankelijke aanpak waarmee onderzoekers bulk-calcium dynamiek van gedefinieerde neuronale populaties in vrij bewegende dieren opnemen. Deze methode kan worden gecombineerd met een breed scala aan gedrags tests, waaronder ' zware bewegingstaken ' zoals geforceerde zwem tests2, angst-conditionering18, sociale interacties1,4en andere7, 8
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Sage Aronson is de CEO en oprichter van Neurophotometrics Ltd., die multi-Fiber photometrie systemen verkoopt.
Dankbetuigingen
Dit werk werd gesteund door een subsidie van de natuurwetenschappen en ingenieurs Onderzoekraad van Canada (NSERC: RGPIN-2017-06131) aan C.P. C. P. is een FRSQ chercheur-Boursier. We danken ook de Plateforme d'Outils Moléculaires (https://www.neurophotonics.ca/fr/pom) voor de productie van de virale vectoren die in deze studie worden gebruikt.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1/4"-20 Stainless Steel Cap Screw, 1" Long | Thorlabs | SH25S100 | |
| 1/4"-20 Stainless Steel Cap Screw, 1/2" Long | Thorlabs | SH25S050 | |
| 1/4"-20 Stainless Steel Cap Screw, 3/8" Long | Thorlabs | SH25S038 | |
| 1000 µm, 0.50 NA, SMA-SMA Fiber Patch Cable | Thorlabs | M59L01 | |
| 12.7 mm Optical Post | Thorlabs | TR30/M | |
| 12.7 mm Pedestal Post Holder | Thorlabs | PH20EM | |
| 15 V, 2.4 A Power Supply Unit with 3.5 mm Jack Connector for T-Cube | Thorlabs | KPS101 | |
| 20x objective | Thorlabs | RMS20X | #10 in Figure 2, #11 in Figure 5 |
| 30 mm Cage Cube with Dichroic Filter Mount | Thorlabs | CM1-DCH/M | #8-9 in Figure 2, #8-10 in Figure 5 |
| 405 nm LED | Doric Lenses | CLED_405 | #2 in Figure 2 |
| 410 nm bandpass filter | Thorlabs | FB410-10 | #5 in Figure 2; #7 in Figure 5 |
| 465 nm. LED | Doric Lenses | CLED_465 | #1 in Figure 2 |
| 470 nm bandpass filter | Thorlabs | FB470-10 | #4 in Figure 2; #6 in Figure 5 |
| 560 nm bandpass filter | Semrock | FF01-560/14-25 | #5 in Figure 5 |
| 560 nm LED | Doric Lenses | CLED_560 | #1 in Figure 3 |
| 5-axis kinematic Mount | Thorlabs | K5X1 | #11 in Figure 2, #12 in Figure 5 |
| Achromatic Doublet | Thorlabs | AC254-035-A-ML | #7 in Figure 2 |
| Adaptor for 405 collimator | Thorlabs | AD11F | #3 in Figure 2; #4 in Figure 5 |
| Adaptor for ajustable collimator | Thorlabs | AD127-F | #3 in Figure 2; #4 in Figure 5 |
| Aluminum Breadboard | Thorlabs | MB1824 | |
| Clamping Fork | Thorlabs | CF125 | |
| Cube connector | Thorlabs | CM1-CC | |
| Dual 493/574 dichroic | Semrock | FF493/574-Di01-25x36 | #10 in Figure 5 |
| Emission filter for GCaMP6 | Semrock | FF01-535/22-25 | #6 in Figure 2 |
| Enclosure with Black Hardboard Panels | Thorlabs | XE25C9 | |
| Externally SM1-Threaded End Cap for Machining | Thorlabs | SM1CP2M | |
| Fast-change SM1 Lens Tube Filter Holder | Thorlabs | SM1QP | #4-6 in Figure 2, #5-7 in Figure 5 |
| Fixed Collimator for 405 nm light | Thorlabs | F671SMA-405 | #3 in Figure 2; #4 in Figure 5 |
| Fixed collimator for 470 and 560 nm light | Thorlabs | F240SMA-532 | #3 in Figure 2; #4 in Figure 5 |
| Green emission filter | Semrock | FF01-520/35-25 | In light beam splitter |
| High-Resolution USB 3.0 CMOS Camera | Thorlabs | DCC3260M | #13 in Figure 2, #15 in Figure 5 |
| Light beam splitter | Neurophotometrics | SPLIT | #14 in Figure 5 |
| Longpass Dichroic Mirror, 425 nm Cutoff | Thorlabs | DMLP425R | #8 in Figure 2, #9 in Figure 5 |
| Longpass Dichroic Mirror, 495 nm Cutoff | Semrock | FF495-Di03 | #9 in Figure 2, #8 in Figure 5 |
| Metabond dental cement | C&B | ||
| M8 - M8 cable | Doric Lenses | Cable_M8-M8 | |
| Optic fiber cannulas | Doric Lenses | Need to specify that these will be used to photometry experiments requiring low autofluorescence | |
| Optic fiber Patchcords | Doric Lenses | Need to specify that these will be used to photometry experiments requiring low autofluorescence | |
| Red emission filter | Semrock | FF01-600/37-25 | In light beam splitter |
| T7 LabJack | LabJack | ||
| T-cube LED Driver | Thorlabs | LEDD1B | |
| USB 3.0 I/O Cable, Hirose 25, for DCC3240 | Thorlabs | CAB-DCU-T3 |
Referenties
- Gunaydin, L. A., et al. Natural Neural Projection Dynamics Underlying Social Behavior. Cell. 157 (7), 1535-1551 (2014).
- Proulx, C. D., et al. A neural pathway controlling motivation to exert effort. Proceedings of the National Academy of Sciences of the United States of America. 115 (22), 5792-5797 (2018).
- Muir, J., et al. In Vivo Fiber Photometry Reveals Signature of Future Stress Susceptibility in Nucleus Accumbens. Neuropsychopharmacology. 43 (2), 255-263 (2017).
- Wang, D., et al. Learning shapes the aversion and reward responses of lateral habenula neurons. eLife. 6, (2017).
- de Jong, J. W., et al. A Neural Circuit Mechanism for Encoding Aversive Stimuli in the Mesolimbic Dopamine System. Neuron. 101 (1), 133-151 (2018).
- Lerner, T. N., et al. Intact-Brain Analyses Reveal Distinct Information Carried by SNc Dopamine Subcircuits. Cell. 162 (3), 635-647 (2015).
- Calipari, E. S., et al. In vivo imaging identifies temporal signature of D1 and D2 medium spiny neurons in cocaine reward. Proceedings of the National Academy of Sciences of the United States of America. 113 (10), 2726-2731 (2016).
- González, A. J., et al. Inhibitory Interplay between Orexin Neurons and Eating. Current Biology. 26 (18), 2486-2491 (2016).
- Chen, T. -W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Barker, D. J., et al. Lateral Preoptic Control of the Lateral Habenula through Convergent Glutamate and GABA Transmission. Cell Reports. 21 (7), 1757-1769 (2017).
- Siciliano, C. A., Tye, K. M. Leveraging calcium imaging to illuminate circuit dysfunction in addiction. Alcohol. 74, 47-63 (2018).
- Kim, C. K., et al. Simultaneous fast measurement of circuit dynamics at multiple sites across the mammalian brain. Nature Methods. 13 (4), 325-328 (2016).
- Sych, Y., Chernysheva, M., Sumanovski, L. T., Helmchen, F. High-density multi-fiber photometry for studying large-scale brain circuit dynamics. Nature Methods. 16 (6), 553-560 (2019).
- Akam, T., Walton, M. E. pyPhotometry: Open source Python based hardware and software for fiber photometry data acquisition. Scientific Reports. 9 (1), 3521(2019).
- Sparta, D. R., et al. Construction of implantable optical fibers for long-term optogenetic manipulation of neural circuits. Nature Protocol. 7 (1), 12-23 (2011).
- Stamatakis, A. M., et al. Lateral Hypothalamic Area Glutamatergic Neurons and Their Projections to the Lateral Habenula Regulate Feeding and Reward. The Journal of Neuroscience. 36 (2), 302-311 (2016).
- Tervo, G. D., et al. A Designer AAV Variant Permits Efficient Retrograde Access to Projection Neurons. Neuron. 92 (2), 372-382 (2016).
- Yu, K., da Silva, P., Albeanu, D. F., Li, B. Central Amygdala Somatostatin Neurons Gate Passive and Active Defensive Behaviors. The Journal of Neuroscience. 36 (24), 6488-6496 (2016).
- Falkner, A. L., Grosenick, L., Davidson, T. J., Deisseroth, K., Lin, D. Hypothalamic control of male aggression-seeking behavior. Nature Neuroscience. 19 (4), 596-604 (2016).
- Ren, J., et al. Anatomically Defined and Functionally Distinct Dorsal Raphe Serotonin Sub-systems. Cell. 175 (2), 472-487 (2018).
- Barnett, L. M., Hughes, T. E., Drobizhev, M. Deciphering the molecular mechanism responsible for GCaMP6m’s Ca2+-dependent change in fluorescence. PLOS ONE. 12 (2), 0170934(2017).
- Sun, F., et al. A Genetically Encoded Fluorescent Sensor Enables Rapid and Specific Detection of Dopamine in Flies, Fish, and Mice. Cell. 174 (2), 481-496 (2018).
- Patriarchi, T., et al. Ultrafast neuronal imaging of dopamine dynamics with designed genetically encoded sensors. Science. 360 (6396), (2018).
- Feng, J., et al. A Genetically Encoded Fluorescent Sensor for Rapid and Specific In Detection of Norepinephrine. Neuron. 102 (4), 745-761 (2019).
- Akerboom, J., et al. Genetically encoded calcium indicators for multi-color neural activity imaging and combination with optogenetics. Frontiers in Molecular Neuroscience. 6, 1-29 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. eLife. 5, (2016).
- Wang, H., Jing, M., Li, Y. Lighting up the brain: genetically encoded fluorescent sensors for imaging neurotransmitters and neuromodulators. Current Opinion in Neurobiology. 50, 171-178 (2018).
- Lu, L., et al. Wireless optoelectronic photometers for monitoring neuronal dynamics in the deep brain. Proceedings of the National Academy of Sciences. 115 (7), 1374-1383 (2018).
- Jennings, J. H., et al. Visualizing Hypothalamic Network Dynamics for Appetitive and Consummatory Behaviors. Cell. 160 (3), 516-527 (2014).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
