Dit protocol maakt de bereiding van dwarse delen van graanzaden (bijv. Rijst) mogelijk voor de analyse van endosperm en zetmeelkorrelmorfologie met behulp van scanning elektronenmicroscopie.
Methodenartikel
Dwarsdoorsnede van rijpe rijst(Oryza sativa L.) Kernels voor scanning elektronenmicroscopie beeldvorming met behulp van pipet tips als immobilisatie ondersteuning
In dit artikel
Samenvatting
Samenvatting
Zetmeelkorrels (SG's) vertonen verschillende morfologieën, afhankelijk van de plantensoort, vooral in het endosperm van de Poaceae-familie. Fenotypering van endosperm kan worden gebruikt om genotypen te classificeren op basis van SG-morfotype met behulp van scanning elektronenmicroscopische (SEM) analyse. SG's kunnen worden gevisualiseerd met behulp van SEM door de kernel (pericarp, aleuronlagen en endosperm) te snijden en de organellaire inhoud bloot te leggen. De huidige methoden vereisen dat de rijstkorrel wordt ingebed in plastic hars en wordt gesneden met behulp van een microtoom of ingebed in een afgeknotte pipetpunt en met de hand wordt gesneden met behulp van een scheermesje. De eerste methode vereist gespecialiseerde apparatuur en is tijdrovend, terwijl de laatste een nieuwe reeks problemen introduceert, afhankelijk van het genotype van rijst. Vooral krijtachtige rijstvariëteiten vormen een probleem voor dit type sectie vanwege de brokkelige aard van hun endospermweefsel. Hier gepresenteerd is een techniek voor het bereiden van doorschijnende en krijtachtige rijstkorrelsecties voor microscopie, waarvoor alleen pipetpunten en een scalpelmes nodig zijn. Het bereiden van de secties binnen de grenzen van een pipetpunt voorkomt dat rijstkorrel-endosperm verbrijzelt (voor doorschijnende of 'glasachtige' fenotypen) en afbrokkelt (voor krijtachtige fenotypen). Met behulp van deze techniek kunnen endosperm celpatronen en de structuur van intacte SG's worden waargenomen.
Inleiding
Zetmeelkorrels (SG's) vertonen verschillende morfologieën, afhankelijk van de plantensoort, vooral in het endosperm van de Poaceae-familie 1,2. Endosperm fenotypering kan worden gebruikt om genotypen te classificeren op basis van SG-fenotype met behulp van scanning elektronenmicroscopische analyse. SG's kunnen worden gevisualiseerd met behulp van scanning elektronenmicroscopie (SEM) door de kern te snijden en de endosperm celwanden weg te wrikken2.
Het doel van deze techniek is om gemakkelijk dwarse rijstkorrelsecties te bereiden, uitsluitend voor de snelle SEM-analyse. De ontwikkeling van deze techniek werd gemotiveerd door de noodzaak van een snelle doorsnedebenadering waarbij monsters onmiddellijk voor visualisatie met minimale apparatuur worden voorbereid voor SEM-microscopie.
Deze techniek omvat het inbrengen van de gedopte rijstkorrel in de pipetpunt voor volledige immobilisatie. Dit is vooral belangrijk bij het doorsnijden van krijtachtige rijstkorrelfenotypen, die brokkelig zijn en gemakkelijk afbrokkelen onder druk3. Krijtachtigheid is een ongewenste kwaliteit in rijst omdat het het uiterlijk van de pit beïnvloedt en ervoor zorgt dat de pit gemakkelijk breekt tijdens het polijsten en malen3. Chalkiness presenteert zich als een ondoorzichtig gebied in een dwarsdoorsnede van de kern dat met het blote oog kan worden waargenomen; op microscopisch niveau wordt krijtachtigheid gekenmerkt door kleine, los verpakte zetmeelkorrels. Oorzaken van krijtachtigheid kunnen genetisch4,5 of omgeving6,7 zijn.
De doorsneden van graanzaad zijn van oudsher bereid met behulp van chemische bevestigingsmethoden en secties na monsterneming in paraffinewas of een andere vaste matrix4,8,9,10. In 2010 werd de Matsushima-methode geïntroduceerd als een manier om ingewikkelde en tijdrovende monsterbereiding van rijstkorrels te voorkomen4. Deze methode omvatte het inbrengen van de gedopte rijstkorrel in een afgeknotte pipetpunt. De punt wordt stationair gehouden door een bloktrimmer en dunne, gedeeltelijke endospermsecties worden geoogst met behulp van een handmesje. Een andere snelle techniek die in 2016 werd ontwikkeld, maakte het mogelijk om een grote verscheidenheid aan droge zaden dun te maken, waaronder kalkachtige variëteiten10. Deze methoden motiveerden de ontwikkeling van de hier gepresenteerde snelle techniek.
Deze nieuwe techniek is geschikt voor onderzoekers die intacte dwarsdoorsneden van rijstkorrels willen verkrijgen voor endospermfenotypering en zetmeelmorfologie-analyse met behulp van SEM.
Dit protocol vertegenwoordigt een aanpassing van de Matsushima afgeknotte pipetpuntmethode4, met verschillende opmerkelijke wijzigingen: (1) kernels worden op geen enkel punt van de techniek geïmpliceerd; (2) Noch een bloktrimmer, noch een ultramicrotoom zijn nodig om de secties voor te bereiden. Een wild type 'doorschijnende' cultivar (Oryza sativa L. ssp. japonica cv. Nipponbare) en een gemuteerde 'krijtachtige' lijn van Nipponbare (ssg1, ondermaats zetmeelkorrel1)4 werden in deze studie onderzocht. Deze twee cultivars werden geselecteerd voor de analyse hier om de technische en visuele verschillen in de verwerking van doorschijnende en krijtachtige rijstsecties aan te tonen.
Protocol
1. Bereiding van de dwarse rijstsectie
- Ontdoe droge, intacte pitten zoals weergegeven in figuur 1A.
- Maak de kafjes los en verberg de rijstkorrels door de pitten tussen twee platte rubberen stoppen te malen. Verwijder indien nodig de gedopte rijstkorrels uit de pluim.
- Plaats een enkele pit op een platte rubberen stop op een werkbank(figuur 1B). Zorg ervoor dat deze stop stil blijft staan.
- Gebruik een tweede platte rubberen stop(figuur 1C)om de kern te schuren door deze tegen de eerste rubberen stop te draaien, met voldoende druk(figuur 1D). Verwijder schillen uit de kernel en zorg ervoor dat het endosperm niet verbrijzelt. Verwijder de resterende schil met een fijne tang. Een ontdopte kern is weergegeven in figuur 1E.
- Plaats met behulp van een fijne tang een individuele gedoopte kern in een plastic pipetpunt (250 μL grootte, één zaadje/punt) (Figuur 1F). Zorg ervoor dat het embryonale uiteinde van de kern naar het (conische) uiteinde van de pipetpunt is gericht(figuur 1G).
OPMERKING: Als u de kernel op deze manier inbrengt, zorgt u ervoor dat de kernel zo goed mogelijk in de pipetpunt past, omdat de kernel smaller is naar het proximale uiteinde. - Plaats een tweede pipetpunt van 250 μL om de kernel in de pipetpunt te dwingen en de kernel onbeweeglijk te houden tijdens het sectieen, waarbij u ervoor moet zorgen dat de kernel niet wordt beschadigd of de tweede pipetpunt wordt gebogen(figuur 1H). De juiste 'telescoop'-assemblage is aangegeven in figuur 1I.
- Leg de pipetpunt plat op een werkbank en houd deze met de hand op zijn plaats(figuur 1J). Gebruik met de andere hand een scherp scalpelmesje (nr. 20) om door het midden van de kernel te snijden en snijd het uiteinde van de pipetpunt eraf(figuur 1K). Snijd met behulp van het scalpel 1 mm dikke delen van de rijstkorrel(figuur 1L).
OPMERKING: Het kernelgedeelte is goed ingesloten in een annulus van plastic(figuur 1M). De gemiddelde sectiedikte voor drie voorbeeldgenotypen is te vinden in tabel 1. Secties die aanzienlijk dunner zijn dan 1 mm zullen breken of afbrokkelen. Het is belangrijk op te merken uit welk deel van de kernel elke sectie afkomstig is als dit experiment wordt uitgevoerd op verschillende rijstvariëteiten ter vergelijking, omdat de morfologie van zetmeel varieert gedurende het endosperm11.
2. Gereflecteerde lichtmicroscopie van dwarse rijstsecties
- Gebruik een fijne tang om de dwarse rijstsecties (bereid in sectie 1) op een zwart stuk zwaar zwart papier te plaatsen.
- Verkrijg lichtbeelden van dwarsdoorsneden van Nipponbare met behulp van een stereomicroscoop met gemonteerde zwanenhalzen voor schuine verlichting, zoals weergegeven in figuur 1N-S.
- Observeer endosperm morfologie onder ten minste 10x vergroting.
OPMERKING: Elke epilichtbron heeft de voorkeur boven heldere veldmicroscopie, omdat secties die met deze techniek zijn verkregen niet dun genoeg zijn om het licht door te laten.
3. Scanning elektronenmicroscopie van dwarse rijstsecties
- Plaats de monsters op een koolstofschijf die vastzit aan een aluminium stub en plaats ze op een monsterhouder voor ladingsreductie. Verwijder de plastic ring van de pipetpuntbevestiging met behulp van een fijne tang om te voorkomen dat het plastic in het vacuümapparaat van de SEM terechtkomt.
OPMERKING: Afbeeldingen van endospermcellen, SG's en subgranules worden verkregen met behulp van een sem-machine op het bureaublad waarvoor geen monsters hoeven te worden gesputterd. - Verkrijg de beelden met behulp van een zeer gevoelige multi-mode backscatter electron (BSE) detector bij 10 kV.
Resultaten
Wild type Nipponbare (Figuur 2A) en ssg1 secties (Figuur 2B) werden onderzocht onder drie vergrotingen: 260x, 920x en 4200x. Deze techniek maakt het mogelijk om secties van voldoende kwaliteit te bereiden om de gehele endospermcel (figuur 3A), samengestelde zetmeelkorrels (figuur 3B) en individuele subgranules (figuur 3C) te observeren. Gedoopte pitten hebben meer tijd nodig om te verwerken dan gepolijste pitten, omdat de droge schillen moeten worden verwijderd door slijtage voordat ze worden doorsneden. Krijtachtige kernels hebben ook meer tijd nodig om te verwerken dan gepolijste doorschijnende kernels, omdat ervoor moet worden gezorgd dat de kernel niet verbrijzelt tijdens het sectieen. Een goed bereide rijstsectie moet ongeveer 0,9 mm dik zijn(tabel 1)met minimale tot geen verbrijzeling van het endosperm (figuur 1N) en intacte pericarp- en aleuronlagen (figuur 1O). Onjuiste plaatsing van het scalpel op de pipetpunt bij het doorsnijden kan leiden tot 'gechipte' secties(figuur 1P). Evenzo toonden heldere veldbeelden van optimale dwarsdoorsneden van ssg1 (figuur 1Q) intacte endosperm-, pericarp- en aleuronlagen intact en beschikbaar voor visualisatie(figuur 1R). Een gebroken krijtachtige kernelsectie (Figuur 1S) kan nog steeds bruikbaar zijn voor visualisatie als het enige doel is om SG's te observeren, maar het endosperm-celpatroon zal niet zichtbaar zijn. Een gebroken sectie kan moeilijk te hanteren zijn voor analyse. Meer afschuiving van endosperm celwanden werd waargenomen bij het wilde type Nipponbare, omdat de cellen dichter opeengepakt en minder brokkelig zijn dan de ssg1-pitten. Er werd geen afschuiving van endospermcellen waargenomen in de ssg1-secties en samengestelde zetmeelkorrels zijn intact.
Figuur S1 toont de betrouwbaarheid van de resultaten met behulp van de 'telescoop'-techniek om rijstkorrels te segmenteren. Rijstlijnen geïdentificeerd als doorschijnende kernel producenten - wild type Resistent Zetmeel (RS) hybride lijn Xieyou 7954 (Oryza sativa L. ssp. indica)12,13,14 ( FiguurS1A) en kobalt-gegenereerde mutant RS11113,15 ( FiguurS1B) produceerde secties waardoor licht zichtbaar was met behulp van een stereomicroscoop. Uit de bijbehorende SEM-beelden bleek dat deze lijnen het 'normale' rijst-endospermfenotype produceren: dicht opeengepakte, veelvlakige zetmeelkorrels. Krijtachtige kernelproducenten, commerciële variëteit Yi-Tang16 (Figuur S1C) en RS413, een mutant van RS11115 (Figuur S1D), vertoonden witte, ondoorzichtige kernelsecties. De overeenkomstige SEM-afbeeldingen vertoonden een duidelijk andere morfologie in vergelijking met de wildtype doorschijnende RS-achtergrondlijn: zetmeelkorrels waren rond en los verpakt. Wild type Xiushui 11 (Oryza sativa L. ssp. japonica) (Figuur S1E) en zijn mutant, KMD1 (Kemingdao1), die het Cry1Ab-gen tot expressie brengen om insectenpredatie te remmen17,18,19 ( FiguurS1F) vertoonden secties en endosperm morfotypen vergelijkbaar met de doorschijnende RS-lijnen.
De hier gepresenteerde techniek is optimaal voor het bereiden van monsters van krijtachtige rijstkorrels voor fenotypische analyse, maar biedt ook voordelen voor het snijden van doorschijnende rijstkorrelfenotypen20:het snijden van de monsters met behulp van druk van bovenaf vermindert het risico op verbrijzeling van het endosperm en dislocatie. Monsters kunnen eenvoudig binnen enkele seconden worden bereid(tabel 2). Meerdere genotypen werden geanalyseerd met behulp van deze techniek om de werkzaamheid ervan te testen(tabel 3). Zoals weergegeven in figuur S2,kan deze techniek worden toegepast op zaden van andere soorten. Het model monocot Brachypodium distachyon produceert zeer harde zaden die alleen B-korrelzetmeel21bevatten , die puroindoline A missen, een eiwit dat zachtheid verleent aan zetmeelkorrels22. Het was nog steeds mogelijk om een intacte dwarsdoorsnede te verkrijgen (figuur S2A). Het verkrijgen van een intacte dwarsdoorsnede van zachte witte wintertarwe (SWWW) was een uitdaging, maar kan worden uitgevoerd(figuur S2B). SWWW zaden zijn rijk aan puroindoline A en groot in vergelijking met B. distachyon zaden en rijstpitten. Deze zaden brokkelen vaak af bij het delen met behulp van de telescoopassemblage.
| Genotype | Gemiddelde sectiebreedte (μm) met behulp van telescoopassemblage | Gemiddelde sectiebreedte (μm) uit de vrije hand |
| Tepponbare (gedopte) | 971,7 ± 152,4ab | 1059,571 ± 394,2ab |
| Xieyou 7954 | 825,1 ± 128,3b | 1306.187 ± 179.1een |
| Rs4 | 910,6 ± 165,0ab | 1126,694 ± 395,3ab |
| De middelen gevolgd door dezelfde letters zijn niet significant verschillend bij P < 0,01 met behulp van een eenrichtingsvariantieanalyse (ANOVA) en de test van Tukey (n = 10). Statistische analyses werden uitgevoerd met behulp van JMP 15 software. | ||
Tabel 1: Gemiddelde dikte van de kernelsectie.
| Genotype | Gemiddelde tijd(en)* |
| Tepponbare (gedopte) | 14,7 ± 1,36a |
| Xieyou 7954 | 9,81 ± 0,98b |
| Rs4 | 11,9 ± 1,28c |
| *Met behulp van de telescoopassemblage. | |
| De middelen gevolgd door dezelfde letters zijn niet significant verschillend bij P < 0,01 met behulp van een eenrichtingsvariantieanalyse (ANOVA) en de test van Tukey (n = 10). Statistische analyses werden uitgevoerd met behulp van JMP 15 software. | |
Tabel 2: Gemiddelde voorbereidingstijd van het monster.
| Genotype | Achtergrond | Kwaliteit |
| Tepponbare | Wild type | Doorschijnend |
| Ondermaats zetmeelkorrel1 (ssg1) | Tepponbare | Krijt |
| Resistent zetmeel (RS) Xieyou 7954 | Wild type | Doorschijnend |
| Rs111 | Xieyou 7954 | Doorschijnend |
| Rs4 | Rs111 | Krijt |
| Yi-Tang, 'New Life', merk Lujuren | Xieyou 7954 | Krijt |
| Xiushui 11 Zoekertjes | Wild type | Doorschijnend |
| Kemingdao1 (KMD1) | Xiushui 11 Zoekertjes | Doorschijnend |
Tabel 3: Rijstgenotypes onderzocht in deze studie.
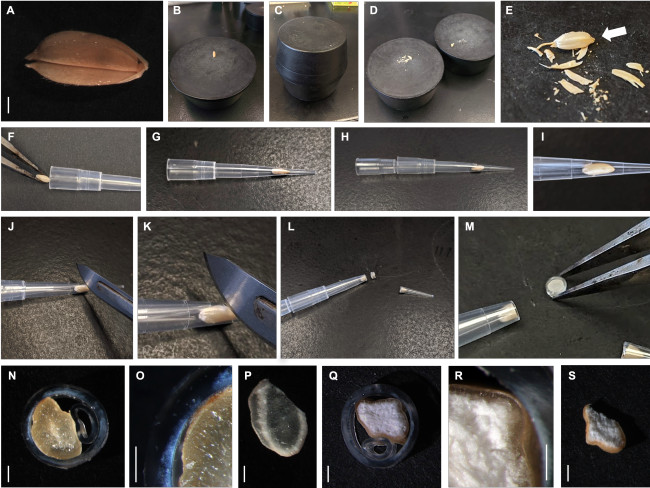
Figuur 1: Bereiding van dwarse rijstsecties. (A) Wild type Nipponbare pit met intacte schil. (B). Kernel geplaatst op een platte rubberen stop met een diameter van vier inch. (C) Kaf werd verwijderd door de kern te slijpen tussen twee aansluitende rubberen stoppen. D)Vande rijstkorrel is de schil gescheiden. (E) Close-up van gedopte rijstkorrels. Embryo-einde is geïndiceerd. (F) Inbrengen van de pit in de pipetpunt met behulp van een fijne tang. (G) De pit werd in het distale uiteinde van de pipetpunt geplaatst. (H) Inbrengen van de tweede pipetpunt om de kern te immobiliseren voor sectie (de "telescoop"-assemblage). (I) De rijstkorrel werd goed in het distale uiteinde van de pipetpunt aangebracht. (J) Verdeling van de rijstkorrel in de assemblage. (K) Close-up van de sectiesnede. (L) Een gedeelte van de kern omsloten door de plastic annulus. (M) Close-up van de dwarsdoorsnede. (N) Dwarsdoorsnede van het wilde type Nipponbare. (O) Close-up van het endosperm binnen het wilde type Nipponbare sectie. (P) Slechte, suboptimale sectie van wild type Nipponbare kernel. (Q) Dwarsdoorsnede van Nipponbare mutant ssg14. (R) Close-up van het endosperm binnen de sectie ssg1. (S) Slechte, suboptimale sectie van ssg1. Bar (panelen A, N-S) = 1 mm. Hele rijstkorrels en secties werden in beeld gebracht met behulp van een stereomicroscoop met een digitale zoomcamera en zwanenhalsverlichting. Klik hier om een grotere versie van deze figuur te bekijken.
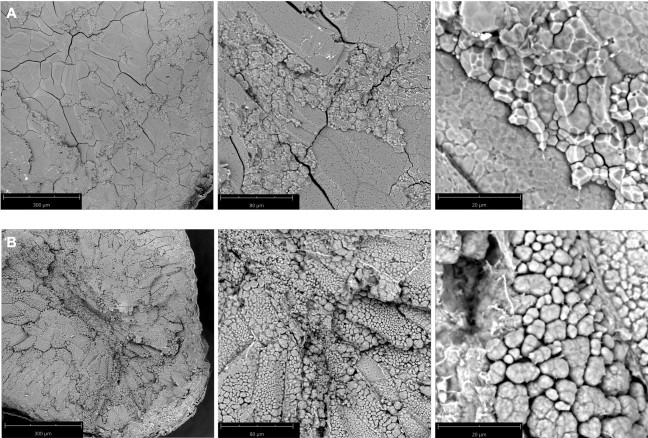
Figuur 2: SEM-afbeeldingen van dwarse kernelsecties. (A) Wild type Nipponbare, een doorschijnende cultivar. De samengestelde zetmeelkorrels werden stevig aan elkaar gecementeerd; (B) Nipponbare mutant ssg14, een krijtachtig fenotype. De samengestelde zetmeelkorrels waren los verpakt en missen het cementgebonden karakter van het wilde type Nipponbare zetmeelmorfotype. Vergroting van links naar rechts: 260x, 920x en 4200x. De lengte van de staaf wordt aangegeven in panelen. Klik hier om een grotere versie van deze figuur te bekijken.
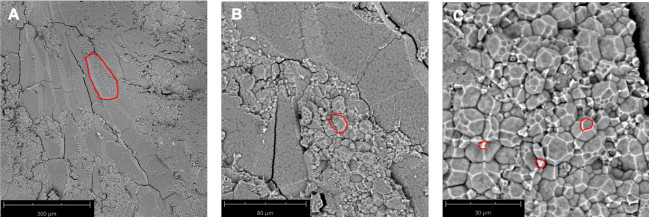
Figuur 3: SEM microscopische anatomie van een dwarse kernelsectie van Xiushui 11. (A) Een enkele endospermcel is rood omlijnd. 260x vergroting. (B) Een samengesteld zetmeelkorrel is rood omlijnd. 920x vergroting. (C) Meerdere zetmeelsubgranulaat zijn rood omlijnd. 2250x vergroting. Staaflengtes worden aangegeven in de panelen. Klik hier om een grotere versie van deze figuur te bekijken.
Figuur S1: Dwarsdoorsneden van andere rijstgenotypes die met behulp van deze techniek voor SEM zijn bereid. (A) Resistent zetmeel (RS) Xieyou 795412. (B) RS111, een transparante mutant met hoge RS van 795413. (C) RS4, een krijtachtige mutant van RS11115. (D) Yi-Tang, een commerciële variëteit van hoge amylose rijst16. (E) Xiushui 11. (F) KMD1 (Kemingdao1)17,18,19. 10x vergroting voor heldere veldbeelden. Witte balk = 1 mm. 2250x vergroting voor SEM-beelden. Staaflengtes worden aangegeven in de panelen. Klik hier om deze figuur te downloaden.
Figuur S2: Techniek is nuttig voor andere zaden. (A) Dwarsdoorsnede van vals paars broom (Brachypodium distachyon L. accession Bd21) zaad. (B) Dwarsdoorsnede van zacht wit wintertarwe (Triticum aestivum L. cv. Augusta) zaad. Helder veld, 20x vergroting. Bar = 1 mm. Klik hier om deze figuur te downloaden.
Discussie
De hier gepresenteerde techniek vertegenwoordigt een snelle, eenvoudige en scherpe benadering van het voorbereiden van dwarsdoorsneden van dwarsdoorgangen voor desktop SEM-visualisatie. Deze sectioning-techniek maakt de snelle observatie mogelijk van endospermstructuur, endosperm celvorm, grootte en patroon, samengestelde korrels en zetmeelmorfologie. Met het oog op fenotypering van endosperm en kiemplasmascreening is het van cruciaal belang om een volledige doorsnede van de rijstkorrel te verkrijgen4,23,24. Het is van het grootste belang om de pit volledig in de pipetpunt in te brengen om te voorkomen dat de druk van het scalpelmes het endosperm dwingt om af te brokkelen of te verbrijzelen. Mits de 'telescoop'-assemblage goed is geconstrueerd, kunnen monsters binnen 15 seconden worden voorbereid voor visualisatie (tabel 2) met behulp van materialen die al in de hand zijn in een typische laboratoriumomgeving. Deze techniek is toepasbaar op de doorsnede van elk ellipsoïdaal zaad met een diameter van ongeveer vier millimeter op het breedste punt. Zaden van het modelgras Brachypodium distachyon (Figuur S2A) kunnen op dezelfde manier worden gesneden, maar blijven niet ingesloten in de annulus. Grotere zaden, zoals tarwe, breken gemakkelijk en vereisen zorg bij het sectieren(figuur S2B).
Er zijn echter verschillende beperkingen aan de hier gepresenteerde techniek. Secties verkregen met behulp van deze techniek zijn niet dun genoeg om het licht door te laten, wat het gebruik van deze techniek verbiedt voor op doorgelaten licht gebaseerde microscopische benaderingen zoals helder veld (500 μm maximale monsterdikte voor rijstkorrelsecties25)en transmissie-elektronenmicroscopie (TEM) (500 nm maximale monsterdikte26 ). Het gebruik van een pipetpunt als de sectie 'matrix' beperkt ook de grootte van het zaad dat met deze techniek kan worden gesneden. Verdere probleemoplossing zou nodig zijn om deze techniek aan te passen voor soorten die sterk verschillen van rijst, en de grootte van de 'matrix' wordt beperkt door de grootte van de pipetpunten die beschikbaar zijn voor aankoop.
Een ander duidelijk voordeel dat deze techniek biedt, is de kwaliteit van monsters die kunnen worden geproduceerd uit krijtachtige fenotype rijstkorrels. Het is vermeldenswaard dat zelfs de Matsushima-studie toegaf dat het moeilijk was om doorsneden te verkrijgen met behulp van die specifieke methode voor krijtachtige fenotypen4, zoals gerepliceerd in deze studie met het oog op vergelijking (Figuur 1S). In hun geval werd het noodzakelijk om hun krijtachtige rijstmonsters chemisch te fixeren en ze in hars te verankeren voor secties. De nieuwe techniek, in combinatie met desktop SEM-beeldvorming, stelt de onderzoeker in staat om gemakkelijk dwarsdoorsneden van rijstkorrels voor microscopie te bereiden met meer consistentie dan zonder immobilisatieondersteuning(tabel 3).
In het nieuwe tijdperk van fenomics en metabolomics is het belangrijk om gemuteerde lijnen en transposon-tagged bibliotheken te monitoren om de functie en het belang van zetmeel in zaden beter te begrijpen. Bovendien bezit de Internationale Rijstgenbank meer dan 130 000 rijsttoetredingen27. Een snelle zaadfenotyperingstechniek zoals die hier wordt gepresenteerd, zou de classificatie en bemonstering voor voedingskwaliteit versnellen28. Ten slotte kan deze techniek nuttig zijn in het licht van de oprukkende gevolgen van klimaatverandering. Seizoensgebonden stress bij hoge temperaturen tijdens het vullen van graan was al geïdentificeerd als een belangrijke oorzaak van krijtachtigheid6, maar recente studies hebben de stijgende wereldwijde temperaturen betrokken bij het verhogen van de krijtachtigheid van rijstopbrengsten7,29. Dergelijke versnelde fenotypering van endosperm kan helpen een breed agrarisch beeld te geven van het effect van stijgende wereldwijde temperaturen.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
De auteurs zijn Systems for Research (SFR Corp.) dankbaar voor het gebruik van hun Phenom ProX Desktop SEM-instrument, evenals voor de technische bijstand van Maria Pilarinos (Systems for Research (SFR) Corp.) en Chloë van Oostende-Triplet (Cell Biology and Image Acquisition Core Facility, Faculty of Medicine, University of Ottawa). Financiering werd verstrekt door het Low Carbon Innovation Fund (LCIF) van het ministerie van Economische Ontwikkeling, Werkgelegenheid en Handel van de regering van Ontario en Proteins Easy Corp.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| JMP 15 | SAS | N/A | N/A |
| Leit Adhesive Carbon Tabs 12 mm (Pack of 100) | Agar Scientific | AGG3347N | N/A |
| Phenom Pro Desktop SEM | Thermo Scientific | PHENOM-PRO | N/A |
| Pipette Tips RC UNV 250 µL | Rainin | 17001116 | N/A |
| SEM Pin Stub Ø12.7 Diameter Top, Standard Pin, Aluminium | Micro to Nano | 10-002012-50 | N/A |
| Shandon Microdissecting Fine Tips Thumb Forceps, Fine Tips, 12.7 cm | Thermo Scientific | 3120019 | N/A |
| Shandon Scalpel Blade No. 20, Sterile, 4.5 cm | Thermo Scientific | 28618256 | N/A |
| Shandon Stainless-Steel Scalpel Blade Handle | Thermo Scientific | 5334 | N/A |
| Zeiss V20 Discovery Stereomicroscope | Zeiss | N/A | N/A |
Referenties
- James, M. G., Denyer, K., Myers, A. M. Starch synthesis in the cereal endosperm. Current Opinion in Plant Biology. 6 (3), 215-222 (2003).
- Shapter, F. M., Henry, R. J., Lee, L. S. Endosperm and starch granule morphology in wild cereal relatives. Plant Genetic Resources. 6 (2), 85-97 (2008).
- Ashida, K., Iida, S., Yasui, T. Morphological, physical, and chemical properties of grain and flour from chalky rice mutants. Cereal Chemistry. 86 (2), 225-231 (2009).
- Matsushima, R., Maekawa, M., Fujita, N., Sakamoto, W. A rapid, direct observation method to isolate mutants with defects in starch grain morphology in rice. Plant and Cell Physiology. 51 (5), 728-741 (2010).
- Zhao, X., et al. Identification of stable QTLs causing chalk in rice grains in nine environments. Theoretical and Applied Genetics. 129 (1), 141-153 (2016).
- Nagato, K., Ebata, M. Effects of high temperature during ripening period on the development and the quality of rice kernels. Japanese Journal of Crop Science. 34 (1), 59-66 (1965).
- Zhao, X., Fitzgerald, M. Climate change: implications for the yield of edible rice. PLoS One. 8 (6), 66218(2013).
- Zhao, Z. K., Mu, T. H., Zhang, M., Richel, A. Effects of high hydrostatic pressure and microbial transglutaminase treatment on structure and gelation properties of sweet potato protein. LWT - Food Science and Technology. 115, 108436(2019).
- Feiz, L., et al. Puroindolines co-localize to the starch granule surface and increase seed bound polar lipid content. Journal of Cereal Science. 50 (1), 91-98 (2009).
- Zhao, L., Pan, T., Guo, D., Wei, C. A simple and rapid method for preparing the whole section of starchy seed to investigate the morphology and distribution of starch in different regions of seed. Plant Methods. 14 (1), 16(2018).
- Zhao, L., Pan, T., Cai, C., Wang, J., Wei, C. Application of whole sections of mature cereal seeds to visualize the morphology of endosperm cell and starch and the distribution of storage protein. Journal of Cereal Science. 71, 19-27 (2016).
- Li, C., Dong, S., Li, G., Yuan, G., Dong, W. Breeding and application of the new combination of hybrid rice "Xieyou 7954". Journal of Zhejiang University (Agriculture and Life Sciences). 19 (3), 179-181 (2002).
- Shu, X., Jia, L., Ye, H., Li, C., Wu, D. Slow digestion properties of rice different in resistant starch. Journal of Agricultural and Food Chemistry. 57 (16), 7552-7559 (2009).
- Zhou, H., et al. Critical roles of soluble starch synthase SSIIIa and granule-bound starch synthase Waxy in synthesizing resistant starch in rice. Proceedings of the National Academy of Sciences. 113 (45), 12844-12849 (2016).
- Yang, C. Z., et al. Starch properties of mutant rice high in resistant starch. Journal of Agricultural and Food Chemistry. 54, 523-528 (2006).
- Zhou, Y., Zou, Y., Jiang, Y., Li, B. Detection methods for resistance starch content of Yi-Tang rice and optimization of pretreatment. Food Science and Biotechnology. 36, 416-419 (2017).
- Cheng, X., Sardana, R., Kaplan, H., Altosaar, I. Agrobacterium-transformed rice plants expressing synthetic cryIA(b) and cryIA(c) genes are highly toxic to striped stem borer and yellow stem borer. Proceedings of the National Academy of Sciences of the United States of America. 95 (6), 2767-2772 (1998).
- Liu, H., et al. Rapid detection of P-35S and T-nos in genetically modified organisms by recombinase polymerase amplification combined with a lateral flow strip. Food Control. 107, 106775(2020).
- Shu, Q., et al. Transgenic rice plants with a synthetic cry1Ab gene from Bacillus thuringiensis were highly resistant to eight lepidopteran rice pest species. Molecular Breeding. 6 (4), 433-439 (2000).
- Lisle, A. J., Martin, M., Fitzgerald, M. A. Chalky and translucent rice grains differ in starch composition and structure and cooking properties. Cereal Chemistry. 77 (5), 627-632 (2000).
- Chen, G., et al. Dynamic development of starch granules and the regulation of starch biosynthesis in Brachypodium distachyon: comparison with common wheat and Aegilops peregrina. BMC Plant Biology. 14 (1), 198(2014).
- Giroux, M. J., Morris, C. F. Wheat grain hardness results from highly conserved mutations in the friabilin components puroindoline a and b. Proceedings of the National Academy of Sciences of the United States of America. 95 (11), 6262-6266 (1998).
- Matsushima, R., Hisano, H. Imaging amyloplasts in the developing endosperm of barley and rice. Scientific Reports. 9, 3745(2019).
- Matsushima, R., et al. Amyloplast-localized SUBSTANDARD STARCH GRAIN4 protein influences the size of starch grains in rice endosperm. Plant Physiology. 164 (2), 623-636 (2014).
- Monjardino, P., et al. Development of flange and reticulate wall ingrowths in maize (Zea mays L.) endosperm transfer cells. Protoplasma. 250 (2), 495-503 (2013).
- Tizro, P., Choi, C., Khanlou, N. Sample preparation for transmission electron microscopy. Methods in Molecular Biology. 1897, 417-424 (2019).
- International Rice Genebank. , Available from: www.irri.org (2018).
- Liu, Q. H., Zhou, X. B., Yang, L. Q., Li, T. Effects of chalkiness on cooking, eating and nutritional qualities of rice in two indica varieties. Rice Science. 16 (2), 161-164 (2009).
- Morita, S., Wada, H., Matsue, Y. Countermeasures for heat damage in rice grain quality under climate change. Plant Production Science. 19 (1), 1-11 (2016).
Herprints en machtigingen
