We presenteren een methode die specifiek is afgestemd op het beeld van de hele hersenen van volwassen Drosophila tijdens gedrag en als reactie op stimuli. Het hoofd is gepositioneerd om optische toegang tot de hele hersenen mogelijk te maken, terwijl de vlieg zijn benen en de antennes kan bewegen, de punt van de proboscis en de ogen zintuiglijke stimuli kunnen ontvangen.
Methodenartikel
Volwassen Drosophila melanogaster voorbereiden op whole brain imaging tijdens gedrags- en stimulireacties
In dit artikel
Samenvatting
Samenvatting
We presenteren een methode die speciaal is ontwikkeld om het hele Drosophila-brein in beeld te brengen tijdens voortdurend gedrag zoals lopen. Hoofdfixatie en dissectie zijn geoptimaliseerd om hun impact op gedrag te minimaliseren. Dit wordt eerst bereikt door een houder te gebruiken die bewegingshinder minimaliseert. De achterkant van het hoofd van de vlieg is aan deze houder gelijmd onder een hoek die optische toegang tot de hele hersenen mogelijk maakt met behoud van het vermogen van de vlieg om te lopen, verzorgen, ruiken, proeven en zien. De achterkant van het hoofd wordt ontleed om weefsels in het optische pad en spieren te verwijderen die verantwoordelijk zijn voor artefacten voor hoofdbeweging. De vlieghersenen kunnen vervolgens worden afgebeeld om hersenactiviteit vast te leggen, bijvoorbeeld met behulp van calcium- of spanningsindicatoren, tijdens specifiek gedrag zoals lopen of verzorgen, en als reactie op verschillende stimuli. Zodra de uitdagende dissectie, die veel oefening vereist, onder de knie is, maakt deze techniek het mogelijk om rijke datasets vast te leggen die hele hersenactiviteit relateeren aan gedrag en stimulusreacties.
Inleiding
Beeldvorming hersenactiviteit met behulp van verschillende technieken hebben het begrip van de hersenfunctie verdiept. Bij mensen hebben hersenbeeldvormingstechnieken belangrijke beperkingen: terwijl functionele magnetische resonantiebeeldvorming (fMRI) een spatio-temporele resolutie biedt die ver onder de resolutie van één neuron ligt, bieden snelle technieken zoals elektro-encefalografie (EEG) alleen indirecte en gedeeltelijke toegang tot de hersenen1. In voldoende grote diermodellen zoals knaagdieren maakt het registreren van fluorescerende activiteitssensoren (bijv. GCaMP) met behulp van op het hoofd gemonteerde microscopen het mogelijk om hersenactiviteit te observeren terwijl het dier in zijn omgeving beweegt2. Toch geven deze technieken momenteel slechts toegang tot een klein deel van de hersenen. Hoofdvaste dieren kunnen uitgebreider worden afgebeeld, maar de dekking is nog steeds gedeeltelijk (bijv. het cortexoppervlak3). Het is alleen bij kleine dieren, zoals de zebravislarven, C. elegans en Drosophila dat de hele hersenen kunnen worden afgebeeld met temporele en ruimtelijke resolutie op het niveau van of dicht bij enkele neuronen4.
D. melanogaster is bijzonder veelbelovend omdat het al lang wordt gebruikt als een genetisch modelorganisme5 en krachtige genetische hulpmiddelen zijn ontwikkeld6. Aangevuld met het nieuwe grootschalige anatomische netwerk afgeleid van elektronenmicroscopie7, zou de vlieg unieke mogelijkheden kunnen bieden om complexe hersendynamiek te bestuderen die op een grootschalig netwerk wordt gegenereerd8. Hoewel de cuticula niet transparant is en dus moet worden verwijderd om de hersenen in beeld te brengen, is in vivo functionele beeldvorming sinds de eerste studie in 2002steeds gebruikelijker geworden 9 en zijn er al verschillende protocollen gepubliceerd. Deze methoden omvatten echter ofwel het scheiden van de vliegkop van het lichaam10, het ernstig beperken van de bewegingen van de vlieg en / of reacties op stimuli11,12,13,14,15, of het toestaan van slechts een klein deel van de hersenen om te worden afgebeeld9,16,25 , 26,27,17 ,18,19,20,21,22,2. Om deze toch krachtige benaderingen aan te vullen, hebben we onlangs een voorbereiding ontwikkeld om het hele brein in beeld te krijgen tijdens gedrag en reacties op verschillende stimuli28.
Hier bouwen we voort op deze studie om een methode te presenteren die speciaal is ontwikkeld om het hele brein in beeld te brengen, terwijl de vlieg semi-naturalistisch gedrag vertoont (d.w.z. lopen en verzorgen) en reageert op zintuiglijke stimuli. Dit wordt bereikt door een observatiehouder te gebruiken die is ontworpen om toegang te geven tot de hele hersenen vanaf de dorsaal-posterieure kant, terwijl de antennes en slurf intact blijven en de vlieg zijn benen laat bewegen om te lopen (bijvoorbeeld op een bal met luchtkussen). Stappen voor het ontleden van de achterkant van het hoofd zijn verfijnd voor snelheid, reproduceerbaarheid en om hun effect op de levensvatbaarheid en mobiliteit van de vlieg te minimaliseren.
Protocol
Alle stappen worden uitgevoerd onder een stereomicroscoop.
1. Voorbereiding van de houder
- Print de houder 'FlyholderVJove.stl' (zie Aanvullend Materiaal) met een 3D-printer of laat deze printen met behulp van online diensten (figuur 1A). Zowel SLS (Nylon PA12) als multijet fusion (PA12) zijn geschikt.
- Maak de hoofdsleuf.
- Plaats een stuk plakband rechthoekig op een vlak oppervlak. Snijd een plak van ongeveer 5 mm x 1 cm. Snijd de halssleuf (~400 x 400 μm) in het midden van de langere zijde van de tape met behulp van vaste parallelle messen (twee scalpelbladen aan elkaar geplakt) om in elke houder dezelfde breedte te garanderen (Afbeelding 1B).
- Plaats de tape over de vlakkere kant van het gat in de houder aan de onderkant (zie figuur 1C en figuur 1D). De tape kan worden vervormd door het met een tang ~ 500 μm rond het gat naar beneden te duwen; dit zal het hinderen van latere vliegbewegingen verder minimaliseren.
- Bedek de tape en de houder vanaf de bovenkant met zwarte nagellak om te voorkomen dat de buffer uitlekt. De zwarte nagellak beschermt ook de ogen van de vlieg tegen het excitatielicht van de microscoop. Laat de nagellak minstens een uur drogen voordat u de houder gebruikt.
- Zodra de nagellak droog is, voegt u ~ 1 μL vet toe in de hoofdsleuf met behulp van een gerold weefsel om ervoor te zorgen dat de lijm de achterkant van de kop van de vlieg niet nat maakt(figuur 2A). Zorg ervoor dat u geen vet buiten de sleuf smeert om te voorkomen dat de lijm blijft plakken.
- Maak de body slot (Figuur 2B).
- Bereid eventueel de tape voor die zal worden gebruikt om het lichaam van de vlieg (zie hieronder) van tevoren te positioneren. Gebruik het ontwerp in figuur 2B (boven) om een stuk van ~2 cm brede tape in tweeën te snijden en 1,5 mm brede plakjes te snijden. Knip 0,3 mm diepe schouders en lichaamssleuf uit. Zorg ervoor dat deze in de houder past.
OPMERKING: De variabiliteit tussen vlieggroottes (met name met geslacht, leeftijd, genotype of soort) kan het noodzakelijk maken om het tapeontwerp aan te passen. Als het hoofd de neiging heeft om slecht gecentreerd te zijn, kan het nuttig zijn om tijdelijk een V-vormig stuk tape over de neksleuf toe te voegen (figuur 3). Breng ook een paar microliters vet aan in de neksleuf en op de V-vormige tape.
- Bereid eventueel de tape voor die zal worden gebruikt om het lichaam van de vlieg (zie hieronder) van tevoren te positioneren. Gebruik het ontwerp in figuur 2B (boven) om een stuk van ~2 cm brede tape in tweeën te snijden en 1,5 mm brede plakjes te snijden. Knip 0,3 mm diepe schouders en lichaamssleuf uit. Zorg ervoor dat deze in de houder past.
2. Het plaatsen van de vlieg
OPMERKING: Een tot vier dagen oude vrouwelijke vliegen zijn ideaal omdat het vrouwelijke hoofd groter is en dus gemakkelijker te ontleden dan het mannelijke hoofd, en jongere vliegen hebben een zachtere cuticula. Voor loopexperimenten kan de activiteit van de vlieg worden verhoogd door de experimenten te matchen met tijden van hogere circadiane activiteit (ZT0 of ZT11), door zoutoplossing te gebruiken die glucose bevat (zoals 103 mM NaCl, 3 mM KCl, 5 mM TES, 8 mM trehalose2H 2 O, 10 mM glucose, 26 mM NaHCO3, 1 mM NaH2PO4,2,5mM CaCl2·2H2O, 4 mM MgCl 2 ·6 H 2 O), door de vlieg uit te hongeren tot 24 uur met een water alleen omgeving. Het knippen van de vleugels ten minste een dag van tevoren helpt ook om pogingen om te vliegen te verminderen en zo de frequentie van het lopen periodes7,29,30te verhogen .
- Vul een Petrischaal of pipet tip box deksel met ijs, plaats een laboratorium weefsel op het ijs en zet de houder ondersteboven op het.
- Breng een vlieg over op ijs om hem te verlammen door hem uit zijn flacon in een buis te zuigen en op het ijs te blazen (zorg ervoor dat het ijs niet gesmolten is waardoor de vlieg zou verdrinken).
- Wanneer de vlieg stopt met bewegen, gebruik dan een doffe tang om deze in de houder te schuiven met de nek in de sleuf (de vlieg kan aan de basis van de vleugel worden gehouden) zoals in figuur 4 (links). De ogen moeten zich op gelijke posities bevinden ten opzichte van de zijkanten van desleuf (figuur 4,midden). Voeg indien nodig 1 μL vet toe aan de bovenkant van de kop om te voorkomen dat de lijm (zie volgende stap) de achterkant van het hoofd bereikt en later verwijdert.
- Bedek het lichaam met een tissue en wat ijs om ervoor te zorgen dat de vlieg niet beweegt tijdens deze stap en de volgende(afbeelding 4,rechts). Een andere optie om te voorkomen dat de benen het hoofd bereiken, is het gebruik van een stuk tape net onder het hoofd (zie figuur 6).
3. Het hoofd vastzetten
- Plaats de kop onder een hoek van ~20° vanuit een volledig posterieure weergave (rond de zijas, zie figuur 5A). Dit is een compromis tussen het verkleinen van de diepte tot beeld en aan de andere kant het vrij houden van het voorbeen om te bewegen en het minimaliseren van de strek van de nek.
- Plaats met opgerold weefsel(figuur 5B)UV-lijm rond het hoofd en vermijd vervuiling van het sensorische interessegebied (antennes, slurf en/of ogen). Trek voor smaakexperimenten de proboscis eruit en voeg lijm toe aan de basis om beweging te voorkomen. Als er geen smaakexperiment is gepland, kan de proboscis het beste in het hoofd worden geduwd en met lijm worden bevestigd om beweging te minimaliseren (figuur 6).
- Hard de lijm 5 s uit met UV-licht. Reinig de omgeving van het hoofd zorgvuldig met een opgerold weefsel om de resterende vloeibare lijm te verwijderen die aan de benen en/of grondsensorische gebieden kan blijven plakken.
OPMERKING: De tape kan worden voorbehandeld met schuurpapier om de hechting van de lijm indien nodig te verhogen. - Gebruik een dunne strook tape of een opgerold weefsel om de benen naar voren te bewegen (als ze dat nog niet zijn), zodat ze bij de volgende stap niet worden beschadigd.
4. Positionering van het lichaam
OPMERKING: Deze stap moet snel worden uitgevoerd; voordat de vlieg herstelt van anesthesie.
- Verwijder het ijsreservoir en draai de houder om. Verwijder het water rond de vlieg met een tissue.
- Plaats de body slot tape (gemaakt in stap 1) over het gat en duw het lichaam van de vlieg voorzichtig naar beneden (Afbeelding 7). Pas op dat u de nek niet te veel uitrekt.
5. Het dichten van het gat
- Bedek de resterende grote gaten met tape.
- Voeg ~ 1 μL vet toe aan de achterkant van het hoofd en in het nekgebied om ervoor te zorgen dat daar geen lijm nat wordt.
- Verf met een opgerold weefsel UV-lijm rond en bovenop de tape en op de thorax (bovenste dorsale deel van het mesonotum) om het te repareren. Hard de lijm uit met UV-licht voor ~5 s.
OPMERKING: Het is belangrijk om het gebruik van UV-licht te minimaliseren, omdat dit de gezondheid van de vlieg sterk kan beïnvloeden. - Reinig vet en niet uitgeharde lijm zorgvuldig met een laboratoriumweefsel.
- Leg ~1 ml zoutoplossing op het hoofd. Duw luchtbellen opzij met een tang. Zoek naar lekken door een afdeklip over de zoutoplossing te plaatsen en de houder om te draaien om te controleren op zoutoplossing aan de voorkant. Als er lekken zijn, verwijder dan de zoutoplossing en bevestig het gat (door meer lijm of meer vet toe te voegen).
OPMERKING: Dit kan een goed moment zijn om te pauzeren indien nodig. De vlieg kan een klein stukje weefsel of piepschuimbal worden aangeboden om op te lopen om klepels te voorkomen en de vlieg te kalmeren.
6. Ontleden van het hoofd
OPMERKING: Gebruik geslepen tangen voor de volgende stappen. Zeer fijne tangen zijn van cruciaal belang omdat een doffe tang het moeilijker maakt om de hoofdsparula te openen en kan leiden tot extra verwondingen aan het hoofd of de hersenen van de vlieg. Een sterke vergroting kan in dit stadium helpen. Daartoe kan men de oculair van de verrekijkermicroscoop vervangen door 30x oculair.
- Maak twee sneden aan de basis van de centrale donkere cuticulaire driehoek aan elke kant van de nek (zie kruisen in figuur 8A).
- Snijd rond de donkere driehoek en verwijder dit deel van de nagelriem.
- Het gat in de hersenen waar spier 16 en de slokdarm doorheen gaan moet nu zichtbaar zijn en ritmisch bewegen (Video 1 presenteert deze ritmische beweging in een vlieg met fluorescerende spieren). Knijp voorzichtig de bovenkant van dit gebied om spier 16 te snijden zonder de slokdarm te doorboren. Als de ritmische beweging van de hersenen stopte, werd spier 16 waarschijnlijk verwijderd, maar de beweging pauzeert soms en start later opnieuw. Het is dus belangrijk om aandacht te besteden aan ritmische bewegingen en deze stap indien nodig opnieuw uit te voeren.
- Snijd de resterende nagelriem in kleine stukjes en verwijder ze voorzichtig. Probeer niet te veel aan de nagelriem te trekken. Gebruik in plaats daarvan de tang als een schaar om stukjes weefsel te snijden. Men kan beginnen op de mediale randen, waar de donkere driehoek eerder werd verwijderd en werken op zijn weg naar de zijkanten.
OPMERKING: Stukjes nagelriem kunnen worden gebruikt om voorzichtig van vet lichaam te schrapen indien aanwezig. - Verwijder de luchtzakken het ene stuk na het andere door ze met de tang vast te pakken en langzaam en gestaag te trekken.
Resultaten
Het hierboven beschreven preparaat maakt observatie van de hele hersenen onder een microscoop mogelijk voor grootschalige 3D-beeldvorming zoals klassieke 2 fotonen of confocale microscopie, maar ook snellere technieken zoals lichtblad31 en andere gestructureerde verlichtingsmicroscopietechnieken (beoordeeld in32), of lichtveldmicroscopie28.
De toegang tot de hele hersenen tijdens het observeren van het gedrag en het onderhouden van functionele zintuiglijke organen maakt het mogelijk om verschillende vragen te beantwoorden.
Ten eerste, wat is de algehele hersenactiviteit wanneer de vlieg in rust is, tijdens gedrag en wanneer deze reageert op stimuli? Als voorbeeld nemen we gegevens op die zijn verkregen met een lichtveldmicroscoop die hersenactivatie laat zien tijdens reacties op stimuli en gedrag. In Video 2werd bijvoorbeeld een calciumsonde uitgedrukt in alle neuronen (nsyb-GAL4 en UAS-syt-GCaMP6s (links) of UAS-GCaMP6M (rechts)) en werd een geurwolk gepresenteerd. Merk op hoe de voorbereiding het mogelijk maakt om een overzicht te krijgen van hersenactiviteit tijdens de reactie op de stimulus. De krachtige genetische hulpmiddelen in Drosophila kunnen worden gebruikt om de expressie van deze sensoren te beperken tot specifieke neuronale subtypes. In video 3beperkten we de expressie van een calciumsensor tot dopaminerge en serotoninergische neuronen (TH-GAL4, DDC-GAL4 en UAS-GCaMP6M). Merk de sterke synchrone activiteit over de hersenen strak gecorreleerd met de vlieg lopen, toegestaan door het observeren van de hele hersenen tijdens gedrag. Naast calciumactiviteit kunnen andere fysische of chemische signalen in beeld worden brengen (met behulp van bijvoorbeeld sensoren voor spanning28,33, metabolismeproducten34,35 of specifieke neuromodulatoren36).
Om de rol van hersenactiviteit specifieker te begrijpen, kunnen we ons afvragen welke regio's betrokken zijn bij welk gedrag, reactie op stimuli of spontane activiteitspatronen. De gegevens kunnen inderdaad worden gebruikt als een onbevooroordeeld scherm om functionele regio's te extraheren met behulp van technieken zoals hoofdcomponentanalyse en onafhankelijke componentanalyse. Figuur 9A toont verschillende functionele gebieden in verschillende kleuren. De vorm en lokalisatie van de functionele regio's maken het mogelijk om ze toe te kaarten aan anatomische sjablonen om hersengebieden en in sommige gevallen neurontype te identificeren. Bovendien kunnen fluorescentiewaarden, eenmaal uitgelijnd op het anatomische sjabloon, worden gemiddeld in anatomische hersengebieden voor kwantitatieve analyse (zie figuur 9B). Een hiërarchisch gaussiaans model dat wordt toegepast op gegevens in figuur 9B toont bijvoorbeeld aan dat regio's actiever zijn tijdens het lopen (met een ΔF/F-mediaan van 0,029, 95% geloofwaardig interval=[0,017 0,041]) maar niet tijdens de bruidegom (ΔF/F-mediaan = -0,0049 met 95% geloofwaardig interval=[-0,016]).
Naast de begripsdiepte kunnen de gelijktijdige opnamen van de verschillende functionele regio's die door de voorbereiding zijn toegestaan, worden gebruikt om de dynamische eigenschappen van het functionele netwerk te bestuderen. Dit is belangrijk omdat hersengebieden in alle tot nu toe bestudeerde hersenen zeer regelmatig met elkaar verbonden zijn en steeds meer studies aantonen dat zelfs zintuiglijke gebieden reageren op de gedragstoestand van het dier. Verschillende aspecten kunnen worden bekeken, zoals functionele grafiekeigenschappen (bijv. modules) en spatio-temporele patronen die kunnen worden aangepast aan dynamische systemen (zie8 voor voorbeelden).
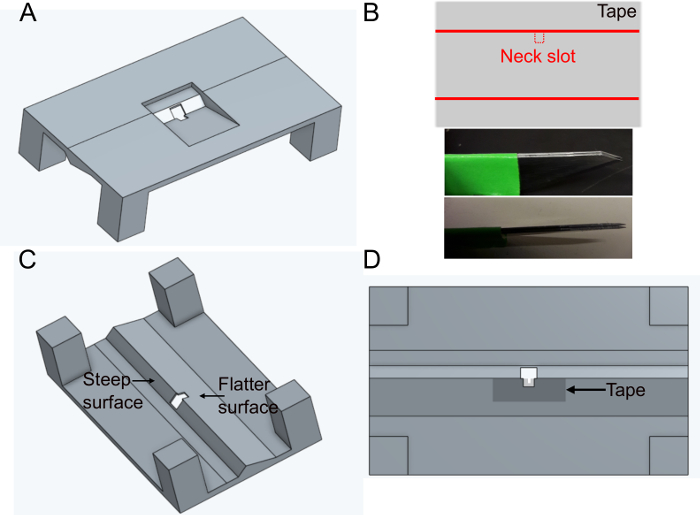
Figuur 1: Voorbereiding van de houder (stap 1). A) Ontwerp van de houder (uitzicht vanaf de bovenkant). B) Voorbereiding van de halssleuf. boven: tape ontwerp, onderkant: parallelle bladen gebruikt om de nek sleuf te snijden. C) Zicht op de houder van onderaf. D) Onderste weergave die aangeeft waar de neksleuftape moet worden toegevoegd. Klik hier om een grotere versie van deze afbeelding te bekijken.
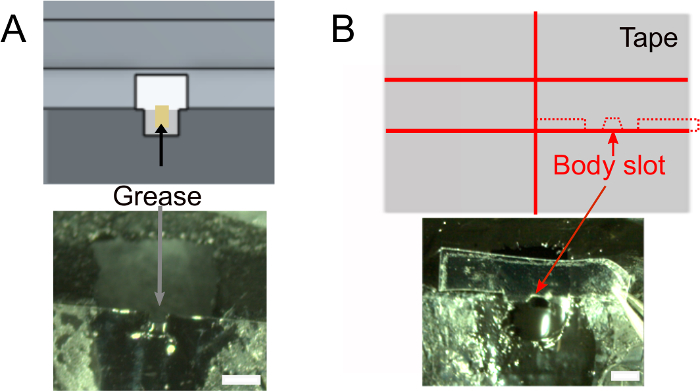
Figuur 2: Verdere voorbereidingen (stap 1). A) Voeg vet toe aan de halssleuf om lijm te voorkomen om de achterkant van het hoofd te bedekken en om zoute lekken te voorkomen. Schaalbalken, 1 mm. B) Boven: vorm van het stuk tape dat zal worden gebruikt om het lichaam naar beneden te duwen. Onderkant: zorg ervoor dat de tape op de houder past. Klik hier om een grotere versie van deze afbeelding te bekijken.
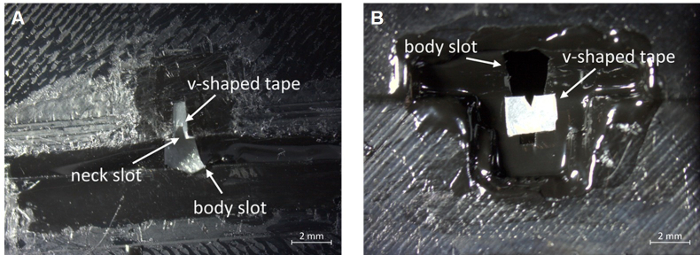
Figuur 3: Plaatsing van een v-vormig stuk tape om het centreren te helpen. (A) Onderste weergave. (B) Bovenaanzicht. Schaalbalk, 2 mm. Klik hier om een grotere versie van deze afbeelding te bekijken.
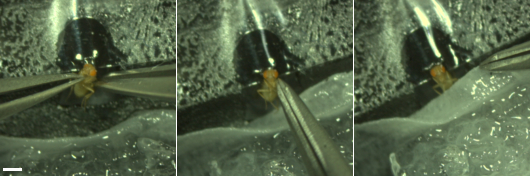
Figuur 4: Plaats de vlieg (stap 2). Gebruik links twee doffe tangen om het lichaam zo te plaatsen dat de nek zich in de neksleuf bevindt. Midden, lijn het hoofd uit. De ogen liggen aan beide zijden aan de randen van de sleuf. Het hoofd van de vlieg is recht. Juist, stop de vlieg met een tissue bedekt met ijs om te voorkomen dat hij beweegt. Schaalbalk, 1 mm. Klik hier om een grotere versie van deze afbeelding te bekijken.
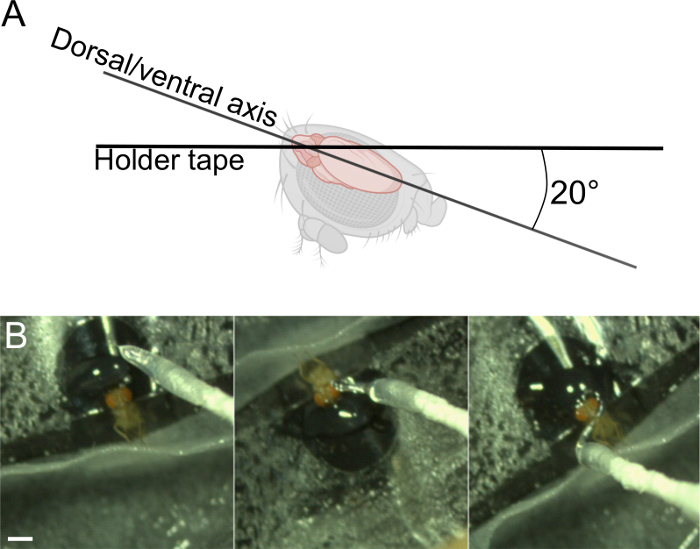
Afbeelding 5: Bevestig de kop (stap 3). A) Ideale hoek van het hoofd. B) Voeg UV-lijm rond het hoofd toe en vermijd zintuiglijke interessegebieden. Schaalbalk, 1 mm. Klik hier om een grotere versie van deze afbeelding te bekijken.
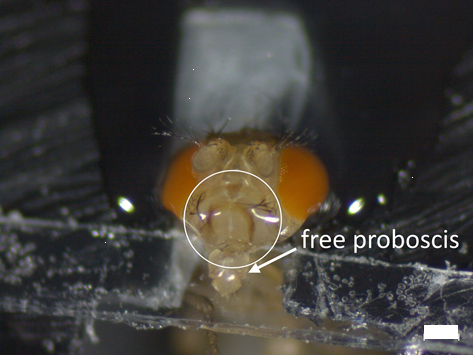
Figuur 6: De punt van de proboscis en de antennes kunnen lijmvrij worden gehouden (stap 3). De witte cirkel geeft het gebied aan waar de UV-lijm is aangebracht. De pijl laat zien welke delen vrij zijn van lijm voor olfactorische en gustatory experimenten. Let op de optionele tape die voorkomt dat de poten het lijmgebied raken. Schaalbalk, 200 μm. Klik hier om een grotere versie van deze afbeelding te bekijken.
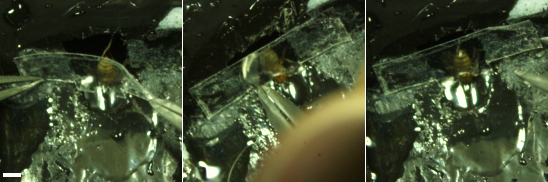
Afbeelding 7: Plaats de achterband (stap 4.2). De tape die in stap 1 is gemaakt (zie figuur 2, links) wordt gebruikt om het lichaam te plaatsen en het grote gat in de houder te bedekken. Schaalbalk, 1 mm. Klik hier om een grotere versie van deze afbeelding te bekijken.

Figuur 8: Ontledingsstappen (stap 6). A-B) Snijd aan elke kant aan de basis van de donkere driehoek (kruisen) en verwijder dit deel van de nagelriem C). D) en E) spier verwijderen 16. Verwijder vervolgens voorzichtig de rest van de cuticula F),de luchtzakken Gen spieren. H) Ontleed hoofd. Schaalbalk, 200 μm. Klik hier om een grotere versie van deze afbeelding te bekijken.
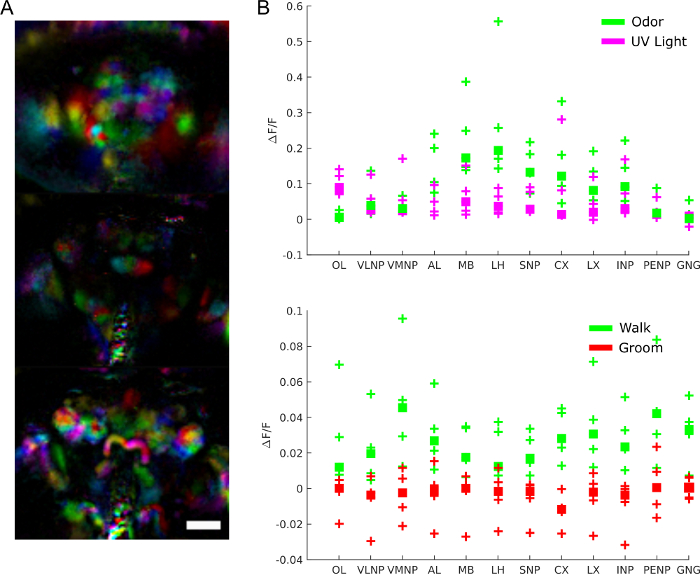
Figuur 9: Representatieve resultaten. A) Functionele gebieden (geëxtraheerd met PCA en ICA zoals in28) voor een vlieg die GCaMP6 pan-neuronaal wordt weergegeven met een lichtveldmicroscoop (25x, NA =0,95 met een bijpassende f/12 microlensarray). Schaalbalk, 100 μm. B) Gemiddelde calciumactiviteit in grote hersengebieden tijdens reacties op stimuli en gedrag (weergegeven vanaf28). Klik hier om een grotere versie van deze afbeelding te bekijken.
Video 1: Spier 16 bewegingen (stap 6.3). GFP werd uitgedrukt in spieren. Let op de pompbeweging die uit het gat net boven de luchtpijp komt. Klik hier om deze video te downloaden.
Video 2: Pan-neuronale calciumactiviteit tijdens de reactie op geur voor twee verschillende preparaten. Balsamicoazijn werd op de vlieg gepoft. Pan-neuronale calciumactiviteit (nsyb-GAL4 driver, UAS-syt-GCaMP6s links en UAS-GCaMP6M rechts) werd afgebeeld met een lichtveldmicroscoop (25x, NA=0,95 met een bijpassende f/12 microlens array). Lichtveldbeelden werden vervolgens gereconstrueerd zoals beschreven in ref.28,37. Klik hier om deze video te downloaden.
Video 3: Calciumactiviteit in een neuron type subset tijdens gedrag. GCaMP6 werd uitgedrukt in dopaminerge en serotoninergische neuronen (met TH-GAL4 en DDC-GAL4). In combinatie met de vlieggenetische hulpmiddelen maakt de voorbereiding het mogelijk om een sterke toename van de activiteit in veel regio's tijdens het lopen waar te nemen. Klik hier om deze video te downloaden.
Aanvullend materiaal. Klik hier om dit bestand te downloaden.
Discussie
Drosophila is een van de zeldzame volwassen dieren waar de hele hersenen kunnen worden afgebeeld tijdens complex gedrag. Hier presenteren we een methode om de vlieg voor te bereiden en zijn hele hersenen bloot te stellen aan beeld voortdurende hele hersenactiviteit. Er moeten een aantal belangrijke punten worden opgemerkt.
Het ontleden van een klein dier zoals D. melanogaster is een uitdaging. De methode vereist dus veel oefening en geduld om het onder de knie te krijgen. Na de training duurt de procedure echter minder dan 30 minuten en levert reproduceerbare resultaten op.
De methode die we presenteerden heeft extra beperkingen. Ten eerste leidt het kantelen van de vliegkop vanuit zijn natuurlijke positie tot het uitrekken van de nek, wat schadelijk kan zijn voor bindweefsel, zenuwen of spieren. Ten tweede, hoewel de ventrale subesophageale zone (SEZ) optisch toegankelijk is, bevindt deze zich onder de semi-transparante slokdarm, wat de intensiteit en resolutie in dit gebied vermindert. Ten slotte, hoewel de houder in de meeste richtingen buiten bereik is, realiseert de vlieg zich nog steeds soms zijn aanwezigheid en duwt erop om te proberen te ontsnappen.
Ondanks deze beperkingen zullen de uitgebreide gegevens verkregen uit hele hersenbeeldvorming tijdens gedrag en reacties op stimuli het mogelijk maken om de hersenfunctie op het niveau van het hele netwerk te ontcijferen wanneer het dier interageert met en navigeert door complexe, naturalistische omgevingen.
Openbaarmakingen
De auteurs hebben niets bekend te maken.
Dankbetuigingen
We danken Heidi Miller-Mommerskamp voor technische hulp en Iveth Melissa Guatibonza Arevalo voor nuttige opmerkingen over het manuscript. De eerste versies van het protocol werden ontwikkeld in het laboratorium van Ralph Greenspan. Dit werk werd ondersteund door de Duitse onderzoeksstichting (DFG), met name door een subsidie FOR2705 (TP3) aan IGK, en door de Simons foundation (Aimon – 414701) en het Kavli Institute for Brain and Mind (subsidienummer #2017-954) ontvangen door SA.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| #5 forceps | FST by DUMONT | 11252-30 | rechte punt 0,05 x 0,02 mm, Dumoxel, 11 cm lang |
| #55 forceps | FST by DUMONT | 11255-20 | rechte punt 0,05 x 0,02 mm, Inox, 11 cm lang |
| 30x oculairen | yegren | WF30-9-30-H | WF30X/9 High Eye-point Oculair Weidse Uitzicht Optisch Objectief voor Stereomicroscoop of Biologisch Microscoop 30X, 30mm zonder Reticle |
| AHOME/UV zaklamp | Shenzhen Yijiawan Technology Co., Ltd | B07V2W9543 (ASIN) | 365 nm |
| Fotoplast Gel/UV Lijm | Dreve Otoplastik GmbH | 44791 | GHS07, GHS08 |
| Gloss Finish Transparant Plakband | 3M Scotch | ||
| KIMTECH Science/Precision doekjes | Kimberly-Clark Professional | 7552 | 11 x 21 cm |
| KL 1500 LCD/Microscoop licht | Schott | ||
| Leica MS5 Microscoop | Leica | WF30X/9 | |
| Nail Lacqueur | Opi Products Inc., N. Hollywood | 6306585338 | zwart |
| Saline: Hepes NaH2PO4 NaHCO3 MgCl2 CaCl2 NaCl KCl sucrose threalose | Sigma Aldrich | ||
| Schaar | Werner Dorsch GmbH | 78 621; B07SXCXWFS (ASIN) | zachte handgreep |
| Vacuum vet | Dow corning | 0020080 /100 gr | Moly Kote 111 Compound Vet Vetklep Stempel 100 g |
Referenties
- Papanicolaou, A. C. The Oxford Handbook of Functional Brain Imaging in Neuropsychology and Cognitive Neurosciences. , Oxford University Press. (2017).
- Zong, W., et al. Fast high-resolution miniature two-photon microscopy for brain imaging in freely behaving mice. Nature Methods. 14, 713-719 (2017).
- Musall, S., Kaufman, M. T., Juavinett, A. L., Gluf, S., Churchland, A. K. Single-trial neural dynamics are dominated by richly varied movements. Nature Neuroscience. 22, 1677-1686 (2019).
- Ahrens, M. B., Engert, F. Large-scale imaging in small brains. Current Opinion in Neurobiology. 32, 78-86 (2015).
- Sokolowski, M. B. Drosophila: Genetics meets behaviour. Nature Reviews Genetics. 2, 879-890 (2001).
- Venken, K. J. T., Bellen, H. J. Emerging technologies for gene manipulation in Drosophila melanogaster. Nature Reviews Genetics. 6, 167-178 (2005).
- Zheng, Z., et al. A Complete Electron Microscopy Volume of the Brain of Adult Drosophila melanogaster. Cell. 174, 730-743 (2018).
- Aimon, S., Grunwald Kadow, I. C. Studying complex brain dynamics using Drosophila. Journal of Neurogenetics. 34, 171-177 (2020).
- Fiala, A., et al. Genetically Expressed Cameleon in Drosophila melanogaster Is Used to Visualize Olfactory Information in Projection Neurons. Current Biology. 12, 1877-1884 (2002).
- Wang, J. W., Wong, A. M., Flores, J., Vosshall, L. B., Axel, R. Two-Photon Calcium Imaging Reveals an Odor-Evoked Map of Activity in the Fly Brain. Cell. 112, 271-282 (2003).
- Mann, K., Gallen, C. L., Clandinin, T. R. Whole-Brain Calcium Imaging Reveals an Intrinsic Functional Network in Drosophila. Current Biology. 27, 2389-2396 (2017).
- Liang, X., Holy, T. E., Taghert, P. H. Synchronous Drosophila circadian pacemakers display nonsynchronous Ca2+ rhythms in vivo. Science. 351, 976-981 (2016).
- Harris, D. T., Kallman, B. R., Mullaney, B. C., Scott, K. Representations of Taste Modality in the Drosophila Brain. Neuron. 86, 1449-1460 (2015).
- Yoshihara, M. Simultaneous recording of calcium signals from identified neurons and feeding behavior of Drosophila melanogaster. Journal of Visualized Experiments. , e1(2012).
- Strutz, A., Völler, T., Riemensperger, T., Fiala, A., Sachse, S. Calcium imaging of neural activity in the olfactory system of Drosophila. Neuromethods. 72, 43-70 (2012).
- Seelig, J. D., et al. Two-photon calcium imaging from head-fixed Drosophila during optomotor walking behavior. Nature Methods. 7, 535-540 (2010).
- Fisher, Y. E., Lu, J., D'Alessandro, I., Wilson, R. I. Sensorimotor experience remaps visual input to a heading-direction network. Nature. 576, 121-125 (2019).
- Green, J., Vijayan, V., Mussells Pires, P., Adachi, A., Maimon, G. A neural heading estimate is compared with an internal goal to guide oriented navigation. Nature Neuroscience. 22, 1460-1468 (2019).
- Shiozaki, H. M., Ohta, K., Kazama, H. A Multi-regional Network Encoding Heading and Steering Maneuvers in Drosophila. Neuron. 106, 126-141 (2020).
- Huang, C., et al. Long-term optical brain imaging in live adult fruit flies. Nature Communications. 9, 872(2018).
- Kohatsu, S., Koganezawa, M., Yamamoto, D. Female contact activates male-specific interneurons that trigger stereotypic courtship behavior in Drosophila. Neuron. 69, 498-508 (2011).
- Grover, D., Katsuki, T., Greenspan, R. J. Flyception: imaging brain activity in freely walking fruit flies. Nature Methods. 13, 569-572 (2016).
- Cohn, R., Morantte, I., Ruta, V. Coordinated and Compartmentalized Neuromodulation Shapes Sensory Processing in Drosophila. Cell. 163, 1742-1755 (2015).
- Fiala, A., Spall, T. In Vivo Calcium Imaging of Brain Activity in Drosophila by Transgenic Cameleon Expression. Science Signaling. 2003, (2003).
- Silbering, A. F., Bell, R., Galizia, C. G., Benton, R. Calcium imaging of odor-evoked responses in the Drosophila antennal lobe. Journal of Visualized Experiments. , (2012).
- Bilz, F., Geurten, B. R. H., Hancock, C. E., Widmann, A., Fiala, A. Visualization of a Distributed Synaptic Memory Code in the Drosophila Brain. Neuron. 106, 963-976 (2020).
- Berry, J. A., Cervantes-Sandoval, I., Chakraborty, M., Davis, R. L. Sleep Facilitates Memory by Blocking Dopamine Neuron-Mediated Forgetting. Cell. 161, 1656-1667 (2015).
- Aimon, S., et al. Fast near-whole-brain imaging in adult Drosophila during responses to stimuli and behavior. PLOS Biology. 17, 2006732(2019).
- Azevedo, A. W., et al. A size principle for recruitment of Drosophila leg motor neurons. Elife. 9, (2020).
- Haberkern, H., et al. Visually Guided Behavior and Optogenetically Induced Learning in Head-Fixed Flies Exploring a Virtual Landscape. Current Biology. 29, 1647-1659 (2019).
- Li, W., et al. SCAPE Microscopy for High Speed , 3D Whole-Brain Imaging in Drosophila Melanogaster. Biomed. Opt. Congr. 2016, 4-6 (2016).
- Wu, Y., Shroff, H. Faster, sharper, and deeper: structured illumination microscopy for biological imaging. Nature Methods. 15, 1011-1019 (2018).
- Bando, Y., Grimm, C., Cornejo, V. H., Yuste, R. Genetic voltage indicators. BMC Biology. 17, 71(2019).
- Plaçais, P. -Y., et al. Upregulated energy metabolism in the Drosophila mushroom body is the trigger for long-term memory. Nature Communications. 8, 15510(2017).
- Gándara, L., Durrieu, L., Behrensen, C., Wappner, P. A genetic toolkit for the analysis of metabolic changes in Drosophila provides new insights into metabolic responses to stress and malignant transformation. Scientific Reports. 9, 19945(2019).
- Andreoni, A., Davis, C. M. O., Tian, L. Measuring brain chemistry using genetically encoded fluorescent sensors. Current Opinion in Biomedical Engineering. 12, 59-67 (2019).
- Broxton, M., et al. Wave optics theory and 3-D deconvolution for the light field microscope. Optics Express. 21, 25418-25439 (2013).
Herprints en machtigingen
