Dit protocol richt zich op chromatinepreparatie uit snap bevroren weefsels en is geschikt voor Crosslinking Chromatin Immunoprecipitation (X-ChIP) gevolgd door kwantitatieve PCR-analyse (X-ChIP-qPCR) of next generation sequencing-benaderingen (X-ChIP-seq).
Methodenartikel
Chromatine-extractie uit bevroren chimere leverweefsel voor chromatine-immunoprecipitatieanalyse
In dit artikel
Samenvatting
Samenvatting
Crosslinking Chromatin Immunoprecipitation (X-ChIP) is een veelgebruikte techniek om niveaus van histonmarkeringen en bezetting van transcriptiefactoren op gastheer- en / of pathogeenchromatine te beoordelen. Chromatinepreparaat uit weefsels creëert extra uitdagingen die moeten worden overwonnen om reproduceerbare en betrouwbare protocollen te verkrijgen die vergelijkbaar zijn met die welke worden gebruikt voor celkweek. Weefselverstoring en fixatie zijn cruciale stappen om een efficiënte afschuiving van chromatine te bereiken. Het naast elkaar bestaan van verschillende celtypen en clusters kan ook verschillende afschuiftijden vereisen om een optimale fragmentgrootte te bereiken en belemmert de reproduceerbaarheid van de afschuiving. Het doel van deze methode is om betrouwbare en reproduceerbare gastheerchromatinepreparaten te bereiken uit bevroren weefsel (lever) die geschikt zijn voor zowel ChIP-qPCR als next generation sequencing (NGS) toepassingen. We zagen dat de combinatie van vloeibare stikstofweefselverpulvering gevolgd door homogenisatie leidt tot verhoogde reproduceerbaarheid in vergelijking met alleen homogenisatie, omdat het een suspensie biedt die voornamelijk bestaat uit gedissocieerde afzonderlijke cellen die efficiënt kunnen worden geschoren. Bovendien moet de fixatiestap worden uitgevoerd onder milde rotatie om homogene crosslinking te bieden. Het vaste materiaal is dan geschikt voor buffergebaseerde kernisolatie, om besmetting van cytoplasmatisch eiwit en pathogene DNA's en RNA's (indien van toepassing) te verminderen, waardoor tijdrovende centrifugatiegradiënten worden vermeden. Daaropvolgende ultrasoonapparaat zal de nucleaire lysis voltooien en het chromatine afschuiven, waardoor een specifiek groottebereik wordt geproduceerd volgens de gekozen schuifomstandigheden. Het groottebereik moet tussen 100 en 300 nt liggen voor NGS-toepassingen, terwijl het hoger kan zijn (300-700 nt) voor ChIP-qPCR-analyse. Dergelijke protocolaanpassingen kunnen chromatineanalyses van bevroren weefselmonsters aanzienlijk verbeteren.
Inleiding
Sinds de ontdekking heeft epigenetische regulatie in zoogdiercellen steeds meer erkenning gekregen1, aangezien het begrip van dergelijke mechanismen belangrijke inzichten zou opleveren, niet alleen in de celbiologie, maar ook in de ziekte- en tumorbiologie. Bovendien kunnen infectieuze agentia ook epigenetische veranderingen van de gastheer veroorzaken2, terwijl de machinerie van de gastheercel ook het chromatine van pathogenen kan beïnvloeden, zoals persisterende DNA-virussen 3,4. Dit gastheer-pathogeen samenspel lijkt een rol te spelen bij de persistentie van infecties. Arabisch cijfer
Door een omkeerbare associatie met DNA vormen histoneiwitten een complex dat nucleosoom wordt genoemd. Nucleosomen bereiken op hun beurt een hoger organisatieniveau dat bekend staat als chromatine. Van chromatine-remodellering is bekend dat het genexpressie strak reguleert, waarbij toegang tot transcriptiefactoren (TF's) wordt verleend of geweigerd5. Deze factoren kunnen de rekrutering van het RNA-polymerase II (PolII) op genpromotors activeren of blokkeren, waardoor de mRNA-synthese van de DNA-sjabloon6 wordt beïnvloed. Histoneiwitten bevatten staarten7, flankerend aan beide uiteinden van de histonplooi, die kunnen worden onderworpen aan posttranslationele modificaties (PTM's), waardoor een strakke regulatie van de gentranscriptie door structurele chromatineveranderingen mogelijk is. De meeste histon PTM's bevinden zich aan de staart N-terminus, waarbij acetylering en methylatie de best bestudeerde PTM's zijn, hoewel fosforylering8, ubiquitinatie9 en ribosylatie10 ook zijn gemeld. Het karakteriseren en bestuderen van dergelijke eiwitten is dan essentieel om een diep inzicht te krijgen in genregulatie.
Momenteel is er een handvol gevestigde methoden en hulpmiddelen beschikbaar om directe DNA-eiwitinteracties te bestuderen: Electrophoretic mobility shift assay (EMSA), Yeast one-hybrid assay (Y1H) en DNA footprinting11. Deze methoden richten zich echter per se op interacties tussen één DNA en eiwit en zijn niet toepasbaar voor genoombrede studies. Een andere beperking van die technieken is het ontbreken van histonassociatie met de onderzochte DNA-segmenten. Dergelijke benaderingen zijn dus niet bedoeld om de complexiteit van de transcriptionele machinerie in vivo weer te geven en houden geen rekening met belangrijke structurele veranderingen12 of andere vereiste enzymen/cofactoren13 die de eiwitbinding aan het DNA kunnen beïnvloeden (bevorderen of remmen).
Het idee dat het fixeren van cellen met middelen zoals formaldehyde (FA) een in vivo momentopname van eiwit-DNA-interacties zou kunnen bieden, creëerde de basis voor de ontwikkeling van chromatine-immunoprecipitatietests (ChIP)14. Dit, samen met de beschikbaarheid van de kwantitatieve PCR (qPCR) technologie en van zeer specifieke antilichamen, maakte de ontwikkeling van ChIP-qPCR assays mogelijk. Vervolgens gaf de komst van next-generation sequencing-technieken (NGS), waarvan de kosten betaalbaarder worden, toe om ChIP-experimenten te koppelen aan NGS-benaderingen (ChIP-seq), waardoor onderzoekers nieuwe krachtige hulpmiddelen kregen die onderzoek naar chromatineregulatie mogelijk maken. In deze testen worden geïsoleerde of gekweekte cellen gefixeerd met disuccinimidylglutaraat (DSG) en / of FA, kernen worden geïsoleerd, chromatine wordt vervolgens gefragmenteerd en neergeslagen door het antilichaam van belang. Hierna wordt DNA gezuiverd en geanalyseerd door PCR- of NGS-benaderingen. In tegenstelling tot EMSA, Y1H en DNA footprinting, hebben ChIP-assays de mogelijkheid om een globale momentopname te bieden van eiwit-DNA-interactie in de cel. Dit biedt flexibiliteit en maakt de analyse van meerdere loci binnen hetzelfde monster mogelijk. Vanwege de aard van de test kan ChIP uiteindelijk echter niet alleen directe interacties detecteren, maar ook indirecte, die niet de precisie van de bovengenoemde methoden bieden, wanneer ze geïnteresseerd zijn in directe eiwit-DNA-interacties.
Chromatinevoorbereidingsprotocollen uit celkweekmateriaal zijn goed ingeburgerd15 en zeer reproduceerbaar, waardoor de gebruiker chromatine kan verkrijgen die geschikt is voor zowel qPCR- als NGS-benaderingen in 1-2 werkdagen. Het verkrijgen van chromatine van hoge kwaliteit uit hele weefsels vormt echter nog steeds een uitdaging vanwege de noodzaak om de cellen in het weefsel te dissociëren en tegelijkertijd optimale fixatie en afschuiving van het chromatine te bereiken. Bovendien variëren de samenstelling en morfologie van verschillende soorten weefsels, waardoor aanpassing van bestaande protocollen vereistis 16,17. Het gebruik van gecryopreserveerd weefsel biedt extra uitdagingen in vergelijking met verse monsters. Dit komt door de moeilijkheid om een suspensie met één cel te verkrijgen zonder uitgebreid materiaalverlies. Dit leidt tot onjuist afschuiven, waardoor downstream-toepassingen worden belemmerd. Niettemin verhoogt de toegang tot ingevroren weefselmonsters in plaats van de verse tegenhanger niet alleen de werkflexibiliteit, maar het kan ook de enige optie zijn voor onderzoekers die werken met monsters die afkomstig zijn van longitudinale of vergelijkende studies. Een handvol chromatinebereidingsprotocollen voor bevroren weefsel zijn gepubliceerd. Deze zijn meestal gebaseerd op het ontdooien van monsters, gevolgd door gehakt, handmatige / machinale dissociatie of vloeibare stikstofverpulveringsstappen18,19,20.
Hier beschrijven we een geoptimaliseerde chromatinebereidingsmethode15 voor bevroren niet-gefixeerde levermonsters, die weefselverpulvering in vloeibare stikstof combineert met stamperhomogenisatie, om een reproduceerbare chromatineschering te bereiken die geschikt is voor X-ChIP-benaderingen die gericht zijn op het analyseren van zowel virale als gastheergenomen.
Protocol
Weefselbemonstering van menselijke lever chimere muizen21 werd uitgevoerd in overeenstemming met de richtlijn van de Europese Unie 86/609/EEG en goedgekeurd door de ethische commissie van de stad en de staat Hamburg in overeenstemming met de principes van de Verklaring van Helsinki.
1. Reagentiabereiding
- Bereid 1,25 M glycine-oplossing in gedeïoniseerd water. Steriel filter met poriefilter ter grootte van 0,22 μm. Bewaren bij 4 °C.
- Bereid 5 M natriumchloride (NaCl) oplossing. Bewaren bij kamertemperatuur.
- Bereid CaCl 2-oplossing: 300 mM CaCl2 en 10 mM Tris-HCl pH 8 in gedeïoniseerd water. Steriel filter met 0,22 μm poriegroot filter en bewaren bij RT.
- Bereid een 10% Triton X-100 verdunning in gedeïoniseerd water. Winkel bij RT.
- Bereid Tris-EDTA buffer voor: 1 mM EDTA en 10 mM Tris pH 8 in gedeïoniseerd water. Bewaren bij 4 °C.
- Bereid de volgende buffers voor op basis van de vereiste hoeveelheid:
- Bereid buffer A: 50 mM Hepes-KOH pH 7,5, 140 mM NaCl, 1 mM ethyleendiaminetetra-azijnzuur (EDTA), 10% Glycerol, 0,5% NP-40 en 0,25% Triton X-100 in gedeïoniseerd water. Steriel filter met poriefilter ter grootte van 0,22 μm. Bewaren bij 4 °C.
- Bereid buffer B voor: 10 mM Tris-HCl pH 8, 200 mM NaCl, 1mM EDTA, 0,5 mM egtazazuur (EGTA). Steriel filter met poriefilter ter grootte van 0,22 μm. Bewaren bij 4 °C.
- Bereid buffer C: 1% SDS, 10 mM EDTA en 50 mM Tris-HCl pH 8 in gedeïoniseerd water. Steriel filter met poriefilter ter grootte van 0,22 μm. Winkel bij RT.
- Bereid chromatineverdunningsbuffer voor: 0,01% SDS, 1,1% Triton X-100, 1,2 mM EDTA, 16,6 mM Tris-HCl pH 8 en 166 mM NaCl in gedeïoniseerd water. Steriel filter met poriefilter ter grootte van 0,22 μm. Bewaren bij 4 °C.
2. Materiaalvoorbereiding
- Verzamel droogijs, ijs en vloeibare stikstof.
LET OP: Behandel droogijs en vloeibare stikstof met de nodige zorg om brandwonden te voorkomen. - Koel de centrifuge voor op 4 °C.
OPMERKING: Deze stap is belangrijk om eiwitafbraak en de-crosslinking tijdens de wasstappen te voorkomen, omdat dit de kwaliteit van het chromatine zal verminderen. - Leg een steriel bord op droogijs en laat het afkoelen.
OPMERKING: Zorg ervoor dat de plaat groot genoeg is om het snijproces te vergemakkelijken. Een petriplaat/celkweekschaal van 100 mm wordt aanbevolen. - Haal de benodigde hoeveelheid glycine 1,25 M eruit en laat het RT bereiken.
- Haal de nodige aliquots van buffer A, B en PBS eruit. Voeg protease en/of deacetylase en fosfataseremmers toe om een 1-voudige concentratie te bereiken en laat ze op ijs liggen.
- Haal het benodigde aliquot van buffer C eruit en laat het bij RT staan. Voeg de protease en/of deacetylase en fosfataseremmers niet toe totdat dit is gespecificeerd.
- Haal de nodige aliquot van RT PBS eruit.
LET OP: Buffer C bevat natriumdodecylsulfaat (SDS). Neem de juiste veiligheidsmaatregelen bij het voorbereiden van de buffer.
OPMERKING: SDS slaat neer op ijs en protease- en deacetylaseremmers zijn niet stabiel bij RT. - Koel de mortel voor die vloeibare stikstof in de kamer giet, strikt volgens de instructies van de leverancier. Laat de metalen stamper minstens 5 minuten afkoelen in droogijs.
OPMERKING: Het is mogelijk om een alternatieve mortel te gebruiken voor de voorgestelde mortel. Het apparaat dat in dit protocol wordt gebruikt, maakt het vanwege zijn eigenaardige constructie echter mogelijk om met een kleine hoeveelheid weefsel te werken zonder aanzienlijk verlies tijdens het verpulveringsproces. - Koel de Dounce homogenisator met de bijbehorende stamper A voor op ijs.
OPMERKING: Stample A heeft een losse pasvorm met de homogenisator. Dit maakt het mogelijk om een enkele celsuspensie te verkrijgen zonder significante cellysis.
3. Weefsel crosslinking
- Snijd ongeveer 50 mg bevroren weefsel direct op de schaal op droogijs met behulp van een scalpel en een pincet.
OPMERKING: Er wordt voorgesteld om het scalpel op RT te houden, omdat dit het snijproces zal vergemakkelijken. Vermijd het uitoefenen van te veel druk op het scalpel, omdat dit het risico op het verspreiden van weefselstukken buiten het snijgebied verhoogt. Om op te merken, 50 mg weefsel (lever in dit geval) zou ongeveer 5 miljoen cellen moeten opleveren. Merk op dat het warme mes de snijkant zal ontdooien. Gezien de relatief grote omvang van het weefselstuk zou dit echter een beperkt effect moeten hebben. Wanneer kleinere stukjes worden gesneden, kan het nuttig zijn om een koud scalpel te gebruiken en op te letten om verstrooiing van het weefsel te voorkomen. - Doe het gesneden weefsel in een tube van 1,5 ml die al gekoeld is op droogijs. Vermijd het ontdooien van weefsel.
- Verplaats de buis met het weefsel naar de mortel en laat deze daar 5 minuten zitten.
OPMERKING: Door het monster in de mortel te laten rusten, daalt de temperatuur (van -80 °C tot -196 °C). Dit verhoogt de taaiheid en maakt de verpulveringsstap gemakkelijker. - Oefen druk uit op het monster met behulp van de voorgekoelde stamper totdat er geen vaste kruimels meer zichtbaar zijn.
OPMERKING: Het is belangrijk om stamperverwarming door overmatige rotatiekrachten te voorkomen, omdat dit het monster zal ontdooien. Reinig na elke monsterverpulvering de stamper met 70% ethanol (EtOH) en laat hem opnieuw afkoelen op droogijs. - Verwijder de buis met het monster uit de vijzel en voeg 950 μL ijskoud PBS toe met de vereiste remmers. Pipetteer zachtjes op en neer totdat het monster volledig is gereuspeerd. Ga onmiddellijk verder met stap 3.6.
- Breng de weefselsuspensie over naar de homogenisator en breng 20-30 slagen aan met stamper A om een fijnere suspensie te verkrijgen. Vermijd schuimvorming.
OPMERKING: De hoeveelheid slagen moet worden geoptimaliseerd op basis van de weefselconsistentie. Deze stap dissocieert verder de kleine clusters van cellen verkregen na verpulvering. Een onjuiste homogenisatie kan de afschuifefficiëntie beïnvloeden. - Breng het homogenaat over in een nieuwe buis van 1,5 ml, al voorgekoeld op ijs.
- Centrifugeer gedurende 5 minuten bij 1.300 x g bij 4 °C en verwijder het supernatant voorzichtig.
- Resuspensie van de pellet volledig in 950 μL RT PBS door voorzichtig pipetteren en voeg 63,6 μL 16% MeOH-vrij FA toe om een eindconcentratie van 1% te krijgen. Ga onmiddellijk verder met stap 3.10.
LET OP: FA is een giftige chemische stof. Behandel het onder een zuurkast met de juiste veiligheidsmaatregelen.
OPMERKING: Onvolledige resuspensie kan celaggregatie veroorzaken tijdens de fixatiestap. Dit belemmert de lysis en het afschuifproces. - Draai 10 min bij RT. Ga dan onmiddellijk verder met stap 3.11
OPMERKING: Rotatie is noodzakelijk om aggregaten te voorkomen. De hoeveelheid tijd die nodig is voor fixatie moet worden geoptimaliseerd, afhankelijk van het doel van interesse en het monstertype. Het is belangrijk op te merken dat overmatige fixatietijden een goed scheren kunnen belemmeren. - Voeg 113 μL 1,25 M glycine bij RT toe om een eindconcentratie van 125 mM te verkrijgen en roteer gedurende 5 minuten.
OPMERKING: Glycine dooft de fixatieve reactie en vermijdt over-crosslinking. - Centrifugeer bij 1.300 x g gedurende 3 minuten bij 4 °C.
- Gooi het supernatant weg en resuspensie de pellet voorzichtig door 950 μL ijskoud PBS met de vereiste remmers in te pipetteren.
- Centrifugeer bij 1.300 x g gedurende 3 minuten bij 4 °C.
- Herhaal stap 3.13-3.14 en ga onmiddellijk verder met de chromatine-isolatiestappen.
4. Chromatine isolatie
- Voeg 950 μL buffer A met de benodigde remmers toe aan de pellet. Meng voorzichtig door pipetteren tot de pellet volledig geresuspendeerd is en draai 10 min bij 4 °C.
OPMERKING: Deze stap lyseert de vaste eencellige suspensie, zonder kernlyse. Dit maakt het mogelijk om het monster te bevrijden van cytosolische eiwitten en RNA's. Het verlengen van de lysistijd kan gunstig zijn voor moeilijk te lyseren cellen, waardoor de behandelingstijd van het weefsel toeneemt. Op dit punt is het mogelijk om het preparaat onder de microscoop te controleren na trypan blue / DAPI-kleuring om de grootte van de clusters en de aanwezigheid van afzonderlijke cellen te controleren. De enkele kernen zijn echter mogelijk niet gemakkelijk te waarderen vanwege het vaste weefselmateriaal. - Centrifugeer bij 2.000 x g gedurende 5 minuten bij 4 °C en verwijder het supernatant voorzichtig.
- Voeg 950 μL buffer B met de benodigde remmers toe aan de pellet. Meng voorzichtig door pipetteren tot de pellet volledig geresuspendeerd is en draai 10 min bij 4 °C.
OPMERKING: Deze stap spoelt de lysisbuffer uit het kernpreparaat om verdere ongewenste lysis te voorkomen. - Centrifugeer bij 2000 x g gedurende 5 minuten bij 4 °C. Voeg ondertussen de vereiste remmers (hetzelfde als stap 2.5) toe aan buffer C.
- Verwijder het supernatant voorzichtig.
- Voeg 300 μL RT-buffer C toe aan de pellet en pipetteer krachtig.
- Draai het monster gedurende 15-30 s en draai de buis kort om de druppels op het deksel te verzamelen.
OPMERKING: Deze stap is belangrijk om de vaste kernen te bevrijden en te lyseren. Om de integriteit van het monster te behouden en tegelijkertijd SDS-neerslag te voorkomen, bewaart u het monster vóór ultrasoonapparaat in een plastic rek dat op ijs wordt bewaard om een temperatuur van 9-11 °C te handhaven.
5. Chromatine fragmentatie
- Breng het monster over naar drie schone 0,65 ml ultrasoonapparaatgecertificeerde buizen die zorgen voor 100 μL gelyseerde kernsuspensie per buis.
OPMERKING: Het is mogelijk om 1,5 ml ultrasoonapparaat-gecertificeerde buizen te gebruiken met een maximaal volume van 300 μL. Voor die buizen is een specifieke houder nodig. 0,65 ml zou een homogenere afschuiving moeten bieden vanwege het kleinere volume van het monster per buis. - Soniceer de chromatine gedurende 28 cycli op hoge intensiteit met de 30 s ON en 30 s OFF instelling. Zorg ervoor dat het ultrasoonapparaatbad goed wordt gekoeld (ijs of koelapparaat).
OPMERKING: Deze stap moet in bijna alle gevallen worden geoptimaliseerd. De gebruiker moet er rekening mee houden dat het verlengen van de schuiftijd kleinere en homogenere fragmenten oplevert; Dit kan echter de kans vergroten om de chromatinekwaliteit te verlagen. Kies het laagste aantal cycli dat de vereiste fragmentgrootte biedt. Tijdens de optimalisatie van deze stap is het nuttig om nucleaire kleuring uit te voeren om te controleren of het aantal cycli voldoende was om de meerderheid van de kernen te lyseren. - Breng de gesonificeerde chromatine over in een nieuwe buis van 1,5 ml die eerder op ijs is gekoeld.
- Voeg 30 μL Triton X-100 10% oplossing en vortex toe voor 5-10 s.
OPMERKING: Triton X-100 bindt het SDS en voorkomt verdere neerslag bij 4 °C. Het uiteindelijke bedrag van Triton X-100 moet altijd 1% zijn. - Centrifugeer bij 16.000 x g gedurende 15 minuten bij 4 °C.
- Breng het supernatant over in een schone buis van 1,5 ml die voorgekoeld is op ijs.
- OPMERKING: Het supernatant bevat het geschoren chromatine en moet er helder uitzien. De pellet bevat "niet schuifbare" resten en moet vrij klein blijven (meestal bruin in het geval van leverweefsel). Zoek naar aanwijzingen voor mislukte afschuiving: chromatine-oplossing die niet duidelijker werd en vergelijkbare pelletafmetingen als die uit stap 4.5.
6. DNA-zuivering
- Breng 10-25 μL geschoren chromatine over in een nieuwe buis en voeg Buffer C toe om een eindvolume van 200 μL te bereiken. Bewaar de rest van de chromatine bij -80 °C tot verder gebruik. Indien nodig kan de procedure bij deze stap worden onderbroken en kan het monster bij -20 °C worden bewaard.
- Voeg 8 μL van 5 M NaCl toe en incubeer ten minste 6 uur bij 65 °C in een verwarmingsblok onder schudden bij 1000 tpm.
OPMERKING: Deze stap de-crosslinkt het chromatine. Het is veiliger om de de-crosslinking 's nachts te verlengen wanneer dat mogelijk is. De aanwezigheid van NaCl maakt het proces efficiënter. - Laat de monsters 5 minuten afkoelen bij RT en voeg 2 μL RNase A toe.
- Incubeer gedurende 1 uur bij 37 °C onder schudden bij 1000 tpm.
- Verwijder de monsters uit het verwarmingsblok en voeg 7 μL 300 mM CaCl 2 en2 μL Proteinase K toe.
- Zet het verwarmingsblok op 56 °C en incubeer gedurende 30 minuten onder schudden bij 1000 tpm. Bereid ondertussen één fasescheidingsbuis voor elk monster door ze gedurende 1 minuut bij 4 °C bij 16.000 x g te centrifugeren.
OPMERKING: Deze speciale buizen maken de fasescheiding tijdens nucleïnezuur fenol-chloroform extractie gemakkelijker. - Verwijder de buizen uit het verwarmingsblok en laat ze gedurende 3 minuten op RT balanceren.
- Breng 400 μL van het monster over in een eerder gecentrifugeerde fasescheidingsbuis.
- Voeg 400 μL fenol-chloroform-isoamylalcoholoplossing (PCI) en vortex gedurende 5 s toe.
LET OP: PCI is een zeer vluchtige en giftige verbinding. Behandel het met de nodige veiligheidsmaatregelen onder een zuurkast. - Centrifugeer bij 16.000 x g gedurende 5 minuten bij 4 °C.
- Voeg 400 μL chloroform en vortex toe gedurende 5 s.
LET OP: Chloroform is een zeer vluchtige en giftige verbinding. Behandel het met de nodige veiligheidsmaatregelen onder een zuurkast.
OPMERKING: Deze stap wast mogelijke residuen van fenol weg, die kunnen interfereren met downstream PCR-toepassingen. - Centrifugeer bij 16.000 x g gedurende 5 minuten bij 4 °C.
- Breng 400 μL van de bovenste fase over naar een nieuwe buis van 1,5 ml waar 24 μL 5 M NaCl en 0,75 μL glycogeen werden toegevoegd. Kort vortex.
- Voeg 1.055 μL 100% EtOH en vortex grondig toe. Zorg voor een goede menging.
- Incubeer bij -80 °C gedurende 1 uur of bij -20 °C 's nachts (ON).
OPMERKING: Deze stap slaat het geschoren DNA neer; om de opbrengst te maximaliseren wordt voorgesteld om de ON-incubatie te kiezen. - Centrifugeer bij 16.000 x g gedurende 30 minuten bij 4 °C.
- Verwijder het supernatant voorzichtig en let erop dat de pellet niet wordt ontwricht.
- Voeg 500 μL koude 70% EtOH toe. Kantel de buis voorzichtig om ervoor te zorgen dat de pellet wordt gewassen.
OPMERKING: Deze stap is essentieel om zoutresten te verwijderen die samen met de nucleïnezuren kunnen zijn neergeslagen. Zouten kunnen interfereren met andere downstream-toepassingen. - Centrifugeer bij 16.000 x g gedurende 15 minuten bij 4 °C.
- Verwijder voorzichtig het hele supernatant en laat de pellet drogen bij RT.
OPMERKING: Het incuberen van de buis op een verwarmingsblok bij 37 °C zal de tijd die nodig is voor het drogen verkorten. - Voeg 50 μL Tris-EDTA-oplossing (TE-Buffer) toe en plaats de buis op het verwarmingsblok bij 37 °C gedurende 5-10 minuten onder schudden bij 300 tpm.
OPMERKING: Deze stap zorgt ervoor dat de pellet wordt opgelost. Het protocol kan hier worden gepauzeerd en het monster kan worden bewaard bij 4 °C gedurende maximaal 1 week of bij -20 °C voor langere opslag. - Voer DNA-analyse uit op 1% agarose-gel.
7. DNA-grootteanalyse
- Bereid een 1% agarose-gel door 1 g agarose per 100 ml lopende buffer te mengen (d.w.z. Tris-acetaat-EDTA (TAE) of Tris-boraat-EDTA (TBE)). Verwarm de suspensie totdat de agarose volledig is opgelost. Voeg 10 μL EtBr toe voor elke 100 ml agarose-oplossing voordat u de geloplossing giet.
LET OP: EtBr is een DNA-intercalating agent waarvan bekend is dat het kankerverwekkend is. Behandel het met de nodige veiligheidsmaatregelen onder een zuurkast.
OPMERKING: EtBr-kleuring (direct in gel of na het hardlopen) wordt sterk aanbevolen. Andere DNA-intercalerende kleurstoffen presteerden niet goed in onze handen bij het werken met DNA-uitstrijkjes. Smalle laadputten bieden een betere resolutie in vergelijking met bredere. - Meng 10 μL van het monster met 2 μL 6x Loading Dye. Laad vervolgens 10 μL van het monster in de gel en laat het lopen totdat de laatste band van de ladende kleurstof voor 2/3 van de gel liep. Zorg ervoor dat je een DNA-ladder toevoegt.
- Maak een afbeelding van de gel en controleer of de uitstrijkgrootte binnen het bereik valt voor de gewenste toepassing.
Als het chromatine de kwaliteitscontrole doorstaat, kan het worden gebruikt voor downstream-toepassingen.
Resultaten
Het bereiden van chromatine is een cruciale stap in het bereiken van een succesvol ChIP. Om chromatine van goede kwaliteit te bereiden uit ingevroren monsters, moeten we zorgen voor efficiënte weefselverstoring vóór fixatie om de aanwezigheid van weefselklonters te voorkomen die efficiënt scheren kunnen belemmeren. Figuur 1 toont een samengevatte pijplijn van het protocol. Verpulvering alleen is niet voldoende om het weefsel volledig te dissociëren, omdat het celclusters van variabele grootte en weinig afzonderlijke cellen produceert (figuur 1a). Door de eerste verpulveringsstap te associëren met Dounce-homogenisatie, wordt de hoeveelheid weefselklonten sterk verminderd en zijn de resterende kleiner (figuur 1b). Na de fixatie- en lysisstappen neemt het aantal zichtbare enkele kernen (figuur 1c) toe, terwijl het typische bolvormige uiterlijk verloren gaat. Na ultrasoonapparaat gedurende 28 cycli is de nucleaire kleuring (Hoechst 33258 / DAPI) meestal niet meer zichtbaar. Dit is inderdaad een teken van succesvol scheren (figuur 1d). Na de-crosslinking van een chromatine-aliquot en visualisatie van het DNA op agarosegel, kan succesvol scheren worden herkend aan de aanwezigheid van fragmenten in het bereik van 100-300 bp. (Figuur 2a) De hoeveelheid DNA kan variëren afhankelijk van de samenstelling van het bereide weefselstuk. Een dergelijk chromatine kan met succes worden gebruikt voor ChIP-qPCR. Zoals te zien is in figuur 2b kon het chromatine met succes worden neergeslagen met H3K4me3, H3K27ac (actieve genen gerelateerde modificaties) en H3K27me3 (silenced genes related modification) antilichamen. Chromosoom 1 Open Reading Frame 43 (C1orf43), Proteasome 20S Subunit Beta 2 (PSMB2) en Glyceraldehyde 3-fosfaat dehydrogenase (mGapdh) promotor regio's resulteerden verrijkt in H3K4me3 en H3K27ac in vergelijking met Homeobox C13 (HOXC13), Homeobox C12 (HOXC12) en de muis Myeline Transcriptie Factor 1 (mMyt1) promotor regio's (Tabel 1). Dit komt omdat C1orf43, PSMB2 en mGapdh constitutief worden getranscribeerd in de lever, terwijl HOXC13, HOXC12 en mMyt1 tot zwijgen worden gebracht. H3K27me3 vertoont het tegenovergestelde gedrag dat het succes van de ChIP-test bevestigt. Het feit dat de lever van deze muizen een hersenschim is, stelde ons in staat om zowel murine als menselijk chromatine te analyseren. Bovendien kan hetzelfde chromatine met succes worden gebruikt voor ChIP-seq-experimenten. Na de sequencingstap werden de metingen uitgelijnd met een index die bestond uit zowel muizen- als menselijke genomen om de hoeveelheid niet-uitgelijnde fragmenten te verminderen. Vervolgens werden de lezingen gescheiden volgens soort en verder geanalyseerd met EaSeq22 . De signaalintensiteit werd vervolgens gemeten op de transcriptiestartplaats (TSS) van elk gen en het resultaat werd gesorteerd op H3K4me3-signaalintensiteit. Figuur 3a en figuur 3c tonen beide een duidelijke aanwezigheid van H3K4me3 en H3K27ac op de TSS voor een aanzienlijk deel van de genen in zowel muis- als humaan chromatine. Daarnaast anticorreleert H3K27me3 met H3K4me3/H3K27ac. H3K27me3 is aanwezig op de gehele lengte van het gen en niet alleen bij de TSS, zoals verwacht van deze PTM. Figuur 3b en figuur3d tonen het HOXC/HoxC-cluster dat bekend staat als verrijkt voor H3K27me3 en transcriptioneel inactief in zowel muis- als menselijke levers. De profilering van H3K4me3 en H3K27ac toont pieken voor deze twee PTM's, terwijl de signaalintensiteit van H3K27me3 meestal lager en meer gedistribueerd is.
Vanwege de complexiteit van chromatinepreparatie kan overfixatie optreden, lysis of ultrasoonapparaattijd kan suboptimaal zijn, grote celklonten kunnen aanhouden of onvoldoende behandeling van het monster kan ontoereikend zijn. Dit zijn allemaal gebeurtenissen die van invloed zijn op de kwaliteit van de voorbereiding. In sommige gevallen zal de verrijking van chromatinefragmenten binnen de juiste grootte nog steeds aanwezig zijn of worden verschoven naar een hogere grootte. In andere gevallen kan er sprake zijn van materiaalverlies als gevolg van voortijdige lysis of mislukte afschuiving. Figuur 4 toont enkele voorbeelden van dergelijke negatieve en suboptimale resultaten. Baan 3 en 4 tonen een verrijking van de fragmentgrootte tussen 200 bp en 800 bp. Het is echter duidelijk dat de fragmentgrootte varieert van 100 bp tot >10.000 bp. In baan 5 en 6 is een verrijking in het bereik van 100-250 bp aanwezig met een duidelijk materiaalverlies tijdens de voorbereiding. Dit zou kunnen verklaren waarom de ultrasoonapparaat kleinere fragmenten produceerde. Baan 7 laat een iets suboptimale voorbereiding zien met een toename van het fragmentbereik, terwijl baan 8 een vrijwel volledig materiaalverlies laat zien. Dit kan worden veroorzaakt door voortijdige nucleaire lyse of onvoldoende weefseldissociatie met als gevolg verlies na stap 5.5.
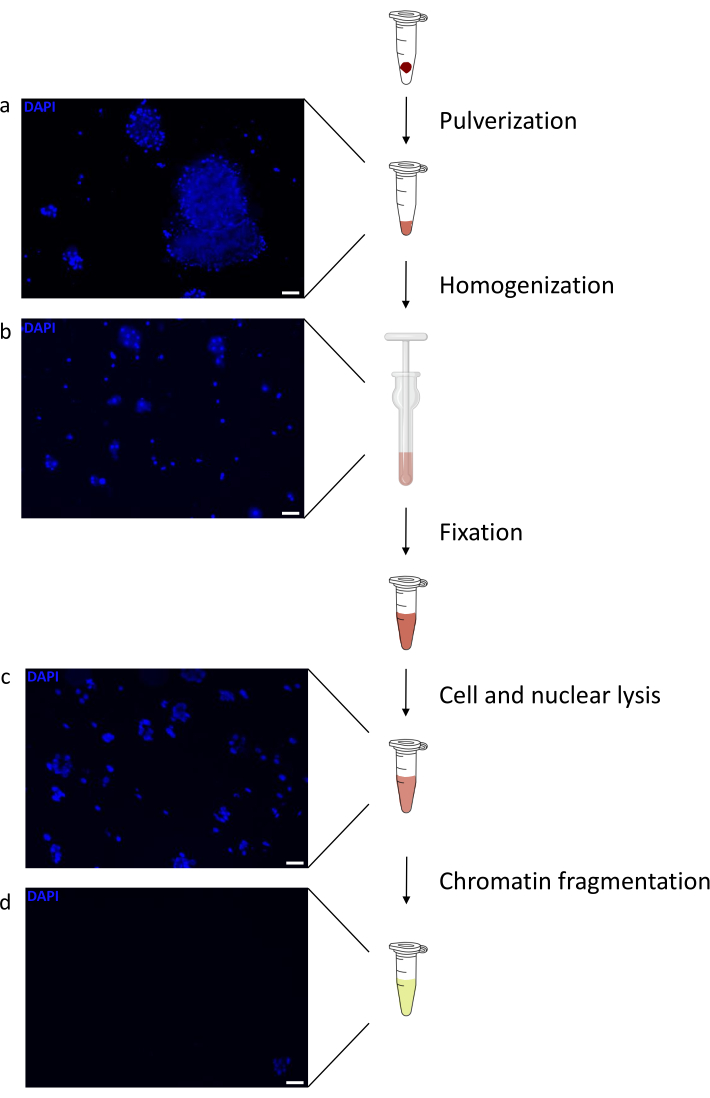
Figuur 1: Chromatine voorbereiding protocol overzicht. Foto's werden gemaakt na weefselverpulvering (a), aanvullende handmatige homogenisatie (b), na nucleaire lyse (c) en na ultrasoonapparaat (vóór centrifugatie) (d). Nucleaire kleuring werd uitgevoerd met Hoechst 33258/DAPI. Schaalbalk = 200 μm. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Representatieve chromatineschering en de kwaliteit ervan beoordeeld door ChIP-qPCR . 1% agarosegel met gefragmenteerde chromatinemonsters volgens protocollen van verschillende chromatinepreparaten. Een controle van ongeschoren chromatine wordt toegevoegd om ervoor te zorgen dat er vooraf geen chromatine/DNA-afbraak plaatsvindt (a). Geschoren chromatine is getest op kwaliteit door een ChIP-qPCR-test uit te voeren. H3K4me3-, H3K27ac- en H3K27me3-antilichamen werden gebruikt om het vers bereide chromatine neer te slaan. b) qPCR-analyse werd uitgevoerd op humane (C1orf43 en PSMB2), murine (Gapdh) actieve promotors en humane (HOXC13, HOXC12), murine (Myt1) inactieve promotors. Klik hier om een grotere versie van deze figuur te bekijken.
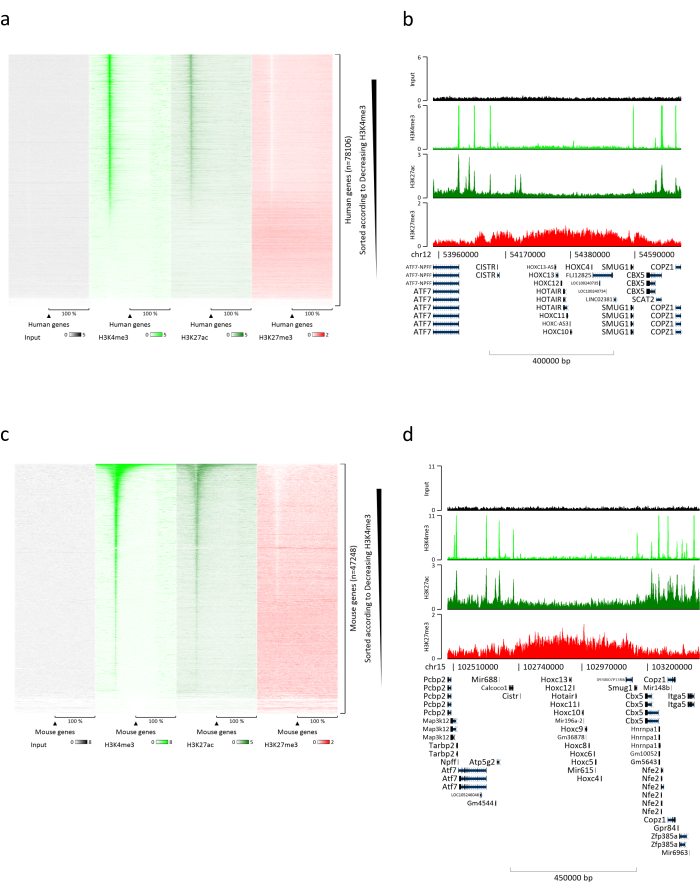
Figuur 3: Representatieve ChIP-seq analyse. Reads zijn afgestemd op een index die is gemaakt met zowel menselijke als muisgenomen (hg19 en mm10). Na uitlijning werden menselijke en murine reads gescheiden en verder geanalyseerd. Heatmap van menselijke genen waarbij het signaal werd gekwantificeerd op de TSS en in dalende volgorde werd getoond voor H3K4me3-intensiteit (a). Voorbeeld van menselijk gencluster van onderdrukte genen (HOX-cluster) omgeven door actieve genen (b). Heatmap van muizengenen waarbij het signaal werd gekwantificeerd op de TSS en weergegeven in dalende volgorde voor H3K4me3-intensiteit (c). Voorbeeld van een muizengencluster van onderdrukte genen (Hox-cluster) omgeven door actieve genen (d). Alle getoonde gegevens zijn genormaliseerd door EaSeq per miljoen keer gelezen. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Suboptimale en mislukte chromatinepreparaten. 1% Agarose gel met gefragmenteerde chromatine samples volgens protocol. De figuur bevat ongeschoren chromatine dat wordt gebruikt als controle (Lane 2), niet optimaal afschuiven (Lane 3-4), optimaal afschuiven met duidelijk materiaalverlies (Lane 5-6), suboptimaal afschuiven (Lane 7) en uitgebreid materiaalverlies (Lane 8). Klik hier om een grotere versie van deze figuur te bekijken.
| Primer naam | Volgorde | |
| C1orf43 promotor | Voorwaarts | AGTGGGTGGAGAATGCAČAC |
| Omkeren | GAGATTACCCCACCCCATTC | |
| PSMB2-promotor | Voorwaarts | CTTATTCAACCCCCGACAAA |
| Omkeren | GATGAAGGACGGTGAGAGGA | |
| HOXC13 distale promotor | Voorwaarts | GAGCCCGAGATTCACTCAAC |
| Omkeren | TTATGCCCAGTTTTGGGGTA | |
| HOXC12 distale promotor | Voorwaarts | AAAGCTTCCCACTGCAAAGA |
| Omkeren | AAATCTGGGGGCGAACTACT | |
| mGAPDH promotor | Voorwaarts | GGTCCAAAGAGAGGGAGGAG |
| Omkeren | GCCCTGCTTATCCAGTCCTA | |
| mMYT promotor | Voorwaarts | CAGCCCAATTCTAGCCACAT |
| Omkeren | CCAAAGCAGGAGGAGTAGGAG |
Tabel 1: qPCR primers lijst voor actieve en inactieve genen gebruikt voor ChIP-qPCR assays.
Discussie
Chromatinepreparatie uit snap bevroren weefsel blijft een uitdaging vanwege het aantal stappen dat moet worden geoptimaliseerd om reproduceerbare en betrouwbare resultaten te bereiken. De meeste van de reeds gepubliceerde protocollen 16,23 vereisen weefselgehakt vóór de handmatige dissociatie (douncing). We probeerden stappen die eiwitafbraak vóór de fixatie van het monster konden veroorzaken zoveel mogelijk te vermijden. De verpulveringsstap wordt al gebruikt in bevroren leverpreparaten24 en maakt de handmatige dissociatie gemakkelijker en reproduceerbaar (zie figuur 2a). Met het gebruik van een mortel die speciaal is ontworpen voor buizen van 1,5 ml (zie protocollen), wordt het monsterverlies tijdens het verpulveringsproces verminderd, waardoor kleine hoeveelheden weefsel zoals leverbiopsiemonsters kunnen worden verwerkt. In principe is het mogelijk om directe weefselhomogenisatie te gebruiken zonder slijpstappen; Weefselhomogenisatie zonder eerdere verpulvering heeft echter een slechtere reproduceerbaarheid in onze ervaring en het optreden van problemen voor downstream-toepassingen was hoger (gegevens niet getoond).
De meeste problemen bij het bereiden van chromatine uit weefsels zijn het gevolg van de aard van deze monsters en het onvermogen om goed te controleren of de celclusters klein genoeg zijn voor fixatie zonder kwaliteitsverlies. Bovendien zou het controleren van elke aliquot bij elke stap tijdrovend zijn, waardoor de kans op eiwitafbraak toeneemt.
Fixatie (stap 3.9) is een fundamenteel en cruciaal onderdeel van het chromatinepreparaat. Vanwege de aard van het weefsel is de fixatiestap uitgesteld totdat het weefsel was gehomogeniseerd. Een dergelijke uitgestelde fixatiestap heeft het voordeel dat een homogenere celsuspensie ontstaat. We erkennen echter dat het in het geval van bijzonder manipulatiegevoelige doelen nodig kan zijn om de fixatie vlak voor stap 3.6 uit te voeren. Dit zou helpen bij het beschermen van extreem gevoelige eiwitten of PTM's, hoewel het de grootte van de celclusters kan vergroten, die bij fixatie kunnen resulteren in niet-homogene afschuiving. De concentratie van de FA-oplossing die in het protocol wordt gebruikt, is standaard, maar kan worden gewijzigd om te proberen de algehele fixatie te verbeteren. De hier gekozen fixatietijd weerspiegelt ook de standaardomstandigheden die vaak in het veld worden gebruikt. In geval van een hogere concentratie van de fixatieoplossing kan de fixatietijd worden verkort, terwijl deze in het geval van een lagere hoeveelheid moet worden verhoogd. De exploitant moet er rekening mee houden dat een verandering van de fixatietijd kan leiden tot overfixatie van het monster of ruimte kan geven voor eiwitafbraak. In het geval van het richten op het neerslaan van grote complexen (of een deel ervan) en TF's, zou het voordelig zijn om een dubbele stapfixatie uit te voeren met behulp van een DSG-oplossing gevolgd door een FA-oplossing25,26. DSG zou in dit geval eiwit-eiwitinteracties stabiliseren, terwijl formaldehyde vooral inwerkt op directe DNA-eiwitinteracties27.
De exploitant moet rekening houden met de mogelijkheid om vanaf stap 6.7 een kolomgebaseerde kit voor DNA-zuivering te implementeren, die sneller is en geen toxische verbindingen gebruikt. Er zal echter altijd een bepaalde hoeveelheid ongebonden DNA verloren gaan. Om deze reden raden we aan om de klassieke fenol-chloroform-extractie te gebruiken, gevolgd door EtOH-precipitatie. Bovendien kan het nuttig zijn om voor het uitvoeren van de agarose-gel (stap 7.2) de DNA-concentratie te meten en dezelfde hoeveelheid voor elke put te laden om een duidelijker beeld te krijgen.
Een beperking van dit protocol komt voort uit het feit dat we dit protocol alleen hebben onderzocht en gebruikt met behulp van levermonsters die zijn afgeleid van mens-lever chimere muizen28. Op zich bestaat de lever uit epitheel- en bindweefsel29. In geval van ziekte kunnen fibrotisch weefsel en vetweefsel aanwezig zijn30,31 waardoor extra uitdagingen ontstaan tijdens weefselverstoring. We erkennen echter dat ons protocol mogelijk niet wordt gebruikt op bot-, spier- en vetweefsel zonder optimalisatie van de dissociatie- en ultrasoonapparaatstappen. Om op te merken is dat elk weefsel een soort optimalisatie vereist vanwege de afwezigheid van een protocol dat geschikt is voor al deze weefsels, zoals voor celkweekmonsters15. Wij geloven echter dat met weinig of geen optimalisatie dit protocol met succes kan worden toegepast op andere weefsels die overeenkomsten hebben met de lever in samenstelling, zoals long-, darm-, maag-, pancreas- of nierweefsels.
Ons protocol is ook met succes gebruikt voor het analyseren van TF's en histonmodificaties op het HBV covalent gesloten DNA-episoom (cccDNA)32. Dit opent de kans om een dergelijke aanpak toe te passen op andere virale genomen die de lever beïnvloeden, zoals humaan Cytomegalovirus33 (hCMV) en menselijke Adenovirussen34 (HAdV). Het is niet uitgesloten dat het mogelijk zou zijn om andere DNA-virussen te analyseren die een aanhoudende infectie in andere weefsels vaststellen, zoals Kaposi Sarcoma Herpes Virus35 (KHSV), Herpes Simplex Virus36 (HSV1/2) Polyoma-virussen, Epstein-Barr Virus37 (EBV).
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
De studie werd ondersteund door de German Research Foundation (DFG) door een subsidie aan Maura Dandri (SFB 841 A5) en door de staat Hamburg met het onderzoeksprogramma (LFF-FV44: EPILOG).
We willen Dr. Tassilo Volz, Yvonne Ladiges en Annika Volmari bedanken voor de technische hulp en voor het kritisch lezen van het manuscript. Dr. Thomas Günther en Prof. Adam Grundhoff voor het geven van zeer nuttige suggesties en de primer sets voor de ChIP-qPCR analyse.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.22µm steriele spuitfilter | Labsolute | 7699822 | |
| 1.5 mL Safeseal buizen | Sarstedt | 7,27,06,400 | |
| 6x oranje laaddye | Thermofisher | R0631 | |
| Benchtop gekoelde centrifuge | |||
| Bioruptor NGS | Diagenode | ||
| Mes of scalpel | |||
| Calciumchloride dihydraat | Carl Roth | HN04 | |
| Chloroform | Sigma Aldrich (Merck) | C2432 | |
| cOmplete Protease Inhibitor Cocktail | Roche | 11697498001 | |
| Deacetylase Inhibitor | Active Motif | 37494 | |
| Dounce weefselmolen set | Sigma Aldrich (Merck) | DWK885300-0001-1EA | |
| EDTA 500 mM oplossing | PanReac AppliChem | A4892 | |
| EGTA | Sigma Aldrich (Merck) | E4378 | |
| EtBr | Carl Roth | 2218 | Concentratie 10mg/mL |
| Ethanol absoluut | CHEMSOLUTE | 2273 | |
| Glycerol | Sigma Aldrich (Merck) | G9012 | |
| Glycine | Carl Roth | 0079 | |
| Glycogen | Roche | 10901393001 | Concentratie: 20mg/mL |
| Verwarmingsblok | |||
| HEPES | Sigma Aldrich (Merck) | H4034 | |
| LE Agarose | Biozym | 840000 | |
| Vloeibare stikstof gekoelde mini-stamper | Bel-Art | H37260-0100 | |
| MeOH vrij Formaldehyde 16% | Thermofisher | 28908 | |
| NP-40 | Roche | 11332473001 | |
| PBS 1x | Thermofisher | 10010015 | |
| Pefabloc SC-Protease-Inhibitor | Sigma Aldrich (Merck) | 11429868001 | |
| Phase Lock Gel - Heavy | QuantaBio | 2302830 | |
| Fenol:Chloroform:Isoamyl alcohol 25:24:1 | Sigma Aldrich (Merck) | P3803 | |
| Kaliumchloride | Carl Roth | 6781 | |
| Kaliumhydroxide | Merck | 105033 | |
| Proteinase K | Lucigen | MPRK092 | Concentratie: 50 µg/µL |
| RNAse A | Lucigen | MRNA092 | Concentratie: 5 mg/mL |
| SDS 10% oplossing | PanReac AppliChem | A3950 | |
| Anhydreus natriumcarbonaat | Carl Roth | A135 | |
| Natriumchloride | Sigma Aldrich (Merck) | S7653 | |
| Steriele Petri-schalen | Sarstedt | 83,39,02,500 | |
| Tris-HCl oplossing | Sigma Aldrich (Merck) | T2694 | |
| Triton-X100 | Sigma Aldrich (Merck) | X100 |
Referenties
- Waddington, C. H., Pantelouris, E. M. Transplantation of nuclei in newt's eggs. Nature. 172 (4388), 1050-1051 (1953).
- Silmon de Monerri, N. C., Kim, K. Pathogens hijack the epigenome: A new twist on host-pathogen interactions. American Journal of Pathology. 184 (4), 897-911 (2014).
- Knipe, D. M., et al. Snapshots: chromatin control of viral infection. Virology. 435 (1), 141-156 (2013).
- Tropberger, P., et al. Mapping of histone modifications in episomal HBV cccDNA uncovers an unusual chromatin organization amenable to epigenetic manipulation. Proceedings of the National Academy of Sciences of the United States of America. 112 (42), 5715-5724 (2015).
- Sproul, D., Gilbert, N., Bickmore, W. A. The role of chromatin structure in regulating the expression of clustered genes. Nature Reviews Genetics. 6 (10), 775-781 (2005).
- Fischle, W., Wang, Y., Allis, C. D. Histone and chromatin cross-talk. Current Opinion in Cell Biology. 15 (2), 172-183 (2003).
- Ling, X., Harkness, T. A., Schultz, M. C., Fisher-Adams, G., Grunstein, M. Yeast histone H3 and H4 amino termini are important for nucleosome assembly in vivo and in vitro: redundant and position-independent functions in assembly but not in gene regulation. Genes & Development. 10 (6), 686-699 (1996).
- Zhang, L., Eugeni, E. E., Parthun, M. R., Freitas, M. A. Identification of novel histone post-translational modifications by peptide mass fingerprinting. Chromosoma. 112 (2), 77-86 (2003).
- Wang, H., et al. Role of histone H2A ubiquitination in Polycomb silencing. Nature. 431 (7010), 873-878 (2004).
- Hassa, P. O., Haenni, S. S., Elser, M., Hottiger, M. O. Nuclear ADP-ribosylation reactions in mammalian cells: where are we today and where are we going. Microbiology and Molecular Biology Reviews. 70 (3), 789-829 (2006).
- Dey, B., et al. DNA-protein interactions: methods for detection and analysis. Molecular and Cellular Biochemistry. 365 (1-2), 279-299 (2012).
- Hager, G. L., McNally, J. G., Misteli, T. Transcription dynamics. Molecular Cell. 35 (6), 741-753 (2009).
- Nagy, Z., Tora, L. Distinct GCN5/PCAF-containing complexes function as co-activators and are involved in transcription factor and global histone acetylation. Oncogene. 26 (37), 5341-5357 (2007).
- Solomon, M. J., Larsen, P. L., Varshavsky, A. Mapping protein-DNA interactions in vivo with formaldehyde: evidence that histone H4 is retained on a highly transcribed gene. Cell. 53 (6), 937-947 (1988).
- Gunther, T., Theiss, J. M., Fischer, N., Grundhoff, A. Investigation of viral and host chromatin by ChIP-PCR or ChIP-Seq analysis. Current Protocols in Microbiology. 40, 11-21 (2016).
- Cotney, J. L., Noonan, J. P. Chromatin immunoprecipitation with fixed animal tissues and preparation for high-throughput sequencing. Cold Spring Harbor Protocols. 2015 (4), 419(2015).
- Haim, Y., Tarnovscki, T., Bashari, D., Rudich, A. A chromatin immunoprecipitation (ChIP) protocol for use in whole human adipose tissue. American Journal of Physiology-Endocrinology and Metabolism. 305 (9), 1172-1177 (2013).
- Castellano-Castillo, D., et al. Chromatin immunoprecipitation improvements for the processing of small frozen pieces of adipose tissue. PLoS One. 13 (2), 0192314(2018).
- Savic, D., Gertz, J., Jain, P., Cooper, G. M., Myers, R. M. Mapping genome-wide transcription factor binding sites in frozen tissues. Epigenetics Chromatin. 6 (1), 30(2013).
- Perna, A., Alberi, L. A. TF-ChIP method for tissue-specific gene targets. Frontiers Cell Neuroscience. 13, 95(2019).
- Allweiss, L., et al. Proliferation of primary human hepatocytes and prevention of hepatitis B virus reinfection efficiently deplete nuclear cccDNA in vivo. Gut. 67 (3), 542-552 (2018).
- Lerdrup, M., Johansen, J. V., Agrawal-Singh, S., Hansen, K. An interactive environment for agile analysis and visualization of ChIP-sequencing data. Nature Structural & Molecular Biology. 23 (4), 349-357 (2016).
- Perna, A., Alberi, L. A. TF-ChIP Method for Tissue-Specific Gene Targets. Frontiers in Cellular Neuroscience. 13, 95(2019).
- Liang, N., Fan, R., Goni, S., Treuter, E. Preparation of Frozen Liver Tissues for Integrated Omics Analysis. Methods in Molecular Biology. 1951, 167-178 (2019).
- Liu, Z., et al. Proteomic and network analysis of human serum albuminome by integrated use of quick crosslinking and two-step precipitation. Scientific Reports. 7 (1), 9856(2017).
- Singh, A. A., et al. Optimized ChIP-seq method facilitates transcription factor profiling in human tumors. Life Science Alliance. 2 (1), 201800115(2019).
- Aoki, T., et al. Bi-functional cross-linking reagents efficiently capture protein-DNA complexes in Drosophila embryos. Fly. 8 (1), 43-51 (2014).
- Allweiss, L., Dandri, M. Experimental in vitro and in vivo models for the study of human hepatitis B virus infection. Journal of Hepatology. 64, 1 Suppl 17-31 (2016).
- Krishna, M. Microscopic anatomy of the liver. Clinics in Liver Disease. 2, Suppl 1 4-7 (2013).
- Tannapfel, A., et al. Histopathological diagnosis of non-alcoholic and alcoholic fatty liver disease. Virchows Archiv. 458 (5), 511-523 (2011).
- Schuppan, D., Afdhal, N. H. Liver cirrhosis. Lancet. 371 (9615), 838-851 (2008).
- Allweiss, L., et al. Therapeutic shutdown of HBV transcripts promotes reappearance of the SMC5/6 complex and silencing of the viral genome in vivo. Gut. , 322571(2021).
- Gerna, G., Kabanova, A., Lilleri, D. Human cytomegalovirus cell tropism and host cell receptors. Vaccines. 7 (3), (2019).
- Echavarria, M. Adenoviruses in immunocompromised hosts. Clinical Microbiology Reviews. 21 (4), 704-715 (2008).
- Frohlich, J., Grundhoff, A. Epigenetic control in Kaposi sarcoma-associated herpesvirus infection and associated disease. Seminars in Immunopathology. 42 (2), 143-157 (2020).
- Nicoll, M. P., Proenca, J. T., Efstathiou, S. The molecular basis of herpes simplex virus latency. FEMS Microbiology Reviews. 36 (3), 684-705 (2012).
- Thorley-Lawson, D. A., Hawkins, J. B., Tracy, S. I., Shapiro, M. The pathogenesis of Epstein-Barr virus persistent infection. Current Opinion in Virology. 3 (3), 227-232 (2013).
Herprints en machtigingen
