Hier presenteren we een protocol om hoogwaardige kernen uit bevroren muizennieren te isoleren die de representatie van medullaire nierceltypen verbeteren en de genexpressieartefacten van enzymatische weefseldissociatie vermijden.
Methodenartikel
Nuclei-isolatie van volwassen muizennier voor single-nucleus RNA-sequencing
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
De nieren reguleren diverse biologische processen zoals water, elektrolyt en zuur-base homeostase. Fysiologische functies van de nier worden uitgevoerd door meerdere celtypen gerangschikt in een complexe architectuur over de corticomedullaire as van het orgaan. Recente ontwikkelingen in single-cell transcriptomics hebben het begrip van celtype-specifieke genexpressie in nierfysiologie en ziekte versneld. Op enzymen gebaseerde weefseldissociatieprotocollen, die vaak worden gebruikt voor eencellige RNA-sequencing (scRNA-seq), vereisen echter meestal vers (niet-gearchiveerd) weefsel, introduceren transcriptionele stressreacties en bevorderen de selectie van overvloedige celtypen van de nierschors, wat resulteert in een ondervertegenwoordiging van cellen van de medulla.
Hier presenteren we een protocol dat deze problemen voorkomt. Het protocol is gebaseerd op kernisolatie bij 4 °C uit bevroren nierweefsel. Kernen worden geïsoleerd uit een centraal stuk van de muizennier dat bestaat uit de cortex, de buitenste medulla en de binnenste medulla. Dit vermindert de oververtegenwoordiging van corticale cellen die typisch zijn voor hele niermonsters ten behoeve van medullaire cellen, zodat gegevens de gehele corticomedullaire as met voldoende overvloed weergeven. Het protocol is eenvoudig, snel en aanpasbaar en biedt een stap in de richting van de standaardisatie van single-nuclei transcriptomics in nieronderzoek.
Inleiding
Nieren vertonen een zeer complexe weefselarchitectuur. Ze bestaan uit functioneel en anatomisch verschillende segmenten langs een corticomedullaire as en bemiddelen biologische functies, zoals regulatie van extracellulair vloeistofvolume, elektrolytenbalans of zuur-base homeostase1.
Vooruitgang in single-cell transcriptomics heeft de diepgaande karakterisering van complexe weefsels mogelijk gemaakt en het begrip van segment- en celtypespecifieke genexpressie in nierfysiologie, ontwikkeling en ziekte versneld 2,3,4.
De op enzymen gebaseerde dissociatieprotocollen die vaak worden gebruikt voor scRNA-seq vertonen echter verschillende nadelen en beperkingen. Afhankelijk van het protocol genereren ze transcriptionele stressreacties en weefseldissociatiebias naar gemakkelijker te dissociëren corticale celtypen 5,6. Hoewel protocollen met behulp van koud-actieve proteasen voor embryonale nieren in staat zijn om stressgerelateerde transcriptionele veranderingen te verminderen, slagen ze er niet in om de dissociatiebias ten opzichte van corticale cellen te overwinnen en zijn ze mogelijk niet gemakkelijk aan te passen aan verschillende soorten zieke nierweefsels7. Bovendien zijn eencellige benaderingen niet gemakkelijk compatibel met ingevroren weefselmonsters, waardoor de toepassing ervan meestal wordt beperkt tot niet-gearchiveerd, vers weefsel, waardoor de weefselverzameling een beperkende factor6 wordt.
Single-nuclei RNA sequencing (snRNA-seq) kan deze beperkingen omzeilen 8,9. Hier presenteren we een protocol voor kernisolatie uit een centraal plakje bevroren volwassen muizennierweefsel (figuur 1)10. Ons protocol is eenvoudig en biedt een gestandaardiseerde aanpak om RNA-sequencingbibliotheken te verkrijgen met een evenwichtige weergave van verschillende nierceltypen voor experimentele modellen die geen sterke regionale weefselveranderingen met zich meebrengen. In het laatste geval kan ons protocol ook worden uitgevoerd met hele nieren.
Protocol
Alle dierproeven zijn uitgevoerd in overeenstemming met de Wet dierenwelzijn (TierSchG) en de Regeling Dierenwelzijn Proefdieren (TierSchVersV) en zijn geautoriseerd door de lokale autoriteiten en de Animal Welfare Officers van onze instelling (MDC).
1. Weefselvoorbereiding
- Bereid een 6-well plaat met 2 ml 1x fosfaat-gebufferde zoutoplossing (PBS) per put voor elke nier die zal worden verkregen. Bereid een 6-well plaat met 2 ml RNA-stabilisatie-oplossing per put en nier. Laat beide borden voorkoelen op ijs.
- Euthanaseer een 3- tot 6 maanden oude mannelijke C57BL/6 muis. Plaats de muis op een ontleedbak, speld de ledematen vast en steriliseer de buik met 70% ethanol.
- Open de buik tot aan de ribbenkast met behulp van een tang en een schaar. Til de darm en andere organen opzij en verwijder de nieren door de urineleider, nierslagader en ader voorzichtig met een schaar door te snijden. Was de nier in de eerder bereide, ijskoude 1x PBS en verwijder de nierfascia en eventueel achtergebleven vet uit de nier totdat al het witte weefsel is verwijderd (figuur 2A).
- Plaats de nier op een koude ontleedplaat en gebruik een scherp scalpel of scheermesje om een middelste plak van 1-2 mm te verkrijgen. Zorg ervoor dat het weefselstuk de volledige corticomedullaire as bevat (figuur 2B). Gebruik een microdissectieschaar en een tang om de cortex voorzichtig vanaf de zijkanten van het middenstuk te knippen. Binnen het ontleedde weefselstuk moeten de drie segmenten cortex, buitenste medulla en binnenste medulla duidelijk zichtbaar zijn (figuur 2C).
OPMERKING: De plak mag niet groter zijn dan een dikte van 2 mm of een gewicht van 20 mg om voldoende bufferhoeveelheden te garanderen voor effectieve weefsellyse en om omgevingsachtergrond-RNA in de cDNA-bibliotheken te minimaliseren. Omgevings-RNA verspilt sequentiecapaciteit, omdat het niet geassocieerd is met enkele kernen. - Breng het nierstuk over in de eerder bereide RNA-stabilisatieoplossing en incubeer gedurende 24 uur bij 4 °C om RNA-afbraak te voorkomen. Verwijder na 24 uur de RNA-stabilisatieoplossing en bewaar het weefsel bij -80 °C tot verder gebruik. Verwijder de overtollige oplossing voorzichtig met tissuepapier.
2. Kernisolatie
- Reinigings- en voorbereidingsstappen
- Reinig tafelbladen en pipetten met 70% ethanol en RNase decontaminatieoplossing.
- Reinig een 2 ml weefselslijperbuis met ronde bodem en bijpassende stamper A en B met RNase-decontaminatieoplossing, gevolgd door 70% ethanol en RNase-vrij water (1 slijpbuis en stamperset per monster). Laat het volledig drogen.
- Koel de centrifuge voor tot 4 °C.
- Label en voorkoel drie opvangbuizen van 15 ml, een opvangbuis van 1,5 ml, een opvangbuis van 5 ml fluorescentie-geactiveerde celsortering (FACS) en een droge slijpbuis voor elk monster op ijs.
- Buffervoorbereiding
- Verwarm de Ribonucleoside-vanadyl complex stockoplossing tot 65 °C totdat deze volgens de instructies van de fabrikant wordt gereconstitueerd tot een groenzwarte heldere oplossing. 11
- Bereid 1x PBS met 4% runderserumalbumine (BSA) zoals beschreven in tabel 1A. Bereid daarnaast 1x PBS voor met 0,04% BSA (tabel 1B). Filtreer beide oplossingen met behulp van een 0,2 μm oppervlakteactieve celluloseacetaat (SFCA) membraanspuitfilter en blijf op ijs tot verder gebruik.
- Bereid kernlysisbuffer 1 voor (NLB1, tabel 1C). Voeg 4 ml EZ-lysisbuffer voor Nuclei Lysis Buffer 2 (NLB2, tabel 1D) en 2 ml 0,04 % BSA / PBS voor de Nuclei Suspension Buffer (NSB, tabel 1E) toe aan 15 ml buizen. Voeg de RNase-remmeroplossing direct voor gebruik toe aan NLB2 en NSB, zoals hieronder aangegeven in het protocol. Op ijs bewaren tot verder gebruik.
- Bereid EZ lysis buffer met 10% sucrose (Sucrose Gradient Buffer, Tabel 1F). Meng goed en filtreer de buffer in een verse buis van 15 ml met behulp van een SFCA-membraanspuitfilter van 0,2 μmbraan. Op ijs bewaren tot verder gebruik.
- Weefselhomogenisatie en cellyse
OPMERKING: Om RNA-degradatie te minimaliseren, worden alle stappen op ijs uitgevoerd. De slijpbuis, petrischaal en alle buffers moeten worden voorgekoeld. Alle resuspensiestappen worden uitgevoerd door de kernsuspensie zorgvuldig te pipetteren. Draai het monster niet om schuifkrachten en schade aan kernen te voorkomen.- Neem het bevroren nierstuk en breng het over in een 60 mm polystyreen petrischaaltje op ijs met 1 ml NLB1.
- Hak het weefsel grondig fijn met een scheermesje of scalpel (figuur 3A).
- Snijd de punt van een pipetpunt van 1 ml af en breng het gehakte weefsel en de buffer over naar de slijpbuis. Zorg ervoor dat u alle weefselstukken overbrengt. Was de petrischaal 5-10 keer met de buffer, indien nodig.
- Homogeniseer de suspensie op ijs door stamper A langzaam op en neer te bewegen in de slijpbuis. Vermijd luchtbellen veroorzaakt door snelle beweging (figuur 3B).
- Haal het homogenaat door een zeef van 100 μm in een voorgekoelde opvangbuis van 15 ml en was het filter met nog eens 1 ml NLB1.
- Was de slijpbuis met koude EZ nuclei lysis buffer en gooi de buffer weg.
- Breng het homogenaat terug in de slijpbuis en homogeniseer de suspensie op ijs door stamper B langzaam te bewegen, 15x op en neer in de slijpbuis. Vermijd luchtbellen veroorzaakt door snelle beweging (figuur 3C).
- Breng het homogenaat over in een voorgekoelde opvangbuis van 15 ml. Was de slijpbuis met nog eens 2 ml NLB1 en zorg ervoor dat u alle weefselfragmenten overbrengt naar de opvangbuis. Incubeer het homogenaat (totaal volume van 4 ml) gedurende 5 minuten op ijs om de cellen te lyseren.
- Kernzuivering
- Breng het homogenaat door een zeef van 40 μm in een voorgekoelde opvangbuis van 15 ml. Draai de opvangbuis gedurende 5 minuten bij 500 x g bij 4 °C in een centrifuge met een rotor met draaibak. Voeg in de tussentijd RNase-remmeroplossing toe aan NLB2 (tabel 1D).
- Verwijder het supernatant zonder de pellet te verstoren. Resuspensie van de pellet voorzichtig in 4 ml NLB2.
- Onderleg de suspensie voorzichtig met een 1 ml kussen van Sucrose Gradient Buffer. Centrifugeer bij 500 x g gedurende 5 minuten bij 4 °C in een centrifuge met een rotor met draaibak. Voeg in de tussentijd RNase-remmeroplossing toe aan NSB (tabel 1E).
- Verwijder na het centrifugeren voorzichtig de opvangbuis uit de centrifuge en zorg ervoor dat u de twee lagen niet verstoort bij het hanteren van de opvangbuis. Celresten zijn zichtbaar tussen de twee lagen. Verwijder het supernatant voorzichtig, te beginnen met het vuil. Verwijder het resterende supernatant zonder de kernpellet te verstoren en resuspensie de pellet voorzichtig in 1 ml NSB.
OPMERKING: Het resuspensievolume is afhankelijk van de hoeveelheid weefsel die wordt gebruikt voor de isolatie en de pelletgrootte die is verkregen na de laatste centrifugatiestap. Het volume moet mogelijk worden aangepast aan het verwachte aantal kernen. - Breng het homogenaat door een zeef van 20 μm in de voorgekoelde 5 ml FACS-opvangbuis.
3. Sorteren van kernen
- Voeg 20 μL 4′,6-diamidino-2-fenylindool (DAPI) per ml NSB toe aan een eindconcentratie van 2 μM aan het homogenaat in de FACS-opvangbuis en meng voorzichtig. Incubeer gedurende 5 minuten op ijs.
- Bereid de voorgekoelde opvangbuis van 1,5 ml voor met 20 μL 4% BSA /1x PBS en voeg 0,5 μL RNaseremmeroplossing toe aan een eindconcentratie van 1 U/μL. Ga onmiddellijk verder met sorteren.
- Sorteer de kernen met behulp van een celsorteerder.
- Meng de kernsuspensie kort voordat u de FACS-opvangbuis in de sorteerder steekt.
- Stel een eerste poort P1 in op basis van de voorwaartse verstrooiing (FSC) en zijverstrooiing (SSC) om puin en aggregaten uit te sluiten (figuur 4A).
- Om lege of beschadigde kernen en veelvouden uit te sluiten, stelt u een volgende poort in op basis van het DAPI-gebied versus DAPI-hoogte (DAPI-A versus DAPI-H) (figuur 4B).
- Sorteer enkele kernen in de 1,5 ml opvangbuis met 4% BSA /1x PBS met 1 U/μL RNaseremmeroplossing bereid in 3.2.
4. Kwaliteitscontrole
- Meet de uiteindelijke kernconcentratie onder een fluorescentiemicroscoop of in een geautomatiseerde telkamer in ten minste twee onafhankelijke tellingen en beoordeel de suspensiekwaliteit (figuur 5).
OPMERKING: Optimale concentraties liggen tussen 700 - 1.200 kernen / μL. Lagere celconcentraties zoals 700 kernen / μL kunnen de voorkeur hebben omdat resulterende cDNA-bibliotheken minder omringend achtergrond-RNA bevatten (transcripten die niet geassocieerd zijn met individuele kernen). - Bereken het vereiste volume kernsuspensie voor het gewenste herstel van gesequencede enkele kernen. Om nuclei-aggregatie en RNA-degradatie te voorkomen, gaat u onmiddellijk over tot bibliotheekvoorbereiding.
Resultaten
Om de prestaties van ons protocol te bepalen, gebruikten we de 10x Genomics Chromium Single Cell 3' Gene Expression Kit v3.1 voor bibliotheekvoorbereiding en analyseerden we de snRNA-seq-gegevens met het Serat-pakket12,13.
Figuur 6 toont de resultaten van een representatieve snRNA-seq bibliotheek. Om de kwaliteit van onze kernen te beoordelen, hebben we het aantal genen uitgezet tegen het aantal transcripten (gedefinieerd door unieke moleculaire identificaties (UMI's)) gekleurd door de fractie van mitochondriale reads (figuur 6A). Kernen van goede kwaliteit vertonen over het algemeen hogere aantallen reads, correlerende UMI en gennummers en lage mitochondriale leesfracties.
Voor de daaropvolgende analyse werden kernen met minder dan 500 of meer dan 4000 getelde genen, of meer dan 5% mitochondriaal RNA uitgesloten (n = 828). Alleen genen die tot expressie kwamen in minimaal drie kernen werden opgenomen. We ontdekten in totaal ongeveer 20.000 genen in de resterende 6.000 kernen met 1.600 mediane genen en 2.800 mediane UMI's per kern (figuur 6B).
Clustering was gebaseerd op zeer variabele genen. We identificeerden in totaal 18 clusters. Celidentiteiten werden geannoteerd op basis van bekende markergenen (niet getoond). Subclusters van één celtype werden samengevat tot één cluster, wat resulteerde in een totaal van 11 verschillende celtypen: podocyten, proximale tubulus (PT), dunne ledemaat (tL), dikke opgaande ledemaat (TAL), distale convoluted tubulus (DCT), verbindingsbuisje (CNT), verzamelkanaalhoofd- en intercalated cellen (CD-PC, A-IC, B-IC), diep medullair epitheel van het bekken (DMEP) en endotheel. Genexpressiepatronen van clusterverrijkte markers werden gevisualiseerd in een dot plot (Figuur 6C) en celtype clusters in een t-gedistribueerde stochastische buur embedding (t-SNE) plot (Figuur 6D).
Om de celtypeverdelingen in onze steekproef te beoordelen, werd het percentage van elk celtype berekend (figuur 6E) en gebruikt om de verhouding tussen PT en TAL te bepalen. De PT bevindt zich voornamelijk in de nierschors en is vaak oververtegenwoordigd in nier eencellige datasets omdat cellen van de PT gemakkelijk te dissociëren zijn en zeer overvloedig aanwezig zijn in hele niermonsters. De TAL daarentegen strekt zich uit over de gehele buitenste medulla14. De verhouding tussen PT- en TAL-fracties is dus een goede maat voor de verrijking van medullaire celtypen in een niereencellige dataset. Over het algemeen varieerde de PT / TAL-ratio in eencellige hele nierdatasets van 8 (ongepubliceerde gegevens van met koud protease behandeld volledig nierweefsel) tot 45 voor enzymatisch gedissocieerd weefsel10,14,15. In de hier gepresenteerde snRNA-seq dataset konden we een PT/TAL ratio van 2 bereiken. Dit resultaat illustreert dat verwijdering van overtollige cortex tijdens weefseldissectie in combinatie met snRNA-seq resulteert in een opvallend verbeterde weergave van het nierceltype.
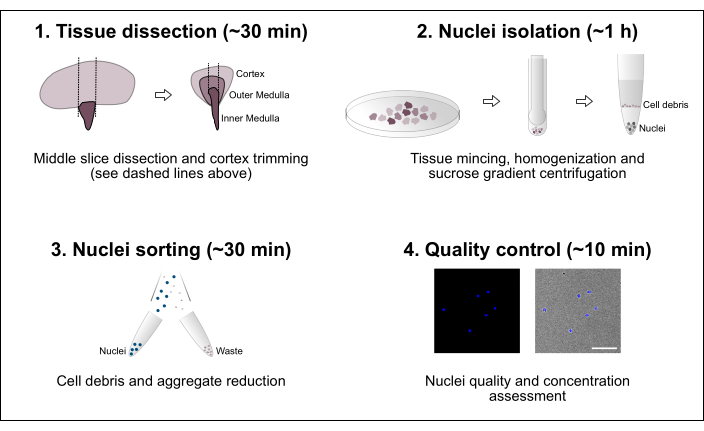
Figuur 1: Schematisch overzicht van de workflow. Het protocol bestaat uit vier belangrijke stappen, waaronder weefseldissectie gevolgd door kernisolatie, kernsortering en een definitieve zuiverheids- en concentratiebeoordeling. Schaalbalk = 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Nierdissectie en weefselpreparaat . (A) Representatief beeld van ontleedde hele nier. De stippellijnen geven de sneden aan die nodig zijn om een middelste plak van 1-2 mm te verkrijgen met een weergave van alle nierceltypen. (B) Representatieve afbeelding van de verkregen middelste schijf. De stippellijnen geven de sneden aan voor het trimmen van de cortex vanaf de zijkant. (C) Representatief beeld van centraal nierstuk met bijgesneden cortex. Cortex (C), outer medulla (OM) en inner medulla (IM) zijn duidelijk zichtbaar. Schaalbalk = 500 μm. Klik hier om een grotere versie van deze figuur te bekijken.
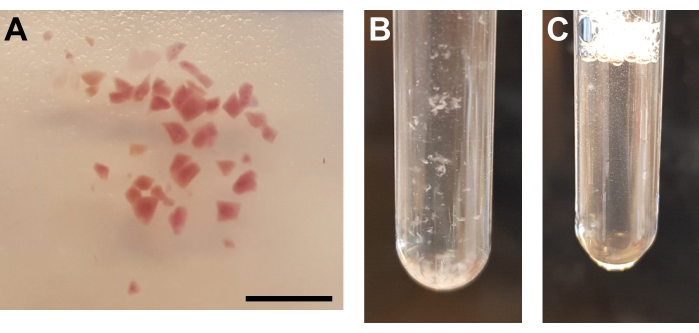
Figuur 3: Weefselhomogenisatie en kernzuivering . (A) Representatief beeld van voldoende gehakt nierweefsel. Schaalbalk = 500 μm. (B) Homogeneren na eerste homogenisatiestap (25 slagen met stamper A, 2 ml slijpbuis). (C) Homogenaat na tweede homogenisatiestap (15 slagen met stamper B, 2 ml slijpbuis). Klik hier om een grotere versie van deze figuur te bekijken.
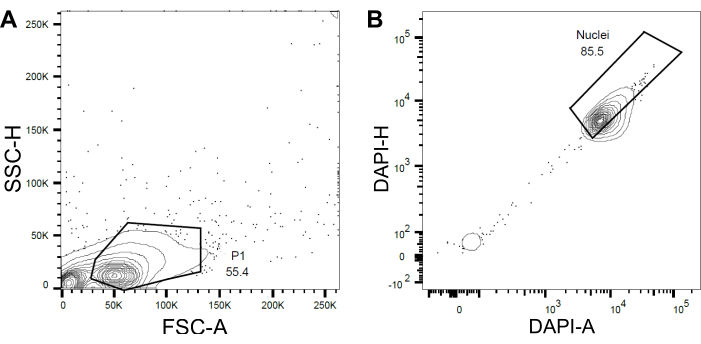
Figuur 4: Gating strategie voor het sorteren van kernen. (A ) Een eerste poort P1 werd ingesteld op basis van forward scatter (FSC) vs side scatter (SSC) om puin en aggregaten uit te sluiten. (B ) Een volgende poort op basis van DAPI-Area (DAPI-A) versus DAPI-Height (DAPI-H) sloot lege of beschadigde kernen en multiplets uit. Klik hier om een grotere versie van deze figuur te bekijken.
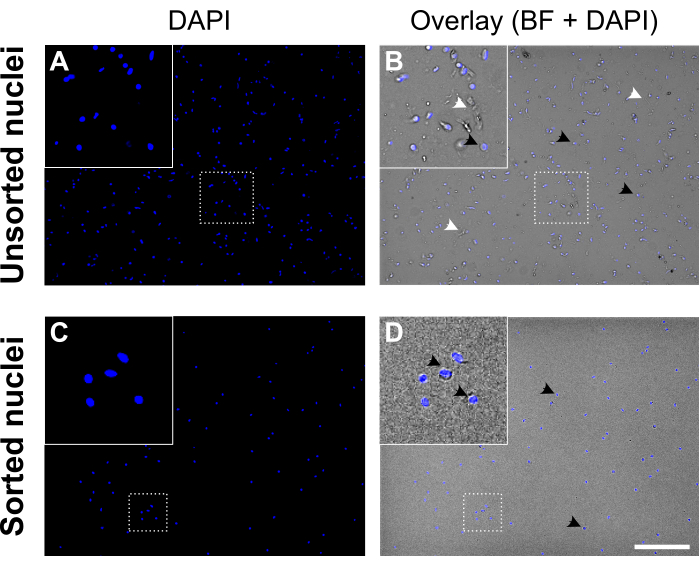
Figuur 5: Kernsuspensie voor en na het sorteren van kernen. (A, C) DAPI-gekleurde kernen (blauw). (B, D) Overlay van DAPI en brightfield (BF) kanaal. Voor het sorteren (bovenpaneel) bevat de kernsuspensie celresten en aggregaten (gelabeld met witte pijlpunten). Na sortering (onderste paneel) ziet de kernsuspensie er veel schoner uit. Voorbeelden van DAPI-gekleurde kernen zijn gelabeld met zwarte pijlpunten. Kernen van goede kwaliteit lijken rond en glad met een intact membraan en zijn goed gescheiden, terwijl kernen van slechte kwaliteit gerimpeld lijken en verlies van het kernmembraan vertonen. Schaalbalk = 250 μm. Klik hier om een grotere versie van deze figuur te bekijken.
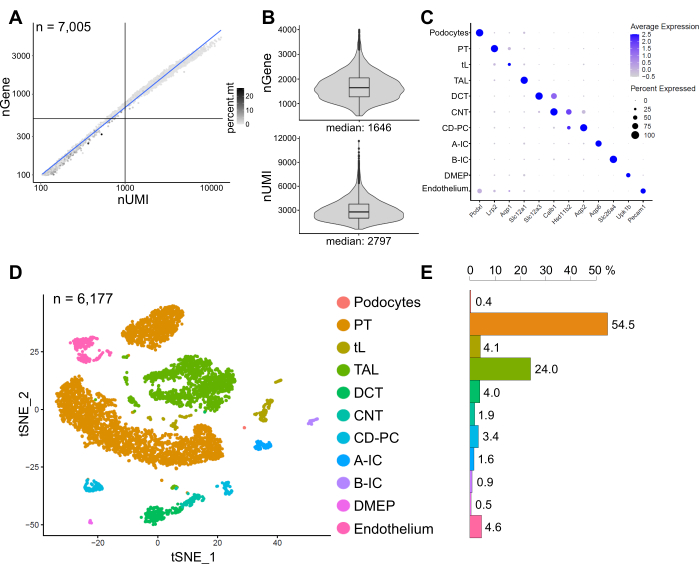
Figuur 6: Kwaliteitscontrole en analyse van een representatieve snRNA-seq dataset. (A) Aantal genen (nGene) uitgezet tegen het aantal unieke moleculaire identificatoren (nUMI) gekleurd door de fractie van mitochondriale reads (percent.mt). Kernen van lage kwaliteit komen overeen met het kwadrant linksonder van de grafiek (n = 828) en werden uitgesloten van latere analyse. (B) Distributie en mediaan van nGene en nUMI gedetecteerd per kern in de snRNA-seq dataset, die 6.177 kernen (> 500 genen) vertegenwoordigt. Bibliotheken werden gesequenced tot een mediane diepte van ~ 8.200 in kaart gebrachte lezingen per kern. (C) Dot plot met genexpressiepatronen van clusterverrijkte markers (x-as) voor individuele celtypen (y-as). De grootte van de stip komt overeen met het aandeel cellen dat het aangegeven gen tot expressie brengt. De kleur komt overeen met de gemiddelde expressie. (D) T-gedistribueerde stochastische bureninbedding (t-SNE) plot van geïdentificeerde celtypen. (E) Celtypeverdeling in snRNA-seq dataset. PT, proximale tubulus; tL, dunne ledemaat; TAL, dikke opgaande ledemaat, DCT, distale convoluted tubulus; CNT, verbindingsbuis; CD-PC, het verzamelen van kanaal belangrijkste cellen; A-IC, type A geïntercaleerde cellen; B-IC, type B geïntercaleerde cellen; DMEP, diep medullair epitheel van het bekken. Klik hier om een grotere versie van deze figuur te bekijken.
| Reagens | Eindconcentratie | Volume (ml) | ||
| a) 4 % BSA/PBS | ||||
| Fosfaat-gebufferde zoutoplossing (PBS) met 10% runderalbumine | 4% | 2 | ||
| PBS (Fosfaat-Gebufferde Zoutoplossing) 1X zonder calcium of magnesium | - | 3 | ||
| b) 0,04 % BSA/PBS | ||||
| 4 % BSA / PBS | 0.04 % | 0.5 | ||
| PBS (Fosfaat-Gebufferde Zoutoplossing) 1X zonder calcium of magnesium | - | 49.5 | ||
| c) Nuclei Lysis Buffer 1 (NLB1) | ||||
| Nucleaire EZ Lysis Buffer | - | 4 | ||
| RiboLock RNaseremmer (40 U/μL) | 1 U/μL | 0.1 | ||
| Ribonucleoside-vanadyl complex (200 mM) | 10 mM | 0.2 | ||
| d) Nuclei Lysis Buffer 2 (NLB2) | ||||
| Nucleaire EZ Lysis Buffer | - | 4 | ||
| RiboLock RNaseremmer (40 U/μL) | 1 U/μL | 0.1 | ||
| e) Nuclei suspensiebuffer (NSB) | ||||
| 0,04 % BSA / PBS | - | 2 | ||
| RiboLock RNaseremmer (40 U/μL) | 1 U/μL | 0.05 | ||
| f) Sacharosegradiëntbuffer (10 % sacharose) | ||||
| Gewicht 1 g sucrose | ||||
| Los op in 6 ml Nuclear EZ Lysis Buffer | ||||
| Vul tot 10 ml met nucleaire EZ lysisbuffer | ||||
| Filtreer door een spuitfilter van 0,2 μm in een verse buis | ||||
Tabel 1: Oplossingsrecepten: (A) Bereiding van 4% BSA/1x PBS. Filtreer met een SFCA-membraanspuitfilter van 0,2 μm en blijf op ijs tot gebruik. (B) Bereiding van 0,04% BSA/1 x PBS. Filtreer met een SFCA-membraanspuitfilter van 0,2 μm en blijf op ijs tot gebruik. c) Bereiding van nuclei lysisbuffer 1 (NLB1). Aangegeven volumes worden per monster verstrekt. Op ijs bewaren tot gebruik. d) Bereiding van kernlysisbuffer 2 (NLB2). Aangegeven volumes worden per monster verstrekt. Voeg RiboLock RNase-remmer direct voor gebruik toe aan NLB2 zoals vermeld in het protocol. Op ijs bewaren tot gebruik. e) Voorbereiding van nuclei suspensiebuffer (NSB). Aangegeven volumes worden per monster verstrekt. Voeg RiboLock RNase-remmer direct voor gebruik toe aan NSB zoals vermeld in het protocol. Op ijs bewaren tot gebruik. f) Voorbereiding van saccharosegradiëntbuffer. Filtreer met een SFCA-membraanspuitfilter van 0,2 μm en blijf op ijs tot gebruik.
Discussie
Single-cell transcriptomics bevorderen het begrip van celtype-specifieke genexpressie in nierfysiologie en ziekte. Hier hebben we een eenvoudige en reproduceerbare methode geleverd om hoogwaardige enkele kernen uit bevroren nierweefsel van muizen te isoleren voor snRNA-seq op een gestandaardiseerde manier.
Voor snRNA-seq is het van cruciaal belang om hoogwaardige kernen te gebruiken als input voor het genereren van bibliotheken en om RNA-afbraak tijdens weefselverwerking te voorkomen. Daarom is de incubatie van weefselstukken in RNA-stabilisatieoplossing onmiddellijk na dissectie essentieel om cellulair RNA te beschermen en te stabiliseren en maakt het mogelijk om monsters voor onbepaalde tijd op te slaan bij - 80 ° C. Bij het toepassen van dit protocol op bevroren weefsel zonder behandeling met RNA-stabilisatieoplossing, zoals archiefmateriaal, is een proefrun vereist en moet de RNA-kwaliteit worden beoordeeld, omdat we een significant verlies van RNA-integriteit hebben waargenomen in snap-bevroren weefsel zonder voorafgaande incubatie in RNA-stabilisatieoplossing.
Over het algemeen is een juiste monsterbehandeling cruciaal voor het maximaliseren van het herstel van intacte, enkele kernen. Alle resuspensiestappen moeten worden uitgevoerd door zorgvuldig te pipetteren om schuifspanning en fysieke schade te voorkomen. Buffers voor de uiteindelijke kernresuspensie en kernsortering moeten BSA bevatten om kernverlies en aggregatie te voorkomen.
Buffervolumes in dit protocol zijn geoptimaliseerd voor zeer kleine weefselmonsters (~ 15 mg). Het is van cruciaal belang om te zorgen voor volledige cellysis en voldoende wassen om hoogwaardige suspensies te genereren. Grotere weefselblokken of hele niermonsters zullen resulteren in overmatige kernconcentraties die leiden tot klontering en aggregatie, hoge overvloed aan omgevings-RNA en algehele slechte suspensiekwaliteit. Als grotere monsters of andere weefsels worden verwerkt, wordt het ten zeerste aanbevolen om proefdraaien uit te voeren om optimale buffervolumes te bepalen voor minimale omgevings-RNA-niveaus. De kwaliteit en concentraties van kernen en RNA moeten zorgvuldig worden onderzocht, omdat overbelasting resulteert in algehele slechte prestaties.
Bovendien beïnvloeden grote hoeveelheden celpuin, waardoor hoge niveaus van omgevings-RNA die niet geassocieerd zijn met enkele kernen, de sequencingresultaten negatief. Opheldering van de kernsuspensie door centrifugatie door middel van een sucrosekussen vermindert dit probleem tot op zekere hoogte, maar het kan ook leiden tot vertekening in de weergave van het celtype door tegenwicht te bieden aan dichte, kleine kernen die bijvoorbeeld aanwezig zijn in immuuncellen16. Als dit van belang is, moet de sucrosegradiënt worden weggelaten. Daarentegen vonden we dat flowcytometrie op basis van DAPI-kleuring van cruciaal belang was om de hoeveelheid celresten te verminderen om een hoogwaardige suspensie met één kern te produceren.
De isolatie van enkele kernen heeft aanzienlijke voordelen in vergelijking met eencellige benaderingen8. Het is compatibel met goed bevroren weefsel, waardoor de weefselverzameling flexibeler wordt en omzeilt de noodzaak van op enzymen gebaseerde weefseldissociatie, die transcriptionele stressreacties kan introduceren 6,17. Bovendien overwint het de dissociatiebias die de selectie van gemakkelijk dissocieerbare celtypen van de nierschors bevordert, wat kan leiden tot een ondervertegenwoordiging van medullaire celtypen in sommige op enzymen gebaseerde benaderingen 5,6,10.
Het gebruik van een centraal nierstuk in plaats van heel nierweefsel bespaart verder middelen en corrigeert voor de oververtegenwoordiging van overvloedige celtypen zoals eerder beschreven10. Afhankelijk van het onderzochte muismodel of fenotype kan het echter nuttig zijn om hele niermonsters te gebruiken in plaats van een enkele middelste plak. Hele niermonsters kunnen meer representatief zijn voor echte celverhoudingen of veranderingen die zich voordoen in de hele nier, terwijl een bijgesneden middelste schijf gunstig bleek voor medullaire fenotypen of wanneer het monstermateriaal beperkt was. Deze beslissing is daarom zeer gebruikersspecifiek en moet zorgvuldig worden overwogen.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
We danken het Scientific Genomics Platform van het Max Delbrück Center for Molecular Medicine in de Helmholtz Association, Berlijn voor de technische ondersteuning.
JL en KMSO werden ondersteund door de Duitse Onderzoeksstichting (DFG) Research Training Group GRK 2318 en door onderzoekseenheid FOR 2841. KMSO werd ondersteund door Collaborative Research Grant 1365. AB werd ondersteund door financiering van de Gottfried Wilhelm Leibniz-prijs van de DFG toegekend aan NR.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Celsorter | - | - | Voor fluorescentie-geactiveerde celsortering (FACS); bijv. BD FACSAria Celsorter. |
| Centrifuge 5810 R | Eppendorf | 5811000015 | |
| Countess Cell Counting Chamber Slides | Invitrogen | C10228 | |
| Countess II FL Geautomatiseerde Celteller | Invitrogen | AMQAF1000 | Moet DAPI licht kubus bevatten om kernen te tellen. Alternatief kunnen kernen handmatig onder een fluorescentiemicroscoop worden geteld. |
| 4′,6-Diamidino-2-fenyl-indol-dihydrochloride (DAPI) | Biotrend | 40043/b | Voorraad oplossing bereid met een concentratie van 100 µM. Gebruikt voor kernkleuring in een uiteindelijke concentratie van 2 µM. |
| D(+)-Sucrose ≥99.9%, ultrapuur DNAse-, RNAse-vrij | VWR | 0335-500G | |
| DNA LoBind Microcentrifugebuisjes (1,5 mL) | Eppendorf | 22431021 | |
| Ethanol, 70 % | - | - | |
| FACS buisjes | pluriSelect | 43-10100-46 | |
| KIMBLE Dounce weefselmolen set 2 mL compleet | Sigma-Aldrich | D8938-1SET | |
| Minisart Spuitfilters 0,2 µm | Sartorius | 16534-GUK | |
| Nuclease-vrij Water | Invitrogen | AM9937 | |
| Nuclei EZ Prep Nuclei Isolatie Kit | Sigma-Aldrich | NUC-101 | Nuclei EZ Lysis Buffer (Product No. N3408) nodig voor buffervoorbereiding. |
| PBS (Fosfaat-Gebufferde Saline) 1X zonder calcium of magnesium | Corning | 21-040-CV | |
| Petrischalen, polystyreen 60 mm | Sigma-Aldrich | P5481 | |
| Fosfaat-Gebufferde Saline (PBS) met 10% Rundenalbumine | Sigma-Aldrich | SRE0036 | |
| pluriStrainer Mini 100 µm | pluriSelect | 43-10100-46 | |
| pluriStrainer Mini 20 µm | pluriSelect | 43-10020-40 | |
| pluriStrainer Mini 40 µm | pluriSelect | 43-10040-40 | |
| Polystyreen Centrifugebuis (15 mL) | Falcon | 352099 | |
| Vakbladen | - | - | |
| RiboLock RNase Inhibitor (40 U/µL) | Thermo Fisher | EO0384 | |
| Ribonucleoside-vanadyl complex | New England Biolabs | S1402S | Volg de instructies van de fabrikant (https://international.neb.com/products/s1402-ribonucleoside-vanadyl-complex#Product%20Information). Bij gebruik wordt de 200 mM voorraadoplossing gerestitueerd tot een groen-zwarte heldere oplossing door incubatie bij 65 °C. |
| RNAlater Stabilisatieoplossing | Invitrogen | AM7020 | |
| RNase AWAY | Fisher Scientific | 11952385 |
Referenties
- Thomas, R. S. Kidney modeling and systems physiology. Wiley Interdisciplinary Reviews: Systems Biology and Medicine. 1 (2), 172-190 (2009).
- Potter, S. S. Single-cell RNA sequencing for the study of development, physiology and disease. Nature Reviews Nephrology. 14 (8), 479-492 (2018).
- Park, J., Liu, C. L., Kim, J., Susztak, K. Understanding the kidney one cell at a time. Kidney International. 96 (4), 862-870 (2019).
- Clark, A. R., Greka, A. The power of one: advances in single-cell genomics in the kidney. Nature Reviews Nephrology. 16 (2), 73-74 (2020).
- Lake, B. B., et al. A single-nucleus RNA-sequencing pipeline to decipher the molecular anatomy and pathophysiology of human kidneys. Nature Communications. 10 (1), 2832(2019).
- Wu, H., Kirita, Y., Donnelly, E. L., Humphreys, B. D. Advantages of single-nucleus over single-cell RNA sequencing of adult kidney: Rare cell types and novel cell states revealed in fibrosis. Journal of the American Society of Nephrology. 30 (1), 23-32 (2019).
- Adam, M., Potter, A. S., Potter, S. S. Psychrophilic proteases dramatically reduce single-cell RNA-seq artifacts: a molecular atlas of kidney development. Development. 144 (19), 3625-3632 (2017).
- Habib, N., et al. Massively parallel single-nucleus RNA-seq with DroNc-seq. Nature Methods. 14 (10), 955-958 (2017).
- Muto, Y., et al. Single cell transcriptional and chromatin accessibility profiling redefine cellular heterogeneity in the adult human kidney. Nature Communications. 12 (1), 2190(2021).
- Hinze, C., et al. Kidney single-cell transcriptomes predict spatial corticomedullary gene expression and tissue osmolality gradients. Journal of the American Society of Nephrology. 32 (2), 291(2021).
- Berger, S. L. Isolation of cytoplasmic RNA: ribonucleoside-vanadyl complexes. Methods in Enzymology. 152, 227-234 (1987).
- Butler, A., Hoffman, P., Smibert, P., Papalexi, E., Satija, R. Integrating single-cell transcriptomic data across different conditions, technologies, and species. Nature Biotechnology. 36 (5), 411-420 (2018).
- Stuart, T., et al. Comprehensive Integration of single-cell data. Cell. 177 (7), 1888-1902 (2019).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Kirita, Y., Wu, H., Uchimura, K., Wilson, P. C., Humphreys, B. D. Cell profiling of mouse acute kidney injury reveals conserved cellular responses to injury. Proceedings of the National Academy of Sciences of the United States of America. 117 (27), 15874-15883 (2020).
- Schneeberger, S., et al. The neuroinflammatory interleukin-12 signaling pathway drives Alzheimer's disease-like pathology by perturbing oligodendrocyte survival and neuronal homeostasis. bioRxiv. , 441313(2021).
- Nguyen, Q. H., Pervolarakis, N., Nee, K., Kessenbrock, K. experimental considerations for single-cell RNA sequencing approaches. Frontiers in Cell and Developmental Biology. 6, 108(2018).
Herprints en machtigingen
