Hier wordt een gedetailleerd protocol beschreven voor het uitvoeren van mitochondriale stresstest en glycolytische snelheidstest in ex vivo retinale weefselmonsters met behulp van een commerciële bioanalyzer.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Bepaling van mitochondriale ademhaling en glycolyse in ex vivo retinale weefselmonsters
In dit artikel
Samenvatting
Samenvatting
Mitochondriale ademhaling is een kritieke energieopwekkende route in alle cellen, vooral retinale fotoreceptoren die een zeer actief metabolisme bezitten. Bovendien vertonen fotoreceptoren ook een hoge aerobe glycolyse zoals kankercellen. Nauwkeurige metingen van deze metabole activiteiten kunnen waardevolle inzichten verschaffen in cellulaire homeostase onder fysiologische omstandigheden en in ziektetoestanden. High throughput microplate-gebaseerde assays zijn ontwikkeld om mitochondriale ademhaling en verschillende metabole activiteiten in levende cellen te meten. Een overgrote meerderheid hiervan is echter ontwikkeld voor gekweekte cellen en is niet geoptimaliseerd voor intacte weefselmonsters en voor toepassing ex vivo. Hier wordt een gedetailleerd stapsgewijs protocol beschreven, met behulp van op microplaten gebaseerde fluorescentietechnologie, om het zuurstofverbruik (OCR) direct te meten als een indicator van mitochondriale ademhaling, evenals extracellulaire verzuringssnelheid (ECAR) als een indicator van glycolyse, in intact ex vivo retinaal weefsel. Deze methode is gebruikt om metabole activiteiten in het netvlies van volwassen muizen met succes te beoordelen en de toepassing ervan aan te tonen bij het onderzoeken van cellulaire mechanismen van veroudering en ziekte.
Inleiding
Mitochondriën zijn essentiële organellen die het cellulaire metabolisme, signalering, homeostase en apoptose reguleren door meerdere cruciale fysiologische processen te coördineren1. Mitochondriën dienen als de krachtpatser in de cel om adenosinetrifosfaat (ATP) te genereren door oxidatieve fosforylering (OXPHOS) en energie te leveren die bijna alle cellulaire gebeurtenissen ondersteunt. De meerderheid van cellulaire zuurstof wordt gemetaboliseerd in mitochondriën, waar het dient als de uiteindelijke elektronenacceptor in de elektronentransportketen (ETC) tijdens aerobe ademhaling. Lage hoeveelheden ATP kunnen ook worden geproduceerd door glycolyse in het cytosol, waar glucose wordt omgezet in pyruvaat, dat verder kan worden omgezet in lactaat of kan worden getransporteerd naar mitochondriën en geoxideerd tot acetyl-CoA, een substraat in de tricarbonzuurcyclus (TCA-cyclus).
Het netvlies is een van de meest metabolisch actieve weefsels bij zoogdieren2, met hoge niveaus van mitochondriale ademhaling en een extreem hoog zuurstofverbruik3. De staaf- en kegelfotoreceptoren bevatten een hoge dichtheid van mitochondriën4 en OXPHOS genereert de meeste ATP in het netvlies5. Daarnaast is het netvlies ook sterk afhankelijk van aerobe glycolyse6,7 door glucose om te zetten in lactaat5. Mitochondriale defecten worden geassocieerd met verschillende neurodegeneratieve ziekten8,9; en met zijn unieke hoge energiebehoeften is het netvlies bijzonder kwetsbaar voor metabole defecten, waaronder die welke mitochondriale OXPHOS4 en glycolyse beïnvloeden10. Mitochondriale disfunctie en defecten in glycolyse zijn betrokken bij retinale11,12 en maculaire13 degeneratieve ziekten, leeftijdsgebonden maculaire degeneratie10,14,15,16 en diabetische retinopathie17,18. Daarom kunnen nauwkeurige metingen van mitochondriale ademhaling en glycolyse belangrijke parameters bieden voor het beoordelen van de integriteit en gezondheid van het netvlies.
Mitochondriale ademhaling kan worden gemeten door de bepaling van het zuurstofverbruik (OCR). Aangezien de omzetting van glucose in pyruvaat en vervolgens in lactaat resulteert in extrusie van protonen in en verzuring van de extracellulaire omgeving, geven metingen van de extracellulaire verzuringssnelheid (ECAR) een indicatie van glycolyseflux. Omdat het netvlies is samengesteld uit meerdere celtypen met intieme relaties en actieve synergie, inclusief de uitwisseling van substraten6, is het noodzakelijk om de mitochondriale functie en het metabolisme te analyseren in de context van het hele retinale weefsel met intacte laminering en circuits. De afgelopen decennia zijn de Clark type O2 elektroden en andere zuurstofmicro-elektroden gebruikt om het zuurstofverbruik in het netvlies te meten19,20,21. Deze zuurstofelektroden hebben grote beperkingen in gevoeligheid, vereiste van een groot monstervolume en de noodzaak van continu roeren van suspenderende monsters, wat meestal leidt tot de verstoring van de cellulaire en weefselcontext. Het hier beschreven protocol is ontwikkeld met behulp van een op microplaat gebaseerde fluorescentietechniek om mitochondriaal energiemetabolisme te meten in vers ontleed ex vivo netvliesweefsel van muizen. Het maakt real-time metingen van zowel OCR als ECAR met een gemiddelde doorvoer mogelijk, tegelijkertijd met behulp van een klein monster (1 mm pons) van ex vivo retinaal weefsel, terwijl de noodzaak van suspensie en continu roeren wordt vermeden.
Hier gedemonstreerd is de experimentele procedure voor mitochondriale stresstest en glycolytische snelheidstest op vers ontlede retinale ponsschijven. Dit protocol maakt het mogelijk om mitochondria-gerelateerde metabole activiteiten te meten in een ex vivo weefselcontext. Anders dan de testen die worden uitgevoerd met behulp van gekweekte cellen, weerspiegelen de hier verkregen metingen het gecombineerde energiemetabolisme op weefselniveau en worden ze beïnvloed door interacties tussen de verschillende celtypen in het weefsel. Het protocol is aangepast van een eerder gepubliceerde versie22,23 om zich aan te passen aan de nieuwe generatie van de Agilent Seahorse extracellulaire flux 24-wells (XFe24) analyzer met Islet Capture plaat. Het testmedium, de concentraties van injectieverbindingen en het aantal /de duur van de testcycli zijn ook geoptimaliseerd voor netvliesweefsel. Een gedetailleerd stap-voor-stap protocol wordt gegeven voor de voorbereiding van retinale ponsschijven. Meer informatie over het instellen van het programma en de gegevensanalyse is te vinden in de gebruikershandleiding van de fabrikant24,25,26.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle muisprotocollen zijn goedgekeurd door de Animal Care and Use Committee van het National Eye Institute (NEI ASP# 650). Muizen werden gehuisvest in 12 uur licht-donkere omstandigheden en verzorgd door de aanbevelingen van de Gids voor de verzorging en het gebruik van proefdieren, het Instituut voor Laboratoriumdierbronnen en het Beleid van de Openbare Gezondheidsdienst voor humane zorg en gebruik van proefdieren te volgen.
1. Hydraterende sensorpatroon en voorbereiding van het testmedium
- Voeg de dag voor het experiment 1 ml van het kalibratiemedium toe aan elke put van de nutsplaat. Plaats het Hydro-Booster-deksel aan de bovenkant en laat de sensorcartridge door de opening op de klep zakken. Controleer of de sensor is ondergedompeld in het kalibratiemedium. Incubeer de sensorcartridge een nacht in een CO2-vrije incubator bij 37 °C om de fluoroforen te activeren.
OPMERKING: Om verdamping te voorkomen, wordt de incubator bevochtigd door een bak met water binnen te houden en is de cassette van de sensorcartridge verpakt met doorzichtige plasticfolie. - Bereid het testmedium door het Seahorse DMEM-medium te reconstitueren met toevoeging van glucose, pyruvaat en glutamine aan de gewenste concentraties. In de assays die in dit artikel worden gerapporteerd, is de uiteindelijke concentratie van substraten in het testmedium: 6 mM glucose, 0,12 mM pyruvaat en 0,5 mM glutamine. Voor elke testplaat wordt 40 ml van het testmedium vers bereid op de dag van het experiment.
- Stel het testprogramma in de analyzer in volgens de instructies van de fabrikant26. In de hier gedemonstreerde test is het protocol als volgt ingesteld: 5 cycli van metingen voor baseline, dan injecteren van poort A, gevolgd door 4 cycli van metingen, dan injecteren van poort B en gevolgd door 4 cycli van metingen. Elke cyclus bestaat uit mix (3 min), wait (2 min) en measure (3 min).
2. Coating mesh inzetstukken van eilandjesvangmicroplaat
- Bereid het coatingmengsel voor door 20 μL van het celaanhechtingsmedium (bijv. Cell-Tak) te combineren met 171 μL 0,1 M natriumbicarbonaat en 9 μL 1 M NaOH.
- Open het deksel van de cassette met gaasinzetstukken. Pipetteer 8 μL van het coatingmengsel naar elke mesh-inzetstukken. Gebruik een pipetpunt om de druppel voorzichtig rond te smeren /verspreiden om het coatingmengsel gelijkmatig over het gaasinzetstuk te verdelen.
- Sluit de cassette en laat de gaasinzetstukken minstens 25 minuten bij kamertemperatuur incuberen voor adsorptie.
- Was de gaasinzet door 4 ml van het testmedium rechtstreeks op de gaasinzetstukken te pipetteren. Schud de cassette voorzichtig om ervoor te zorgen dat alle gaasinzetstukken met het testmedium worden gewassen.
- Houd de mesh-inzet opzij. Het is klaar voor gebruik.
3. Bereiding van injectieverbindingen
- Neem voorraad aliquots van Bam15 (10 mM), Rotenone (10 mM), AntimycinE A (10 mM) en 2-DG (500 mM) uit -80 °C vriezer en ontdooi bij kamertemperatuur.
OPMERKING: De voorraad van 2 DG's is klaar voor gebruik. De andere medicijnen moeten worden verdund tot de werkvoorraad. - Verwarm 10 ml van het testmedium in een waterbad van 37 °C.
- Verdun 10 mM Bam15-voorraad tot 50 μM-werkvoorraad met behulp van een verdunningsprocedure in twee stappen: meng 20 μL van 10 mM-voorraad met 20 μL DMSO om 5 mM tussenvoorraad te krijgen. Meng vervolgens 10 μL van de bovenliggende 5 mM tussenvoorraad met 990 μL voorverwarmd assaymedium om de uiteindelijke 50 μM werkvoorraad te krijgen.
- Verdun en combineer 10 mM Rotenone en 10 mM Antimycin a-voorraad tot 10 μM Rotenone / Antimycin A (Rot / AA) werkvoorraad door twee stappen van verdunningen: meng 10 μL elk van 10 mM Rotenone en 10 mM Antimycine A-bouillon met 80 μL DMSO om 1 mM Rot / AA tussenvoorraad te krijgen. Meng vervolgens 10 μL van de bovenstaande 1 mM tussenvoorraad met 990 μL voorverwarmd testmedium om de uiteindelijke 10 μM Rot / AA-werkvoorraad te krijgen.
- Bereid de bovengenoemde werkvoorraden injectieverbindingen op de dag van het experiment vers voor en zet ze opzij bij kamertemperatuur totdat ze in de injectiepoorten van de sensorcartridge worden geladen.
4. Retinale dissectie en retinale ponsvoorbereiding
- Euthanaseer een muis door CO2-verstikking volgens avma-richtlijnen voor euthanasie27.
OPMERKING: Laat het dier niet langer in een CO2-kamer liggen dan de tijd die nodig is voor euthanasie. - Enucleate ogen en plaats in ijs oude 1x PBS buffer in een petrischaaltje en plaats deze vervolgens onder een dissectiemicroscoop.
- Verwijder voorzichtig, door met microscisors te snijden, de extra rectusspieren die buiten de oogbol zijn bevestigd en snijd de oogzenuw af.
- Gebruik een naald van 30 G om een gat aan de rand van het hoornvlies (limbus) te slaan; dit dient als de inbrengplaats voor de microscissors. Gebruik vervolgens een fijne dissectiemicroscisors om een cirkelvormige snede langs de rand van het hoornvlies te maken en deze te scheiden van de achterste oogschelp.
- Gebruik een scherpe dissectietang om het hoornvlies, de lens en de glasvochthumor weg te halen van de oogschelp.
- Gebruik fijne dissectiemicrossors om verschillende kleine sneden op de sclerale laag aan de rand van de oogschelp te maken. Vermijd het doorsnijden van de netvlieslaag. Gebruik twee scherpe dissectietangen om het sclerale weefsel aan elke kant van de snede vast te houden en trek heel voorzichtig aan de sclerale laag om deze van het neurale netvlies te verwijderen. Herhaal dit rond de oogschelp totdat alle sclera is verwijderd en een intacte retinale cup is verkregen.
- Gebruik dissectiemicroscisors en maak radiale sneden op de retinale cup om deze af te vlakken en verschillende verschillende secties te genereren.
OPMERKING: Afhankelijk van de dissectievaardigheden van de persoon en de ervaring met het omgaan met vers netvliesweefsel, kan de retinale cup worden gesneden om 3 tot 5 verschillende secties te genereren. - Gebruik een biopsieponser met een diameter van 1 mm om één netvliesschijf uit elk deel van de afgeplatte retinale beker te snijden.
OPMERKING: Er moet voor worden gezorgd dat de netvliesschijven op gelijke afstand van de oogzenuwkop worden geslagen. - Gebruik een tang om de voorgecoate gaasinzetstukken over te brengen in de ontleden petrischaal. Plaats met behulp van twee superfijne wimperborstels de retinale ponsschijf op het gaasinzetstuk. De retinale ponsschijf wordt in het midden van de mesh-insert geplaatst met ganglioncellaag naar beneden die het gaas en de fotoreceptorlaag naar boven raakt.
OPMERKING: Vaak blijven sommige RPE-cellen vastzitten aan de fotoreceptoren en de pigmentatie van deze cellen kan worden gebruikt als een indicator van de oriëntatie van de retinale ponsschijf.
5. Het plaatsen van de injectiepoorten van de sensorcartridge en kalibratie
- Haal de gehydrateerde sensorcartridgeplaatcassette uit de incubator van 37 °C. Verwijder de Hydro-Booster-klep en plaats de sensorcartridge terug op de gebruiksplaat.
- Laad het gewenste volume van de oplossingen voor de injectiecompound in de juiste poorten. Houd de pipetpunt in een hoek van 45 °. Plaats de pipetpunt halverwege in een injectiepoort met de afschuining van de punt tegen de tegenoverliggende wand van de injectiepoort en laad de verbinding voorzichtig in elke poort. Vermijd het introduceren van luchtbellen.
- Raadpleeg de gebruikershandleiding van het instrument voor het volume van de verbinding die in elke injectiepoort wordt geladen voor een specifieke test. In de experimenten die in dit artikel worden gepresenteerd, wordt 68 μL van 50 μM Bam15-werkvoorraad (voor mitochondriale stresstest) of 68 μL van 10 μM Rot / AA-werkvoorraad (voor glycolytische snelheidstest) in poort A geladen; 75 μL 10 μM Rot/AA-werkvoorraad (voor mitochondriale stresstest) of 75 μL 500 mM 2-DG-werkvoorraad (voor glycolytische snelheidstest) wordt in poort B geladen.
- Laad injectiepoorten van alle putten van de plaat, inclusief achtergrondcorrectieputten en lege putten om een juiste injectie te garanderen. Laad de betreffende samengestelde oplossing in elke poort voor de achtergrondcorrectieputten. Assay medium kan worden vervangen, in plaats van de samengestelde oplossing, in elk van de poorten van de bankputten.
- Plaats de geladen sensorcartridgeplaat, met deksel eraf, in de analysemachine om de kalibratie te starten voordat de test wordt uitgevoerd. Nadat de kalibratie is voltooid, wordt het programma automatisch gepauzeerd, in afwachting van de vervanging van de gebruiksplaat door de eilandjesvangplaat met retinale ponsen.
6. De eilandjesvangplaat laden en de testrun starten
- Voeg 607 μL van het testmedium toe aan elke put van de eilandjesvangplaat
- Gebruik een tang om de rand van het gaas met retinale ponsschijven bovenop te pakken en uit de petrischaal te halen. Tik lichtjes op de onderkant van het gaasinzetstuk op een absorberend doekje om extra vloeistof te verwijderen en plaats het in de put van de eilandjesvangplaat. Herhaal deze stap totdat alle mesh-inserts met retinale ponsen in de eilandjesvangplaat zijn geplaatst. Vul achtergrondcorrectieputten en lege putjes met lege mesh-inzetstukken.
- Gebruik twee Graefe-tangen om voorzichtig en voorzichtig op de rand van elk gaasinzetstuk te drukken en zorg ervoor dat deze stevig aan de onderkant van de eilandjesvangplaat zijn geplaatst.
- Plaats de geladen eilandjesvangplaat gedurende 5 minuten in een incubator van 37 °C om op te warmen.
- Werp de gebruiksplaat uit nadat de kalibratie is voltooid en vervang deze door een en vervang deze door de eilandjesvangplaat, met deksel eraf, met retinale ponsen.
- Hervat de testrun.
7. Voer beëindiging en gegevensopslag uit
- Nadat de run is voltooid, werpt u de sensorcartridge en de eilandjesvangplaat met retinale ponsen uit. De gegevens worden automatisch opgeslagen als .asyr-bestand.
- Gebruik de bijbehorende software voor gegevensanalyse om de gegevens weer te geven en te analyseren volgens de gebruikershandleiding van de fabrikant26.
- Gebruik de functie Exporteren om het .xslx-bestand van de gegevens te exporteren, die kunnen worden bekeken en geanalyseerd met behulp van spreadsheetsoftware.
8. Het retinale ponsmonster opslaan
- Haal na de test de plaat uit de machine, verwijder de sensorcartridge en verwijder voorzichtig het testmedium uit elke put met behulp van een pipet.
- Breng de hoes terug aan en sluit de zijkanten van de plaat af met de parafilmstrip.
- Bewaren bij -80 °C.
- Kwantificeer voor normalisatie het totale DNA- of eiwitgehalte van de stoot in elke put.
9. Data-analyse
- Mitochondriale stresstest
OPMERKING: De gemeten OCR-waarde (totalOCR) vertegenwoordigt het totale zuurstofverbruik van het weefsel. Na Bam15 (uncoupler) injectie neemt de OCR toe van het basale niveau (totalOCRbasal) tot het maximale niveau (totalOCRmax) en daalt na de Rot/AA injectie. De resterende OCR-waarde na Rot/AA-injectie (totalOCRRot/AA) vertegenwoordigt niet-mitochondriaal zuurstofverbruik.- Bereken mitochondriaal gerelateerd zuurstofverbruik als:
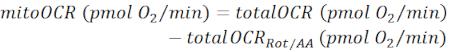 (Eq. 1) 28
- Bereken de mitochondriale reservecapaciteit (MRC) als volgt:
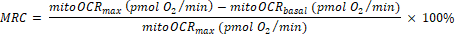 (Eq. 2) 29
OPMERKING: De laatste meting van de 5 metingen vóór Bam15-injectie wordt genomen als de "basale" waarde (voor totalOCRbasal en mitoOCRbasal). De hoogste waarde van de 4 metingen na Bam15-injectie wordt gebruikt als "max" -waarde (voor totalOCRmax en mitoOCRmax). De laagste waarde van de 4 metingen na de Rot/AA injectie wordt gebruikt als totalOCRRot/AA.
- Bereken mitochondriaal gerelateerd zuurstofverbruik als:
- Glycolytische snelheidstest
OPMERKING: De gemeten ECAR-waarde (totalECAR) vertegenwoordigt de totale verzuring van het medium door de metabole activiteit van het weefsel. Over het algemeen is verzuring van de extracellulaire micro-omgeving voornamelijk het gevolg van extrusie van het glycolytische product lactaat. Katabolisme van substraten in mitochondriale TCA-cyclus resulteert in de productie van CO2, die ook het extracellulaire medium verzuurt door hydratatie tot bicarbonaat.- Substract mitochondriaal bijgedragen medium verzuring (mitoECAR) van totalECAR om de glycoECAR te verkrijgen.
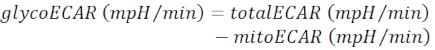 (Eq. 3) 28
OPMERKING: Mitochondriale ademhaling en TCA-cyclus zijn sterk gekoppelde processen. Productie van CO2 uit mitochondriën is een functie van de snelheid van OXPHOS, die meetbaar is door mitoOCR. - Bereken de mitoECAR als:
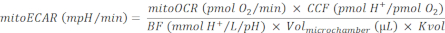 (Eq. 4) 28
waarbij de CCF (CO2 Contribution Factor) een empirisch berekende verhoudingswaarde is, die de hoeveelheid H+ bijdrage van CO2-gemedieerde verzuring versus elke O2-consumptie van OXPHOS weergeeft. CCF voor dit systeem is vooraf bepaald op 0,6028. Nauwkeurige meting van mediumverzuring wordt bepaald door de buffercapaciteit van het medium, de gevoeligheid van de pH-sensor van het instrument en de effectieve meetkamercapaciteit. Hier is de BF (Buffer Factor) een parameter van de in situ experimentele buffercapaciteit, die de hoeveelheid H+ of OH- vertegenwoordigt die aan de effectieve meetkamer wordt toegevoegd om de pH-waarde met 1 eenheid te veranderen. Wanneer een aangepast testmedium wordt gebruikt, kan de BF worden bepaald door bekende hoeveelheden zuur in het testmedium te titreren volgens het bufferfactorprotocol30. Het Seahorse DMEM medium pH 7.4 dat in dit protocol wordt gebruikt, heeft een vooraf bepaalde BF van 2,60 mmol H+/L/pH. De eilandjesvangplaat die in dit protocol wordt gebruikt, heeft een Volmicrochamber = 16,6 μL31. De volumeschaalfactor, Kvol, is een empirisch bepaalde constante. De Kvol-waarde is niet beschikbaar voor de eilandjesvangplaat, maar kan worden berekend uit de waarde van de microplaat28, die rekening houdt met het volumeverschil in hun microkamers, om 0,41 te zijn.
OPMERKING: Injectie van de Rot / AA sluit mitochondriale ademhaling af en dwingt het weefsel om over te schakelen op glycolyse voor ATP-productie, wat leidt tot hogere lactaatextrusie en een toename van ECAR-metingen. Glycolyse wordt gestaakt met 2-DG-injectie en de resterende ECAR-meting onthult niet-glycolytische en niet-mitochondriale verzuring van het medium. - Bereken de glycolytische reservecapaciteit (GRC) als:
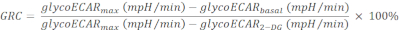 (Eq. 5) 32
waarbij de laatste meting van de 5 metingen vóór Rot/AA-injectie wordt genomen als de "basale" waarde (glycoECARBASAL). De hoogste waarde van de 4 metingen na Rot/AA-injectie wordt gebruikt als "max" -waarde (glycoECARmax). De laagste waarde van de 4 metingen na 2-DG injectie wordt gebruikt als glycoECAR2-DG.
- Substract mitochondriaal bijgedragen medium verzuring (mitoECAR) van totalECAR om de glycoECAR te verkrijgen.
- Normalisatie
OPMERKING: Normalisatie is essentieel bij het vergelijken van de metingen van retinale weefsels van verschillende leeftijdsgroepen of tussen wild-type en pathologische / degeneratieve monsters, die kunnen verschillen in celaantallen.- Gebruik commercieel beschikbare kits om het DNA-gehalte in elke retinale ponsschijf te beoordelen33,34.
- Als alternatief kunt u radio-immuunoprecipitatie-assaybuffer (RIPA-buffer) gebruiken om totaal eiwit uit de retinale punch te extraheren en het eiwitgehalte te gebruiken voor normalisatie.
OPMERKING: Het oppervlak van het netvlies van een volwassen muis is eerder vastgesteld op ongeveer 20 mm2 en elk netvlies bevat ~ 6,5 miljoen cellen35. Vandaar dat elke retinale pons met een diameter van 1 mm ~ 1/25 van een enkel netvlies is en ~ 260K cellen bevat. Men kan naar deze cijfers verwijzen bij het vergelijken van de gegevens van een retinale pons met die van andere weefselmonsters of gekweekte cellen,
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De hier gerapporteerde gegevens zijn representatieve mitochondriale stresstest met OCR-sporen (figuur 1) en glycolytische snelheidstest met OCR-sporen en ECAR-sporen (figuur 2), die werden uitgevoerd met behulp van vers ontleedde 1 mm retinale ponsschijven van 4 maanden oude transgene Nrl-L-EGFP-muizen36 (C57B / L6-achtergrond). Deze muizen drukken GFP specifiek uit in staaffotoreceptoren zonder de normale retinale ontwikkeling, ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Hier worden gedetailleerde instructies gegeven voor het uitvoeren van microplaatgebaseerde assays van mitochondriale ademhaling en glycolyse-activiteit met behulp van ex vivo, vers ontlede retinale ponsschijven. Het protocol is geoptimaliseerd om: 1) te zorgen voor het gebruik van een geschikt testmedium voor ex vivo retinaal weefsel; 2) gebruik de juiste grootte van retinale ponsschijven om OCR- en ECAR-metingen te verkrijgen die binnen het optimale detectiebereik van de machine vallen; 3) coating mesh...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk wordt ondersteund door het Intramurale Onderzoeksprogramma van het National Eye Institute (ZIAEY000450 en ZIAEY000546).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1X PBS | Thermo Fisher | 14190-144 | |
| 2-Deoxy glucose (2-DG), 500 mM stockoplossing | Sigma | D6134 | Oplossen in Seahorse XF DMEM medium, vooraf bereiden |
| 30-gauge naald | BD Precision Glide | 305106 | |
| Antimycine A, 10 mM stockoplossing | Sigma | A8674 | Oplossen in DMSO, vooraf bereiden |
| Bam15, 10 mM stockoplossing | TimTec | ST056388 | Oplossen in DMSO, vooraf bereiden |
| Biopsie puncher, 1 mm | Integra Miltex | 33-31AA | |
| Cell-Tak | Corning Life Sciences | CB40240 | |
| CO2 asfyxiatiekamer | |||
| Dissectietang-Dumont #5 | Fine Science Tools | 11251-10 | Rechte punt |
| Dissectietang-Dumont #7 | Fine Science Tools | 11274-20 | Gebogen punt |
| Dissectiemicroscoop | |||
| DMSO | Sigma | D2438 | |
| Graefe pincet | Fine Science Tools | 11051-10 | Gebogen, getande punt |
| Microschaar | Fine Science Tools | 15004-08 | Gebogen punt |
| NaOH-oplossing, 1 M | Sigma-Aldrich | S8263 | Waterige oplossing, vooraf bereiden |
| Rotenon, 10 mM stockoplossing | Sigma | R8875 | Oplossen in DMSO, vooraf bereiden |
| Seahorse kalibratiemedium | Agilent | 100840-000 | |
| Seahorse XF 1,0 M glucose | Agilent | 103577-100 | |
| Seahorse XF 100 mM pyruvaat | Agilent | 103578-100 | |
| Seahorse XF 200 mM glutamine | Agilent | 103579-100 | |
| Seahorse XF DMEM-medium | Agilent | 103575-100 | pH 7,4, met 5 mM HEPES |
| Seahorse XFe24 Islet Capture FluxPak | Agilent | 103518-100 | Met Sensor Cartridge en Islet Capture microplaat |
| Seahorse XFe24, Extra Cellular Flux Analyzer | Agilent | ||
| Natriumbicarbonaatoplossing, 0,1 M | Sigma-Aldrich | S5761 | Waterige oplossing, vooraf bereiden |
| Superfijne wimperborstel | Ted Pella | 113 |
Referenties
- Nunnari, J., Suomalainen, A. Mitochondria: In sickness and in health. Cell. 148 (6), 1145-1159 (2012).
- Wong-Riley, M. T. Energy metabolism of the visual system. Eye Brain. 2, 99-116 (2010).
- Yu, D. Y., Cringle, S. J. Oxygen distribution and consumption within the retina in vascularised and avascular retinas and in animal models of retinal disease. Progress in Retina and Eye Research. 20, 175-208 (2001).
- Barot, M., Gokulgandhi, M. R., Mitra, A. K. Mitochondrial dysfunction in retinal diseases. Current Eye Research. 36 (12), 1069-1077 (2011).
- Joyal, J. S., Gantner, M. L., Smith, L. E. H. Retinal energy demands control vascular supply of the retina in development and disease: The role of neuronal lipid and glucose metabolism. Progress in Retina and Eye Research. 64, 131-156 (2018).
- Hurley, J. B., Lindsay, K. J., Du, J. Glucose, lactate, and shuttling of metabolites in vertebrate retinas. Journal of Neuroscience Research. 93 (7), 1079-1092 (2015).
- Haydinger, C. D., Kittipassorn, T., Peet, D. J. Power to see-Drivers of aerobic glycolysis in the mammalian retina: A review. Clinical and Experimental Ophthalmology. 48 (8), 1057-1071 (2020).
- Wright, A. F., et al. Lifespan and mitochondrial control of neurodegeneration. Nature Genetics. 36, 1153-1158 (2004).
- Bossy-Wetzel, E., Schwarzenbacher, R., Lipton, S. A. Molecular pathways to neurodegeneration. Nature Medicine. 10, Suppl 2-9 (2004).
- Leveillard, T., Philp, N. J., Sennlaub, F. Is retinal metabolic dysfunction at the center of the pathogenesis of age-related macular degeneration. International Journal of Molecular Sciences. 20 (3), (2019).
- Vlachantoni, D., et al. Evidence of severe mitochondrial oxidative stress and a protective effect of low oxygen in mouse models of inherited photoreceptor degeneration. Human Molecular Genetics. 20 (2), 322-335 (2011).
- Grenell, A., et al. Loss of MPC1 reprograms retinal metabolism to impair visual function. Proceedings of the National Academy of Science U. S. A. 116 (9), 3530-3535 (2019).
- Wright, A. F., Chakarova, C. F., Abd El-Aziz, M. M., Bhattacharya, S. S. Photoreceptor degeneration: genetic and mechanistic dissection of a complex trait. Nature Reviews in Genetics. 11 (4), 273-284 (2010).
- Jarrett, S. G., Boulton, M. E. Consequences of oxidative stress in age-related macular degeneration. Molecular Aspects of Medicine. 33 (4), 399-417 (2012).
- Rozing, M., et al. Age-related macular degeneration: A two-level model hypothesis. Progress in Retina Eye Research. 76, 100825(2020).
- Yokosako, K., et al. Glycolysis in patients with age-related macular degeneration. Open Ophthalmology Journal. 8, 39-47 (2014).
- Bek, T. Mitochondrial dysfunction and diabetic retinopathy. Mitochondrion. 36, 4-6 (2017).
- Yumnamcha, T., Guerra, M., Singh, L. P., Ibrahim, A. S. Metabolic dysregulation and neurovascular dysfunction in diabetic retinopathy. Antioxidants. 9 (12), Basel. (2020).
- Futterman, S., Kinoshita, J. H. Metabolism of the retina. I. Respiration of cattle retina. Journal of Biological Chemistry. 234 (4), 723-726 (1959).
- Linsenmeier, R. A. Effects of light and darkness on oxygen distribution and consumption in the cat retina. Journal of General Physiology. 88 (4), 521-542 (1986).
- Medrano, C. J., Fox, D. A. Oxygen consumption in the rat outer and inner retina: light- and pharmacologically-induced inhibition. Experiments in Eye Research. 61 (3), 273-284 (1995).
- Kooragayala, K. Quantification of oxygen consumption in retina ex vivo demonstrates limited reserve capacity of photoreceptor mitochondria. Investigative Ophthalmology and Visual Science. 56 (13), 8428-8436 (2015).
- Adlakha, Y. K., Swaroop, A. Determination of mitochondrial oxygen consumption in the retina ex vivo: applications for retinal disease. Methods in Molecular Biology. 1753, 167-177 (2018).
- Agilent Mitocondrial stress test user guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/XF_Cell_Mito_Stress_Test_Kit_User_Guide.pdf (2021).
- Agilent Glycolytic rate assay user guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/103344-400.pdf (2021).
- Agilent wave 2.6 user guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/S7894-10000_Rev_C_Wave_2_6_User_Guide.pdf (2021).
- AVMA Guidelines for the Euthanasia of Animals. , Available from: https://www.avma.org/sites/default/files/2020-01/2020-Euthanasia-Final-1-17-20.pdf (2021).
- Improving Quantification of Cellular Glycolytic Rate Using Agilent Seahorse XF Technology. , Available from: https://www.agilent.com/cs/library/whitepaper/public/whitepaper-improve-quantification-of-cellular-glycolytic-rate-cell-analysis-5991-7894en-agilent.pdf (2021).
- Report Generator User Guide Agilent Seahorse XF Cell Mito Stress Test. , Available from: https://www.agilent.com/cs/library/usermanuals/public/Report_Generator_User_Guide_Seahorse_XF_Cell_Mito_Stress_Test_Single_File.pdf (2021).
- Agilent Seahorse XF Buffer Factor Protocol. , Available from: https://www.agilent.com/cs/library/usermanuals/public/usermanual-xf-buffer-factor-protocol-cell-analysis-S7888-10010en-agilent.pdf (2021).
- Agilent sensor cartridges and cell culture microplates. , Available from: https://www.agilent.com/cs/library/brochures/5991-8657EN_seahorse_plastics_brochure.pdf (2021).
- Agilent Seahorse XF Glycolysis Stress Test Kit User Guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/XF_Glycolysis_Stress_Test_Kit_User_Guide.pdf (2021).
- Fan, Y. Y. A bioassay to measure energy metabolism in mouse colonic crypts, organoids, and sorted stem cells. American Journal of Physiology-Gastrointestinal and Liver Physiology. 309, 1-9 (2015).
- Huang, L., et al. Ductal pancreatic cancer modeling and drug screening using human pluripotent stem cell- and patient-derived tumor organoids. Nature Medicine. 21 (11), 1364-1371 (2015).
- Jeon, C. J., Strettoi, E., Masland, R. H. The major cell populations of the mouse retina. Journal of Neuroscience. 18 (21), 8936-8946 (1998).
- Akimoto, M., et al. Targeting of GFP to newborn rods by Nrl promoter and temporal expression profiling of flow-sorted photoreceptors. Proceedings of the National Academy of Science U. S. A. 103 (10), 3890-3895 (2006).
- Kenwood, B. M., et al. Identification of a novel mitochondrial uncoupler that does not depolarize the plasma membrane. Molecular Metabolism. 3 (2), 114-123 (2014).
- Corso-Diaz, X., et al. Genome-wide profiling identifies DNA methylation signatures of aging in rod photoreceptors associated with alterations in energy metabolism. Cell Reports. 31 (3), 107525(2020).
- Berkowitz, B. A., et al. Mitochondrial respiration in outer retina contributes to light-evoked increase in hydration in vivo. Investigative Ophthalmology and Visual Science. 59 (15), 5957-5964 (2018).
- Joyal, J. S., et al. Retinal lipid and glucose metabolism dictates angiogenesis through the lipid sensor Ffar1. Nature Medicine. 22 (4), 439-445 (2016).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
