Dit protocol beschrijft hoe fumarylacetoacetaat hydrolase domeinbevattend eiwit 1 (FAHD1) uit varkensnier en muizenlever kan worden geëxtraheerd. De vermelde methoden kunnen worden aangepast aan andere eiwitten van belang en worden gewijzigd voor andere weefsels.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Extractie en zuivering van FAHD1-eiwit uit varkensnier en muizenlever
In dit artikel
Samenvatting
Samenvatting
Fumarylacetoacetaat hydrolase domeinbevattend eiwit 1 (FAHD1) is het eerste geïdentificeerde lid van de FAH-superfamilie in eukaryoten, handelend als oxaalacetaatdecarboxylase in mitochondriën. Dit artikel presenteert een reeks methoden voor de extractie en zuivering van FAHD1 uit varkensnier en muizenlever. Behandelde methoden zijn ionische uitwisselingschromatografie met snelle eiwitvloeistofchromatografie (FPLC), preparatieve en analytische gelfiltratie met FPLC en proteomische benaderingen. Na totale eiwitextractie werden ammoniumsulfaatprecipitatie en ionische uitwisselingschromatografie onderzocht en FAHD1 werd geëxtraheerd via een sequentiële strategie met behulp van ionische uitwisseling en grootte-uitsluitingschromatografie. Deze representatieve benadering kan worden aangepast aan andere eiwitten van belang (uitgedrukt in significante niveaus) en worden gewijzigd voor andere weefsels. Gezuiverd eiwit uit weefsel kan de ontwikkeling van hoogwaardige antilichamen en / of krachtige en specifieke farmacologische remmers ondersteunen.
Inleiding
Het eukaryote FAH-domeinbevattende eiwit 1 (FAHD1) werkt als bifunctioneel oxaalacetaat (OAA) decarboxylase (ODx)1 en acylpyruvaathydrolase (ApH)2. Het is gelokaliseerd in mitochondriën2 en behoort tot de brede FAH-superfamilie van enzymen 1,2,3,4,5,6. Hoewel de ApH-activiteit slechts van ondergeschikt belang is, is de ODx-activiteit van FAHD1 betrokken bij de regulatie van de TCA-cyclusflux 1,7,8,9. OAA is niet alleen nodig voor de centrale citraatsynthasereactie in de tricarbonzuurcyclus, maar fungeert ook als een competitieve remmer van succinaatdehydrogenase als onderdeel van het elektronentransportsysteem en als een kataplerotische metaboliet. Downregulatie van FAHD1-genexpressie in menselijke navelstrengas endotheelcellen (HUVEC) resulteerde in een significante vermindering van de snelheid van celproliferatie10 en significante remming van mitochondriaal membraanpotentiaal, geassocieerd met een gelijktijdige omschakeling naar glycolyse. Het werkmodel verwijst naar mitochondriale disfunctie geassocieerde senescentie (MiDAS)11-achtige fenotype8, waarbij mitochondriale OAA-niveaus strak worden gereguleerd door FAHD1-activiteit 1,8,9.
Recombinant eiwit is gemakkelijker te verkrijgen via expressie en zuivering van bacteriën12 in plaats van uit weefsel. Een eiwit dat tot expressie komt in bacteriën kan echter bevooroordeeld zijn door mogelijk gebrek aan posttranslationele modificaties, of kan eenvoudigweg problematisch zijn (d.w.z. als gevolg van plasmideverlies, bacteriële stressreacties, vervormde / ongevormde disulfidebindingen, geen of slechte secretie, eiwitaggregatie, proteolytische splitsing, enz.). Voor bepaalde toepassingen moet eiwit worden verkregen uit cellysaat of weefsel, om dergelijke modificaties op te nemen en/of mogelijke artefacten uit te sluiten. Gezuiverd eiwit uit weefsel ondersteunt de ontwikkeling van hoogwaardige antilichamen en/of krachtige en specifieke farmacologische remmers voor geselecteerde enzymen, zoals voor FAHD113.
Dit manuscript presenteert een reeks methoden voor de extractie en zuivering van FAHD1 uit varkensnieren en muizenlever. De beschreven methoden vereisen snelle eiwitvloeistofchromatografie (FPLC), maar maken verder gebruik van gemeenschappelijke laboratoriumapparatuur. Alternatieve methoden zijn elders te vinden 14,15,16,17. Na totale eiwitextractie omvat het voorgestelde protocol een testfase, waarin subprotocollen voor ammoniumsulfaatprecipitatie en ionische uitwisselingschromatografie worden besproken (figuur 1). Na het definiëren van deze subprotocollen wordt het eiwit van belang geëxtraheerd via een sequentiële strategie met behulp van ionische uitwisseling en grootte-uitsluitingschromatografie met FPLC. Op basis van deze richtlijnen kan het uiteindelijke protocol individueel worden aangepast voor andere eiwitten van belang.
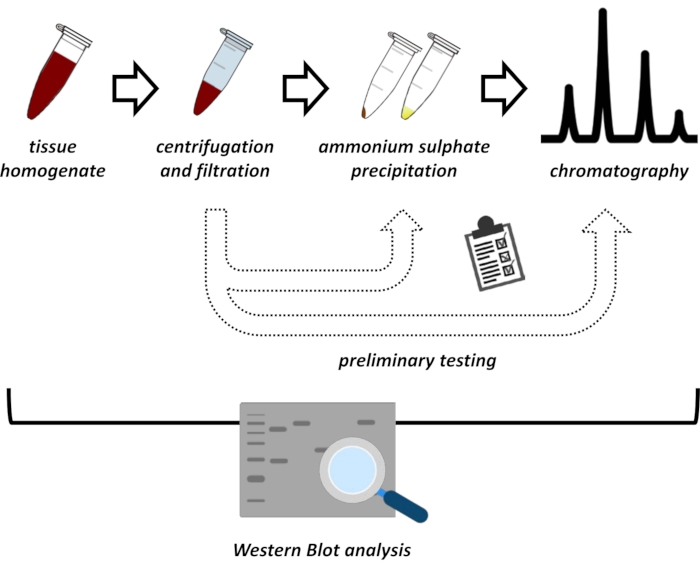
Figuur 1: De algemene strategie van dit protocol. Van boven naar beneden: Eiwit wordt gewonnen uit weefsels. Weefselhomogenaat wordt bereid, gecentrifugeerd en gefiltreerd. Voor elk paar supernatant- en pelletmonsters moeten tests voor ammoniumsulfaatprecipitatie en ionische uitwisselingschromatografie (FPLC) worden uitgevoerd om optimale omstandigheden te onderzoeken. Na het vaststellen van deze subprotocollen kan het eiwit worden geëxtraheerd via een sequentiële procedure van ammoniumsulfaatprecipitatie, ionische uitwisselingschromatografie en repetitieve grootte-uitsluitingschromatografie (FPLC) bij verschillende pH- en zoutconcentraties. Alle stappen moeten worden gecontroleerd door western blot. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle experimenten werden uitgevoerd in overeenstemming met de institutionele richtlijnen. Varkensnier werd vers uit de plaatselijke supermarkt gehaald. Leverweefsels werden geoogst van C57BL6 wild-type muizen onderhouden aan het Instituut voor Biomedisch Verouderingsonderzoek aan de Universiteit van Innsbruck, Rennweg 10, 6020 Innsbruck, Oostenrijk onder toezicht van Univ.-Doz. Dr. Pidder Jansen-Dürr, gedekt door ethische toestemming als projectleider uitgegeven in 2013 (BMWF-66.008/0007-II/3b/2013). Onderhoud en gebruik van de muizen voor het project vallen onder ethische toestemming nr. 2020-0.242.978 vanaf 5 mei 2020, uitgegeven door het Oostenrijkse ministerie van Onderwijs, Wetenschap en Onderzoek (BMBWF).
1. Voorbereidingen
OPMERKING: Voordat het protocol begint, moeten verschillende dingen worden voorbereid, d.w.z. de eiwitlysisbuffer, het ruwe weefselmonster en een specifiek antilichaam, naast algemene chemicaliën en materialen.
- Bereid 250 ml eiwitlysisbuffer per 100 g nettogewicht weefsel: 250 ml 1x PBS met 50 mM NaF, 1 mM PMSF, 2 μg/ml aprotinine en 1 mM geactiveerd orthovanadaat (zie tabel 1). Filtreer de oplossing met behulp van een spuitfiltereenheid van 0,22 μm.
OPMERKING: Activering van orthovanadaat is vereist voor gebruik om het om te zetten in een krachtigere remmer van eiwit tyrosine fosfatasen18. Geactiveerd orthovanadaat kan worden verkregen bij commerciële leveranciers, maar ook als volgt worden bereid.- Bereid een 200 mM stockoplossing van (natrium)orthovanadaat in ddH2O. Voeg voor de bereiding van 10 ml oplossing 368 mg Na3VO4 tot 9 ml water toe en los op door te roeren. Eenmaal opgelost, vul het volume aan tot 10 ml met ddH2O.
OPMERKING: De start-pH van de natriumorthopvanaatoplossing kan variëren met de bron van het materiaal en de pH moet als volgt worden aangepast tot 10 in een repetitieve benadering. - Afhankelijk van de initiële pH van de oplossing, stelt u de pH bij tot 10 met NaOH of HCl. Bij pH > 10 heeft de oplossing een gele kleur. Kook de oplossing totdat deze kleurloos wordt, koel af tot kamertemperatuur en controleer de pH. Als de pH >10 is, voegt u een klein volume HCl toe om de pH op 10 aan te passen. Op dit punt kan de oplossing weer geel worden.
- Herhaal het koken en afkoelen totdat de oplossing kleurloos blijft en de pH stabiliseert op 10 (ongeveer 5-7 keer). Op dit punt resulteert het toevoegen van HCl in een zwakke verschijning van gele kleur in de oplossing. Bewaar geactiveerd orthovanadaat in aliquots van 1 ml bij -20 °C.
- Bereid een 200 mM stockoplossing van (natrium)orthovanadaat in ddH2O. Voeg voor de bereiding van 10 ml oplossing 368 mg Na3VO4 tot 9 ml water toe en los op door te roeren. Eenmaal opgelost, vul het volume aan tot 10 ml met ddH2O.
- Bereid buisjes voor met 2 ml lysisbuffer per gram weefsel en leg ze op ijs.
OPMERKING: Dit protocol gebruikte acht buizen van 50 ml, elk gevuld met 30 ml lysisbuffer in totaal voor één varkensnier (ongeveer 100-150 g), en twee buizen elk gevuld met 40 ml lysisbuffer voor 20 muizenlevers (elk 1-2 g) in totaal. - Bereid het weefsel voor: ontleed het weefsel op een voorgezuiverde glasplaat op ijs in een doos met polystyreenschuim. Snijd weefselstukken van ongeveer 100 mg elk om gemakkelijk in de respectieve buizen te worden overgebracht voor daaropvolgende lysis. Breng de weefselstukken over in de voorbereide buizen (stap 1.2).
- Bereid een verzadigde ammoniumsulfaatoplossing: verwarm 500 ml ddH2O tot 70 °C en voeg onder het roeren geleidelijk ammoniumsulfaatpoeder (zie materiaaltabel) toe totdat er geen ammoniumsulfaat meer is opgelost. Koel deze (over)verzadigde oplossing af tot kamertemperatuur en bewaar deze een nacht bij 4 °C.
2. Totale eiwitextractie
OPMERKING Na het bereiden van het monster in koude eiwitlysisbuffer (zie stap 1.3), homogeniseert u het weefsel zo goed mogelijk via ultrasoonapparaat door een ultrasone sonde of met behulp van een elektrische homogenisator als volgt.
- Homogenisatie van weefsels
- In het geval van een varkensnier, soniceer de suspensie bij voorkeur door een ultrasone sonde terwijl het monster op ijs blijft (10 cycli van 15 s puls, met intervallen van 30 s tussen de pulsen om het monster op ijs af te koelen, bij gemiddelde amplitude met 50% duty cycle).
- In het geval van muisorganen homogeniseert u de suspensie met behulp van een elektrische homogenisator (beginnend met een lage kracht en langzaam versnellend tot gemiddelde kracht) terwijl het monster op ijs blijft. Was de elektrische homogenisator regelmatig in PBS om organisch materiaal te verwijderen dat het apparaat verstopt.
- Neem 20 μL uit de monsters en controleer onder de microscoop of de cellen van het gehomogeniseerde weefsel goed zijn vernietigd; herhaal anders de homogenisatie.
- Centrifugeer de buizen in een tafelcentrifuge bij 10.000 x g gedurende 30 minuten bij 4 °C.
OPMERKING: Centrifugeer het supernatant optioneel een tweede keer bij 20.000 x g gedurende 30 minuten bij 4 °C om kleine fracties van de oorspronkelijke pellet die mogelijk zijn overgebracht, te elimineren. Dit zal de daaropvolgende filtratie in stap 2.3 vereenvoudigen. - Verzamel het supernatant in een verse tube en leg het op ijs. Filter het supernatant sequentieel met behulp van 0,45 μm en 0,22 μm spuitfiltereenheden. Verdeel het supernatant in batches van 10 ml en vries ze in bij -20 °C voor opslag op korte termijn of bij -80 °C voor langere opslag.
OPMERKING: Voorfiltering met 0,45 μm verwijdert de meerderheid van de deeltjes voordat een tweede filterstap met 0,22 μm de fijnere deeltjes verwijdert. Het direct gebruik van het filter van 0,22 μm kan het risico van verstopping van de filters veroorzaken. - Bereid een monster van 50 μL voor SDS-PAGE/western blot-analyse door 10 μL 5x SDS-monsterbuffer (zie tabel 1) toe te voegen aan 40 μL van het supernatant en vervolgens gedurende 10 minuten te koken bij 95 °C.
- Resuspendatie optioneel ongeveer 100 μL pellet verkregen in stap 2.2 in 900 μL ddH2O, en bereid een monster voor SDS-PAGE/western blot-analyse zoals hierboven beschreven.
OPMERKING: Opname van van pellets afgeleide monsters in de western blot-analyse, naast de positieve controle, zal aangeven of de expressie van het eiwit laag is of dat het antilichaam problematisch is.
- Resuspendatie optioneel ongeveer 100 μL pellet verkregen in stap 2.2 in 900 μL ddH2O, en bereid een monster voor SDS-PAGE/western blot-analyse zoals hierboven beschreven.
3. SDS-PAGE en western blot analyse
OPMERKING: Western blot-analyse is vereist om te controleren op de oplosbaarheid van eiwitten. Hieronder wordt een protocol beschreven voor elektroblottering, met behulp van een nat/tank-blotsysteem (zie materiaaltabel). Een alternatief protocol voor SDS-PAGE is elders te vinden19.
- Bereid een discontinue 12,5% polyacrylamide SDS-PAGE gel volgens de instructies van de fabrikant (d.w.z. een stapelgel bovenop een oplossende gel; zie tabel 1). Voer de monsters uit die eerder zijn voorbereid tijdens stap 2 (vergelijkbaar met stap 4, 5 en 6; zie hieronder).
- Plaats een eiwitmarkerladder in de eerste put (zie Tabel met materialen). Belasting 5 ng hFAHD1 recombinant eiwit (verkregen uit bacteriën12; zie tabel 1) als positieve controle in de tweede put.
- Laad vervolgens 20 μL van het te analyseren monster en vul alle resterende putten met 20 μL bereide SDS-PAGE 1x monsterbuffer (d.w.z. 5x monsterbuffer verdund met ddH2O). Voer de SDS-PAGE-gels uit op 125 V met behulp van de SDS-buffer (zie tabel 1).
- Nadat SDS-PAGE is voltooid, voert u een western blot-analyse uit en onderzoekt u de membranen met behulp van het beschikbare antilichaam tegen FAHD1 (zie tabel 1).
OPMERKING: Aangezien de monsters worden genomen van ruw weefselhomogenaat, wordt meestal de kwaliteit van de SDS-PAGE en de western blot-analyse op dit punt aangetast; het is echter belangrijk om te controleren of het te extraheren eiwit oplosbaar is in het supernatant. Het volgende protocol werd getest op varkensnieren en verschillende muizenorganen, waaronder lever, hart, hersenen en nieren.- Bereid de 10x western blot transfer buffer voor (zie tabel 1). Bereid de 1x western blot transfer buffer (zie tabel 1) en laat deze afkoelen tot 4 °C.
- Activeer een PVDF-membraan gedurende 2 minuten in methanol. Was het membraan gedurende2min in ddH 2 O. Breng het membraan gedurende 15 minuten in evenwicht in 1x western blot transfer buffer.
- Was de SDS-gel met 1x PBS gedurende 10 minuten tijdens het schudden om de SDS-lopende buffer te verwijderen en incubeer de gel vervolgens gedurende 10 minuten in 1x western blot transfer buffer voor evenwicht. Monteer de elektroblottingcassette (d.w.z. combineer het geactiveerde PVDF-membraan en de gels) volgens de instructies van de fabrikant.
- Laat de vlek via elektroblotting bij 300 mA gedurende 1 uur in een met ijs gevulde piepschuimdoos of in de koude ruimte (4 °C) lopen. Breng het PVDF-membraan over in een buis van 50 ml met de blootgestelde kant naar de binnenkant van de buis. Incubeer het membraan in 20 ml western blot-blokkerende buffer (zie tabel 1) gedurende de nacht bij 4 °C tijdens het rollen op een buisrol (zie Materiaaltabel).
- Was het membraan de volgende dag gedurende 5 minuten met 20 ml western blot wasbuffer (PBS met 0,1% (v/v) Tween 20) in dezelfde buis tijdens het rollen. Incubeer het membraan in dezelfde buis met het primaire antilichaam2 (gericht op FAHD1; zie tabel 1) verdund 1:500 in western blot blokkerende buffer gedurende 1 uur bij kamertemperatuur tijdens het rollen.
- Was het membraan in dezelfde buis drie keer gedurende 10 minuten elk met 20 ml western blot wasbuffer tijdens het rollen. Incubeer het membraan gedurende 30 minuten bij kamertemperatuur met HRP-geconjugeerd secundair antilichaam (zie Tabel met materialen) verdund 1:3000 in 5 ml western blot blokkerende buffer.
- Was het membraan in dezelfde buis drie keer gedurende 10 minuten elk met 20 ml western blot wasbuffer en twee keer gedurende 5 minuten elk met 1x PBS. Droog het membraan door het voorzichtig met een pincet aan één rand vast te houden en door een stuk cellulose of een stuk Whatman-papier met de tegenovergestelde (onder)rand van het membraan aan te raken. Leg het membraan (blootgestelde zijde naar boven) op een gereinigde glasplaat.
- Bedek het hele membraan zorgvuldig met 1 ml bereid ECL western blot-substraat met behulp van een pipet, waarbij u ervoor zorgt dat er geen luchtbellen ontstaan. Laat de ECL-oplossing gedurende 3 minuten incuberen en ontwikkel het membraan onmiddellijk met behulp van röntgenfilm of met behulp van een beeldvormingssysteem.
OPMERKING: Als het eiwit in geen van de monsters maar alleen in de positieve controle is gedetecteerd, kan dit erop wijzen dat het eiwit onoplosbaar is of niet in voldoende hoeveelheden aanwezig is om door het antilichaam te worden gedetecteerd. Als alleen nanogrammen van de positieve controle werden geladen, is het eerste scenario waarschijnlijker. Als er helemaal geen eiwit is gedetecteerd, controleer dan de kwaliteit van het antilichaam en schakel misschien over op een polyklonaal antilichaam in plaats van een monoklonaal antilichaam. In zeldzame gevallen, d.w.z. voor sommige hydrofobe eiwitten, kan het eiwit detecteerbaar zijn na centrifugeren, maar niet na filtratie. In een dergelijk geval wordt aanbevolen om speciale filtereenheden voor hydrofobe eiwitten te gebruiken.
- Optioneel kleurt u de PVDF-membranen na western blot om de succesvolle overdracht van het eiwit van de SDS-PAGE-gel naar het PVDF-membraan te regelen.
OPMERKING: Coomassie-kleuring wordt aanbevolen voor probleemoplossing, methodeontwikkeling en documentatie, maar houd er rekening mee dat na het toepassen van dit protocol membranen verloren gaan bij verdere western blot-analyse. Ponceau S-kleuring geeft zwakkere kleuring, maar kan worden gebruikt als de membranen opnieuw moeten worden onderzocht.- Bereid kleine bakjes met de kleuring (Coomassie of Ponceau S) en ontkleuringsoplossingen.
- Gebruik een pincet, plaats het membraan in de kleuringsoplossing en schud voorzichtig totdat het membraan goed gekleurd is (5-10 min).
- Breng het membraan over in de vasthoudende oplossing en schud totdat de oplossing verzadigd is (5-10 min). Herhaal de destainingstap totdat de eiwitbanden op het membraan kunnen worden waargenomen; als er helemaal geen banden worden waargenomen, herhaalt u de kleuring met een langere incubatietijd. Droog het membraan door het met een pincet op een glasplaat te plaatsen.
4. Testen: Ammoniumsulfaat precipitatie
OPMERKING: Ammoniumsulfaatprecipitatie is een methode voor eiwitzuivering door de oplosbaarheid van het eiwit te veranderen. In een voorlopig experiment wordt de ammoniumsulfaatconcentratie sequentieel verhoogd tot een waarde die een maximale hoeveelheid eiwitverontreinigingen neerslaat, terwijl FAHD1 in oplossing blijft. De oplosbaarheid van het eiwit wordt opnieuw onderzocht via western blot-analyse.
- Ga verder met stap 2.3: ontdooi een aliquot van het monster of ga direct na eiwitextractie verder (d.w.z. zonder het monster in te vriezen). Filtreer het monster met een filtereenheid van 0,22 μm om mogelijke neerslag na het ontdooien uit te sluiten. Bereid zes buizen van 1,5 ml op ijs en breng 250 μL monster over in elke buis.
- Bereid een verdunningsreeks van 5%, 10%, 15%, 20%, 25% en 30% ammoniumsulfaat in de hierboven bereide buizen en maak het uiteindelijke volume aan tot 1000 μL met eiwitlysisbuffer. Incubeer de monsters bij 4 °C 's nachts op een buisrotator (zie Materiaaltabel).
- Centrifugeer met behulp van een tafelcentrifuge bij 10.000 x g gedurende 30 minuten bij 4 °C en breng alle supernatanten voorzichtig over in afzonderlijke buizen. Droog de resulterende pellets aan de lucht en resuspend ze elk in 1000 μL ddH2O.
- Meng voor elk paar geresuspendeerde pellets en supernatant uit de vorige stap 40 μL met 10 μL 5x SDS-monsterbuffer en kook bij 95 °C met open deksels totdat het grootste deel van de vloeistof is verdampt. Breng de pellet vervolgens opnieuw op in een mengsel van 50% DMSO in ddH2O.
- Voer SDS-PAGE uit (stap 3) maar laat de gels 3 uur op 80 V draaien. Laad voor elke concentratie ammoniumsulfaat de monsters van de geresuspendeerde pellet en het supernatant (stap 4.3) in paren. Voer een western blot-analyse uit (stap 3).
- Controleer op de hoogste concentratie ammoniumsulfaat, waarbij het te zuiveren eiwit (d.w.z. FAHD1) achterblijft in het monster dat is afgeleid van het supernatant. Definieer op basis van de resultaten een ammoniumsulfaatprecipitatieprotocol voor het eiwit van belang, dat in toekomstige experimenten kan worden gebruikt.
OPMERKING: Van ammoniumsulfaat is bekend dat het SDS-PAGE en western blot vervormt. Naarmate de concentratie ammoniumsulfaat toeneemt, zal de kwaliteit van de western blot-analyse in het gedrang komen. Net als bij stap 3 eerder wordt deze analyse echter gebruikt om te controleren op de oplosbaarheid van het eiwit van belang bij bepaalde concentraties ammoniumsulfaat. Dit protocol heeft tot doel andere eiwitten neer te slaan, terwijl het te zuiveren eiwit oplosbaar moet blijven.
5. Testen: ionische uitwisseling chromatografie met FPLC
OPMERKING: Moleculen met geladen functionele groepen zijn gebonden aan een silicadeeltjeskolom voor FPLC, waardoor de differentiatie van eiwitten mogelijk is op basis van hun oppervlaktelading. Voer deze stap twee keer uit met behulp van de kationische uitwisselingskolom en de anionische uitwisselingskolom (zie Tabel met materialen). De protocolstappen zijn hetzelfde voor kationische of anionische uitwisselingschromatografie, maar de te gebruiken buffers zijn verschillend (zie tabel 1); beide met "laag zout" 15 mM NaCl en "hoog zout" 1 M NaCl condities. Voor de gebruikte kolommen wordt een debiet van 1 ml/min aanbevolen.
- Stel het FPLC-systeem in met de anionische of kationische uitwisselingskolom. Was de kolom met 5 kolomvolumes (cv's) van 20% EtOH (in H2O), gevolgd door 5 cv's van ddH2O. Was de kolom afwisselend met 1 CV met een lage zoutbuffer, een hoge zoutbuffer en opnieuw een lage zoutbuffer in de volgorde totdat er geen pieken meer worden waargenomen in het chromatogram, maar was minstens één keer.
- Na het bepalen van het optimale protocol voor ammoniumsulfaatprecipitatie op kleine schaal (stap 4), past u het precipitatieprotocol toe op 10 ml oorspronkelijk weefselhomogenaat (stap 2). Optioneel dialyseer het monster tegen de lage zoutbuffer.
- Breng het monster aan op de kolom (bijvoorbeeld door injectie of met behulp van een monsterpomp) en vang de doorstroming op. Was de kolom met 1 CV van de lage zoutbuffer.
- Stel een lineaire gradiënte-elutie in van 100% lage zoutbuffer / 0% hoge zoutbuffer naar 0% lage zoutbuffer / 100% hoge zoutbuffer binnen 3 cv's. Verzamel continu 1 ml fracties. Nadat de gradiënt is voltooid, blijft u met de hoge zoutbuffer lopen totdat er geen eiwitgerelateerde pieken (UV-absorptie bij 280/255 nm) meer worden gedetecteerd in het chromatogram over het bereik van 1 CV.
- Breng 1 ml 25% SDS opgelost in 0,5 M NaOH (in ddH2O) aan om de kolom schoon te maken. Was achtereenvolgens de kolom met 3 cv's van ddH2O en 3 cv's van 20% EtOH (in ddH2O).
- Verzamel SDS-PAGE-monsters van alle piekfracties en de doorstroming en onderzoek ze via western blot op de aanwezigheid van het eiwit van belang (stap 3). Vries de verzamelde fracties in vloeibare stikstof in en bewaar ze bij -80 °C.
- Nadat de western blot-analyse is voltooid, ontdooit en poolt u de fracties die het eiwit van belang bevatten en gooit u de andere weg. Herhaal stap 5.1-5.5 met de alternatieve kolom (d.w.z. kationische of anionische uitwisselingskolom).
- Nadat beide kolommen zijn onderzocht, definieert u een FPLC-protocol voor het eiwit van belang, dat in toekomstige experimenten kan worden gebruikt. Verminder het volume van de eiwitoplossing met behulp van ultracentrifugatiefiltereenheden (10 kDa, zie Tabel met materialen) tot 2 ml.
OPMERKING: Er zijn twee verwachte uitkomsten van deze reeks experimenten. Of het eiwit van belang heeft zich aan een van de kolommen gehecht en de eiwitoplossing is al vrij zuiver na elutie, of het eiwit bleef in beide gevallen in de doorstroom. In het laatste scenario, hoewel het eiwit zich in de doorstroom bevindt, kan het reinigende effect van deze stap nog steeds aanzienlijk zijn. In een dergelijk geval, zoals voor FAHD1 in varkensnieren en muizenlever, zal deze stap van ionische uitwisseling nog steeds worden uitgevoerd. Als noch de kationische noch de anionische uitwisselingskolom een goed reinigend effect kan hebben, kan men proberen de pH van het lysaat en de buffer te wijzigen en het monster tegen de lopende buffer te dialyseren voordat het op FPLC wordt aangebracht.
6. Eiwitextractie met behulp van gedefinieerde subprotocollen voor ammoniumsulfaatprecipitatie en FPLC
OPMERKING: Poreuze deeltjes in een silicagelkolom voor FPLC (zie tabel met materialen) maken de differentiatie van eiwitten mogelijk op basis van hun hydrodynamische straal. De beschreven stappen moeten worden uitgevoerd met een FPLC-systeem, met behulp van maatuitsluitingschromatografie (SEC). Voor de gebruikte SEC-kolom (zie Tabel met materialen) wordt een debiet van 0,3 ml/min aanbevolen.
- Bereid alle benodigde materialen voor (zie stap 1) en extraheer het totale eiwit uit het weefsel (zie stap 2). Voer een ammoniumsulfaatprecipitatie uit met al het weefselhomogenaat dat niet voor de test is gebruikt (zie stap 4). Voor grotere volumes concentreert u het lysaat met behulp van ultracentrifugatiefiltereenheden (10 kDa; zie Tabel met materialen) tot een kleiner volume van 50 ml of minder.
- Voer een eerste zuiveringsstap uit met behulp van ionische uitwisselingschromatografie (zie stap 5).
- Bereid monsters voor western blot, zoals beschreven in de vorige stappen. Voer western blot-analyse uit en bundel alle FAHD1-bevattende fracties van ionische uitwisselingschromatografie.
- Reduceer het volume van de eiwitoplossing tot 2 ml met behulp van ultracentrifugatiefiltereenheden (10 kDa). Filter de oplossing sequentieel met 0,45 μm en 0,22 μm spuitfiltereenheden om eventuele microprecipitatie te verwijderen.
- Breng de SEC-kolom in evenwicht met 1 CV van de SEC-lopende buffer (zie tabel 1), die 1 mM DTT bevat. Laad het monster op de kolom en voer de chromatografie uit totdat alle eiwitten zijn geëlueerd (1-2 CV).
- Verzamel fracties van 1 ml van de doorstroom die overeenkomen met significante pieken in het chromatogram (UV-absorptie bij 280/255 nm) en bereid 50 μL monsters van elke verzamelde fractie voor SDS-PAGE en western blot-analyse, zoals beschreven in de vorige stappen. Vries alle fracties in met vloeibare stikstof en bewaar ze bij -80 °C.
- Was achtereenvolgens de SEC-kolom met 1 CV van ddH2O en 1 CV van 20% EtOH (in ddH2O). Voer western-Blot-analyse uit en bundel alle FAHD1-bevattende fracties. Reduceer het volume van de eiwitoplossing tot 2 ml met behulp van ultracentrifugatiefiltereenheden (10 kDa, zie Materiaaltabel).
- Beoordeel de eiwitconcentratie met behulp van een commerciële BCA-testkit (zie Tabel met materialen).
OPMERKING: De pH en het zoutgehalte van de mobiele fase kunnen het elutieprofiel van bolvormige eiwittenbeïnvloeden 20. Zure of basische omstandigheden kunnen ertoe leiden dat pieken minder gedefinieerd zijn en dat de eiwit-matrixinteracties toenemen, wat leidt tot gedeeltelijke retentie van eiwit op de kolom20. Dit effect kan worden benut voor verdere eiwitzuivering. Een herhaling van stap 6 met verschillende stroomsnelheden, pH en zoutconcentraties kan de zuiverheid van het eiwitverbeteren 20.
7. Zilverkleuring
OPMERKING: Zilverkleuringsanalyse van SDS-PAGE-gels is vereist om te controleren op eiwitverontreinigingen die mogelijk niet worden gezien met Coomassie-kleuring. Het volgende protocol is een van de vele versies die te vinden zijn in de literatuur21. Voer alle incubatiestappen uit door te schudden in een schone glazen lade. Verzamel alle zilver- en formaldehyde-bevattende vloeistoffen in een speciale afvalcontainer en gooi ze op de juiste manier weg.
- Incubeer de SDS-PAGE gels in zilverkleuringsoplossing (zie tabel 1) 's nachts in de koelcel. Incubeer de gels in zilverkleuringsincubatieoplossing (zie tabel 1) gedurende 3 uur bij kamertemperatuur. Voeg eventueel glutaaraldehyde toe (zie tabel 1) om de detectie van zwakke banden te verbeteren. Was de gels vier keer in ddH2O gedurende 10 minuten elk.
- Incubeer de gels in zilverkleuring zilveroplossing (zie tabel 1) gedurende 1 uur.
OPMERKING: Let op dat vanaf nu alle vloeistoffen en de gel zelf zilver en formaldehyde bevatten die giftig zijn. - Incubeer de gels in een oplossing voor het plaatsen van zilverkleuring (zie tabel 1) met krachtig schudden totdat de banden duidelijk zichtbaar zijn. Om de reactie te stoppen, gooit u de ontwikkelaarsoplossing weg en incubeert u de gels onmiddellijk in de zilverkleuringsstopoplossing (zie tabel 1) gedurende minimaal 10 minuten.
OPMERKING: Banden die in stap 7.2 en 7.3 zijn gekleurd, zullen voortdurend meer ontwikkeld worden. Het toevoegen van meer formaldehyde aan de oplossing dan vermeld kan nodig zijn als de kleuring zwak is.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
FAHD1-eiwit werd geëxtraheerd uit varkensnieren en muizenlever met behulp van het gepresenteerde protocol. Voor muizenweefsel zijn meerdere organen nodig om meerdere μg te verkrijgen na de laatste zuiveringsstap. Om deze reden richt dit artikel zich op de extractie van FAHD1 uit varkensnieren, wat een veel voorbeeldiger experiment is. De extractie van FAHD1 uit de muizenlever wordt uitgevoerd om de moeilijkheden en mogelijke valkuilen van dit protocol te presenteren. Het wordt over het algemeen aanbevolen om organen te g...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Kritieke stappen in het protocol
Het volgen van gemeenschappelijke richtlijnen voor de omgang met eiwitten is essentieel, zoals werken op ijs en bij matige pH- en zoutcondities. Het gebruik van proteaseremmers is gunstig voor de methode, terwijl het gebruik van proteasoomremmers ten zeerste wordt aanbevolen. Het invriezen en ontdooien van het monster kan altijd leiden tot eiwitprecipitatie (ten minste gedeeltelijk), dus elk ontdooide aliquot van initieel eiwitlysaat (stap 2) moet continu worden verwer...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen tegenstrijdige financiële belangen.
Dankbetuigingen
De auteurs zijn erg dankbaar voor de technische assistentie van Ayse Öztürk en Eva Albertini. Muizen die werden gebruikt voor het genereren van leverweefsel werden onderhouden onder toezicht van Univ.-Doz. Dr. Pidder Jansen-Dürr (Instituut voor Biomedisch Verouderingsonderzoek aan de Universiteit van Innsbruck, Rennweg 10, 6020 Innsbruck, Oostenrijk).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.22 µm filter units | MERCK | SLGP033RS | Millex-HP, 0.22 µm, PES 33 mm, niet steriel |
| 0.45 µm filter units | MERCK | SLHP033NS | Millex-HP, 0.45 µm, PES 33 mm, niet steriel |
| 15 mL Falcon tubes | VWR | 734-0451 | centrifugaalbuizen |
| 50 mL Falcon tubes | VWR | 734-0448 | centrifugaalbuizen |
| 96-Well UV Microplate | Thermo-Fischer | 8404 | UV/VIS transparante platte bodem 96 well platen |
| Acrylamide/Bis Solution (40%, 29:1 ratio) | BIO-RAD | #1610147 | 40% acrylamide/bis-acrylamide, 29:1 (3,3% crosslinker) oplossing voor het gieten van polyacrylamide gels |
| ÄKTA FPLC system | GE Healthcare Life Sciences / Cytiva | - | gebruikmakend van het FPLC systeem van GE Healthcare; er bestaan verschillende aangepaste versies; dit werk gebruikte het "ÄKTA pure" systeem |
| Amicon Ultra-15, PLGC Ultracel-PL Membran, 10 kDa | MERCK | UFC901024 | centrifugale filters voor eiwitverrijking; 10 kDa moleculair massa filter; 15 mL |
| Amicon Ultra-4, PLGC Ultracel-PL Membran, 10 kDa | MERCK | UFC801024 | centrifugale filters voor eiwitverrijking; 10 kDa moleculair massa filter; 4 mL |
| Ammonium sulfate powder | MERCK | A4418 | ammoniumsulfaat voor moleculaire biologie, ≥99,0% |
| Ammoniumpersulfat reagent grade, 98% | MERCK | 215589 | Katalysator voor acrylamide gel polymerisatie. |
| Coomassie Brilliant blue R 250 | MERCK | 1125530025 | Coomassie Brilliant blue R 250 (C.I. 42660) voor elektroforese Handelsmerk van Imperial Chemical Industries PLC. CAS 6104-59-2, pH 6,2 (10 g/l, H2O, 25 °C) |
| Dialysis tubing cellulose membrane | MERCK | D9277 | Cellulose membranen voor het uitwisselen van buffers via dialyse. |
| Eppendof tubes 1.5 mL | VWR | 525-1042 | microcentrifugale buisjes; geautoclaveerd |
| HiLoad 26/600 Superdex 75 pg | GE Healthcare Life Sciences / Cytiva | 28989334 | HiLoad Superdex 75 pg voorgevulde kolommen zijn voor hoogwaardige scheiding van eiwitten door grootte-uitsluitingschromatografie |
| Immun-Blot PVDF Membrane | BIO-RAD | #1620177 | PVDF membranen zijn eiwitblot membranen geoptimaliseerd voor fluorescente en multiplex fluorescente toepassingen. |
| Mini Trans-Blot Electrophoretic Transfer Cell | BIO-RAD | #1703930 | Gebruik de Mini Trans-Blot Cell voor snel blotten van Mini-PROTEAN voorgevormde en handgemaakte gels. |
| Mini-PROTEAN Tetra Vertical Electrophoresis Cell for Mini Precast Gels | BIO-RAD | #1658004 | 4-gel verticale elektroforese systeem, inclusief elektrodenassemblage, begeleidende draaimodule, tank, deksel met stroomkabels, mini cell buffer dam. |
| Mono Q 10/100 GL | GE Healthcare Life Sciences / Cytiva | 17516701 | Mono Q kolommen zijn sterke anion uitwisselingschromatografie kolommen voor eiwitanalyse of kleinschalige, hoge resolutie verfijning van eiwitten. |
| Mono S 10/100 GL | GE Healthcare Life Sciences / Cytiva | 17516901 | Mono S kolommen zijn sterke kation uitwisselingschromatografie kolommen voor eiwitanalyse of kleinschalige, hoge resolutie verfijning van eiwitten. |
| PageRuler Prestained Protein Ladder, 10 tot 180 kDa | Thermo-Fischer | 26616 | Een mengsel van 10 blauw-, oranje- en groen-gekleurde eiwitten (10 tot 180 kDa) voor gebruik als maatstaven in eiwitelektroforese (SDS-PAGE) en western blotting. |
| Pierce BCA Protein Assay Kit | Thermo-Fischer | 23225 | Een tweecomponent, hoge precisie, detergent-compatibel eiwit assay voor het bepalen van de eiwitconcentratie. |
| Sonifier 250; Ultrasonic Cell Disruptor w/ Converter | Branson | - | Nieuwe modellen op https://www.emerson.com/documents/automation/brochure-sonifier-sfx250-sfx550-cell-disruptors-homogenizers-branson-en-us-168180.pdf |
| Swine Anti-Rabbit Immunoglobulins/HRP (affinity isolated) | Agilent Dako | P0399 | Het antilichaam gebruikt voor de konjugatie van paardenradenklaver reageert met konijn immunoglobulinen van alle klassen. |
| TEMED, 1,2-Bis(dimethylamino)ethane, TMEDA | MERCK | T9281 | TEMED (N,N,N′,N′-Tetramethylethyleendiamine) is een molecuul dat een snelle polymerisatie van polyacrylamide gels mogelijk maakt. |
| Tube Roller | - | - | Een algemene buisrotator roller; bijv. een nieuw model op https://labstac.com/de/Mixer/Roller/c/71 |
| Tube Rotator | - | - | Een algemene buisrotator wiel; bijv. een nieuw model op https://labstac.com/de/Tube-Roller/p/MT123 |
| ULTRA-TURRAX; T 25 digital | IKA | 0003725000 | Nieuwe modellen op https://www.ika.com/de/Produkte-Lab-Eq/Dispergierer-Dipergiergeraet-Homogenisierer-Homogenisator-csp-177/T-25-digital-ULTRA-TURRAX-cpdt-3725000/ |
Referenties
- Pircher, H., et al. Identification of FAH domain-containing protein 1 (FAHD1) as oxaloacetate decarboxylase. Journal of Biological Chemistry. 290 (11), 6755-6762 (2015).
- Pircher, H., et al. Identification of human Fumarylacetoacetate Hydrolase Domain-containing Protein 1 (FAHD1) as a novel mitochondrial acylpyruvase. Journal of Biological Chemistry. 286 (42), 36500-36508 (2011).
- Kang, T. -W., et al. Senescence surveillance of pre-malignant hepatocytes limits liver cancer development. Nature. 479 (7374), 547-551 (2011).
- Hong, H., Seo, H., Park, W., Kim, K. K. -J. Sequence, structure and function-based classification of the broadly conserved FAH superfamily reveals two distinct fumarylpyruvate hydrolase subfamilies. Environmental Microbiology. 22 (1), 270-285 (2020).
- Timm, D. E., Mueller, H. A., Bhanumoorthy, P., Harp, J. M., Bunick, G. J. Crystal structure and mechanism of a carbon-carbon bond hydrolase. Structure. 7 (9), London, England. 1023-1033 (1999).
- Bateman, R. L., et al. Mechanistic inferences from the crystal structure of Fumarylacetoacetate Hydrolase with a bound phosphorus-based inhibitor. Journal of Biological Chemistry. 276 (18), 15284-15291 (2001).
- Weiss, A. K. H., et al. Structural basis for the bi-functionality of human oxaloacetate decarboxylase FAHD1. Biochemical Journal. 475 (22), 3561-3576 (2018).
- Etemad, S., et al. Oxaloacetate decarboxylase FAHD1 - a new regulator of mitochondrial function and senescence. Mechanisms of Ageing and Development. 177, 22-29 (2019).
- Weiss, A. K. H., et al. Regulation of cellular senescence by eukaryotic members of the FAH superfamily - A role in calcium homeostasis. Mechanisms of Ageing and Development. 190, 111284(2020).
- Petit, M., Koziel, R., Etemad, S., Pircher, H., Jansen-Dürr, P. Depletion of oxaloacetate decarboxylase FAHD1 inhibits mitochondrial electron transport and induces cellular senescence in human endothelial cells. Experimental Gerontology. 92, 7-12 (2017).
- Wiley, C. D., et al. Mitochondrial dysfunction induces senescence with a distinct secretory phenotype. Cell Metabolism. 23 (2), 303-314 (2016).
- Weiss, A. K. H., et al. Expression, purification, crystallization, and enzyme assays of Fumarylacetoacetate Hydrolase Domain-containing proteins. Journal of Visualized Experiments: JoVE. (148), e59729(2019).
- Weiss, A. K. H., et al. Inhibitors of Fumarylacetoacetate Hydrolase Domain Containing Protein 1 (FAHD1). Molcules. 26 (16), 5009(2021).
- Mizutani, H., Kunishima, N. Purification, crystallization and preliminary X-ray analysis of the fumarylacetoacetase family member TTHA0809 from Thermus thermophilus HB8. Acta Crystallographica Section F Structural Biology and Crystallization Communications. 63 (9), 792-794 (2007).
- Lee, C. H. A simple outline of methods for protein isolation and purification. Endocrinology and Metabolism. 32 (1), Seoul, Korea. 18-22 (2017).
- Amer, H. E. A. Purification of proteins: Between meaning and different methods). Proteomics Technologies and Applications. , (2019).
- Niu, L., Yuan, H., Gong, F., Wu, X., Wang, W. Protein extraction methods shape much of the extracted proteomes. Frontiers in Plant Science. 9, 802(2018).
- Gordon, J. A. Use of vanadate as protein-phosphotyrosine phosphatase inhibitor. Methods in Enzymology. 201, 477-482 (1991).
- Gallagher, S. R. SDS-polyacrylamide gel electrophoresis (SDS-PAGE). Current Protocols in Essential Laboratory Techniques. , (2012).
- Ahmed, U., Saunders, G. Effect of pH on Protein Size Exclusion Chromatography. , Available from: https://www.agilent.com/cs/library/applications/5990-8138EN.pdf (2011).
- Sørensen, B. K., et al. Silver staining of proteins on electroblotting membranes and intensification of silver staining of proteins separated by polyacrylamide gel electrophoresis. Analytical Biochemistry. 304 (1), 33-41 (2002).
- Fagerberg, L., et al. Analysis of the human tissue-specific expression by genome-wide integration of transcriptomics and antibody-based proteomics. Molecular & Cellular Proteomics. 13 (2), 397-406 (2014).
- Cytiva Life Fundamentals of size exclusion chromatography. , Available from: https://www.cytivalifesciences.com/en/us/solutions/protein-research/knowledge-center/protein-purification-methods/size-exclusion-chromatography (2022).
- Rosano, G. L., Ceccarelli, E. A. Recombinant protein expression in Escherichia coli: advances and challenges. Frontiers in Microbiology. 5, 172(2014).
- Rosano, G. L., Morales, E. S., Ceccarelli, E. A. New tools for recombinant protein production in Escherichia coli: A 5-year update. Protein Science: A Publication of the Protein Society. 28 (8), 1412-1422 (2019).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
