Het huidige protocol beschrijft de intracerebroventriculaire (ICV) injectie van volwassen zebravissen met neurotoxische 6-hydroxydopamine (6-OHDA) bij het ventrale diencephalon (Dn) en de beoordeling van de aantasting en het daaropvolgende herstel van zwemgedrag postlesion met behulp van de open tank test, die vergezeld gaat van analyse met behulp van een video tracking software.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Locomotorische beoordeling van 6-hydroxydopamine-geïnduceerde volwassen zebravis-gebaseerde Parkinson's Disease Model
In dit artikel
Samenvatting
Samenvatting
De beperkingen van de huidige behandelingen in het vertragen van dopaminerge neuronale verliezen bij de ziekte van Parkinson (PD) verhogen de behoefte aan alternatieve therapieën die deze neuronen kunnen herstellen. Veel inspanningen worden momenteel gericht op een beter begrip van neuroregeneratie met behulp van preklinische in vivo modellen. Dit regeneratieve vermogen tot zelfherstel is echter inefficiënt bij zoogdieren. Niet-zoogdierdieren zoals zebravissen zijn dus naar voren gekomen als een uitstekend neuroregeneratief model vanwege zijn vermogen om zichzelf voortdurend te vernieuwen en een nauwe hersen homologie aan de mens te hebben. Als onderdeel van de inspanning om cellulaire gebeurtenissen die betrokken zijn bij neuroregeneratie in vivo op te helderen, hebben we het 6-hydroxydopamine (6-OHDA) -geïnduceerde pd-model voor volwassenen op basis van zebravissen vastgesteld. Dit werd bereikt door de geoptimaliseerde intracerebroventriculaire (ICV) micro-injectie van 99,96 mM 6-OHDA om specifiek dopaminerge neuronen (DpN) in het ventrale diencephalon (Dn) van zebravishersenen te aborteren. Immunofluorescentie duidde op meer dan 85% van de DpN-ablatie op dag drie postlesie en volledig herstel van DpN op de laesieplaats 30 dagen postlesie. De huidige studie bepaalde de aantasting en het daaropvolgende herstel van het zwemgedrag van zebravissen na laesie met behulp van de open veldtest waarmee twee parameters, afgelegde afstand (cm) en gemiddelde snelheid (cm / s), werden gekwantificeerd. De voortbeweging werd beoordeeld door de opnames van individuele vissen van elke groep (n = 6) te analyseren met behulp van videotrackingsoftware. De bevindingen toonden een significante (p < 0,0001) vermindering van de snelheid (cm / s) en afgelegde afstand (cm) van laesie zebravissen 3 dagen postlesie in vergelijking met sham. De laesie zebravis vertoonde volledig herstel van zwemgedrag 30 dagen na de operatie. De huidige bevindingen suggereren dat 6-OHDA laesievolle volwassen zebravissen een uitstekend model is met reproduceerbare kwaliteit om de studie van neuroregeneratie bij PD te vergemakkelijken. Toekomstige studies naar de mechanismen die ten grondslag liggen aan neuroregeneratie en intrinsieke en extrinsieke factoren die het proces moduleren, kunnen belangrijk inzicht bieden in nieuwe celvervangingsbehandelingsstrategieën tegen PD.
Inleiding
De ziekte van Parkinson (PD), een ziekte die kenmerkend wordt voor spierstijfheid, rusttremor en bradykinesie, is de snelst groeiende neurologische ziekte ter wereld1,2. Het risico en de prevalentie van PD nemen snel toe met de leeftijd, vooral bij personen van 50 jaar en ouder3 jaar. De etiologie en pathogenese van PD blijven tot nu toe slecht begrepen. Dit heeft het vroege begin van PD vaak niet gediagnosticeerd. Op dit moment zijn het gebrek aan dopamine en het verlies van dopaminerge neuronen (DpN) bij PD-patiënten sterk gekoppeld aan de manifestatie van motorische symptomen4. Profiterend van deze relatie, zijn verschillende behandelingen ontworpen om direct te fungeren als dopaminevervanging (d.w.z. levodopa) of om het verlies van DpN te compenseren (d.w.z. diepe hersenstimulatie). Hoewel deze behandelingen symptomatische voordelen opleveren, veranderen ze het verslechterende verloop van de ziekte niet5. Gezien deze aanzienlijke zwakte is celvervangingstherapie voorgesteld. De effectiviteit van deze aanpak is echter inconsistent gezien de uitdagingen van transplantaatpreparatie, celgroeicontrole en fenotype-instabiliteit. Celvervangingstherapie, die ethische bezwaren had opgeroepen, brengt ook het risico met zich mee van het induceren van hersentumoren en ongewenste immuunreacties6,7.
De beperkingen van de huidige therapeutische strategieën hebben geleid tot een grotere nadruk op de regeneratie van DpN als een potentiële benadering bij de behandeling van PD. Regeneratie van DpN of neuroregeneratie is naar voren gekomen als een van de veelbelovende doorbraken in het beheer van PD, niet alleen vanwege het potentieel als een nieuwe therapeutische methode, maar ook als middel om het mechanisme van de ziekte te begrijpen8, 9. Deze benadering richt zich op het herstel van de neuronale functie door differentiatie, migratie en integratie van bestaande voorlopercellen in het laesiecircuit10. Om neuroregeneratie verder te onderzoeken, zijn verschillende in vivo studies uitgevoerd. Het bleek dat gewervelde dieren zoals zoogdieren, amfibieën en reptielen nieuwe hersencellen genereren na letsel11,12. Onder de gewervelde dieren zijn zoogdieren meer gewild gezien hun genetische gelijkenis met mensen. Zoogdieren vertonen echter een beperkt en slecht herstelvermogen in het centrale zenuwstelsel (CZS) dat tot de volwassenheid kan duren na een hersenletsel13. Over het algemeen zijn zoogdieren ongeschikt als diermodellen voor het begrijpen van neuroregeneratie, aangezien het lage aantal geproduceerde neuronen niet voldoende zal zijn om beschadigde neurale circuits te herstellen die bij PD worden waargenomen. Als zodanig is het op teleost gebaseerde model, met name in zebravissen, zeer begunstigd vanwege zijn hoge proliferatieve snelheid, het vermogen om zichzelf voortdurend te vernieuwen en de hersen homologie met mensen te sluiten14,15.
Zebravis wordt het meest gebruikt om ongeordende bewegingen bij PD16 te bestuderen. Het op zebravissen gebaseerde PD-model wordt meestal geïnduceerd door neurotoxinen, waaronder 1-methyl-4-fenyl-1,2,3,6-tetrahydropyridine (MPTP) en 6-hydroxydopamine (6-OHDA)17. Hoewel effectief in het induceren van specifiek verlies van DpN en afname van dopamineniveaus, bootsen MPTP-gebaseerde modellen de omstandigheden van PD niet nauw na, omdat het DpN-verlies niet alleen beperkt is tot het CZS18. Het onvermogen van 6-OHDA om de bloed-hersenbarrière te passeren beperkte de effecten ervan op cellulaire en functionele veranderingen in de hersenen wanneer het intracranieel wordt toegediend in tegenstelling tot intramusculair19. Perifere toediening van 6-OHDA veroorzaakte een wereldwijde verlaging van dopamineniveaus in het hele zenuwstelsel20. Terwijl toediening van 6-OHDA in het hersenvocht ablatie van DpN in het hele CZS21 veroorzaakte, wat niet de aandoening nabootst zoals gezien bij PD waarbij het verlies van DpN specifiek optreedt bij de substantia nigra van het menselijk brein. ICV-toediening van 6-OHDA daarentegen induceerde specifiek significante ablatie van DpN op het gebied van ventrale Dn in het zebravisbrein, dat sterk leek op substantia nigra22. Interessant is dat herstel van DpN 30 dagen na 6-OHDA-geïnduceerde laesie werd gemeld en deze neuronen overleefden in de loop van het leven23,24. Het functionele herstel van DpN werd aangetoond door middel van een locomotorische beoordeling van de afgelegde afstand (cm) en de gemiddelde snelheid (cm / s) met behulp van het 6-OHDA-geïnduceerde pd-model voor volwassenen op basis van zebravissen22.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
De huidige studie is goedgekeurd door de Commissie dieronderzoek en ethiek (CARE), Universiti Technologi MARA (UiTM) [Referentienummer: UiTM CARE 346/2021, d.d. 7 mei 2021].
OPMERKING: De gepubliceerde protocollen22,25,26 voor standaard houderij en onderhoud van het 6-OHDA-laesie volwassen zebravis PD-model werden gebruikt. Experimenten werden uitgevoerd met volwassen mannelijke zebravissen (Danio rerio) van meer dan vijf maanden oud met een gestandaardiseerde lengte van 3,2-3,7 cm.
1. Zebravisonderhoud en preparaten voor micro-injectie vóór ICV
- Bewaar de vis in een belucht waterreservoir onder een gecontroleerde temperatuur van 28 ± 1,0 °C. Gebruik voor het houden en onderhouden van zebravissen gedestilleerd water gemineraliseerd met commercieel zeezout (1 g / L) gedurende het hele experiment27.
- Huisvest maximaal 25 vissen per 45 L tank of één vis per 1,8 L water en stel ze bloot aan een schema van 14 uur licht en 10 uur donkere fotoperiode. Voer de vis minstens twee keer per dag met voedselkorrels aangevuld met gevriesdroogde wormen.
- Bereid een geconcentreerde stamoplossing van tricaine methaansulfonaat (MS-222) door 2,5 g MS-222 en 5 g natriumbicarbonaat op te lossen in 250 ml gedestilleerd water. Verdun 2 ml stockoplossing om 200 ml werkende anesthesieoplossing te produceren.
- Bereid 99,96 mM 6-OHDA door eerst 0,2 mg ascorbinezuur op te lossen in 1 ml van 0,9% w/v steriel gefilterde NaCl. Filtreer de oplossing met een filter van 0,2 micron voordat u 25 mg 6-OHDA in poedervorm aan de oplossing toevoegt. Bereid de oplossing vers voor elke injectie en bewaar deze in het donker bij 4 °C.
LET OP: Draag geschikte persoonlijke beschermingsmiddelen (d.w.z. handschoenen, laboratoriumjas en gezichtsmasker) en beoefen goede laboratoriumpraktijken bij het hanteren van de chemicaliën. Alle handelingen van de chemicaliën moeten worden gedaan in een bioveiligheidskast.
2. Verdoving en ICV-injectie van zebravissen
- Vast de vis gedurende 24 uur om regurgitatie tijdens de anesthesie te voorkomen. Verdoof de vis door hem gedurende ongeveer 1 minuut onder te dompelen in een container met 0,01% w/v MS-222-oplossing of totdat alle zichtbare spierbewegingen ophouden.
- Plaats de verdoofde vis op een met water doordrenkte spons die onder een stereomicroscoop is geplaatst en maak de vis regelmatig nat.
- Identificeer de positie voor injectie op basis van de kruising tussen de metopische hechting (MS), coronale hechting (CS) en sagittale hechting (SS) die de frontale en pariëtale schedel van de hersenen van de zebravis verbindt.
- Maak een klein gaatje van 1,0 mm2 met een scherpe naald van 27 G in de schedel, geleid door de specifieke anatomische positie op de schedel van de zebravis (figuur 1A,B).
- Laat de microcapillaire injector in een hoek van 60° zakken totdat deze een diepte van 1.200 μm bereikt vanaf het schedeldak van de zebravis (figuur 1C). Druk op de Z-limiet om de positie vast te stellen.
- Stel de initiële injectiedruk in op 4000 hPa en de compensatiedruk op 10 hPa. Stel de duur van de injectie in op 0,3 s. Verlaag de intensiteit van de injectie bij elke volgende injectie.
- Injecteer 0,5 μL van 99,96 mM neurotoxine 6-OHDA (of 0,9% w/v zoutoplossing voor schijncontrolegroep) en laat het microcapillair 20 s rusten. Blijf de vis nat maken met gedestilleerd water tijdens het injectieproces om uitdroging te voorkomen.
- Verwijder langzaam het microcapillair en reanimeer de vis onder stromend gedestilleerd water. Plaats de vis in een geïsoleerd herstelvat en verwijder alle afleidingen die het herstelproces mogelijk kunnen verstoren.
- Spoel het microcapillair voor de volgende injectie om de verstopping op te ruimen en ervoor te zorgen dat de intensiteit van de injectie voldoende is om het gewenste volume van 0,5 μL 6-OHDA op te leveren.
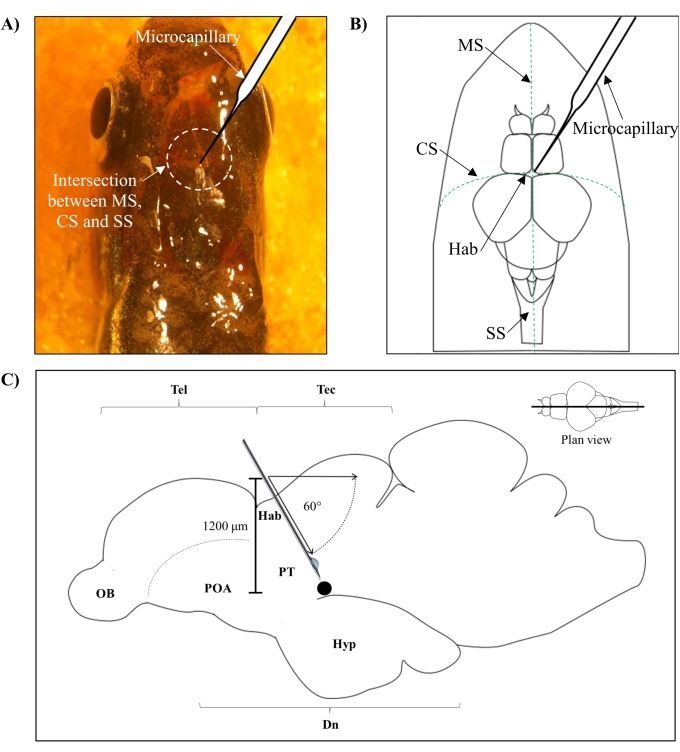
Figuur 1: Injectieplaats van neurotoxine, 6-OHDA. (A) Het punt van microcapillaire binnenkomst wordt geleid door de kruising tussen de metopische hechting (MS), coronale hechting (CS) en sagittale hechting (SS) die de frontale en pariëtale schedel van het zebravisbrein verbindt (planweergave). (B) Een schematische tekening (planweergave) van de schedel en hersenen van de zebravis toont het microcapillair, dat direct boven de habenula (Hab) is neergelaten, en het punt van binnenkomst op het kruispunt tussen hemisferen. (C) Een schematische tekening (sagittale sectie) van het brein van de zebravis toont de injectiehoek en de diepte van de penetratie. De zwarte stip vertegenwoordigt de laesieplaats die zich boven het doelgebied bevindt, het ventrale diencephalon. Afkortingen: 6-OHDA: 6-hydroxydopamine, CS: coronale hechting, Dn: diencephalon, Hab: habenula, Hyp: hypothalamus, MS: metopische hechting, OB: olfactorische bol, POA: preoptisch gebied, PT: posterieur tuberculum, SS: sagittale hechting, Tec: tectum en Tel: telencephalon. Klik hier om een grotere versie van deze figuur te bekijken.
3. Motorische beoordeling
OPMERKING: Locomotorische beoordeling van zebravissen (n = zes / groep; schijn versus laesie) werd individueel beoordeeld via de open tanktest met behulp van vastgestelde protocollen28,29 op dag drie en dag 30 na 6-OHDA-laesie.
- Video-opname
- Plaats de experimentele tank (lengte 20 cm, breedte 11,5 cm, hoogte 13 cm) met de wanden bedekt met wit papier op een verhoogd platform (figuur 2A).
- Verlicht de tank vanaf de bodem met behulp van een lichtbron. Vul de tank met gedestilleerd water (80% -90% vol) en houd de temperatuur op 28 ± 1,0 °C. Meet de temperatuur met een thermometer en regel deze met behulp van een commerciële aquariumverwarmer.
- Na minimaal 2 minuten acclimatisatie, registreer het zwemgedrag van de vis vanuit een planweergave op het 2-dimensionale (2D) vlak van de experimentele arena met behulp van een videocamera gedurende 5 minuten (figuur 2B). Om inconsistentie in het zwemgedrag van de eerdere en de laatste batch opnames te voorkomen, overschrijdt u de acclimatisatie niet met 10 min30.
- Analyseer de video's met behulp van videotrackingsoftware met het open-tankprotocol voor het verkrijgen van de afgelegde afstand (cm) en de gemiddelde snelheid (cm / s) van elk onderwerp.
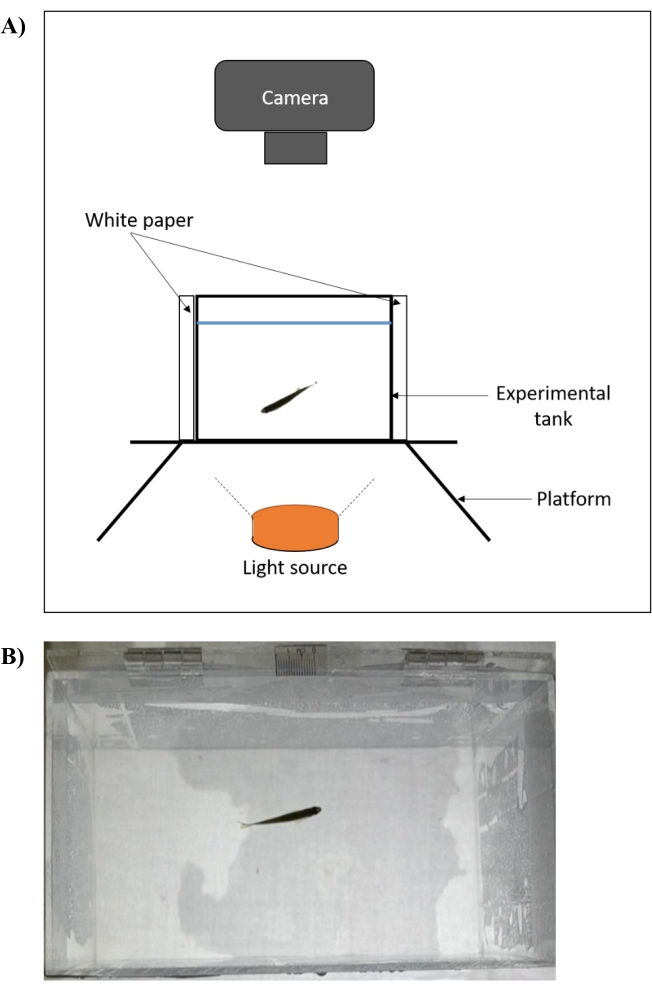
Figuur 2: Experimentele opstelling van een open tanktest voor de beoordeling van het bewegingsgedrag van zebravissen. (A) De experimentele tank (vooraanzicht) wordt op een verhoogd platform geplaatst dat van onderaf wordt verlicht. De vier wanden van de tank zijn bedekt met wit papier en de opnames worden axiaal vastgelegd. De temperatuur wordt gemeten met behulp van een thermometer en geregeld op 28 ± 1,0 °C met behulp van een commerciële aquariumverwarming. (B) Screenshot (planweergave) van video-opname die is vastgelegd met behulp van de installatie. Klik hier om een grotere versie van deze figuur te bekijken.
- Data-analyse
- Dubbelklik op het pictogram om de videotrackingsoftware te openen. Klik op het tabblad Bestand en selecteer Nieuw leeg experiment maken. Hierdoor kan de gebruiker de experimentparameters aanpassen aan de doelstellingen van het onderzoek.
- Klik op het tabblad Protocol , selecteer Videobronnen en klik op Nieuwe videobron toevoegen. Klik op de beschikbare vervolgkeuzelijst en selecteer de optie Videobestand . Dit zal de pop-up voor het bladeren door bestanden vragen waaruit de video-opnamen van belang kunnen worden geselecteerd.
- Klik op het subtabblad Apparaat en selecteer het rechthoekige pictogram om het apparaat in te stellen. Sleep het rechthoekige pictogram om de hele experimentele arena te bedekken. Stel de schaalbalk dienovereenkomstig in en voer de numerieke waarde in van de schaalmeting die wordt gebruikt in de lengte van de liniaalsectie. Het huidige experiment gebruikte een schaal van 10 mm voor de open tanktest.
- Stel de kleur van het dier in door De dieren zijn donkerder dan de achtergrond van het apparaat te selecteren. Laat de andere beschikbare opties in Bijhouden over aan de vooraf ingestelde standaardinstellingen.
- Klik in het subtabblad Zones op het eerder getekende apparaat. Deze zone is ingesteld als de standaardzone waarvan de positie voor alle tests hetzelfde is.
- Selecteer de volgende opties onder testplanning en testgegevensrapport: Testduur, Totale afgelegde afstand en Gemiddelde snelheid. Andere beschikbare tests op de lijst zijn optioneel en afhankelijk van de onderzoeksinteresse van de onderzoeker.
- Wijs de dieren op het tabblad Experiment toe op basis van hun testgroep door de groepsnaam in de sectie Naam en het aantal dieren per groep in de sectie Aantal dieren in te voeren.
- Schakel over naar het tabblad Tests om het experiment uit te voeren. Klik op het pictogram Start test en wacht tot alle video's zijn geanalyseerd.
- Klik op het tabblad Resultaten op het pictogram Het rapport weergeven om de locomotorgegevens in het tekstrapportformulier weer te geven.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Het huidige experiment beoordeelde de veranderingen in het zwemgedrag van volwassen zebravissen na ICV-micro-injectie met 6-OHDA. De reden voor het gebruik van 6-OHDA als het neurotoxine van keuze was te wijten aan het onvermogen om de bloed-hersenbarrière te passeren, die specifieke en gerichte ablatie van DpN produceerde op het gebied van interest-ventral diencephalon (Dn)16. De DpN-subpopulatie hier vertoont anatomische gelijkenis met de DpN-subpopulatie in de substantia nigra pars
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Het huidige werk demonstreerde met succes de locomotorische beoordeling van het gevestigde 6-OHDA-geïnduceerde, op volwassen zebravissen gebaseerde PD-model. Het hele experiment omvatte drie belangrijke stappen: pre-ICV micro-injectiepreparaten, ICV-micro-injectie van zebravissen en locomotorische beoordeling. Om het gezonde herstel van volwassen zebravissen na de ICV-micro-injectieprocedure en een goed experimenteel resultaat te garanderen, zijn in deze studie enkele goede praktijken voor elke stap aanbevolen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren geen belangenconflicten te hebben.
Dankbetuigingen
Dit werk werd ondersteund door het Ministerie van Hoger Onderwijs Maleisië in het kader van de Fundamental Research Grant Scheme [600-IRMI/FRGS 5/3 (033/2019)].
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Materials | |||
| 6-Hydroxydopamine (6-OHDA) | Sigma-Aldrich, Missouri, USA | 162957 | |
| Ascorbic acid | Thermo Fisher Scientific, California, USA | FKC#A/8882/53 | |
| Disposable pasteur pipette, 3 mL | Thermo Fisher Scientific, California, USA | FB55348 | |
| Microcentrifuge tube, 0.2 mL | Eppendorf, Hamburg, Germany | 30124332 | |
| Nice conical flask, 100 mL | Evergreen Engineering & Resources, Semenyih, Malaysia | SumYau0200 | |
| Phosphate buffered saline (PBS) | Sigma-Aldrich, Missouri, USA | P4417 | |
| Sodium bicarbonate | Sigma-Aldrich, Missouri, USA | S5761 | |
| Sodium chloride | Merck, Darmstadt, Germany | 106404 | |
| Stereomicroscope | Nikon, Tokyo, Japan | SMZ745 | |
| Tricaine methanesulfonate (MS-222) | Sigma-Aldrich, Missouri, USA | E10521 | |
| Equipment | |||
| ANY-maze software | Stoelting Co., Illinois, USA | - | versie 7.0; video tracking software |
| Cubis II Micro Lab Balance | Sartorius, Göttingen, Germany | SE 2 | |
| FemtoJet IV microinjector | Eppendorf, Hamburg, Germany | 5192000035 | |
| Femtotip II, sterile injection capillary | Eppendorf, Hamburg, Germany | 5242957000 | |
| InjectMan 4 micromanipulator | Eppendorf, Hamburg, Germany | 5192000027 | |
| LED Portable Lamp | MR. DIY, Selangor, Malaysia | 9023251 | 20 mAh |
| PELCO Pro Superalloy, offset, fine tips | Ted Pella, California, USA | 5367-12NM | |
| Shanda aquarium heater | Yek Fong Aquarium, Selangor, Malaysia | SDH-228 | |
| Thermometer | Sera Precision, Heinsberg, Germany | 52525 | |
| Video camera | Nikon, Tokyo, Japan | D3100 |
Referenties
- Dorsey, E. R., et al. regional, and national burden of Parkinson's disease, 1990-2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurology. 17 (11), 939-953 (2018).
- Maserejian, N., Vinikoor-Imler, L., Dilley, L. Estimation of the 2020 global population of Parkinson's Disease (PD). Movement Disorder Council. 35 (1), 198(2020).
- Hirsch, L., Jette, N., Frolkis, A., Steeves, T., Pringsheim, T. The Incidence of Parkinson's Disease: A Systematic Review and Meta-Analysis. Neuroepidemiology. 46 (4), 292-300 (2016).
- Przedborski, S. The two-century journey of Parkinson disease research. Nature Review Neuroscience. 18 (4), 251-259 (2017).
- Cookson, M. R. Disease-Modifying Targets in Neurodegenerative Disorders. , Academic Press. Ch. 6 157-174 (2017).
- Jamebozorgi, K., et al. Cellular and molecular aspects of Parkinson treatment: Future therapeutic perspectives. Molecular Neurobiology. 56 (7), 1-13 (2018).
- Parmar, M., Grealish, S., Henchcliffe, C. The future of stem cell therapies for Parkinson disease. Nature Review Neuroscience. 21 (1), 1-13 (2020).
- Foltynie, T. Can Parkinson's disease be cured by stimulating neurogenesis. Journal of Clinical Investigation. 125 (3), 978-980 (2015).
- Winner, B., Winkler, J. Adult neurogenesis in neurodegenerative diseases. Cold Spring Harbour Perspect Biology. 7 (4), 021287(2015).
- Huang, C., et al. Nerve guidance conduits from aligned nanofibers: improvement of nerve regeneration through longitudinal nanogrooves on a fiber surface. ACS Applied Materials & Interfaces. 7 (13), 7189-7196 (2015).
- Alunni, A., Bally-Cuif, L. A comparative view of regenerative neurogenesis in vertebrates. Development. 143 (5), 741-753 (2016).
- Dietz, V., Schwab, M. E. From the rodent spinal cord injury model to human application: promises and challenges. Journal of Neurotrauma. 34 (9), 1826-1830 (2017).
- La Rosa, C., Bonfanti, L. Brain plasticity in mammals: An example for the role of comparative medicine in the neurosciences. Frontiers in Veterinary Science. 5 (274), 1-8 (2018).
- Ferretti, P., Prasongchean, W. Neural Stem Cells in Development, Adulthood and Disease. , Springer. 1-21 (2015).
- Vijayanathan, Y., et al. Adult endogenous dopaminergic neuroregeneration against Parkinson's Disease: Ideal animal models. Neurotoxicity Research. 39 (2), 504-532 (2021).
- Vaz, R. L., Outeiro, T. F., Ferreira, J. J. Zebrafish as an animal model for drug discovery in Parkinson's disease and other movement disorders: a systematic review. Frontier Neuroscience. 9, 347(2018).
- Nie, S., et al. Small molecule TrkB agonist deoxygedunin protects nigrostriatal dopaminergic neurons from 6-OHDA and MPTP induced neurotoxicity in rodents. Neuropharmacology. 99, 448-458 (2015).
- Schober, A. Classic toxin-induced animal models of Parkinson's disease: 6-OHDA and MPTP. Cell Tissue Research. 318 (1), 215-224 (2004).
- Betarbet, R., Sherer, T. B., Greenamyre, J. T. Animal models of Parkinson's disease. Bioessays. 24 (4), 308-318 (2002).
- Anichtchik, O. V., Kaslin, J., Peitsaro, N., Scheinin, M., Panula, P. Neurochemical and behavioural changes in zebrafish Danio rerio after systemic administration of 6-hydroxydopamine and 1-methyl-4-phenyl-1,2,3,6-tetrahydropyridine. Journal of Neurochemistry. 88 (2), 443-453 (2004).
- Fiametti, L. O., Correa, C. N., Castro, L. M. d Peptide profile of zebrafish brain in a 6-OHDA-induced Parkinson model. Zebrafish. 18 (1), 55-65 (2021).
- Vijayanathan, Y., et al. 6-OHDA-lesioned adult zebrafish as a useful Parkinson's disease model for dopaminergic neuroregeneration. Neurotoxicity Research. 32 (3), 496-508 (2017).
- Caldwell, L. J., et al. Regeneration of dopaminergic neurons in adult zebrafish depends on immune system activation and differs for distinct populations. Journal of Neuroscience. 39 (24), 4694-4713 (2019).
- Zupanc, G. K., Hinsch, K., Gage, F. H. Proliferation, migration, neuronal differentiation, and long-term survival of new cells in the adult zebrafish brain. Journal of Comparative Neurology. 488 (3), 290-319 (2005).
- Lawrence, C. The husbandry of zebrafish (Danio rerio): a review. Aquaculture Research. 269 (1-4), 1-20 (2007).
- Reed, B., Jennings, M. Guidance on the Housing and Care of Zebrafish Danio rerio. Royal Society for the Prevention of Cruelty to Animals (RSPCA). , 7-53 (2011).
- Avdesh, A., et al. Regular care and maintenance of a zebrafish (Danio rerio) laboratory: an introduction. Journal of Visualized Experiments: JoVE. (69), e4196(2012).
- Altenhofen, S., et al. Tebuconazole alters morphological, behavioral and neurochemical parameters in larvae and adult zebrafish (Danio rerio). Chemosphere. 180, 483-490 (2017).
- Bridi, D., Altenhofen, S., Gonzalez, J. B., Reolon, G. K., Bonan, C. D. Glyphosate and Roundup alter morphology and behavior in zebrafish. Toxicology. 392, 32-39 (2017).
- Wright, D., Krause, J. Repeated measures of shoaling tendency in zebrafish (Danio rerio) and other small teleost fishes. Nature Protocols. 1 (4), 1828-1831 (2006).
- Pienaar, I. S., Götz, J., Feany, M. B. Parkinson's disease: insights from non-traditional model organisms. Progress in Neurobiology. 92 (4), 558-571 (2010).
- Becker, T., Becker, C. G. Axonal regeneration in zebrafish. Current Opinion in Neurobiology. 27, 186-191 (2014).
- Collymore, C., Tolwani, A., Lieggi, C., Rasmussen, S. Efficacy and safety of 5 anesthetics in adult zebrafish (Danio rerio). Journal of the American Association for Laboratory Animal Science. 53 (2), 198-203 (2014).
- Katz, E. M., et al. The stability and efficacy of tricaine methanesulfonate (MS222) solution after long-term storage. Journal of the American Association for Laboratory Animal Science. 59 (4), 393-400 (2020).
- Thiele, S. L., Warre, R., Nash, J. E. Development of a unilaterally-lesioned 6-OHDA mouse model of Parkinson's disease. Journal of Visualized Experiments: JoVE. (60), e3234(2012).
- Neiffer, D. L., Stamper, M. A. Fish sedation, analgesia, anesthesia, and euthanasia: considerations, methods, and types of drugs. Institute for Laboratory Animal Research. 50 (4), 343-360 (2009).
- Barbosa Júnior, A., et al. Zebrafish Protocols for Neurobehavioral Research. 66, Springer. 323-330 (2012).
- Cocchiaro, J. L., Rawls, J. F. Microgavage of zebrafish larvae. Journal of Visualized Experiments: JoVE. (72), e4434(2013).
- Stewart, A., et al. Modeling anxiety using adult zebrafish: a conceptual review. Neuropharmacology. 62 (1), 135-143 (2012).
- Sykes, D. J., Suriyampola, P. S., Martins, E. P. Recent experience impacts social behavior in a novel context by adult zebrafish (Danio rerio). PLOS ONE. 13 (10), 0204994(2018).
- Collymore, C., Tolwani, R. J., Rasmussen, S. The behavioral effects of single housing and environmental enrichment on adult zebrafish (Danio rerio). Journal of the American Association for Laboratory Animal Science. 54 (3), 280-285 (2015).
- Grossman, L., et al. Characterization of behavioral and endocrine effects of LSD on zebrafish. Behavioural Brain Research. 214 (2), 277-284 (2010).
- Stewart, A., et al. Homebase behavior of zebrafish in novelty-based paradigms. Behavioural Processes. 85 (2), 198-203 (2010).
- Abozaid, A., Tsang, B., Gerlai, R. The effects of small but abrupt change in temperature on the behavior of larval zebrafish. Physiology and Behavior. 227, 113169(2020).
- Sekhar, M., Singh, R., Bhat, A., Jain, M. Feeding in murky waters: acclimatization and landmarks improve foraging efficiency of zebrafish (Danio rerio) in turbid waters. Biology Letters. 15 (7), 1-5 (2019).
- Valcarce, D. G., Martínez-Vázquez, J. M., Riesco, M. F., Robles, V. Probiotics reduce anxiety-related behavior in zebrafish. Heliyon. 6 (5), 03973(2020).
- Tunbak, H., Vazquez-Prada, M., Ryan, T. M., Kampff, A. R., Dreosti, E. Whole-brain mapping of socially isolated zebrafish reveals that lonely fish are not loners. eLife. 9, 55863(2020).
- Shams, S., Seguin, D., Facciol, A., Chatterjee, D., Gerlai, R. Effect of social isolation on anxiety-related behaviors, cortisol, and monoamines in adult zebrafish. Behavioral Neuroscience. 131 (6), 492-504 (2017).
- Burghardt, G. M., et al. Perspectives - Minimizing observer bias in behavioral studies: A review and recommendations. Ethology. 118 (6), 511-517 (2012).
- Kalueff, A. V., et al. Towards a comprehensive catalog of zebrafish behavior 1.0 and beyond. Zebrafish. 10 (1), 70-86 (2013).
- Franco-Restrepo, J. E., Forero, D. A., Vargas, R. A. A review of freely available, open-source software for the automated analysis of the behavior of adult zebrafish. Zebrafish. 16 (3), 223-232 (2019).
- Beal, M. F. Parkinson's disease: a model dilemma. Nature. 466 (7310), 8-10 (2010).
- Jha, U., Thirumalai, V. Neuromodulatory selection of motor neuron recruitment patterns in a visuomotor behavior increases speed. Current Biology. 30 (5), 788-801 (2020).
- Reimer, M. M., et al. Dopamine from the brain promotes spinal motor neuron generation during development and adult regeneration. Developmental Cell. 25 (5), 478-491 (2013).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
