Dit protocol beschrijft de workflow voor metabole etikettering van senescente en niet-delende cellen met gepulste SILAC, ongerichte massaspectrometrie-analyse en een gestroomlijnde berekening van eiwithalfwaardetijden.
Methodenartikel
Meting van eiwitomloopsnelheden in senescente en niet-delende gekweekte cellen met metabole etikettering en massaspectrometrie
In dit artikel
Samenvatting
Samenvatting
Steeds meer bewijs heeft aangetoond dat de accumulatie van senescente cellen in het centrale zenuwstelsel bijdraagt aan neurodegeneratieve aandoeningen zoals de ziekte van Alzheimer en Parkinson. Cellulaire senescentie is een toestand van permanente celcyclusstilstand die meestal optreedt als reactie op blootstelling aan subletale stress. Net als andere niet-delende cellen blijven senescente cellen echter metabolisch actief en voeren ze vele functies uit die unieke transcriptionele en translationele eisen en wijdverspreide veranderingen in de intracellulaire en uitgescheiden proteomen vereisen. Begrijpen hoe eiwitsynthese en vervalsnelheden veranderen tijdens senescentie kan de onderliggende mechanismen van cellulaire senescentie verlichten en potentiële therapeutische wegen vinden voor ziekten die worden verergerd door senescente cellen. Dit artikel beschrijft een methode voor proteoomschaalevaluatie van eiwithalfwaardetijden in niet-delende cellen met behulp van gepulseerde stabiele isotoopetikettering door aminozuren in celkweek (pSILAC) in combinatie met massaspectrometrie. pSILAC omvat metabole etikettering van cellen met stabiele zware isotoopbevattende versies van aminozuren. In combinatie met moderne massaspectrometriebenaderingen maakt pSILAC het mogelijk om de eiwitomzet van honderden of duizenden eiwitten in complexe mengsels te meten. Na metabole etikettering kan de omzetdynamiek van eiwitten worden bepaald op basis van de relatieve verrijking van zware isotopen in peptiden gedetecteerd door massaspectrometrie. In dit protocol wordt een workflow beschreven voor het genereren van senescente fibroblastculturen en op dezelfde manier gearresteerde rustige fibroblasten, evenals een vereenvoudigd, single-time point pSILAC-etiketteringstijdsverloop dat de dekking van verwachte eiwitomloopsnelheden maximaliseert. Verder wordt een pijplijn gepresenteerd voor de analyse van pSILAC-massaspectrometriegegevens en gebruiksvriendelijke berekening van eiwitafbraaksnelheden met behulp van spreadsheets. De toepassing van dit protocol kan worden uitgebreid van senescente cellen naar niet-delende gekweekte cellen zoals neuronen.
Inleiding
Senescentie werd voor het eerst geïdentificeerd als een toestand van onbepaalde groeistop die werd vertoond door gekweekte primaire cellen na het bereiken van replicerende uitputting1. Sindsdien is aangetoond dat senescentie kan optreden als reactie op tal van cellulaire beledigingen, waaronder genotoxische, mitochondriale en oncogene stress, onder andere2. Hoewel senescentie verschillende fysiologisch belangrijke rollen heeft, zoals tumoronderdrukking en wondgenezing, wordt de accumulatie van senescente cellen tijdens veroudering geassocieerd met een groot aantal schadelijke effecten op de gezondheid3, waaronder verschillende neurodegeneratieve aandoeningen 4,5,6. Cellulaire senescentie komt voor in meerdere hersenceltypen, waaronder neuronen 7,8,9,10, astrocyten11, microglia12 en oligodendrocytenvoorlopers13, en draagt bij aan neurodegeneratie en cognitieve disfunctie. Van amyloïde bèta-oligomeren, een van de kenmerken van de ziekte van Alzheimer14, is aangetoond dat ze neuronale senescentieversnellen 13,15,16. Een verhoogde prevalentie van senescente cellen is ook in verband gebracht met de ziekte van Parkinson17, vooral als gevolg van omgevingsstressoren11,18. Belangrijk is dat de selectieve eliminatie van senescente cellen in preklinische modellen de levensduur verlengt en een groot aantal leeftijdsgerelateerde ziekten vermindert 3,5,12 en cognitieve tekorten verbetert 8,11,12,13. Senescente cellen zijn dus naar voren gekomen als veelbelovende therapeutische doelen voor de behandeling van vele leeftijdsgerelateerde aandoeningen.
Veel van het schadelijke effect van senescente cellen wordt veroorzaakt door het senescentie-geassocieerde secretoire fenotype (SASP), een complex mengsel van bioactieve moleculen uitgescheiden door senescente cellen die lokale ontsteking, angiogenese, vernietiging van de extracellulaire matrix en voortplanting van senescentie in het omliggende weefsel kunnen veroorzaken 19,20,21 . De SASP vertegenwoordigt ook een interessant biologisch fenomeen van senescentie omdat het een aanzienlijke transcriptionele en translationele inspanning vereist tijdens een toestand van celcyclusstilstand. In feite is aangetoond dat senescente cellen een afname vertonen in ribosoombiogenese 22,23,24 die de eiwitsynthese zou moeten verminderen. In plaats daarvan vertalen senescente cellen robuust sommige eiwitten, met name SASP-factoren, en beïnvloeden ze het metabolisme van het omliggende weefsel25. Er is dus veel interesse om te begrijpen hoe senescente cellen die een permanente celcyclusstilstand ondergaan, de eiwithomeostase blijven behouden en tegelijkertijd SASP-factoren en andere geselecteerde eiwitten robuust tot expressie brengen.
Deze methode beschrijft hoe massaspectrometrie en gepulseerde stabiele isotoopetikettering door aminozuren in celkweek (pSILAC) kunnen worden gebruikt om wereldwijd de halfwaardetijden van eiwitten in senescente cellen op proteoombrede schaal te meten. In traditionele SILAC worden gekweekte cellen volledig metabolisch gelabeld met zware en lichte niet-radioactieve isotopen van aminozuren voor downstream-analyse van eiwitrijkdom. Deze methode is eerder toegepast om abundantieveranderingen uitgebreid en kwantitatief te beoordelen in de SASP van gekweekte fibroblasten26. In pSILAC worden cellen op dezelfde manier metabolisch gelabeld met een puls van zware isotoop die pre-labeling met lichte isotoop volgt en vervolgens met een of meer tijdsintervallen wordt geoogst. De opnamesnelheden van zware isotoop ten opzichte van reeds bestaande lichte isotoop worden vervolgens gebruikt om relatieve eiwitomloopsnelheden te berekenen. Over het algemeen worden isotopen van arginine en lysine gebruikt omdat trypsine bij die residuen splijt; dus alle peptiden uit de standaardvertering zullen mogelijk het zware label bevatten. Paren van peptiden die alleen verschillen door de aan- of afwezigheid van zware lysine of arginine zijn chemisch identiek en kunnen worden gedifferentieerd en gekwantificeerd door een massaspectrometer. Na massaspectrometrie-analyse kunnen peptiden worden geïdentificeerd als nieuw gesynthetiseerd of reeds bestaand op basis van de aan- of afwezigheid van het isotopische label in de resulterende peptide-identificaties. Eiwitomloopsnelheden kunnen vervolgens worden bepaald door de verhouding van zware (13 C-15N) over lichte (12 C-14N) peptiden voor een bepaald eiwit aan te passen aan kinetische modellen voor exponentiële groei of verval27,28. pSILAC is gebruikt in verschillende vergelijkingen van eiwitomloopsnelheden 29,30,31,32 en is momenteel de meest uitgebreide en high-throughput methode voor het meten van eiwithalfwaardetijden.
Dit protocol beschrijft de bereiding van senescente cellen parallel aan vergelijkbare groei-gestremde rustige cellen in cultuur, gevolgd door metabole etikettering met pSILAC. Cellen worden vervolgens geoogst, gehomogeniseerd tot lysaten en verwerkt voor massaspectrometrie-acquisitie en -analyse. De gegevens verkregen uit massaspectrometrie worden vervolgens gebruikt om eiwithalfwaardetijden te bepalen met behulp van een vereenvoudigde kwantitatieve methode met behulp van een enkel tijdspunt en halfwaardetijdberekeningen die in een spreadsheet worden uitgevoerd. Met behulp van deze benadering kunnen schattingen van eiwithalfwaardetijden worden gemeten op een uitgebreide en kwantitatieve manier die authentieker is voor onverstoorbare cellulaire omstandigheden dan protocollen die blokkers van eiwitsynthese of omzet gebruiken.
Protocol
1. Bereiding van rustcellen en cellen die senescent zijn geworden door blootstelling aan ioniserende straling (IR)
OPMERKING: Cellulaire senescentie en rust kunnen worden geïnduceerd met behulp van meerdere methoden, zoals elders in detail beschreven 33,34,35. De stimuli die worden gebruikt om senescentie en rust te induceren, kunnen afhankelijk zijn van het celtype en de biologische vraag die wordt onderzocht. De cellen die in deze studie worden gebruikt, zijn in de handel verkrijgbaar.
- Ontdooi humane diploïde IMR-90 fibroblasten (~ 1 x 10⁶ cellen) uit een cryoviaal en plaats ze in 20 ml DMEM aangevuld met 10% foetaal runderserum (FBS) (tabel 1) op een plaat van 150 mm.
- Kweek de cellen onder fysiologische zuurstofcondities (3% O2, 5% CO2, 37 °C) en zet de culturen uit in 10% FBS-bevattende media totdat voldoende replicerende en senescente cellen zijn vastgesteld (ten minste 3-5 replicaties worden aanbevolen per aandoening).
OPMERKING: Het kweken van cellen met fysiologische (3%) zuurstof is ideaal voor primaire menselijke fibroblastcellen, maar geschikte kweekomstandigheden voor andere celtypen kunnen variëren en moeten van geval tot geval worden bepaald. - Genereer senescente cellen door prolifererende cellen bloot te stellen aan 15 grijze (Gy) ioniserende straling (IR).
OPMERKING: De intensiteit van de blootstelling aan straling kan variëren afhankelijk van het celtype. Terwijl 15 Gy hier wordt gebruikt, is 10 Gy ook een veelgebruikte stralingsdosis voor fibroblasten; andere cellen, zoals monocyten, kunnen een dosis van slechts 5 Gy vereisen. De dosis wordt over het algemeen empirisch bepaald door de levensvatbaarheid af te wegen tegen senescentie-inductie.- Stel de cellen bloot bij 40%-60% samenvloeiing met IR in media die 10% FBS bevatten.
- Schakel na IR-blootstelling over op verse media met 10% FBS.
- Ververs media (20 ml, met 10% FBS) om de 2 dagen gedurende 8 dagen.
OPMERKING: Cellen worden blootgesteld aan IR bij lagere confluentie omdat ir-behandelde cellen zich in cultuur zullen uitbreiden voordat ze stoppen met groeien. In dit experiment waren cellen geen gesplitste cellen tijdens de vestiging van senescentie, en hoewel ze meer confluent werden, vertoonden ze nog steeds senescente celmarkers bij de oogst. In fibroblasten ontwikkelt het senescente fenotype zich binnen 7-10 dagen.
- Genereer rustige controlecellen door de media op vergulde prolifererende cellen te veranderen in media met 0,2% FBS (serumhonger) (tabel 1).
- Doorgaan met het kweken van cellen die zullen worden gebruikt voor de rustcontrole in media die 10% FBS bevatten tot dag 4 nadat senescente cellen zijn blootgesteld aan IR, splitsen indien nodig.
- Verander op dag 4 na IR de media van rustige cellen in 20 ml media met 0,2% FBS (tabel 1) en blijf nog 6 dagen groeien, waarbij de media om de 2 dagen worden vervangen.
OPMERKING: Zelfs in media die 0,2% FBS bevatten, zullen fibroblasten enigszins blijven groeien en kunnen ze tegen het einde van de oogst confluent lijken. Als vuistregel, probeer rustige cellen te verzamelen wanneer ze een samenvloeiing hebben bereikt die vergelijkbaar is met die van de senescente celculturen.
2. Etikettering van cellen voor gepulste SILAC en oogst van lysaten
- Verander de media op zowel senescente als rustige cellen (12 platen) in SILAC Light (tabel 1) en groei gedurende 2 dagen.
OPMERKING: Deze etikettering helpt achtergrondgeluid te verminderen, omdat er een lage natuurlijke abundantie is van 13C en 15N. Deze stap kan worden overgeslagen in reagensbeperkende omstandigheden, maar zal resulteren in een lichte overschatting van nieuwe eiwitsynthese. - Vervang media door SILAC DMEM (tabel 1) voor metabole etikettering.
OPMERKING: SILAC DMEM media zijn speciaal geformuleerd om zuiver lichte of zware isotopen van arginine en lysine te bevatten voor metabole etikettering. Zij mogen niet worden vervangen door standaard DMEM-formuleringen in substappen 2.2.1 of 2.2.2.- Vervang voor drie senescente en drie rustige platen de media door 30 ml SILAC Light (tabel 1) en laat gedurende 3 dagen groeien zonder de media te veranderen.
- Vervang voor minimaal drie senescente en drie rustige platen de media door 30 ml SILAC Heavy (tabel 1) en laat gedurende 3 dagen groeien zonder de media te veranderen.
OPMERKING: Er is op dit moment een optie om onmiddellijk te oogsten wat de lichtgelabelde cellen zullen zijn, in plaats van ze nog eens 3 dagen te labelen. Voor een enkel tijdstip verdient het de voorkeur om zware en licht gelabelde cellen te labelen voor dezelfde periode als in dit protocol wordt gedaan om batcheffecten te minimaliseren.
- Maak de cellen los van kweekplaten door 5 ml voorverwarmd trypsinereagens aan elke schaal toe te voegen en gedurende 5 minuten bij 37 °C te broeden.
- Resuspend de losgemaakte cellen in 5 ml van dezelfde media die worden gebruikt voor kweek (SILAC Light of SILAC Heavy) tot een totaal volume van 10 ml.
- Oogst de cellen voor extractie van lysaten en validatie van senescentiemarkers.
- Voor elke suspensie, aliquot 0,6 x 10⁶ cellen in 2 ml media met 0,2% FBS in een 6-well schotel (twee gerechten, een voor SILAC Light gekweekte cellen en een voor SILAC Heavy gekweekte cellen) en plaats op 37 °C voor overnight incubatie.
OPMERKING: Deze platen (substap 2.5.1) zullen worden gebruikt voor de detectie van senescentie-geassocieerde β-galactosidase (SA-βGal) activiteit (stap 3.1). - Voor elke suspensie wordt 1 x 10⁶ cellen in een microcentrifugebuis gestoken en gedurende 1 minuut op volle snelheid in een tafelcentrifuge neergedraaid. Verwijder het supernatant en resuspend de pellet in 1 ml fenol; in deze stap kan RNA volledig worden gezuiverd zoals beschreven in de handleiding van de fenolleverancier of langdurig worden opgeslagen bij -80 °C.
LET OP: Fenol is corrosief en mag uitsluitend in een capuchon met handschoenen en een laboratoriumjas worden gehanteerd.
OPMERKING: Het geëxtraheerde RNA zal worden gebruikt voor de detectie van mRNA's die SASP-factoren coderen met behulp van reverse transcriptie (RT), gevolgd door real-time, kwantitatieve (q) PCR (RT-qPCR) analyse (stap 3.2). Een andere betrouwbare test voor senescentie-inductie is een test voor 5-ethynyldihydroxy uridine (EdU) -opname, wat wijst op de aanwezigheid van prolifererende cellen. De afwezigheid van proliferatie kan worden gebruikt om rust en veroudering te bevestigen. - Breng de resterende cellen over in ijs en draai naar beneden bij 300 x g en 4 °C.
- Voor elke suspensie, aliquot 0,6 x 10⁶ cellen in 2 ml media met 0,2% FBS in een 6-well schotel (twee gerechten, een voor SILAC Light gekweekte cellen en een voor SILAC Heavy gekweekte cellen) en plaats op 37 °C voor overnight incubatie.
- Verwijder het supernatant en was de cellen tweemaal in 1 ml koude PBS om media/trypsine en exogene eiwitbesmetting uit foetaal runderserum uit het kweekmedium te verwijderen.
- Draai de cellen opnieuw naar beneden, verwijder het supernatant en ga verder met lysis.
- Resuspend de celkorrels in 150 μL vers bereid 8 M ureum 50 mM ammoniumbicarbonaat Lysis Buffer (tabel 1) en meng door op en neer te pipetteren.
- Soniceer de lysaten in een water sonicator gedurende 2,5 min met 30 s aan/uit op middelhoog vermogen bij 4 °C.
- Breng de lysaten over in een voorverwarmd warmteblok van 95 °C en denatureer gedurende 4 minuten.
- Draai de lysaten naar beneden; lysaten kunnen nu worden opgeslagen bij -80 °C of onmiddellijk worden gebruikt voor kwantificering.
- Maak een voorraad van 30 μL van 1:10 verdunningen voor elk lysaat in Lysis Buffer.
- Meet de eiwitconcentratie met de BCA Assay Kit met behulp van een standaardcurve bereid in 1/10x Lysis Buffer verdund in ddH2O. Lysaten kunnen nu voor onbepaalde tijd worden bewaard bij -80 °C.
3. Validatie van senescentie door senescentie-geassocieerde β-Galactosidase (SA-βGal) activiteit en RT-qPCR analyse van senescentie-geassocieerde mRNA's
OPMERKING: Het uitgangsmateriaal voor deze stappen wordt verzameld tijdens stap 2.5
- Uitgaande van de 6-well platen die zijn ingesteld in substep 2.5.1, analyseert u cellen op SA-βGal-activiteit met behulp van de Senescence β-Galactosidase Staining-kit volgens het protocol van de fabrikant. Visualiseer kleuring onder brightfield met kleur ingeschakeld, zoals eerder beschreven36.
OPMERKING: SA-βGal wordt gekwantificeerd door het percentage positieve cellen (zichtbare blauwe kleur) in senescente versus rustige controleomstandigheden te vergelijken. Minimaal 70% van de cellen moet SA-βGal-positief zijn voor een succesvolle bevestiging van senescentie. Rustige controlecellen moeten minder dan 10% positief zijn voor SA-βGal. - Extraheer het RNA uit fenolsuspensie (substep 2.5.2) en analyseer met RT-qPCR op verhoogde niveaus van mRNA's die coderen voor SASP-factoren (IL6, CXCL8, IL1B), celcyclusmarkers (CDKN2A / p16, CDKN1A / p21) en andere indicatoren van senescentie (verlies van LMNB1 en PCNA).
OPMERKING: RNA is onstabiel en moet daarom worden behandeld met RNase-vrije apparatuur, verse handschoenen en op ijs, tenzij anders vermeld in het protocol.- Voeg vanaf fenolsuspensie 200 μL chloroform per 1 ml fenol toe en draai gedurende 15 minuten bij 4 °C bij 12.000 x g naar beneden.
- Verwijder voorzichtig de waterige fase en voeg 1:1 volume isopropanol, 15 μg glycogeen co-precipitant toe en incubeer vervolgens bij 4 °C gedurende 10 minuten om RNA neer te slaan.
- Na incubatie, pellet het RNA door centrifugatie bij 12.000 x g gedurende 20 minuten bij 4 °C gevolgd door een wasbeurt in 75% EtOH gelijk aan 1 volume fenol gebruikt. Resuspend het RNA in 50 μL nucleasevrij gedestilleerd water; RNA kan onbeperkt worden opgeslagen bij -80 °C.
- Voeg aan RNA-monsters 38 μL nucleasevrij gedestilleerd water, 10 μL 10x DNAse-reactiebuffer en 2 μL DNase I toe, gevolgd door mengen.
OPMERKING: Het genereren van een gemeenschappelijke mix van alle reagentia in substap 3.2.3 vermenigvuldigd met het aantal monsters voor behandeling voor gelijke verdeling met monsters is de beste praktijk. - Incubeer DNase I-behandelde RNA-monsters bij 37 °C gedurende 30 minuten.
- Verwijder DNase uit de monsters met behulp van 1 volume van een fenol/chloroform/isoamylalcohol (25:24:1) mengsel door gedurende 5 minuten met maximale snelheid te vortexen en te draaien in een tafelcentrifuge; het RNA zal zich in de waterige fase bevinden.
- Herhaal substappen 3.2.2 en 3.2.3 om RNA neer te slaan. Resuspend in 20 μL nucleasevrij gedestilleerd water; RNA kan onbeperkt worden opgeslagen bij -80 °C.
- Genereer cDNA uit gezuiverd RNA door 0,5-1,0 μg gezuiverd RNA te incuberen met 200 U reverse transcriptase, 100 pMol willekeurige primers en 10 mM van een dNTP-mix in 1x reactiebuffer geleverd met het reverse transcriptase; incubeer gedurende 10 minuten bij 25 °C, vervolgens gedurende 30 minuten bij 50 °C, met een laatste inactiveringsstap bij 85 °C gedurende 5 minuten.
- Analyseer cDNA uit de RT-stap (substap 3.2.3) van rustige controle- en senescente cellen met behulp van real-time, kwantitatieve (q) PCR-analyse om het niveau van mRNA-markers te beoordelen waarvan bekend is dat ze verhoogd zijn (CDKN2A / p16, CDKN1A / p21, IL1B, IL6 en CXCL8 mRNA's) of verlaagd (LMNB1 en PCNA mRNA's) met senescentie zoals elders beschreven. ACTB-mRNA , dat codeert voor het huishoudeiwit β-Actine, is vaak een goed mRNA om verschillen in het inputmateriaal te normaliseren. De gebruikte primers staan in tabel 2.
OPMERKING: Relatieve RT-qPCR-analyse is afhankelijk van aannames van gelijke bindingsefficiëntie tussen de doelprimerparen en een referentieprimerpaar. Deze aannames moeten worden getest voor nieuwe primersets zoals elders beschreven37. Bovendien moeten referentiemarkers constant zijn tussen de celtypen die worden vergeleken, en verschillende extra opties voor senescente cellen zijn eerder geïdentificeerd38.
4. In-oplossing trypsine vertering
OPMERKING: Vanaf dit punt is het van cruciaal belang om buffers, oplosmiddelen en chemicaliën van massaspectrometriekwaliteit te gebruiken om interferentie door onzuiverheden tijdens massaspectrometrie-analyse te voorkomen. Alle buffers moeten bestaan uit ingrediënten die geschikt zijn voor vloeistofchromatografie tandem massaspectrometrie analyse, met inbegrip van water en acetonitril. Raadpleeg de tabel met materialen voor een lijst met geschikte chemicaliën en oplosmiddelen.
- Aliquot 50 μg van elk eiwitmonster in nieuwe buizen en breng tot gelijke volumes met Lysis Buffer.
- Voeg aan elk monster DTT toe aan een eindconcentratie van 20 mM om disulfidebindingen te verminderen.
- Incubeer de monsters bij 37 °C gedurende 30 minuten met schudden en laat de monsters vervolgens afkoelen bij kamertemperatuur (RT, ~ 10 min).
- Voeg jodoacetamide toe aan een eindconcentratie van 40 mM om de sulfhydrylgroepen die in de vorige stap waren verminderd, onomkeerbaar te alkyteren. Incubeer de monsters bij RT in het donker gedurende 30 minuten.
- Verdun elk monster tot minder dan 1 M ureum met een buffer bestaande uit 50 mM ammoniumbicarbonaat. Controleer of de pH ongeveer 8 is door een kleine hoeveelheid monster op pH-strips te pipetteren.
- Voeg 1 μg trypsine toe aan elk monster voor 50 μg starteiwit, of bij 1:50 trypsine:eiwitverhouding, per massa, bij het verteren van een andere eiwithoeveelheid. Zo zou er 3 μg trypsine worden toegevoegd voor de vertering van 150 μg eiwit.
- Incubeer de monsters een nacht bij 37 °C met schudden om eiwitten te verteren tot peptiden.
- Voeg mierenzuur toe aan 1 volumeprocent van elk monster om de eiwitvertering te dempen.
OPMERKING: Het experiment kan hier worden gepauzeerd. Vries de monsters in bij -80 °C en ga indien nodig op een later tijdstip verder met de volgende stap.
5. Monsterreiniging met vastefasextractie (SPE)
OPMERKING: Dit vastfasige extractieprotocol vereist vastefasige extractiepatronen en een vacuümspruitstukopstelling. Andere equivalente vastefase-extractie (SPE) protocollen kunnen naar goeddunken van de onderzoeker worden uitgevoerd voorafgaand aan massaspectrometrie-analyse.
- Bereid u voor op SPE door vastefasige extractiepatronen op een vacuümspruitstuk te plaatsen, waarbij voor elk monster één extractiepatroon wordt gebruikt.
OPMERKING: Raadpleeg de richtlijnen van de fabrikant voor de hoeveelheid sorptiemiddel die in het SPE-protocol moet worden gebruikt. Voor 50 μg peptidemonsters wordt aanbevolen om 10 mg sorptiepatronen te gebruiken. - Conditioneer elke SPE-patroon door 800 μL SPE-elutiebuffer toe te voegen (tabel 1) en gebruik vacuümafzuiging om het oplosmiddel door de patroon te trekken.
- Herhaal stap 5.2.
- Breng elke patroon in evenwicht door 800 μL SPE Wash Buffer (tabel 1) toe te voegen en gebruik vacuümafzuiging om de buffer door de cartridges te trekken.
- Herhaal stap 5.4 nog twee keer voor een totaal van drie keer.
- Laad de peptidemonsters in SPE-cartridges en gebruik vacuümafzuiging om monsters door de cartridges te trekken.
OPMERKING: Op dit punt zijn peptiden gebonden aan het sorptiemiddel in de cartridges. - Was elke patroon met SPE Wash Buffer en gebruik vacuümafzuiging om de buffer door de cartridges te trekken.
- Herhaal stap 5.7 nog twee keer voor een totaal van drie wasbeurten.
- Plaats voorafgaand aan de elutiestap opvangbuizen in het vacuümspruitstuk onder elke patroon en zorg zorgvuldig voor de uitlijning tussen de opvangbuizen en patronen.
- Om peptiden te elueren, voegt u 800 μL SPE Elution Buffer toe aan elke patroon en elueert u peptiden in verzamelbuizen met vacuümafzuiging.
- Herhaal stap 5.10 met 400 μL SPE-elutiebuffer.
- Verwijder de peptidemonsters uit het vacuümspruitstuk en droog volledig in een vacuümconcentrator (drogen duurt ongeveer 3 uur).
OPMERKING: Het experiment kan hier worden gepauzeerd. Vries de monsters in bij -80 °C en ga zo nodig op een later tijdstip verder.
6. Data-dependent acquisition (DDA) massaspectrometrie analyse
- Resuspend de peptidemonsters in een concentratie van 400 ng/μL in een buffer bestaande uit 0,2% mierenzuur in water.
- Om te helpen bij het opnieuw oplossen van peptiden, vortex de monsters gedurende 5 minuten. Soniceer vervolgens de monsters gedurende 5 minuten in een waterbad sonicator.
- Pellet alle onoplosbare materialen door monsters gedurende 15 minuten bij 4 °C bij 15.000 x g te centrifugeren. Breng de peptide-supernatanten over in MS-injectieflacons.
- Voeg geïndexeerde retentietijd (iRT) peptidestandaarden naar keuze toe aan elk monster in een concentratie van 1:30 iRT:sample, per volume.
- Dien de monsters in voor proteomische analyse met behulp van vloeistofchromatografie tandem massaspectrometrie (LC-MS /MS) analyse.
- Gebruik de LC-MS/MS-instellingen die worden aanbevolen voor ongerichte analyse door de massaspectrometriefaciliteit. Voorbeeldinstellingen voor analyse worden weergegeven in figuur 3, geconfigureerd voor analyse op een Orbitrap-massaspectrometer gekoppeld aan een nanovloeistofchromatografiesysteem in nanostroommodus. Een voorbeeldprotocol volgt.
- Laad 1 μg (5 μL) van elk monster op een valkolom (1 cm lang x 100 μm diameter) en was ze met loading solvent (tabel 1) met een debiet van 10 μl/min gedurende 5 minuten.
- Laad de monsters op een analysekolom (50 cm lang x 100 μm diameter) met een debiet van 400 nL/min.
- Elueer de peptiden over een lineaire gradiënt van 90 minuten met een organisch oplosmiddel (0,2% mierenzuur en 99,8% acetonitril) en anorganisch oplosmiddel (0,2% mierenzuur in 99,8% water), variërend van 5% tot 35% organisch oplosmiddel.
- Verkrijg massaspectrometriegegevens in gegevensafhankelijke modus met een continue cyclus van MS1-enquêtescans (60.000 resolutie, 3e6 AGC-doel, 100 ms maximale accumulatietijd en 400-1.600 m/z massabereik), gevolgd door 20 gegevensafhankelijke MS2-scans (15.000 resolutie, 1e5 AGC-doel, 25 ms maximale injectietijd en isolatievensters van 1,6 m/z breedte) met HCD-fragmentatie (genormaliseerde botsingsenergie van 27%).
- Na MS-acquisitie van alle monsters, importeer ruwe massaspectrometriebestanden in een massaspectrometrie proteomics analyse software tool voor identificatie en kwantificering van peptide piekgebieden.
OPMERKING: Voor de identificatie van peptiden en eiwitten in dit experiment werd de Mascot-databasezoektool gebruikt met de beoordeelde UniProt human proteome sequence database (Proteome ID: UP000005640). De volgende zoekparameters zijn opgegeven in Mascot:- Kwantificering: SILAC K+8 R+10 [MD] Enzym: Trypsine/p Vaste modificatie: carbamidomethyl (C)
- Variabele modificaties: acetyl (Eiwit N-term), Gln->pyro-Glu (N-term Q), Oxidatie (M), Label:13C(6)15N(2) (K), Label:13C(6)15N(4) (R)
- Peptide massa tolerantie: 10 ppm
- Fragment massa tolerantie: 0.08 Da
- Max miste decolleté's: 2
- Alle niet-gespecificeerde parameters waren standaard
- Kwantificeer de peptide piekgebieden voor zware en lichte peptiden in proteoom kwantificering software tool. Voor de kwantificering van piekgebieden in dit experiment werd het gratis en open-source Skyline-softwareplatformgebruikt 39,40. Exporteer zware en lichte peptidepiekgebieden voor schatting van eiwithalfwaardetijden.
7. Berekening van de halfwaardetijd van eiwitten
- Open de SILAC-analysewerkmap (tabel 3) op het eerste blad met de naam 1) Onbewerkte gegevens en plak UniProt-id's, gennamen, zware piekgebieden en lichte piekgebieden in de aangegeven kolommen (SH = Senescent-Heavy, SL = Senescent-Light, CH = Control (quiescent)-Heavy, CL = Control (quiescent)-Light).
- Open vellen 2-4 en zorg ervoor dat de UniProt ID- en Genkolommen overeenkomen met het aantal eiwitten dat uit de analyse is geïdentificeerd (deze experimenten identificeerden 841 eiwitten). De rest van de kolommen wordt automatisch gevuld met gegevens nadat ze zijn gesleept om de geïdentificeerde eiwitten te bedekken.
- Open het vierde blad met de naam 4) Analyse en verwijder rijen waarin de kolommen G en H aangeven dat het monster buiten bereik is; houd rijen die lezen binnen bereik. Het vulkaanperceel in het vijfde blad wordt automatisch ingevuld.
Resultaten
Dit protocol beschrijft een methode om eiwithalfwaardetijden tussen senescente en niet-delende, rustige controlecellen globaal te vergelijken met behulp van pSILAC en minimale tijdspunten. Dit protocol beschrijft het genereren van senescente en rustige cellen in cultuur, metabole etikettering van cellen met stabiele isotopen van arginine en lysine gedurende 3 dagen, het kwantificeren van de relatieve abundanties van zware en lichte peptide-isotopen door massaspectrometrie en een eenvoudige en toegankelijke berekening van eiwithalfwaardetijden met behulp van spreadsheetformules (figuur 1). Deze methode is zeer flexibel en kan worden aangepast aan tal van celtypen en omstandigheden.
Als onderdeel van het genereren van senescente cellen voor dit protocol, worden twee methoden van senescentievalidatie gebruikt: SA-βGal-positieve cellen gevisualiseerd door microscopie en verhoogde niveaus van senescente markers gekwantificeerd met behulp van RT-qPCR-analyse. De meting van senescente markers moet een duidelijk onderscheid opleveren tussen rustige en senescente cellen om vergelijkingen van de twee celpopulaties als geldig te kunnen beschouwen. Voor SA-βGal-activiteit moeten senescente cellen blauw lijken, terwijl rustige controlecellen geen of zeer weinig kleur hebben (figuur 2A). Deze test kan worden gekwantificeerd door de positieve, blauwgekleurde cellen te tellen als een percentage van het totale aantal cellen en vervolgens de procentuele positiviteitsratio tussen rustige controle en senescente cellen te vergelijken. Het is belangrijk dat dit protocol tegelijkertijd wordt uitgevoerd voor de vergelijking van beide celtoestanden; SA-βGal-activiteit is afhankelijk van de pH van de kleuringsoplossing, dus de resultaten kunnen aanzienlijk variëren tussen assays en moeten als een kwalitatieve maat worden beschouwd.
De RT-qPCR-analyse van senescente markers toont hoge niveaus van de mRNA's die coderen voor SASP-factoren (IL6, CXCL8, IL1B) en de celcyclusremmers (CDKN2A / p16, CDKN1A / p21) in de meeste senescente modellen. Hoewel enige variatie wordt verwacht op basis van celtype, kweekconditie en senescente inductor41,42, vertonen de meeste senescente cellen meer dan vijf keer hogere niveaus van IL6, CXCL8 en CDKN1A / p21 mRNA's in vergelijking met rustige controlecellen; omgekeerd moeten de niveaus van LMNB1 en PCNA mRNA's, coderend voor proliferatiemarkers, laag of afwezig zijn in senescente cellen in vergelijking met rustige cellen (figuur 2B). Alles bij elkaar genomen zijn een significant percentage SA-βGal positiviteit en de verwachte expressie van een panel van senescentie-geassocieerde mRNA-markers voldoende om de inductie van senescentie in een experiment te bevestigen.
De verwerking van eiwitmonsters voor massaspectrometrie-analyse bestaat uit in-solution vertering (2 dagen) en vaste-fase extractie (4-6 uur). Om ongerichte proteomische analyse uit te voeren, worden de resulterende peptiden ingediend voor LC-MS / MS-analyse met behulp van gegevensafhankelijke acquisitie (DDA). Op Orbitrap-instrumenten kan een DDA-methode worden gespecificeerd in de methode-editor voor massaspectrometrie-instrumenten. De in dit onderzoek gebruikte instellingen van de massaspectrometer zijn weergegeven in figuur 3A. Vloeistofchromatografie-instellingen kunnen ook worden opgegeven in de methode-editor. Voor deze studie werd een lineaire gradiënt van 90 minuten met toenemende organische fase (acetonitril) gebruikt (figuur 3B). Na een succesvolle acquisitie moet de totale ionenstroom (TIC) een intens signaal bevatten tijdens het lineaire gradiëntgedeelte van de methode (figuur 3C). Dit protocol beschrijft een voorbeeldprotocol op een Orbitrap-instrument, maar de berekening van eiwithalfwaardetijden kan worden uitgevoerd op basis van gegevens die zijn verkregen van elke massaspectrometer die is verzameld in DDA-modus, die beschikbaar is op verschillende soorten instrumenten (bijv. Orbitraps en time-of-flight-instrumenten) en leveranciers. De acquisitie-instellingen zijn uniek voor het type en de configuratie van het gebruikte instrument en het wordt aanbevolen om de instellingen te gebruiken die worden voorgesteld door de massaspectrometriefaciliteit. Deze methode is ook compatibel met niet-DDA-methoden (SRM, PRM, DIA), zolang kwantitatieve chromatografische piekgebieden voor zware en lichte pieken kunnen worden geëxtraheerd uit de onbewerkte gegevensbestanden en in de spreadsheetformules kunnen worden ingevoerd.
Ruwe massaspectrometriebestanden worden doorzocht met een van de vele beschikbare proteomische databasezoekhulpmiddelen om peptiden en eiwitten te identificeren. Deze studie maakte bijvoorbeeld gebruik van de Mascot43-zoekmachine. Om chromatografische piekgebieden te verkrijgen voor kwantificering van zware en lichte peptiden, worden databasezoekresultaten geïmporteerd in een proteomische software die chromatografische piekgebieden zoals Skyline39,40 kan bevatten. Onderzoek van de geëxtraheerde ionchromatogrammen van peptiden (figuur 4) zal het relatieve aandeel van zware en lichte peptidesignalen onthullen. Een lager aandeel van het zware peptidesignaal ten opzichte van het lichte peptidesignaal in senescente cellen duidt op een langzamere eiwitomloopsnelheid (figuur 4A), en een hoger zwaar peptidesignaal ten opzichte van licht duidt op een snellere eiwitomloopsnelheid (figuur 4B). De ongelabelde monsters moeten weinig of geen zwaar peptidesignaal vertonen. Elk schijnbaar zwaar peptidesignaal in de niet-gelabelde monsters wordt beschouwd als achtergrondruis en zal tijdens de uiteindelijke berekeningen worden afgetrokken. Kwantificering van chromatografische piekgebieden voor lichte en zware peptiden voor alle behandelings- en etiketteringsomstandigheden moet worden geëxporteerd voor latere berekening van eiwitomloopsnelheden en statistische analyse.
Door gebruik te maken van single time point analyse, is de kwantificering van eiwithalfwaardetijden eenvoudig uit te voeren en kan gemakkelijk worden gedaan in spreadsheets. In tabel 3 werden de halfwaardetijden berekend voor 695 eiwitten die uit de massaspectrometrieanalyse werden geïdentificeerd. Uitgaande van eiwitrijke en lichte isotoop abundanties voor elk eiwit in de monsters (invoer voor de 1) Raw Data sheet), wordt vervolgens automatisch een procent zware isotoop (de Ratio, R genoemd) berekend op het blad met de titel 2) Ratio H | H + L. Bij deze stap wordt de R van zwaar gelabelde monsters genormaliseerd door de R af te trekken van niet-gelabelde monsters om een uiteindelijke R te produceren voor de rustige en senescente drielicaten. Omdat niet-gelabelde monsters geen exogene toegevoegde zware isotoop mogen hebben, worden ze gebruikt om het achtergrondsignaal te elimineren. Vanaf R wordt dek-deg (omloopsnelheid) berekend met behulp van de volgende formule:
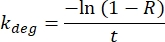
De halfwaardetijd (H, in dagen) wordt bepaald voor elk eiwit in de rustcontrole en senescente triplicaten (blad met de titel 3) Halfwaardetijd (dagen)) met behulp van de volgende formule:

Deze halfwaardetijden worden vervolgens gemiddeld onder de rustige en senescente drievoudige om een rustige en senescente gemiddelde halfwaardetijd voor elk eiwit te genereren, evenals een p-waarde. Berekende halfwaardetijden worden vervolgens gefilterd op waarden die negatief zijn, wat optreedt wanneer het zware signaal van licht gelabelde cellen (de achtergrond) groter is dan het zware signaal van zwaar gelabelde cellen. Deze filtering resulteerde in 707 eiwitten uit 841 geïdentificeerd met geldige halfwaardetijden voor de hier gepresenteerde resultaten.
De halfwaardetijd wordt vervolgens gerapporteerd als een log2-verhouding van senescente over rustige controlecellen (log2FC) en uitgezet in een vulkaanplot (figuur 5). Bijvoorbeeld, door te kijken naar het 5) Analyseblad, kan worden gezien dat het stollings II trombinereceptor (F2R) eiwit een halfwaardetijd heeft in rustige cellen van 0,51 dagen (kolom B) en een halfwaardetijd in senescente cellen van 1,07 dagen (kolom C) die een log2FC van ~ 1,06 (kolom D) opleverde met een p-waarde van 0,001.
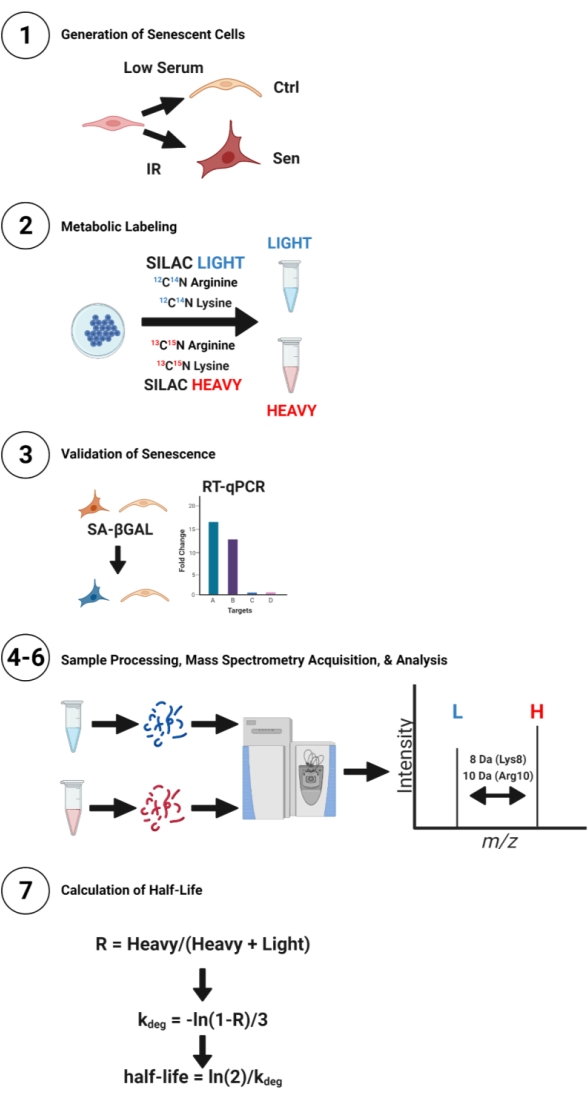
Figuur 1: Diagram van de pSILAC-workflow voor senescente en rustige controlecellen. Menselijke IMR-90 fibroblasten werden gebruikt om rustige (laag-serum) of senescente (IR) celculturen te bereiden voor vergelijking van eiwithalfwaardetijden. Cellen werden vervolgens gelabeld met SILAC Light of SILAC Heavy media met isotopische arginine en lysine gedurende 3 dagen. Lysaten werden geëxtraheerd uit cellen, verteerd, ontzout en geanalyseerd met behulp van massaspectrometrie. Zware en lichte peptide-isotooppieken komen overeen met respectievelijk nieuw gesynthetiseerde en reeds bestaande peptiden. Halfwaardetijden werden berekend met behulp van een vergelijking voor exponentieel verval. Klik hier om een grotere versie van deze figuur te bekijken.
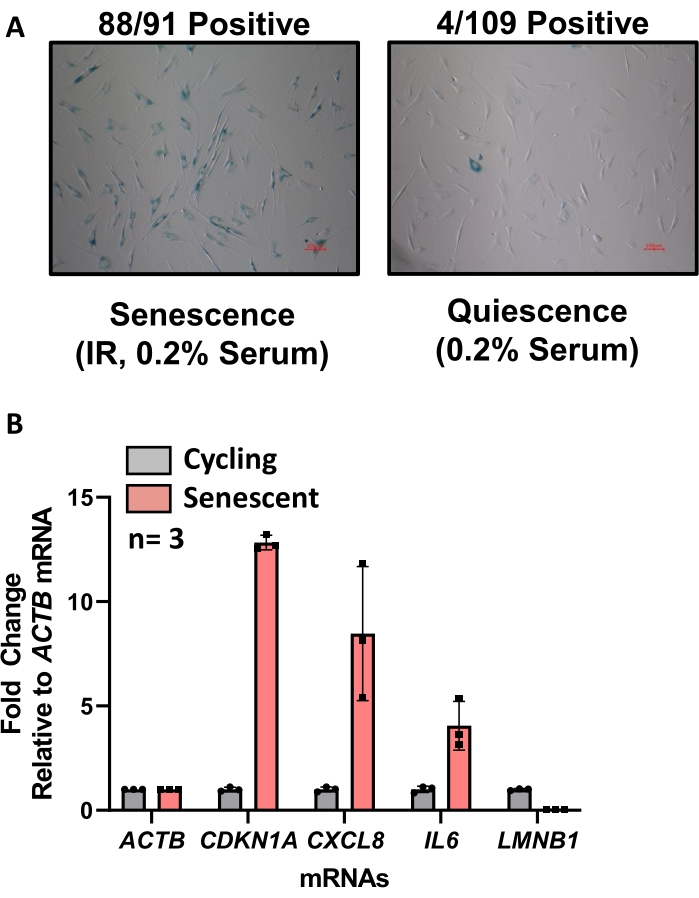
Figuur 2: Validatie van senescente fenotypes met behulp van SA-βGal- en RT-qPCR-analyses. (A) Senescente en rustige cellen worden op het moment van de oogst opnieuw verguld in een 6-well plaat en gekleurd voor SA-βGal met behulp van de SA-βGal-kleuringskit. Blauwe kleur in het cellichaam is positief voor senescentie. Foto's worden gemaakt in brightfield met kleur bij 10x vergroting, maatmarkering in rood. (B) RT-qPCR-analyse waarbij senescente cellen (rood) en fietsende cellen (grijs) uit een niet-gerelateerd experiment worden vergeleken. Verhogingen van de niveaus van CDKN1A/p21, CXCL8 en IL6 mRNA's zijn indicatief voor senescentie, evenals de afname van LMNB1 mRNA-niveaus. Klik hier om een grotere versie van deze figuur te bekijken.
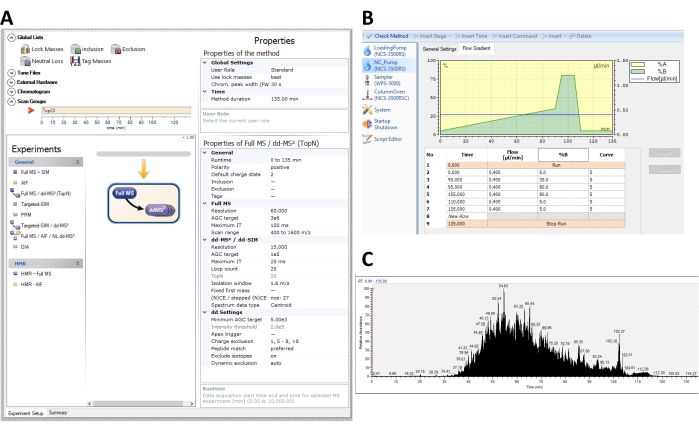
Figuur 3: Representatieve methoden voor data-dependent acquisition (DDA) scans en vloeistofchromatografie gradiënt van pSILAC culturen op de Q-Exactive HF orbitrap massaspectrometer. (A) Aanbevolen instrumentinstellingen in de instrumentsoftware voor data-afhankelijke analyse van hele cel lysaten uit een pSILAC experiment. (B) Voorbeeld van instellingen voor vloeistofchromatografiestroomgradiëntmethode. Peptiden worden geëlueerd over een lineaire gradiënt van 90 minuten, variërend van 5% tot 35% buffer B (0,2% mierenzuur en 99,8% acetonitril), gevolgd door een wasbeurt van 10 minuten met 80% buffer B en 25 minuten evenwicht met 5% buffer B. (C) Een representatief totaal ionogram (TIC) van een massaspectrometrie-acquisitie van IMR-90 fibroblastpeptiden verkregen met de gespecificeerde instellingen. Klik hier om een grotere versie van deze figuur te bekijken.
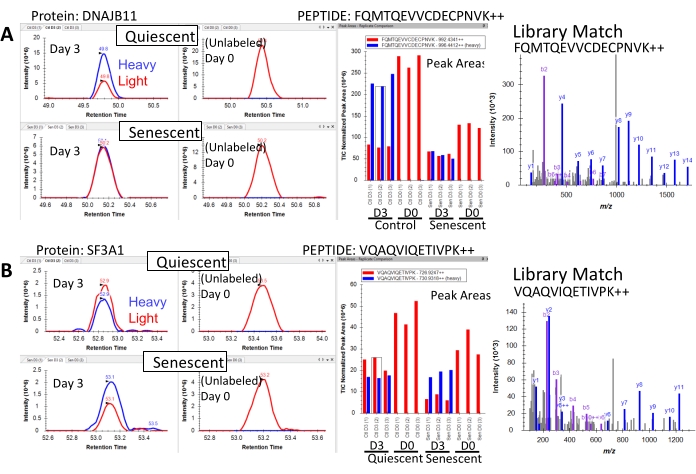
Figuur 4: Representatieve geëxtraheerde ionchromatogrammen van peptiden met veranderde omzet tijdens senescentie. (A) Chromatografische piekgebieden van het peptide FQMTQEVVCDECPNVK++ uit het eiwit DnaJ homologe subfamilie B lid 11 (DNAJB11) in senescente en niet-senescente cellen. Na 3 dagen SILAC nemen senescente cellen minder zware isotoop op in dit peptide in vergelijking met rustige (niet-senescente) cellen, zoals aangegeven door een vermindering van het piekgebied van zwaar isotoopbevattend peptide (blauw) ten opzichte van het lichte peptide (rood), wat aangeeft dat dit peptide de omzet in senescente cellen heeft verminderd. (B) Chromatografische piekgebieden van het peptide VQAQVIQETIVPK++ van het eiwit Splicing Factor 3a Subunit 1 (SF3A1) in senescente en niet-senescente cellen. Na 3 dagen SILAC bevatten senescente cellen een hoger aandeel zware isotoop in dit peptide in vergelijking met rustige (niet-senescente) cellen, zoals aangegeven door een vermindering van het piekgebied van zwaar isotoopbevattend peptide (blauw) ten opzichte van het lichte peptide (rood), wat aangeeft dat dit peptide een verhoogde omzet in senescente cellen heeft. De ongelabelde (dag 0) omstandigheden tonen geen opname van zware isotoop voor beide peptiden, zoals verwacht. Klik hier om een grotere versie van deze figuur te bekijken.
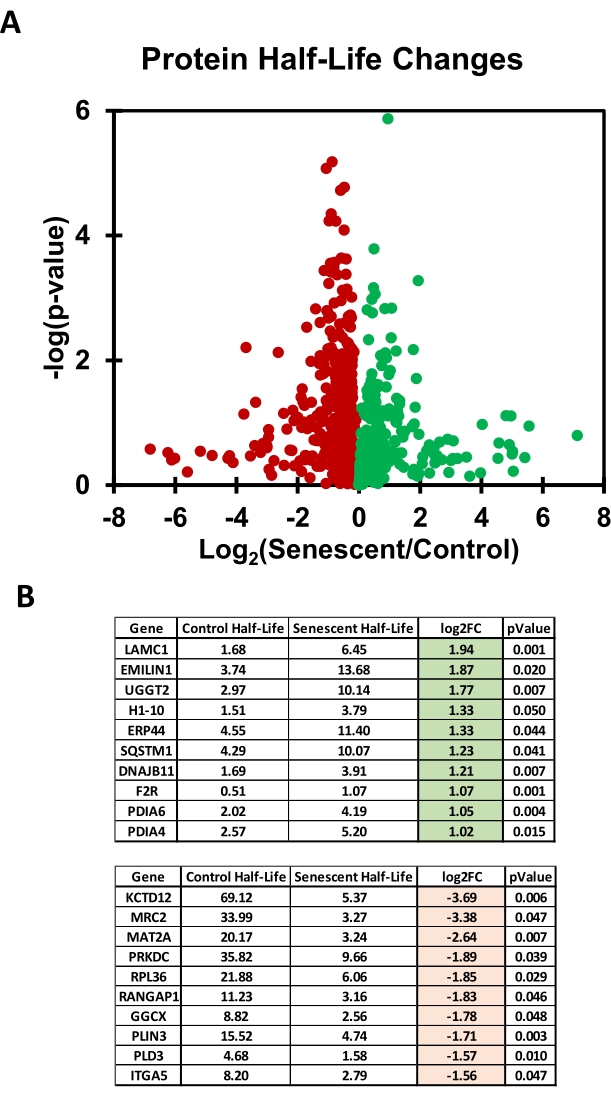
Figuur 5: Vergelijking van eiwithalfwaardetijden in senescente en rustige cellen bepaald op basis van pSILAC-etikettering. (A) Vulkaanplot met de log2-verhouding van senescent / controle (rustig) voor elk van de 695 geïdentificeerde eiwitten; in dit experiment bevatten lichte en zware etiketteringsmedia geen glucose en geen fenolrood. (B) Tabellen met de top 10 eiwitten met de meest verhoogde of verlaagde halfwaardetijden in rustige cellen versus senescente cellen (respectievelijk links en rechts). Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Media en buffers die in dit protocol worden gebruikt. Klik hier om deze tabel te downloaden.
Tabel 2: RT-qPCR primers die in dit protocol worden gebruikt. Klik hier om deze tabel te downloaden.
Tabel 3: SILAC-analysewerkboek voor berekening van eiwithalfwaardetijden, vouwveranderingen en t-tests. Klik hier om deze tabel te downloaden.
Discussie
pSILAC is een krachtige techniek die de wereldwijde kwantificering van eiwitomloopsnelheden over meerdere cellulaire omstandigheden mogelijk maakt. Dit artikel beschrijft het gebruik van pSILAC om globale eiwithalfwaardetijden tussen senescente en rustige cellen te vergelijken, inclusief instructies voor de bereiding van senescente en rustige cellen, SILAC-etikettering en -oogst, en uiteindelijk analyse met behulp van DDA-massaspectrometrie. Daarnaast wordt een tweestapstest beschreven voor validatie van het senescentiefenotype met behulp van SA-βGal en RT-qPCR-analyse van een panel van mRNA's die coderen voor senescentie-geassocieerde eiwitten. Naast validatie van senescentie met de twee beschreven benaderingen, kan een derde validatie van senescentie worden uitgevoerd na massaspectrometrie-analyse door te zoeken naar veranderingen in bekende senescentiemarkers tussen senescente en rustige cellen op proteomisch niveau. Senescentie-geassocieerde eiwitten die naar verwachting verhoogd zijn, zijn onder andere p16, p21 en BCL2, elders beschreven 44,45. In het hierboven beschreven protocol werd ioniserende straling gebruikt voor de inductie van senescentie en serumuithongering voor rustige cellen. Voor de inductie van senescentie zijn er meerdere opties beschikbaar en er is een aanzienlijke heterogeniteit tussen hen 41,42,46. Momenteel is er geen senescente methode die als de "meest fysiologische" wordt beschouwd, dus de keuze van de senescente inductor is grotendeels gebaseerd op de context van het experiment. Experimenten met het doel om een algemeen fenomeen over senescentie te verklaren, worden echter aanbevolen om ten minste twee verschillende senescente inductoren te gebruiken. Het bespreken van het bereik van senescentieparadigma's valt buiten het bestek van dit artikel, maar enkele veelgebruikte methoden om senescentie te induceren, omvatten het veroorzaken van DNA-schade (IR, doxorubicine, replicatieve uitputting), het tot expressie brengen van oncogene eiwitten (HRAS, BRAF) en het verstoren van de mitochondriale functie2.
Naast de keuze van de senescente inductor is de keuze van controlecellen een even belangrijke overweging. Senescente cellen zijn per definitie onder onbepaalde groeistilstand, dus een vergelijking met andere groei-gestopte cellen wordt vaak gekozen. Voor pSILAC hebben cellen die de celcyclus hebben gestuit, over het algemeen de voorkeur omdat ze zich niet repliceren en dus gemakkelijker te gebruiken zijn voor berekeningen van de halfwaardetijd van eiwitten47. Omdat gekweekte cellen echter vaak enkele delende cellen behouden, is het belangrijk dat de methoden die worden gebruikt om celcyclusstilstand te induceren een zo homogeen mogelijke respons produceren om fouten van cellen die zich nog steeds vermenigvuldigen te minimaliseren. Om eiwitafbraaksnelheden voor fietsende cellen te berekenen met behulp van pSILAC zijn aanvullende berekeningen nodig om te compenseren voor de snelheid waarmee eiwit wordt verdund in dochtercellen27. De rustige groeistop zelf is echter niet zonder complicaties. Er zijn twee algemene methoden voor celcyclusstilstand: serumdeprivatie en contactremming48. Niet alle cellen kunnen rustig worden gemaakt door contactremming, hoewel van sommige fibroblasten is aangetoond dat ze rust vertonen na enkele dagen kweken49. Deze methode gebruikte serumdeprivatie omdat het vaker wordt gebruikt voor vergelijkingen van senescente cellen, hoewel het vereist dat de senescente cel op dezelfde manier serumarm is voor nauwkeurige vergelijkingen. Serum activeert het mTOR-complex en dus heeft serumdeprivatie verschillende stroomafwaartse effecten op de cel naast celcyclusstilstand50. Met name is aangetoond dat senescente cellen een verminderde SASP vertonen bij serumdeprivatie of mTOR-remming51,52.
Een ander belangrijk punt om te overwegen in pSILAC is hoeveel tijdspunten te testen. Dit protocol verzamelde cellen op een enkel tijdstip (3 dagen lichte of zware etikettering), wat de resulterende analyse aanzienlijk vereenvoudigt. De keuze van het tijdstip moet gebaseerd zijn op het doel van het experiment. Voor wereldwijde analyse wordt verwacht dat 3 dagen een meerderheid van eiwitten zal vangen, hoewel halfwaardetijden voor kortlevende eiwitten die binnen 3 dagen volledig omzet (alle lichtsignalen gaan verloren) op dit moment niet kunnen worden gemeten. Omgekeerd zijn langlevende eiwitten met zeer weinig omzet in 3 dagen ook moeilijk te kwantificeren en lijken ze vaak extreem grote halfwaardetijden te hebben (in de orde van weken) die meestal slechts een gevolg zijn van zeer weinig zware signaalaccumulatie. Vanwege de niet-lineaire relatie in de verhouding tussen zware en lichte peptidesignalen en het percentage nieuw gesynthetiseerde eiwitten op kortere en langere tijdspunten, kan de kwantificering van halfwaardetijden worden verbeterd door extra labelingtijdpunten toe te voegen. Voor relatieve vergelijkingen tussen twee celtoestanden, zoals in dit protocol, kan een geschatte halfwaardetijd voldoende zijn, maar extra tijdspunten kunnen worden gebruikt om de kwantitatieve nauwkeurigheid te verbeteren.
Dit protocol beschrijft hoe een ongerichte DDA-gebaseerde analyse van eiwitomzet wordt uitgevoerd. De eiwitomzetberekeningen kunnen echter in het algemeen worden toegepast op elk acquisitieschema dat in staat is om de relatieve abundantie van zware en lichte peptideparen af te leiden. Ms2-gebaseerde methoden zoals data-independent acquisition (DIA/SWATH) kunnen bijvoorbeeld ook worden toegepast voor de berekening van omloopsnelheden met succes53. Bovendien kunnen andere instrumentatie- en softwarepijplijnen dan die beschreven in dit protocol worden gebruikt om DDA-analyse, eiwitidentificatie en eiwitkwantificering uit te voeren. Bij het gebruik van softwareplatforms voor eiwitkwantificering zoals Skyline om peptidepiekgebieden te extraheren, is het raadzaam om geëxtraheerde ionchromatogrammen handmatig in de documentwerkruimte te inspecteren, pieken te identificeren die ten onrechte waren geïntegreerd en niet-kwantitatieve pieken en het document dienovereenkomstig te beheren. Een uitgebreide verzameling tutorials is online beschikbaar voor Skyline (skyline.ms).
pSILAC vertegenwoordigt een van de meest ideale methoden voor wereldwijde kwantificering van eiwithalfwaardetijden in gekweekte cellen vanwege superieure multiplexing (proteoomdekking) en doorvoer. Hoewel pSILAC geen directe synthese- of afbraaksnelheden biedt, omdat de verandering in licht en zwaar signaal te wijten is aan een samenloop van factoren, is pSILAC zeer nuttig voor vergelijkingen tussen omstandigheden en verschillende celtypen. Low-throughput-methoden vallen vaak in twee soorten: 1) behandeling van cellen met cycloheximide om eiwitsynthese te blokkeren en te oogsten met tijdsintervallen na toevoeging om verval te controleren, of 2) behandeling van cellen met een remmer van eiwitverval en oogst met tijdsintervallen na toevoeging om de accumulatie van eiwitten te controleren, waardoor eiwitvervalsnelheden worden afgeleid. De beperking van beide methoden is dat dergelijke behandelingen onvermijdelijk aanzienlijke veranderingen in de cellulaire fysiologie zullen veroorzaken. PSILAC vereist daarentegen geen substantiële interventie en heeft theoretisch geen detecteerbare effecten op de cellulaire fysiologie, omdat isotopische aminozuren slechts één neutron verschillen van hun niet-isotopische tegenhangers. De hier beschreven methode voor pSILAC vertegenwoordigt dus een eenvoudig protocol voor wereldwijde meting van de meest fysiologische eiwithalfwaardetijden in niet-delende cellen.
Veranderingen in eiwitomzet hebben een nauwe relatie met veroudering, leeftijdsgebonden ziekten, neurodegeneratie en levensduur54,55. Dit protocol beschrijft een methode om deze relaties te ondervragen door stabiele isotoopetikettering van aminozuren in celkweek te gebruiken om eiwitomloopsnelheden in senescentiecellen te meten. Er bestaan echter tal van analoge methoden om studies uit te voeren in de context van veroudering en neurodegeneratie in vivo in hele organismen zoals muizen. Inderdaad, deze studies hebben het belang benadrukt van het meten van eiwitomloopsnelheden in de context van leeftijdsgebonden ziekten 56,57,58,59.
In deze studie vielen ribosomale eiwitten en eiwitten die zich in het endoplasmatisch reticulum bevinden op als twee categorieën eiwitten met respectievelijk verminderde en verhoogde halfwaardetijden in senescente cellen. Hoewel verdere analyse van steady-state niveaus nodig is voor definitieve conclusies, suggereren deze resultaten verder dat senescente cellen de translatie op unieke wijze kunnen reguleren door verminderde halfwaardetijden van ribosomale eiwitten. In de toekomst zal het toepassen van stabiele isotooplabelingsbenaderingen om de relatie tussen cellulaire senescentie en neurodegeneratie in vivo in muismodellen te bestuderen, een veelbelovende uitbreiding zijn van de isotooplabelingsbenadering die door dit protocol wordt beschreven.
Openbaarmakingen
De auteurs hebben geen onthullingen.
Dankbetuigingen
Dit werk werd ondersteund door de National Institutes of Health (NIH) en het Intramural Research Program (IRP), National Institute on Aging (NIA). N.B. werd ondersteund door Longevity Impetus Grants en het Office of Dietary Supplements (ODS) Scholars Program. Figuur 1 is gemaakt met BioRender.com.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Acetonitrile (LC-MS grade) | Grainger | AH015 | |
| Ammonium Bicarbonate | Millipore-Sigma | 9830 | |
| Antibiotic-Antimycotic (100x) | ThermoFisher | 15240062 | |
| BCA Assay Kit | ThermoFisher | 23227 | |
| Dithiothreotol (DTT) | Sigma | D9779 | |
| DMEM, hoge glucose, HEPES | ThermoFisher | 12430112 | |
| dNTP Mix | ThermoFisher | R0191 | |
| Fetal bovien serum, gecertificeerd, warmte-inactivatie | ThermoFisher | 10082147 | |
| Formic Acid | Sigma | 27001 | |
| Gammacel 40 Exactor | Best Theratronics | Cesium Irradiator voor cellen | |
| GlycoBlue | ThermoFisher | AM2238 | |
| Iodoacetamide (IAA) | Sigma | I1149 | Lichtgevoelig |
| IMR-90 primaire long fibroblasten | ATCC | CCL-186 | |
| iRT Kit (geïndexeerde retentietijd) | Biognosys | Ki-3002-2 | Geïndiceerde retentietijd peptidstandaard |
| Isopropanol | ThermoFisher | 423835000 | |
| Mascot | Matrix Science | Mascot Daemon 2.8 | Proteomische databasezoeksoftware |
| Maxima Reverse Transcriptase (200 U/µL) | ThermoFisher | EP0742 | |
| MEM niet-essentiële aminozurenoplossing (100x) | ThermoFisher | 11140050 | |
| Nano LC-systeem | ThermoFisher | ULTIM3000RSLCNANO | |
| Oasis HLB solid phase extractie cartridges | Waters | 186000383 | |
| Orbitrap massaspectrometer | ThermoFisher | Q Exactive HF Orbitrap | |
| Fenol/Chloroform/Isoamyl alcohol (25:24:1), 100 mM EDTA, pH 8.0 | ThermoFisher | 327110025 | |
| Fosfaatgebufferde zoutoplossing (PBS) | ThermoFisher | 10010023 | |
| Pierce SILAC Protein Quantitation Kit (Trypsine) -DMEM | ThermoFisher | A33972 | |
| QuantStudio 6 Real-Time PCR-systeem | ThermoFisher | ||
| Random Hexamer Primer | ThermoFisher | SO142 | |
| Senescence &bèta;-Galactosidase Kleuringskit | Cell Signaling | 9860 | |
| Skyline | University of Washington | Skyline-Daily v21.2.1.424 | Gratis en open source kwantitatief proteomische software. Beschikbaar op www.skyline.ms |
| Sonicator waterbad | Branson | CPX-952-516R | |
| TRIzol Reagent | ThermoFisher | 15596018 | Wordt in tekst aangeduid als fenol; gevaarlijk |
| TRYPle Express | ThermoFisher | 12605010 | |
| Trypsine (sequentiegrade) | Promega | V5113 | |
| TURBO Dnase (2U/ uL) | ThermoFisher | AM2238 | |
| Urea | ThermoFisher | 29700 | |
| Water (LC-MS grade) | Grainger | AH365 |
Referenties
- Hayflick, L. The cell biology of aging. Journal of Investigative Dermatology. 73 (1), 8-14 (1979).
- Gorgoulis, V., et al. Cellular senescence: Defining a path forward. Cell. 179 (4), 813-827 (2019).
- Borghesan, M., Hoogaars, W. M. H., Varela-Eirin, M., Talma, N., Demaria, M. A senescence-centric view of aging: Implications for longevity and disease. Trends in Cell Biology. 30 (10), 777-791 (2020).
- Martinez-Cue, C., Rueda, N. Cellular senescence in neurodegenerative diseases. Frontiers in Cellular Neuroscience. 14, 16(2020).
- Wissler Gerdes, E. O., et al. Cellular senescence in aging and age-related diseases: Implications for neurodegenerative diseases. International Review of Neurobiology. 155, 203-234 (2020).
- Baker, D. J., Petersen, R. C. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. Journal of Clinical Investigation. 128 (4), 1208-1216 (2018).
- Musi, N., et al. Tau protein aggregation is associated with cellular senescence in the brain. Aging Cell. 17 (6), 12840(2018).
- Ogrodnik, M., et al. Obesity-induced cellular senescence drives anxiety and impairs neurogenesis. Cell Metabolism. 29 (5), 1061-1077 (2019).
- Chow, H. M., et al. Age-related hyperinsulinemia leads to insulin resistance in neurons and cell-cycle-induced senescence. Nature Neuroscience. 22 (11), 1806-1819 (2019).
- Dehkordi, S. K., et al. Profiling senescent cells in human brains reveals neurons with CDKN2D/p19 and tau neuropathology. Nature Aging. 1, 1107-1116 (2021).
- Chinta, S. J., et al. Cellular senescence is induced by the environmental neurotoxin paraquat and contributes to neuropathology linked to Parkinson's disease. Cell Reports. 22 (4), 930-940 (2018).
- Bussian, T. J., et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline. Nature. 562 (7728), 578-582 (2018).
- Zhang, P., et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nature Neuroscience. 22 (5), 719-728 (2019).
- Selkoe, D. J., Hardy, J. The amyloid hypothesis of Alzheimer's disease at 25 years. EMBO Molecular Medicine. 8 (6), 595-608 (2016).
- Wei, Z., et al. Amyloid beta protein aggravates neuronal senescence and cognitive deficits in 5xfad mouse model of Alzheimer's disease. Chinese Medical Journal (England). 129 (15), 1835-1844 (2016).
- He, N., et al. Amyloid-beta(1-42) oligomer accelerates senescence in adult hippocampal neural stem/progenitor cells via formylpeptide receptor 2. Cell Death & Disease. 4 (11), 924(2013).
- van Dijk, K. D., et al. Changes in endolysosomal enzyme activities in cerebrospinal fluid of patients with Parkinson's disease. Movement Disorders: Offical Journal of Movement Disorder Society. 28 (6), 747-754 (2013).
- Chinta, S. J., et al. Environmental stress, ageing and glial cell senescence: a novel mechanistic link to Parkinson's disease. Journal of Internal Medicine. 273 (5), 429-436 (2013).
- Coppe, J. P., et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor. PLoS Biology. 6 (12), 2853-2868 (2008).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Patholology. 5, 99-118 (2010).
- Acosta, J. C., et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nature Cell Biology. 15 (8), 978-990 (2013).
- Payea, M. J., Anerillas, C., Tharakan, R., Gorospe, M. Translational control during cellular senescence. Molecular and Cellular Biology. 41 (2), 00512(2021).
- Nishimura, K., et al. Perturbation of ribosome biogenesis drives cells into senescence through 5S RNP-mediated p53 activation. Cell Reports. 10 (8), 1310-1323 (2015).
- Lessard, F., et al. Senescence-associated ribosome biogenesis defects contributes to cell cycle arrest through the Rb pathway. Nature Cell Biology. 20 (7), 789-799 (2018).
- Xu, M., et al. Senolytics improve physical function and increase lifespan in old age. Nature Medicine. 24 (8), 1246-1256 (2018).
- Wiley, C. D., et al. SILAC Analysis reveals increased secretion of hemostasis-related factors by senescent cells. Cell Reports. 28 (13), 3329-3337 (2019).
- Schwanhausser, B., et al. Global quantification of mammalian gene expression control. Nature. 473 (7347), 337-342 (2011).
- Doherty, M. K., Hammond, D. E., Clague, M. J., Gaskell, S. J., Beynon, R. J. Turnover of the human proteome: determination of protein intracellular stability by dynamic SILAC. Journal of Proteome Research. 8 (1), 104-112 (2009).
- Riba, A., et al. Protein synthesis rates and ribosome occupancies reveal determinants of translation elongation rates. Proceedings of the National Academy of Sciences of the United States of America. 116 (30), 15023-15032 (2019).
- Mathieson, T., et al. Systematic analysis of protein turnover in primary cells. Nature Communications. 9 (1), 689(2018).
- Liu, T. Y., et al. Time-resolved proteomics extends ribosome profiling-based measurements of protein synthesis dynamics. Cell Systems. 4 (6), 636-644 (2017).
- Welle, K. A., et al. Time-resolved analysis of proteome dynamics by tandem mass tags and stable isotope labeling in cell culture (TMT-SILAC) hyperplexing. Molecular & Cellular Proteomics: MCP. 15 (12), 3551-3563 (2016).
- Neri, F., Basisty, N., Desprez, P. Y., Campisi, J., Schilling, B. Quantitative proteomic analysis of the senescence-associated secretory phenotype by data-independent acquisition. Current Protocols. 1 (2), 32(2021).
- Hernandez-Segura, A., Brandenburg, S., Demaria, M. Induction and validation of cellular senescence in primary human cells. Journal of Visualized Experiments: JoVE. (136), e57782(2018).
- Noren Hooten, N., Evans, M. K. Techniques to Induce and quantify cellular senescence. Journal of Visualized Experiments: JoVE. (123), e55533(2017).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-βgal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Hernandez-Segura, A., Rubingh, R., Demaria, M. Identification of stable senescence-associated reference genes. Aging Cell. 18 (2), 12911(2019).
- MacLean, B., et al. Skyline: an open source document editor for creating and analyzing targeted proteomics experiments. Bioinformatics. 26 (7), 966-968 (2010).
- Pino, L. K., et al. The Skyline ecosystem: Informatics for quantitative mass spectrometry proteomics. Mass Spectrometry Reviews. 39 (3), 229-244 (2020).
- Casella, G., et al. Transcriptome signature of cellular senescence. Nucleic Acids Research. 47 (14), 7294-7305 (2019).
- Basisty, N., et al. A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biology. 18 (1), 3000599(2020).
- Perkins, D. N., Pappin, D. J., Creasy, D. M., Cottrell, J. S. Probability-based protein identification by searching sequence databases using mass spectrometry data. Electrophoresis. 20 (18), 3551-3567 (1999).
- Hernandez-Segura, A., Nehme, J., Demaria, M. Hallmarks of cellular senescence. Trends in Cell Biology. 28 (6), 436-453 (2018).
- Kohli, J., et al. Algorithmic assessment of cellular senescence in experimental and clinical specimens. Nature Protocols. 16 (5), 2471-2498 (2021).
- Hernandez-Segura, A., et al. Unmasking transcriptional heterogeneity in senescent cells. Current Biology: CB. 27 (17), 2652-2660 (2017).
- Swovick, K., et al. Interspecies differences in proteome turnover kinetics are correlated with life spans and energetic demands. Molecular & Cellular Proteomics: MCP. 20, 100041(2021).
- Marescal, O., Cheeseman, I. M. Cellular mechanisms and regulation of quiescence. Developmental Cell. 55 (3), 259-271 (2020).
- Lacorazza, H. D. Cellular Quiescence. , Springer, Humana Press. New York. (2018).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
- Herranz, N., et al. mTOR regulates MAPKAPK2 translation to control the senescence-associated secretory phenotype. Nature Cell Biology. 17 (9), 1205-1217 (2015).
- Laberge, R. M., et al. MTOR regulates the pro-tumorigenic senescence-associated secretory phenotype by promoting IL1A translation. Nature Cell Biology. 17 (8), 1049-1061 (2015).
- Pino, L. K., Baeza, J., Lauman, R., Schilling, B., Garcia, B. A. Improved SILAC quantification with data-independent acquisition to investigate Bortezomib-induced protein degradation. Journal of Proteome Research. 20 (4), 1918-1927 (2021).
- Basisty, N., Meyer, J. G., Schilling, B. Protein turnover in aging and longevity. Proteomics. 18 (5-6), 1700108(2018).
- Basisty, N., Holtz, A., Schilling, B. Accumulation of "Old Proteins" and the critical need for MS-based protein turnover measurements in aging and longevity. Proteomics. 20 (5-6), 1800403(2020).
- Basisty, N., et al. Mitochondrial-targeted catalase is good for the old mouse proteome, but not for the young: 'reverse' antagonistic pleiotropy. Aging Cell. 15 (4), 634-645 (2016).
- Dai, D. F., et al. Altered proteome turnover and remodeling by short-term caloric restriction or rapamycin rejuvenate the aging heart. Aging Cell. 13 (3), 529-539 (2014).
- Karunadharma, P. P., et al. Subacute calorie restriction and rapamycin discordantly alter mouse liver proteome homeostasis and reverse aging effects. Aging Cell. 14 (4), 547-557 (2015).
- Basisty, N. B., et al. Stable isotope labeling reveals novel insights into ubiquitin-mediated protein aggregation with age, calorie restriction, and rapamycin treatment. The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences. 73 (5), 561-570 (2018).
Herprints en machtigingen
