Hier presenteren we een compilatie van testen om de mitochondriale functie in zoogdiercellen direct te meten, onafhankelijk van hun vermogen om moleculaire zuurstof te consumeren.
Methodenartikel
Zuurstofonafhankelijke assays om de mitochondriale functie bij zoogdieren te meten
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
De stroom van elektronen in de mitochondriale elektronentransportketen (ETC) ondersteunt veelzijdige biosynthetische, bio-energetische en signaleringsfuncties in zoogdiercellen. Aangezien zuurstof (O 2) de meest alomtegenwoordige terminale elektronenacceptor is voor de ETC van zoogdieren, wordt de O2-consumptiesnelheid vaak gebruikt als een proxy voor de mitochondriale functie. Opkomend onderzoek toont echter aan dat deze parameter niet altijd indicatief is voor de mitochondriale functie, omdat fumaraat kan worden gebruikt als een alternatieve elektronenacceptor om mitochondriale functies bij hypoxie te ondersteunen. Dit artikel stelt een reeks protocollen samen waarmee onderzoekers de mitochondriale functie onafhankelijk van de O 2-consumptiesnelheid kunnen meten. Deze testen zijn vooral nuttig bij het bestuderen van de mitochondriale functie in hypoxische omgevingen. Specifiek beschrijven we methoden om mitochondriale ATP-productie, de novo pyrimidine biosynthese, NADH-oxidatie door complex I en superoxideproductie te meten. In combinatie met klassieke respirometrie-experimenten zullen deze orthogonale en economische assays onderzoekers een uitgebreidere beoordeling bieden van de mitochondriale functie in hun interessesysteem.
Inleiding
Mitochondriale functie is een kritische metriek van cellulaire gezondheid, omdat het belangrijke biosynthetische, bio-energetische en signaleringsfuncties in zoogdiercellen ondersteunt1. De overgrote meerderheid van mitochondriale functies vereist elektronenstroom door de elektronentransportketen (ETC) en verstoringen in de elektronenstroom in de ETC veroorzaken ernstige mitochondriale ziekte2. De ETC bestaat uit een reeks reductie- en oxidatiereacties (redox) die zijn ingebed in het binnenste mitochondriale membraan, en deze elektronenoverdrachtsreacties geven vrije energie vrij die kan worden gebruikt om ATP-synthese, fysiologische processen zoals thermogenese, biosynthetische routes zoals de novo pyrimidine biosynthese en de balans van de redoxstatus van co-factoren zoals NADH te ondersteunen. ETC-complex I en III produceren reactieve zuurstofsoorten (ROS)3,4,5, die op hun beurt signaalroutes zoals HIF, PI3K, NRF2, NFκB en MAPK 6 reguleren. Bijgevolg worden metrieken van elektronenstroom in de ETC klassiek gebruikt als een proxy voor mitochondriale functie in zoogdiercellen.
Respirometrie-experimenten worden vaak gebruikt om de mitochondriale functie in zoogdiercellen te meten. Aangezien O2 de meest alomtegenwoordige terminale elektronenacceptor is voor het ETC van zoogdieren, wordt de reductie ervan gebruikt als een proxy voor de mitochondriale functie. Opkomend bewijs toont echter aan dat mitochondriën van zoogdieren fumaraat kunnen gebruiken als elektronenacceptor om mitochondriale functies te ondersteunen die afhankelijk zijn van de ETC, waaronder de novo pyrimidine biosynthese 7, NADH-oxidatie7 en de ontgifting van waterstofsulfide8. In bepaalde contexten, vooral in hypoxische omgevingen, geven metingen van de O2-consumptiesnelheid (OCR) dus geen nauwkeurige of nauwkeurige indicatie van de mitochondriale functie.
Hier schetsen we een reeks testen die kunnen worden gebruikt om de mitochondriale functie onafhankelijk van de OCR te meten. We bieden assays om direct complexe I-gemedieerde NADH-oxidatie, dihydroorotaatdehydrogenase-gemedieerde de novo pyrimidine biosynthese, complexe V-afhankelijke ATP-synthese, de netto directionaliteit van het succinaatdehydrogenase (SDH) complex en mitochondriaal afgeleide ROS te meten. Deze testen zijn bedoeld om te worden uitgevoerd op gekweekte zoogdiercellen, hoewel veel kunnen worden aangepast om mitochondriale functies in vivo te bestuderen.Met name de assays beschreven in dit protocol zijn meer directe metingen van mitochondriale functies dan de OCR. Bovendien maken ze het mogelijk om de mitochondriale functie bij hypoxie te meten, een context waarin de OCR geen indicatieve meting is. Samen zullen deze testen, in combinatie met klassieke respirometrie-experimenten, onderzoekers een uitgebreidere beoordeling van de mitochondriale functie in zoogdiercellen bieden.
Protocol
1. Proliferatietests om de activiteit van complexe I-, dihydroorotaatdehydrogenase (DHODH) en complexe V-activiteiten te meten
- Zaaicellen voor proliferatietests
OPMERKING: Dit protocol maakt gebruik van de humane osteosarcoomcellijn 143B die commercieel is gekocht bij ATCC. Deze cellijn werd gebruikt volgens de richtlijnen van ons goedgekeurde Institutional Biosafety Committee (IBC) protocol.- Verwijder de platen uit de weefselkweekincubator. Zuig het medium uit de platen en was met 1x fosfaat gebufferde zoutoplossing (PBS) om overgebleven medium te verwijderen. Zuig de PBS aan en bedek de schaal met 0,05% -0,25% trypsine om de cellen van de onderkant van de plaat op te tillen.
- Wacht 3-5 minuten totdat de trypsine de cellen van de plaat vrijgeeft en blus vervolgens de trypsine met 10 ml van het gewenste groeimedium dat 10% foetaal runderserum (FBS) bevat.
- Verzamel de cellen in een conische buis en centrifugeer gedurende 5 minuten op 1.000 × g om de cellen te pelleteren.
- Zuig het medium uit de buis zonder de pellet te verstoren. Resuspendie van de pellet met volledig medium.
- Tel de cellen en kwantificeer het volume dat nodig is om tussen 10.000 en 25.000 cellen in een 6-well plaat te zaaien.
OPMERKING: Elke cellijn moet worden geoptimaliseerd voor het aantal cellen dat moet worden gezaaid. De ideale samenloop die wordt bereikt is ~10% aan het begin van het experiment en ~80% aan het einde van het experiment. - Pipetteer de cellen in een plaat met 6 putten en voeg 2 ml volledig medium toe aan de putjes. Laat 24 uur zitten voordat u overschakelt naar de experimentele mediumomstandigheden.
OPMERKING: Zaad ten minste drie replicaties per aandoening en voldoende putten om de onbehandelde controleconditie, met remmer behandelde controleconditie, onbehandelde experimentele toestand en met remmer behandelde experimentele toestand te testen.
- Mediumverandering om complexe V-activiteit door proliferatie te beoordelen
OPMERKING: Cellen die zich vermenigvuldigen in een medium met galactose zijn afhankelijk van complexe V-activiteit voor ATP-synthese 9,10. In tegenstelling tot glucose, dat netto twee ATP uit glycolyse oplevert, levert galactose geen op, waardoor de cellen afhankelijk zijn van complexe V voor ATP-synthese (figuur 1). De complexe V-remmer oligomycine wordt gebruikt als controle.- Maak 10 mM glucosehoudend medium (zie tabel 1).
- Maak 10 mM galactosehoudend medium (zie tabel 1).
- Verander het medium in elke put in glucosebevattende DMEM of galactosebevattende DMEM. Voeg 5 μM oligomycine (de complexe V-remmer) toe aan de relevante putten en hetzelfde volume DMSO aan de onbehandelde putten. De oligomycinevoorraad is 10 mM geresuspendeerd in DMSO. Plaats de plaat gedurende 2 dagen terug in de couveuse voor weefselkweek.
- Mediumverandering om complexe I-activiteit te beoordelen door proliferatie
OPMERKING: Cellen die zich vermenigvuldigen in een pyruvaatvrij medium zijn meer afhankelijk van complex I-activiteit11,12. Zonder pyruvaat hebben de gekweekte cellen complex I nodig om het grootste deel van de NADH-reoxidatie terug naar NAD + te vergemakkelijken (figuur 2). De complexe I-remmer rotenon wordt gebruikt als controle.- Maak pyruvaatvrij DMEM-medium aangevuld met 10% FBS en 1% penicilline-streptomycine.
- Maak een 1 M oplossing van pyruvaat (zie tabel 1).
- Verander het medium in elke put in pyruvaatvrij medium of pyruvaathoudend medium. Voeg 2 μM rotenon (de complexe I-remmer) toe aan de behandelde putten en hetzelfde volume DMSO aan de onbehandelde putten. De rotenonvoorraad is 25 mM geresuspendeerd in DMSO. Plaats de plaat gedurende 2 dagen terug in de couveuse voor weefselkweek.
- Mediumverandering om DHODH-activiteit te beoordelen door proliferatie
OPMERKING: Cellen die zich vermenigvuldigen in een uridinevrij medium vereisen dihydroorotaatdehydrogenase (DHODH) activiteit11,12,13. Bij afwezigheid van exogene uridine synthetiseren de gekweekte cellen pyrimidines via de de novo route. De DHODH-remmer brequinar wordt gebruikt als controle.- Maak uridinevrije DMEM aangevuld met 10% FBS en 1% penicilline-streptomycine.
- Maak een uridine-stockoplossing van 10 mg/ml en bereid vervolgens een uridinemedium van 100 μg/ml (zie tabel 1).
- Verander het medium in elke put in uridinevrij medium of uridinehoudend medium. Voeg 5 μM brequinar (de DHODH-remmer) toe aan de behandelde putten en hetzelfde volume DMSO aan de onbehandelde putten. De brequinar stock is 10 mM geresuspendeerd in DMSO. Plaats de plaat gedurende 2 dagen terug in de couveuse voor weefselkweek.
- Het tellen van de cellen voor proliferatietests
- Voor alle experimenten, vul het medium elke 2 dagen aan. Als het medium geel van kleur wordt, verhoogt u de frequentie van de mediumveranderingen. Laat de cellen tot 7 dagen prolifereren en stop het experiment als een van de putten er overwoekerd uit begint te zien. Putten worden als overwoekerd beschouwd wanneer de samenvloeiing meer dan 80% bedraagt.
- Zuig het medium aan, was met 1x PBS en bedek de bodem van de put met 0,25% trypsine (500 μL voor een 6-well dish).
- Wacht 5 minuten totdat de cellen van de schaal zijn opgetild. Controleer dit onder een microscoop.
- Blus de trypsine met 1 ml complete DMEM met 10% FBS.
- Pipetteer op en neer om de celklonten uit elkaar te halen.
- Bereid Coulter-tegenbekers voor door ze elk te vullen met 10 ml isotoonbuffer (één kopje per putje). Tel de cellen op een celteller en noteer de gegevens. Als de uitlezing cellen per milliliter (cellen / ml) is, vermenigvuldigt u de geregistreerde waarde met 1,5 om het totale aantal cellen per put te krijgen.
OPMERKING: Andere celtelmethoden zoals een hemocytometer volstaan als het laboratorium geen Coulter-teller heeft.
2. 13C 4-Aspartaat stabiele isotoop tracing en LC-MS analyse om DHODH activiteit te meten
- 13C 4-aspartaat stabiele isotoop traceren in aanhangende cellen
OPMERKING: DHODH-activiteit kan direct worden gecontroleerd door de opname van 13 C 4-aspartaat in 13C3-UMP te meten. Brequinar wordt gebruikt als controle voor DHODH-activiteit (figuur 3). De resulterende niveaus van 13C3-UMP zijn een maat voor DHODH-activiteit.- Zaai tussen de 250.000 en 500.000 cellen in een schaal met 6 putten om de volgende dag 75% samenvloeiing te bereiken.
- Bereid een stamoplossing van 250 mM 13 C 4-aspartaat en 10 mM 13C4-aspartaatmedium (zie tabel 1).
- Verander het medium in elke put in medium met 10 mM 13C 4-aspartaat. Incubeer gedurende het juiste aantal uren om een steady state te bereiken voor het labelen van de cellen van belang.
OPMERKING: De steady state wordt gedefinieerd als het tijdsbestek waarin het percentage gelabelde metaboliet plateaus in de loop van de tijd14. Voor 143B osteosarcoomcellen bereikt 13C 4-aspartaat een steady state met 8 uur. Het is het beste om dit tijdsbestek voorafgaand aan het experiment te bepalen door een tijdsloopexperiment uit te voeren met de stabiele isotoop van belang.
- Metabolietisolatie uit de aanhangende cellen
- Voordat u begint, bereidt u een emmer droogijs voor en bereidt u 80% HPLC-grade MeOH voor in HPLC-grade water. Koel deze buffer een nacht af in een vriezer van −80 °C of leg hem direct op droogijs.
- Neem één bord tegelijk uit de couveuse, zuig het medium uit de putjes en was 2x met 1x PBS. Verwijder alle resterende PBS uit de putten voordat u doorgaat naar de volgende stap.
OPMERKING: Zorg ervoor dat u de plaat kantelt tijdens de aspiratie en pipet tegen de wand van de schotel om verstoring van de aanhangende cellen te voorkomen. - Plaats de plaat op droogijs en voeg onmiddellijk 800 μL 80% LCMS-grade MeOH in 20% LCMS-grade water toe aan elke put.
- Incubeer de plaat gedurende ten minste 15 minuten in een vriezer van −80 °C om de cellysis te vergemakkelijken.
OPMERKING: Op dit punt kan de volgende plaat uit de couveuse worden gehaald en stappen 2.2.1-2.2.4 worden herhaald. Ga hiermee door totdat alle platen in de vriezer van −80 °C zijn uitgebroed. - Neem één plaat per keer uit de vriezer, schraap elk putje op droogijs met behulp van een cellifter en breng het lysaat over naar een microcentrifugebuis van 1,5 ml. Houd de buis op droogijs tot de volgende stap.
- Draai alle buizen gedurende 10 minuten bij 4 °C en centrifugeer vervolgens gedurende 10 minuten bij 4 °C bij maximale snelheid (ten minste 17.000 × g).
- Breng het supernatant over in een microcentrifugebuis van 1,5 ml en droog in een vacuümconcentrator van 4 °C die is uitgerust met een koudeval van −105 °C op een hoogvacuümstand gedurende ongeveer 6 uur of totdat de monsters zijn verdampt. Zodra het lysaat is gedroogd, bewaart u de metabolietkorrels bij −80 °C totdat u klaar bent om ze voor te bereiden op vloeistofchromatografie in combinatie met massaspectrometrie (LCMS).
- Vloeistofchromatografie-massaspectrometrie (LC-MS) meting van polaire metabolieten
OPMERKING: Elke chromatografische en massaspectrometrieworkflow die de detectie van aspartaat, de tussenproducten in de novo pyrimidine biosynthese en UMP mogelijk maakt, volstaat14.- Bereid de monsters voor op LCMS op ijs door 100 μL water van HPLC-kwaliteit toe te voegen aan de gedroogde pellets en vortex gedurende 10 minuten bij 4 °C.
- Centrifugeer de monsters bij 4 °C gedurende 10 minuten bij maximale snelheid (ten minste 17.000 × g) en verplaats 25 μL in elke LC-MS-injectieflacon.
- Injecteer 2 μL lysaat in het LC-MS-systeem. Een veelgebruikte methodologie wordt hieronder gegeven:
- Bereid mobiele fase A bestaande uit 20 mM ammoniumcarbonaat (LC-MS-kwaliteit) en 0,1% ammoniumhydroxide (LC-MS-kwaliteit) opgelost in water van LC-MS-kwaliteit.
- Kies 100% acetonitril (LC-MS Grade) als mobiele fase B.
- Kies voor de chromatografie een analytische kolom van 5 μm, 150 mm x 2,1 mm uitgerust met een beschermkolom van 2,1 mm x 20 mm voor hydrofiele verbindingen (zie de materiaaltabel). Zet de kolomoven op 25 °C.
- Gebruik de volgende vloeistofchromatografie-instellingen: een constant debiet van 0,15 ml/min; een lineaire gradiënt van 80% naar 20% Mobiele Fase B gedurende 20 min, gevolgd door een lineaire gradiënt van 20% naar 80% Mobiele Fase B gedurende 0,5 min, gevolgd door een hold op 80% Mobiele Fase B gedurende 7,5 min.
- Kies de volgende massaspectrometerinstellingen: een volledige scan tussen m/z 70 Da en 1.000 Da; een resolutie van 70.000; een AGC-doelstelling van 1 × 10⁶; en een maximale injectietijd van 20 ms. Bedien de bron in de polariteitsschakelmodus. Stel de sproeispanning in op 3,0 kV, het verwarmde capillair op 275 °C, de HESI-sonde op 350 °C, de mantelgasstroom op 40 eenheden, de hulpgasstroom op 15 eenheden en de veeggasstroom op 1 eenheid.
- Voer de gegevensanalyse uit met behulp van software die is gekoppeld aan de LCMS-workflow.
OPMERKING: De software die wordt gebruikt met de bovenstaande workflow zijn XCalibur (Thermo) en TraceFinder (Thermo). De belangrijkste overwegingen voor data-analyse worden hieronder beschreven:- Verwachte bewaartijden: Bepaal de retentietijd van elke metaboliet door de normen voor elke metaboliet van belang uit te voeren met behulp van de chromatografische methode voorafgaand aan het experiment.
OPMERKING: De retentietijden van UMP en zijn isotopologen, inclusief 13C 3-UMP, zijn exact hetzelfde. - Verwachte M/Z voor metabolieten: Als een metaboliet ioniseert in de negatieve ionmodus (zoals UMP), bereken dan de verwachte exacte massa met behulp van de molecuulformule van UMP minus een proton [C 9 H14N2O9P]. Voor metabolieten die ioniseren in positieve ionenmodus, berekent u de exacte massa met behulp van de molecuulformule plus een proton.
- Massa nauwkeurigheid: Bij gebruik van een orbitrap massaspectrometer wordt verwacht dat de metaboliet van belang en zijn isotopologen een massanauwkeurigheid ±5 mmu hebben. Gebruik software om dit te berekenen, rekening houdend met de verwachte M/Z en de daadwerkelijk gedetecteerde M/Z.
- Natuurlijke abundantie correctie: Alle traceringsgegevens zullen naar verwachting een natuurlijke abundantiecorrectie ondergaan om rekening te houden met de ~1% 13C en ~0,5% 15 N-isotopen in de natuur 15.
- Verwachte bewaartijden: Bepaal de retentietijd van elke metaboliet door de normen voor elke metaboliet van belang uit te voeren met behulp van de chromatografische methode voorafgaand aan het experiment.
3. 13C5-glutamine stabiele isotoop traceren om SDH-activiteit te meten
- 13C5-glutamine stabiele isotoop tracering in aanhangende cellen
OPMERKING: SDH-activiteit kan direct worden gecontroleerd door de interconversie van bepaalde isotopologen van fumaraat en succinaat te meten op 13C 5-glutaminetracering 7,16,17. De complexe III-remmer antimycine wordt gebruikt als controle om de netto directionaliteit van het SDH-complex te veranderen (figuur 4).- Zaai tussen de 250.000 en 500.000 cellen in een schaal met 6 putten om de volgende dag 75% samenvloeiing te bereiken.
- Maak een bouillon van 50 mM 13C5-glutamine (zie tabel 1).
- Bereid traceermedium dat 2 mM 13C 5-glutamine bevat (zie tabel 1).
- Verander het medium in elke put in een medium dat 2 mM 13C5-glutamine bevat. Incubeer gedurende het juiste aantal uren om een stabiele staat van labeling van de cellen van belang te bereiken (zie de opmerking in stap 2.1.3).
- Isoleer de metabolieten volgens het protocol in stap 2.2.
- Analyseer de voorbeelden op LC-MS volgens de workflow die wordt beschreven in stap 2.3.
- Analyse van de SDH-activiteit op basis van etiketteringspatronen
OPMERKING: De succinaatoxidatieactiviteit van het SDH-complex kan worden gecontroleerd door de verhouding van 13 C 4-fumaraat tot 13 C4-succinaat te beoordelen bij 13C5-glutaminetracering. De fumaraatreductieactiviteit van het SDH-complex kan worden gemonitord door de verhouding van 13 C 3-succinaat tot 13 C 3-fumaraat te beoordelen bij 13C5-glutaminetracering.- Bereken het percentage etikettering van 13 C 3-fumaraat, 13 C 4-fumaraat, 13 C3-succinaat en 13 C4-succinaat. Om bijvoorbeeld het percentage van 13 C 3-fumaraat te bepalen, somt u alle geïntegreerde piekgebieden voor de fumaraatisotopologen op (ongelabeld fumaraat, 13C 1-fumaraat, 13 C2-fumaraat, 13 C 3-fumaraat en 13 C4-fumaraat) en deelt u het piekoppervlak voor 13C 3-fumaraat door het totale isotopogue-gebied. Vermenigvuldig met 100.
- Om de succinaatoxidatie te berekenen, deelt u het percentage 13 C 4-fumaraat door het percentage 13C 4-succinaat.
- Om de fumaraatreductie te berekenen, deelt u het percentage 13 C 3-succinaat door het percentage 13C 3-fumaraat.
4. Directe complexe I-activiteitstest
OPMERKING: DCPIP is een kunstmatige elektronenacceptor; Het verandert in zijn gereduceerde vorm bij het accepteren van elektronen van ubiquinol. In deze test wordt ubiquinon gereduceerd tot ubiquinol via de complexe I-gemedieerde oxidatie van NADH tot NAD +. Het meten van de omzet van geoxideerd DCPIP in deze celvrije test is dus een proxy voor complexe I-activiteit 7,18.
- Zuiveren en kwantificeren van de mitochondriën uit cellen
OPMERKING: Elk mitochondriaal zuiveringsprotocol kan worden gebruikt voor deze test19.- Breid de cellen uit totdat 25-100 miljoen cellen zijn verkregen. Zuig het medium van de vaat, was met 1x PBS, zuig de PBS op en probeer de cellen te spinnen met 0,25% trypsine. Blus de trypsine met kweekmedium en pellet de cellen gedurende 5 minuten op 1.000 × g .
- Was de celpellets 2x in 5 ml 1x PBS en herhaal de centrifugatie op 1.000 × g gedurende 5 minuten om de cellen te pelleteren. Bewaar de gewassen pellets in een vriezer van −20 °C tot mitochondriale zuivering.
OPMERKING: Bevries de celkorrels niet meer dan één keer. - Bereid mitochondriale isolatiebuffer voor (zie tabel 1).
OPMERKING: Natriumbevattende reagentia zoals NaOH mogen niet worden gebruikt om mitochondriale isolatiebuffers te bereiden, omdat natrium het mitochondriale membraanpotentiaal20 aantast en mitochondriale calciumhomeostaseverstoort 21. - Resuspendeerde de celpellets tot 10 miljoen cellen per 1 ml mitochondriale isolatiebuffer. Resuspendeer bijvoorbeeld 100 miljoen gepelletiseerde cellen in 10 ml mitochondriale isolatiebuffer.
OPMERKING: Zorg ervoor dat u de celklonten verstoort zonder bubbels in de buffer te introduceren. - Verplaats 2 ml celsuspensie in een voorgekoelde glazen homogenisator met een werkvolume van 3-8 ml die compatibel is met een Potter-Elvehjem PTFE-stamper. Homogeniseer de cellen met 10-20 slagen en controleer de cellen onder een microscoop om de cellyse tijdens het homogenisatieproces te bevestigen. Verhoog het aantal slagen indien nodig om een efficiënte cellysis te garanderen.
OPMERKING: Als het homogeniseren van de cellen met de bovenstaande methode niet effectief is voor het lyseren van de cellen, schakel dan over op een spuitlysismethode22. - Breng 2 ml van het cellysaat over in een microcentrifugebuis op ijs en herhaal de bovenstaande stappen totdat de hele celsuspensie is gehomogeniseerd.
- Pellet de kernen en celresten gedurende 10 minuten bij 650 × g in een centrifuge van 4 °C.
- Verplaats het supernatant naar een nieuwe buis van 2,0 ml en herhaal de bovenstaande centrifugatie gedurende 10 minuten bij 4 °C bij 650 × g .
- Verplaats het supernatant naar een nieuwe buis van 2,0 ml en pellet de ruwe mitochondriën gedurende 10 minuten op 7.000 × g in een centrifuge van 4 °C.
- Gooi het supernatant weg en resuspensie van de pellet in 1 ml mitochondriale isolatiebuffer. Verplaats 50 μL in een nieuwe buis voor eiwitkwantificering. Herhaal de bovenstaande centrifugatiestap op de twee aliquots van het monster (het monster van 50 μL en het resterende ~950 μL).
- Gooi het supernatant weg en bewaar de pellets in een vriezer van −80 °C totdat ze klaar zijn voor gebruik.
- Voeg 200 μL RIPA-buffer toe aan de pellets van het aliquot van 50 μL om het eiwit te extraheren, vortex gedurende 10 minuten en centrifugeer met 21.000 × g om het eiwit te isoleren. Kwantificeer de hoeveelheid eiwit in het aliquot van 50 μL en gebruik dit getal om het resterende eiwit in het monster van 950 μL te kwantificeren. Als de eiwitkwantificering voor het aliquot van 50 μl bijvoorbeeld 1 μg/μl is, is het totale eiwit in de resterende mitochondriale pellet 950 μg (1 μg/μl × 950 μl).
- Het uitvoeren van de complexe I activiteit assay
OPMERKING: De 143B osteosarcoomcellijn werd gebruikt voor deze test, maar het protocol kan worden aangepast voor alle gekweekte cellen.- Resuspendie gezuiverde mitochondriën in de mitochondriale resuspensiebuffer (zie tabel 1) tot een eindconcentratie van 5 mg eiwit/ml.
- Voer vijf vries-/dooicycli uit in een vriezer van −20 °C om de mitochondriën te permeabiliseren.
- Maak de complexe I-activiteitstestbuffer (zie tabel 1).
- Meng 50 ug van de 5 mg/ml mitochondriale voorraad met 90 μL complexe I-activiteitsbuffer. Bereid vijf onbehandelde replicaties en vijf met rotenon behandelde (5 μM) replicaties voor om te controleren op complexe I-activiteit.
- Lees de basisabsorptie af bij 600 nm in een plaatlezer die is ingesteld op 37 °C.
- Start de reactie door NADH toe te voegen aan een eindconcentratie van 2 mM en volg de absorptie (600 nm) over een periode van 1 uur, waarbij ten minste elke 2 minuten wordt gemeten. De afname van de absorptie is indicatief voor een vermindering van DCPIP via complexe I-activiteit.
OPMERKING: De NADH moet worden toegevoegd met behulp van een meerkanaalspipet om ervoor te zorgen dat alle monsters tegelijkertijd worden gestart.
5. LC-MS-gebaseerde test om de superoxideniveaus te meten
OPMERKING: De fluorescentie-eigenschappen van MitoSox Red kunnen onafhankelijk van de reactie met superoxide23 veranderen. Deze op LC-MS gebaseerde test meet direct het product van superoxide dat reageert met MitoSox Red. De volgende test is enigszins gewijzigd ten opzichte van Xiao et al.24. 2-Hydroxy-mitoethidium (2-OH MitoE2+) is het product van de superoxidereactie (figuur 5). De Caki1-cellijn werd gebruikt voor deze test, maar het protocol kan worden aangepast voor alle gekweekte cellen.
- Behandeling van aanhangende cellen met MitoSox Red
- Zaai tussen de 250.000 en 500.000 cellen in een schaal met 6 putten om de volgende dag 75% samenvloeiing te bereiken. Zorg ervoor dat u een set platen zaait voor de LC-MS-test en een dubbele set platen voor normalisatie van het aantal cellen.
- Bereid volledige DMEM met 10% warmte-geïnactiveerde FBS en 1% penicilline-streptomycine in dulbecco's gemodificeerde Eagle medium.
- Ververs het medium in alle putten voor alle omstandigheden met 2 ml complete DMEM. Zorg ervoor dat u op dit moment medicijnen of behandelingen van belang toevoegt.
- Incubeer de cellen in een weefselkweekincubator gedurende 1 uur.
- Bereid positieve en negatieve controles voor. Bereid een voorraad tert-butylhydroperoxide van 50 mM verdund in PBS en een voorraad N-acetylcysteïne (NAC) van 250 mM verdund in DMSO (zie tabel 1).
OPMERKING: Tertbutylhydroperoxide (tBuOOH) is een krachtige reactieve zuurstofsoort die zal fungeren als een positieve controle en de hoeveelheid van de 2-OH MitoE2 + verhoogt. NAC is een krachtige antioxidant die zal fungeren als een negatieve controle en neutraliseert de superoxide productie veroorzaakt door tBuOOH. - Voeg 1 μL tBuOOH toe aan de positieve controleputten en 1 μL tBuOOH + 100 μL NAC aan de negatieve controleputten.
OPMERKING: Het gebruik van een P2-pipet (0,1-2 μL-bereik) is de optimale manier om 1 μL over te brengen. - Incubeer gedurende 1 uur in een weefselkweekincubator.
- Bereid 1 mM MitoSox Red-bouillon (zie tabel 1) en voeg 2 μL 1 mM MitoSox Red toe aan elke put om een eindconcentratie van 1 μM te bereiken. Incubeer gedurende 30 minuten in een weefselkweekincubator.
- Tel tijdens deze laatste incubatie een van de dubbele platen om de celtellingen te verkrijgen om de uiteindelijke LC-MS-gegevens te normaliseren.
- Isolatie van het geoxideerde Mitosox Red product uit de aanhangende cellen
- Neem een emmer droogijs en plaats koele isopropanol van HPLC-kwaliteit op het droogijs voordat u met de isolatie begint.
- Neem één bord per keer, zuig het medium uit de putjes en was 2x met 1 ml 1x PBS. Zuig alle resterende PBS uit de putten op voordat u doorgaat naar de volgende stap.
OPMERKING: Zorg ervoor dat u de plaat kantelt tijdens de aspiratie en pipet tegen de wand van de schotel om verstoring van de aanhangende cellen te voorkomen. - Plaats de plaat op droogijs en voeg 800 μL isopropanol van HPLC-kwaliteit toe aan elk putje.
- Incubeer de plaat gedurende ten minste 15 minuten in een vriezer van −80 °C om de cellysis te vergemakkelijken.
OPMERKING: Op dit punt kan de volgende plaat uit de couveuse worden gehaald en de stappen 5.2.1-5.2.4 worden herhaald. Ga hiermee door totdat alle platen in de vriezer van −80 °C zijn uitgebroed. - Neem één plaat tegelijk uit de vriezer, schraap elke put op droogijs met behulp van een cellifter en breng het lysaat over naar een microcentrifugebuis van 1,5 ml. Houd de buis op droogijs tot de volgende stap.
- Draai alle buizen gedurende 10 minuten bij 4 °C en centrifugeer vervolgens gedurende 10 minuten bij 4 °C bij maximale snelheid (ten minste 17.000 × g).
- Breng het supernatant over in een microcentrifugebuis van 1,5 ml en droog af in een vacuümconcentrator. Zodra het lysaat is gedroogd, bewaart u de metabolietkorrels bij −80 °C totdat ze klaar zijn voor LC-MS.
- LC-MS meting van MitoSox Red en 2-hydroxy-mitoethidium (2-OH MitoE2+)
- Bereid de monsters voor op LCMS op ijs door 100 μL van een 3:3:1 mengsel van HPLC-kwaliteit MeOH:chloroform:water toe te voegen. Vortex gedurende 10 min bij 4 °C.
- Verplaats 25 μL in elke LC-MS injectieflacon. Bewaar het resterende monster in de vriezer van −80 °C.
- Bereid de volgende vloeistofchromatografiebuffers voor: i) buffer A: water van HPLC-kwaliteit met 0,1% mierenzuur; ii) buffer B: acetonitril van HPLC-kwaliteit met 0,1% mierenzuur.
- Open de Thermo XCalibur Instrument Setup-app om te beginnen met het ontwikkelen van de methode.
- Zoek naar twee vakken in de linkerzijbalk van dit venster - het eerste vak maakt de ontwikkeling van chromatografiemethoden mogelijk en het tweede vak maakt de ontwikkeling van massaspectrometriemethoden mogelijk.
- Ontwikkeling van vloeistofchromatografiemethoden:
- Stel een stroomsnelheid van 0,25 ml /min in en start de methode op 20% B, oplopend tot 95% B over een periode van 12 minuten. Laat buffer B de volgende minuut weer zakken naar 20% B en houd dat niveau de volgende 2 minuten vast.
OPMERKING: De laatste 2 minuten van het debiet bij 20% B is van cruciaal belang om de kolomdruk terug te laten zakken naar de begindruk en om de kolom in evenwicht te brengen met de juiste bufferverhoudingen. Als deze evenwichtsstap niet wordt meegenomen, zullen de retentietijden verschuiven voor alle volgende uitgevoerde monsters.
- Stel een stroomsnelheid van 0,25 ml /min in en start de methode op 20% B, oplopend tot 95% B over een periode van 12 minuten. Laat buffer B de volgende minuut weer zakken naar 20% B en houd dat niveau de volgende 2 minuten vast.
- Maak een Tune-bestand met de volgende parameters:
- Open de Tune-app en maak een nieuw tune-bestand.
- Pas eventuele overlappende instellingen van de module Methode-instelling (zie stap 5.3.9.3) ook toe op dit afstembestand, inclusief het scanbereik, de resolutie, de polariteit, het AGC-doel en de maximale IT.
- Stel het Sheath-gas in op 30, het Aux-gas op 3 en het Sweep-gas op 3. Stel de sproeispanning in op 3 kV, de capillaire temperatuur op 300 en het RF-niveau van de S-lens op 60.
- Ontwikkeling van massaspectrometriemethoden:
- Sleep vanuit de lijst linksonder met potentiële scans Full MS naar het midden van het venster. Zorg ervoor dat u na de drop op het volledige MS-vierkant klikt om de instellingen aan te passen. De totale duur van de MS-methode is 13 min.
OPMERKING: De LC-methode is langer dan de MS-methode omdat de laatste 2 minuten voor kolomreconditionering zijn en niet voor metabolietkwantificering. - Controleer aan de rechterkant van de module onder Eigenschappen van de methode of de duur van de methode en de uitvoeringstijd zijn ingesteld op 13.00 min.
- Voer deze volledige scan uit in de positieve modus met een resolutie van 70.000 en een AGC-doel van 1 × 10⁶. Stel de maximale IT in op 100 ms en het scanbereik van 300 m/z tot 700 m/z.
- Observeer onder Bestanden afstemmen boven aan de module of het tune-bestand dat zojuist is gemaakt, aan deze methode is gekoppeld.
- Sleep vanuit de lijst linksonder met potentiële scans Full MS naar het midden van het venster. Zorg ervoor dat u na de drop op het volledige MS-vierkant klikt om de instellingen aan te passen. De totale duur van de MS-methode is 13 min.
- Voer de methode voor MitoSox Red-detectie uit met 2 μL-monsterinjecties.
Resultaten
De activiteiten van DHODH, complex I en complex V kunnen allemaal worden beoordeeld met behulp van proliferatietests. Bij deprivatie van uridine uit het kweekmedium worden de cellen afhankelijker van de de novo route voor pyrimidine biosynthese. Dus wanneer cellen werden uitgedaagd om te prolifereren in een uridinevrij medium, waren ze gevoeliger voor de remming van DHODH-activiteit door brequinar dan cellen gekweekt in een medium dat uridine bevat (figuur 6A). Evenzo maakt de deprivatie van pyruvaat uit het kweekmedium de cellen afhankelijker van complexe I-activiteit voor proliferatie. Dus wanneer cellen werden uitgedaagd om te prolifereren in een pyruvaatvrij medium, waren ze gevoeliger voor de remming van complexe I-activiteit door rotenon dan cellen gekweekt in een pyruvaatbevattend medium (figuur 6B). Complexe V-activiteit kan worden beoordeeld door cellen uit te dagen om te prolifereren in een medium dat galactose bevat in plaats van glucose. Omdat galactose netto nul ATP oplevert in glycolyse, zijn cellen die in deze brandstof groeien meer afhankelijk van mitochondriale ATP-synthese via complexe V-activiteit. Cellen die zich vermenigvuldigen in een galactosebevattend medium waren dus gevoeliger voor complexe V-remming door oligomycine dan cellen die zich vermenigvuldigen in een glucosebevattend medium (figuur 6C).
SDH-activiteit kan worden gemeten met behulp van 13C 5-glutaminetracering en door de opname ervan in fumaraat- en succinaatisotopologen te monitoren. In met voertuigen behandelde omstandigheden gaf het SDH-complex de voorkeur aan de voorwaartse activiteit en was de opname van 13 C 4-succinaat in 13 C4-fumaraat hoger dan de opname van 13 C 3-fumaraat in 13C 3-succinaat (figuur 7). In met antimycine behandelde omstandigheden gaf het SDH-complex de voorkeur aan de omgekeerde activiteit en de opname van 13 C 3-fumaraat in 13 C3-succinaat was groter dan de opname van 13 C 4-succinaat in 13C 4-fumaraat (figuur 7).
De productie van superoxide in de mitochondriën kan worden gemeten met behulp van de fluorescerende reporter MitoSox, die 2-hydroxy-mitoethidium genereert na reactie met superoxide. In deze studie hadden cellen behandeld met MitoSox in de aanwezigheid van tertbutylwaterstofperoxide hogere niveaus van 2-hydroxy-mitoethidium op een manier die werd onderdrukt door de toevoeging van NAC, een antioxidant die cellulaire ROS dooft (figuur 8).
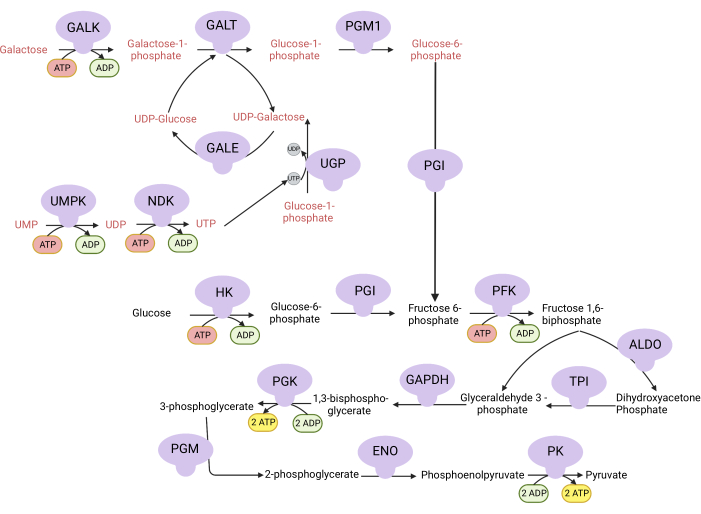
Figuur 1: Mechanistische basis voor de complexe V-proliferatietest. Oxidatie van glucose en galactose via glycolyse. Glucose levert netto twee ATP op uit glycolyse, terwijl galactose netto nul ATP oplevert omdat UTP-synthese vereist is voor UDP-galactose. Cellen gekweekt in galactose zijn dus meer afhankelijk van mitochondriale ATP-synthese vanwege een gebrek aan ATP geproduceerd uit glycolyse. Afkortingen: GALK = galactokinase; GALT = galactose-1-fosfaat uridylyltransferase; PGM1 = fosfoglucomutase 1; GPI = glucose-6-fosfaatisomerase, UGP = UDP-glucosepyrofosforylase; GALE = UDP-galactose-4-epimerase; NDK = nucleotidedifosfaatkinase; UMPK = uridinemonofosfaatkinase; HK = hexokinase; PFK = fosfofructokinase; ALDO = aldolase; TPI = triosefosfaatisomerase; GAPDH = glyceraldehyde-3-fosfaatdehydrogenase; PGK = fosfoglyceraatkinase; PGM = fosfoglucomutase; ENO = enolase; PK = pyruvaatkinase. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Mechanistische basis voor de complexe I proliferatietest. Schema van de metabole routes die worden gewijzigd bij de remming van complexe I-activiteit. In media met een hoog pyruvaatgehalte wordt complexe I-remming omzeild via LDH-gemedieerde NADH-oxidatie. In media met een laag pyruvaatgehalte is deze aanpassing minder haalbaar, waardoor cellen meer afhankelijk zijn van complexe I-activiteit om NADH te reoxideren. Afkortingen: LDH = lactaatdehydrogenase; TCA-cyclus = tricarbonzuurcyclus. Klik hier om een grotere versie van deze figuur te bekijken.
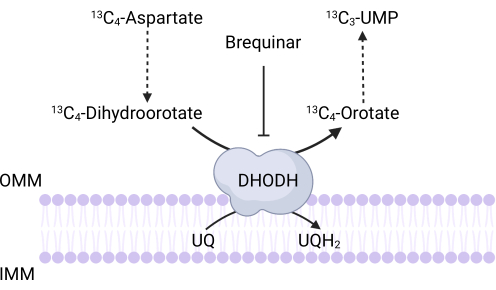
Figuur 3: Schema van de DHODH-reactie op 13C 4-aspartaattracering. Brequinar remt dihydroorotaatoxidatie tot orotaat, waardoor de stroomafwaartse synthese van UMP wordt voorkomen. 13C 4-aspartaat wordt opgenomen in 13C3-UMP via DHODH-activiteit. Afkortingen: OMM = buitenste mitochondriale membraan; IMM = binnenste mitochondriale membraan; DHODH = dihydroorotaatdehydrogenase. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Meten van voorwaartse en omgekeerde complexe II-activiteit via 13C5-glutamine tracing. Om de voorwaartse complexe II-activiteit (links) te meten, wordt de opname van 13 C 5-glutamine in 13 C 4-succinaat en 13C 4-fumaraat gecontroleerd. Om de omgekeerde complexe II-activiteit (rechts) te meten, wordt de opname van 13 C5-glutamine in 13 C 3-succinaat en 13C 3-fumaraat gecontroleerd. Afkortingen: SDH = succinaatdehydrogenase; CytC = cytochroom C. Klik hier om een grotere versie van deze figuur te bekijken.
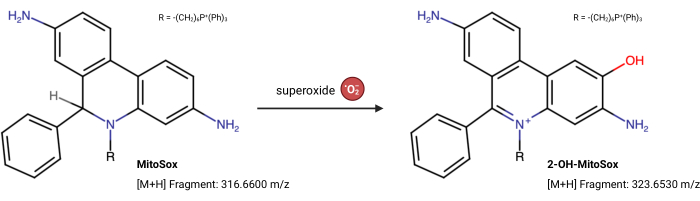
Figuur 5: MitoSox Rode reactie met superoxide. De reactie van MitoSox met mitochondriale superoxiden om 2-OH-MitoE2+ te vormen. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 6: Proliferatie-gebaseerde assays om mitochondriale functie te meten (A) Proliferatie van 143B osteosarcoomcellen behandeld met 5 uM brequinar, een DHODH-remmer, in medium met ±100 ug / ml uridine. De gegevens zijn gemiddeld ± SEM; N = 3 per voorwaarde. (B) Proliferatie van 143B osteosarcoomcellen behandeld met het 2 uM rotenon, een complex I-remmer, in medium met ±5 mM pyruvaat. De gegevens zijn gemiddeld ± SEM; N = 3 per voorwaarde. (C) Proliferatie van 143B osteosarcoomcellen behandeld met de 5 uM oligomycine, een complexe V-remmer, in medium met 10 mM glucose of 10 mM galactose als enige centrale koolstofbron. De gegevens zijn gemiddeld ± SEM; N = 3 per voorwaarde. * geeft p < 0,05 aan met behulp van een eenrichtings ANOVA-test in Graphpad Prism. Klik hier om een grotere versie van deze figuur te bekijken.
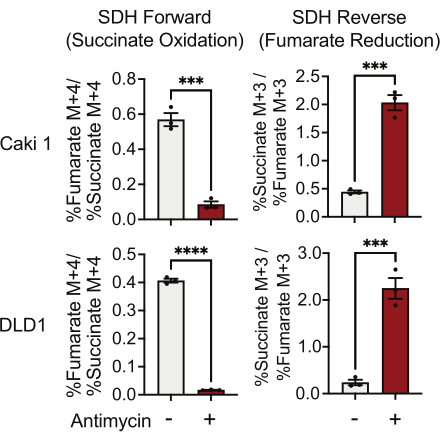
Figuur 7: 13C5-glutamine tracing om complexe II-activiteit te meten. Succinaat oxidatie en fumaraat reductie (SDH reverse) in DMSO en 500 nM antimycine A-behandelde Caki1 en DLD1 cellen. De gegevens vertegenwoordigen het gemiddelde ± SEM; N = 3 per voorwaarde. geeft p < 0,05 aan met behulp van een ongepaarde t-test in GraphPad Prism. Afkortingen: SDH = succinaat oxidatie; SDH reverse = fumaraatreductie. Klik hier om een grotere versie van deze figuur te bekijken.
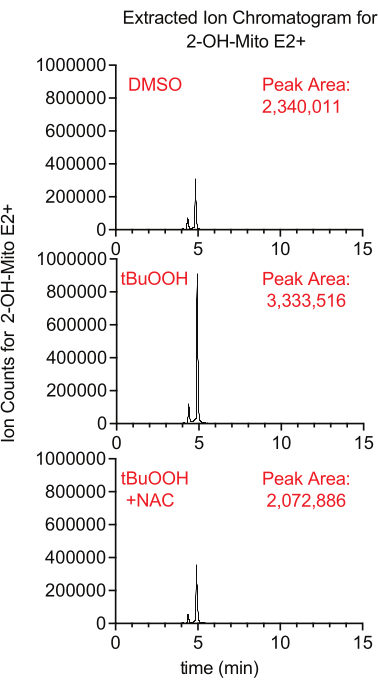
Figuur 8: LCMS-gebaseerde MitoSox-test om superoxide te detecteren. Geëxtraheerd ionchromatogram van 2-OH-Mito E2+ geïsoleerd uit Caki1-cellen behandeld met MitoSox gedurende 30 minuten in aanwezigheid van tBuOOH ± NAC. Afkortingen: LCMS = vloeistofchromatografie-massaspectrometrie; NAC = N-acetylcysteïne. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Samenstelling van reagentia, buffers en media die in dit protocol worden gebruikt. Klik hier om deze tabel te downloaden.
Discussie
Aangezien opkomend onderzoek aantoont dat mitochondriën van zoogdieren kunnen functioneren zonder moleculaire zuurstof te verbruiken, is het van het grootste belang voor onderzoekers om orthogonale assays te gebruiken, naast OCR-metingen, om de mitochondriale functie nauwkeurig te kwantificeren. Hier hebben we een reeks assays samengesteld die kunnen worden gebruikt om de activiteiten van complexe I, complex II, complexe V en DHODH direct te beoordelen door de mitochondriale NAD + / NADH-balans te meten, het gebruik van adaptieve terminale elektronenacceptoren, de productie van ATP, de novo pyrimidine biosynthese en mitochondriale afgeleide ROS. Met name meten deze assays directer de mitochondriale functie dan OCR-metingen. Bovendien bieden deze testen onderzoekers verhandelbare manieren om de mitochondriale functie tijdens hypoxie te kwantificeren, waarvoor OCR-metingen grotendeels irrelevant zijn omdat fumaraat wordt gebruikt als de favoriete terminale elektronenacceptor. Ten slotte zijn de proliferatie-gebaseerde methoden die hier worden beschreven kosteneffectiever dan klassieke respirometrie-experimenten, waardoor ze een breed toegankelijke manier bieden om de mitochondriale functie in zoogdiersystemen te bestuderen.
Er zijn belangrijke overwegingen bij het gebruik van deze testen om de mitochondriale functie in gekweekte cellen te meten. Met betrekking tot de proliferatietests is het belangrijk om het aantal gezaaide cellen aan te passen voor de verdubbelingssnelheid van elke cellijn. De cellen moeten worden gezaaid tot ten minste 10% samenvloeiing en met voldoende ruimte om drie tot vier verdubbelingen mogelijk te maken, zodat verschillen in proliferatie kunnen worden gekwantificeerd. Een andere overweging voor elke test is de concentratie van de kleine moleculen die worden gebruikt als controles voor de activiteiten van elk ETC-complex. Omdat verschillende cellijnen verschillende gevoeligheden voor deze remmers kunnen vertonen, is het van cruciaal belang om de dosis van deze kleine moleculen te testen om de optimale concentratie te bepalen.
Een universele beperking van assays die de mitochondriale functie in vitro bestuderen, inclusief OCR-metingen en alle hier beschreven assays, is de metabole samenstelling van het kweekmedium. Standaard celkweekmedium heeft de neiging om systemen te vertekenen in oppervlakkig hoge niveaus van mitochondriale functie. Suprafysiologische glutamineniveaus verhogen bijvoorbeeld de anaplerose van de TCA-cyclus25, die de mitochondriale NADH-synthese voedt en bijgevolg de oxidatieve fosforylering verhoogt. Evenzo varieert de partiële druk van zuurstof tussen 3 mmHg en 100 mmHg (ongeveer 0,1%-13% O2) in weefsels van zoogdieren, maar is atmosferisch (140 mmHg, ongeveer 21%) in vitro26,27. Deze overmaat O2 maximaliseert de mitochondriale ademhalingscapaciteit en superoxideproductie28. Onlangs zijn er pogingen gedaan om cultuurmedia te ontwerpen om meer fysiologischte zijn 29,30. Met name het kweken van cellen in menselijke plasma-achtige media vermindert de mitochondriale ademhaling in sommige kankercellijnen30, mitochondriale ROS in T-cellen 31 en mitochondriale aanpassingen aan kankertherapieën32. Het is dus van cruciaal belang om rekening te houden met de samenstelling van de gebruikte cultuurmedia en te begrijpen hoe dit de mitochondriale functie kan beïnvloeden.
Een andere belangrijke en universele beperking in de interpretatie van mitochondriale functie is het potentieel voor verschillen in het aantal mitochondriën. Het is daarom van cruciaal belang om het mitochondriale gehalte te meten door middel van de kwantificering van mtDNA33, de meting van mitochondriale massa met membraanpotentiaalongevoelige kleurstoffen34, of western blotting van mitochondriale markers. Dit is een kritische controle, zodat een afname van het aantal mitochondriën niet wordt verward met een afname van de mitochondriale functie.
Er zijn ook specifieke beperkingen en probleemoplossing die van toepassing zijn op de hier beschreven testen. Ten eerste, aangezien gedifferentieerde cellen niet prolifereren, zullen de op proliferatie gebaseerde assays niet nuttig zijn voor het beoordelen van de mitochondriale functie in deze context. Een belangrijke beperking van het 13C 4-aspartaat traceringsprotocol om DHODH-activiteit te meten, is dat de opname van aspartaat in cellen extreem inefficiënt kan zijn35. Om deze potentiële beperking te overwinnen, kunnen onderzoekers de aspartaattransporter, SLC1A3, overexpressie om 13C 4-aspartaatopname35 te vergemakkelijken.
Een beperking van het protocol met behulp van 13C5-glutamine tracing om SDH-activiteit te meten, is dat deze test vereist dat cellen de reductieve carboxyleringsroute gebruiken om de M + 3-isotopologen te verrijken om de omgekeerde activiteit te meten. Sommige cellijnen zijn niet in staat tot reductieve carboxylatieflux als gevolg van lage ATP-citraatlyase-expressie36, onvoldoende HIF-stabilisatie 37 of een α-KG: citraatverhouding die te laag is38. Om deze beperking te overwinnen, zou men 13C 4-aspartaat tracing kunnen gebruiken om de SDH voorwaartse en omgekeerde activiteiten te meten7. In deze test kan de SDH-voorwaartse activiteit worden gemeten aan de hand van de verhouding fumaraat M+2:succinaat M+2 en de omgekeerde reactie door succinaat M+4:fumaraat M+4. Met name omzeilt deze tracering de meeste enzymen in de reductieve carboxyleringsroute.
Een beperking van de complexe I-activiteitstest met DCPIP-reductie als uitlezing is dat de mitochondriën niet structureel intact zijn. Het proces van het bevriezen en ontdooien van de mitochondriën om hun NADH-opname voor de test mogelijk te maken, kan zeker de structurele integriteit van het mitochondriale membraanaantasten 39. Deze test moet parallel worden uitgevoerd met assays zoals de complex I-proliferatietest om ervoor te zorgen dat de waargenomen veranderingen in complexe I-activiteit ook waar zijn met intacte cellen.
In toekomstige studies kunnen sommige van deze technieken worden aangepast voor het meten van mitochondriale functies in vivo met behulp van modelorganismen zoals muizen en Caenorhabditis elegans. De huidige methoden die worden gebruikt om de mitochondriale functie in vivo te meten, zijn gericht op OCR op organismeniveau, met name de ademhalingswisselkoers bij het gebruik van muismodellen. Een duidelijke beperking van deze methode is dat zuurstof veel biochemische en signalerende functies heeft die verder gaan dan zijn rol als alomtegenwoordige terminale elektronenacceptor in het mitochondriale ETC. Zuurstof wordt bijvoorbeeld "verbruikt" door de katalytische activiteit van enzymen in de dioxygenasefamilie. Hoewel deze enzymen bijdragen aan het cellulaire zuurstofverbruik, nemen ze niet deel aan, reguleren of weerspiegelen ze de mitochondriale functie niet. Klassieke respirometrie-experimenten in vitro controleren meestal op "niet-mitochondriale OCR", terwijl organismale respiratoire uitwisselingsratio (RER) -experimenten dit niet kunnen controleren, waardoor de interpretatie van RER als een metriek voor mitochondriale functie in vivo wordt beperkt. Het is echter mogelijk om de protocollen aan te passen om DHODH-activiteit te meten via 13 C 4-aspartaattracering, complexe II-activiteit via 13C5-glutaminetracering, complexe I-activiteit op mitochondriën gezuiverd uit weefsels en mitochondriale ROS met behulp van LC-MS-vriendelijke verbindingen zoals MitoB om de mitochondriale functie in vivo te meten . Deze directe testen om mitochondriale functies te ondervragen, in combinatie met klassieke respirometrie-experimenten, bieden onderzoekers een uitgebreidere en nauwkeurigere beoordeling van de mitochondriale functie in zoogdiercellen en -weefsels.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te melden.
Dankbetuigingen
De figuren die in dit handschrift zijn geproduceerd, zijn met BioRender.com gemaakt. We zijn Amy Walker dankbaar voor het geven van feedback op dit artikel. J.B.S. werd ondersteund door de Worcester Foundation for Biomedical Research Grant.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1.5 mL tube | Cell Treat | 667443 | |
| 2.0 mL tube | Cell Treat | 229446 | |
| 6-well plate | Cell Treat | 229106 | |
| 12-well plate | Cell Treat | 229112 | |
| 13C4-aspartate | Sigma-Aldrich | 604852 | |
| 13C5-Glutamine | Cambridge Isotope Laboratories | 285978-14-5 | |
| 15 mL centrifuge tube | Cell Treat | 667411 | |
| 50 mL centrifuge tube | Cell Treat | 667421 | |
| 150 mm tissue culture dish | Cell Treat | 229651 | |
| 1x Phosphate-buffered saline | Gibco | 10010049 | |
| 2,6-dichlorophenolindophenol | Honeywell | 33125 | |
| Ammonium Carbonate | Sigma-Aldrich | 37999 | |
| Antimycin | Sigma-Aldrich | A8674 | |
| Ascentis Express C18 | Sigma-Aldrich | 53825-U | |
| Bottle top filter 500 mL, 0.22 µm, PES 9 9 mm membrane diameter | Cell Treat | 229717 | |
| Bovine Serum Albumin | Sigma-Aldrich | A3294 | |
| Brequinar | Sigma-Aldrich | SML0113 | |
| Cell Lifter, Double End Flat and Narrow Blade | Cell Treat | 229305 | |
| CentriVap -105 Cold Trap | Labconco | 7385020 | |
| Complete Protease Inhibitor Tablets | Sigma-Aldrich | 4693116001 | |
| Coulter Counter Cups | Fisher Scientific | 07-000-694 | |
| Decylubiquinone | Sigma-Aldrich | D7911 | |
| DMSO | Invitrogen | D12345 | |
| Dulbecco’s Modified Eagle Medium (DMEM) | Gibco | 11995-065 | |
| EDTA | Sigma-Aldrich | E6758 | |
| EGTA | Sigma-Aldrich | E3889 | |
| Eppendorf Centrifuge 5425R | Eppendorf | 2231000908 | |
| Eppendorf Centrifuge 5910 Ri | Eppendorf | 5943000343 | |
| Galactose | Sigma-Aldrich | G5388 | |
| Glucose | Sigma-Aldrich | G7021 | |
| Glucose-free DMEM | Gibco | 11966025 | |
| Glutamine-free DMEM | Thermo Fisher | 11960044 | |
| Heat-Inactivated Fetal Bovine Serum | Sigma-Aldrich | F4135 | |
| Hepes | Sigma-Aldrich | H3375 | |
| HPLC-grade 35% Ammonium hydroxide | Thermo Scientific | 460801000 | |
| HPLC-grade Acetonitrile | Sigma-Aldrich | 900667 | |
| HPLC-grade Chloroform | Sigma-Aldrich | 366927 | |
| HPLC-grade formic acid | Thermo Scientific | 28905 | |
| HPLC-grade Isopropanol | Sigma-Aldrich | 563935 | |
| HPLC-grade MeOH | Sigma-Aldrich | 900688 | |
| HPLC-grade Water | Sigma-Aldrich | 270733 | |
| Human Osteosarcome Cell Line 143B | ATCC | CRL-8303 | |
| Hydrochloric Acid | Sigma-Aldrich | 320331-500ML | |
| Isotone buffer | Beckman Coulter | 8546719 | |
| K2HPO4 | Sigma-Aldrich | P2222 | |
| Mannitol | Sigma-Aldrich | M4125 | |
| MitoSox Red | Invitrogen | M36008 | |
| N-acetyl-L-cysteine | Sigma-Aldrich | A9165 | |
| Oligomycin | Sigma-Aldrich | 75351-5MG | |
| Pencillin Streptomycin | Gibco | 15140-122 | |
| Potter-Elvehjem Tissue Grinder, Size 21 | Kimble | 885502-0021 | |
| Pyruvate | Sigma-Aldrich | P5280 | |
| Pyruvate-free DMEM media | Gibco | 11965175 | |
| Q Exactive Plus Mass Spectrometer | Thermo Scientific | 726030 | |
| ReCO2ver Incubator | Baker | ||
| Refrigerated Centrivap Benchtop Vacuum Concentrator | Labconco | 7310020 | |
| RIPA Buffer | Millipore Sigma | 20188 | |
| Rotenone | Sigma-Aldrich | R8875 | |
| SeQuant ZIC-pHILIC 5μm 150 x 2.1 mm analytical column | Sigma-Aldrich | 1.50460.0001 | |
| SeQuant ZIC-pHILIC guard kit | Millipore Sigma | 1.50438.0001 | |
| Sodium Hydroxide, Pellets | Millipore Sigma | 567530-250GM | |
| Sucrose | Sigma-Aldrich | S0389 | |
| SW, TRACEFINDER 5.1 SP3 | Thermo Scientific | OPTON-31001 | |
| Tert-butyl hydroperoxide solution | Sigma-Aldrich | 458139 | |
| Tris | Sigma-Aldrich | 93352 | |
| Trypsin-EDTA (0.25%), phenol red | Gibco | 25-200-114 | |
| Uridine | Sigma-Aldrich | U3003 | |
| VANQUISH HORIZON / FLEX HPLC | Thermo Scientific | VF-S01-A-02 | |
| Z2 Coulter Particle count and size analyzer | Beckman Coulter | BZ10131270 |
Referenties
- Spinelli, J. B., Haigis, M. C. The multifaceted contributions of mitochondria to cellular metabolism. Nature Cell Biology. 20 (7), 745-754 (2018).
- Gorman, G. S., et al. Mitochondrial diseases. Nature Reviews Disease Primers. 2, 16080(2016).
- Chandel, N. S., et al. Reactive oxygen species generated at mitochondrial complex III stabilize hypoxia-inducible factor-1alpha during hypoxia: A mechanism of O2 sensing. Journal of Biological Chemistry. 275 (33), 25130-25138 (2000).
- Cadenas, E., Boveris, A., Ragan, C. I., Stoppani, A. O. M. Production of superoxide radicals and hydrogen peroxide by NADH-ubiquinone reductase and ubiquinol-cytochrome C reductase from beef-heart mitochondria. Archives of Biochemistry and Biophysics. 180 (2), 248-257 (1977).
- Murphy, M. P. How mitochondria produce reactive oxygen species. Biochemical Journal. 417 (1), 1-13 (2009).
- Schieber, M., Chandel, N. S. ROS function in redox signaling and oxidative stress. Current Biology. 24 (10), 453-462 (2014).
- Spinelli, J. B., et al. Fumarate is a terminal electron acceptor in the mammalian electron transport chain. Science. 374 (6572), 1227-1237 (2021).
- Kumar, R., et al. A redox cycle with complex II prioritizes sulfide quinone oxidoreductase-dependent H(2)S oxidation. Journal of Biological Chemistry. 298 (1), 101435(2022).
- Warburg, O., Geissler, A. W., Lorenz, S. On growth of cancer cells in media in which glucose is replaced by galactose. Hoppe-Seyler's Zeitschrift für Physiologische Chemie. 348 (12), 1686-1687 (1967).
- Marroquin, L. D., Hynes, J., Dykens, J. A., Jamieson, J. D., Will, Y. Circumventing the Crabtree effect: replacing media glucose with galactose increases susceptibility of HepG2 cells to mitochondrial toxicants. Toxicological Sciences. 97 (2), 539-547 (2007).
- Attardi, G., King, M. P. Human cells lacking mtDNA: Repopulation with exogenous mitochondria by complementation. Science. 246 (4929), 500-503 (1989).
- Bodnar, A. G., Cooper, M., Leonard, J. V., Schapira, A. H. Respiratory-deficient human fibroblasts exhibiting defective mitochondrial DNA replication. Biochemical Journal. 305, 817-822 (1995).
- Gregoire, M., Morais, R., Quilliam, M. A., Gravel, D. On auxotrophy for pyrimidines of respiration-deficient chick embryo cells. European Journal of Biochemistry. 142 (1), 49-55 (1984).
- Mackay, G. M., Zheng, L., vanden Broek, N. J., Gottlieb, E. Analysis of cell metabolism using LC-MS and isotope tracers. Methods in Enzymology. 561, 171-196 (2015).
- Heinrich, P., et al. Correcting for natural isotope abundance and tracer impurity in MS-, MS/MS- and high-resolution-multiple-tracer-data from stable isotope labeling experiments with IsoCorrectoR. Scientific Reports. 8 (1), 17910(2018).
- Lee, P., Chandel, N. S., Simon, M. C. Cellular adaptation to hypoxia through hypoxia inducible factors and beyond. Nature Reviews Molecular Cell Biology. 21 (5), 268-283 (2020).
- Bisbach, C. M., et al. Succinate can shuttle reducing power from the hypoxic retina to the O(2)-rich pigment epithelium. Cell Reports. 31 (2), 107606(2020).
- Angebault, C., et al. Idebenone increases mitochondrial complex I activity in fibroblasts from LHON patients while producing contradictory effects on respiration. BMC Research Notes. 4, 557(2011).
- Liao, P. C., Bergamini, C., Fato, R., Pon, L. A., Pallotti, F. Isolation of mitochondria from cells and tissues. Methods in Cell Biology. 155, 3-31 (2020).
- Iwai, T., et al. Sodium accumulation during ischemia induces mitochondrial damage in perfused rat hearts. Cardiovascular Research. 55 (1), 141-149 (2002).
- Murphy, E., Eisner, D. A. Regulation of intracellular and mitochondrial sodium in health and disease. Circulation Research. 104 (3), 292-303 (2009).
- Lampl, T., Crum, J. A., Davis, T. A., Milligan, C., Del Gaizo Moore, V. Isolation and functional analysis of mitochondria from cultured cells and mouse tissue. Journal of Visualized Experiments. (97), e52076(2015).
- Murphy, M. P., et al. Guidelines for measuring reactive oxygen species and oxidative damage in cells and in vivo. Nature Metabolism. 4 (6), 651-662 (2022).
- Xiao, Y., Meierhofer, D. Are hydroethidine-based probes reliable for reactive oxygen species detection. Antioxidants and Redox Signaling. 31 (4), 359-367 (2019).
- DeBerardinis, R. J., et al. Beyond aerobic glycolysis: Transformed cells can engage in glutamine metabolism that exceeds the requirement for protein and nucleotide synthesis. Proceedings of the National Academy of Sciences of the United States of America. 104 (49), 19345-19350 (2007).
- Keeley, T. P., Mann, G. E. Defining physiological normoxia for improved translation of cell physiology to animal models and humans. Physiological Reviews. 99 (1), 161-234 (2019).
- Ast, T., Mootha, V. K. Oxygen and mammalian cell culture: Are we repeating the experiment of Dr. Ox. Nature Metabolism. 1 (9), 858-860 (2019).
- Gu, C., Jun, J. C. Does hypoxia decrease the metabolic rate. Frontiers in Endocrinology. 9, 668(2018).
- Voorde, J., et al. Improving the metabolic fidelity of cancer models with a physiological cell culture medium. Scientific Advances. 5 (1), 7314(2019).
- Cantor, J. R., et al. Physiologic medium rewires cellular metabolism and reveals uric acid as an endogenous inhibitor of UMP synthase. Cell. 169 (2), 258-272 (2017).
- MacPherson, S., et al. Clinically relevant T cell expansion media activate distinct metabolic programs uncoupled from cellular function. Molecular Therapy. Methods and Clinical Development. 24, 380-393 (2022).
- Torres-Quesada, O., Doerrier, C., Strich, S., Gnaiger, E., Stefan, E. Physiological cell culture media tune mitochondrial bioenergetics and drug sensitivity in cancer cell models. Cancers. 14 (16), 3917(2022).
- Chan, S. W., Chen, J. Z. Measuring mtDNA damage using a supercoiling-sensitive qPCR approach. Methods in Molecular Biology. 554, 183-197 (2009).
- Doherty, E., Perl, A. Measurement of mitochondrial mass by flow cytometry during oxidative stress. Reactive Oxygen Species. 4 (10), 275-283 (2017).
- Birsoy, K., et al. An essential role of the mitochondrial electron transport chain in cell proliferation is to enable aspartate synthesis. Cell. 162 (3), 540-551 (2015).
- Beigneux, A. P., et al. ATP-citrate lyase deficiency in the mouse. Journal of Biological Chemistry. 279 (10), 9557-9564 (2004).
- Gameiro, P. A., et al. In vivo HIF-mediated reductive carboxylation is regulated by citrate levels and sensitizes VHL-deficient cells to glutamine deprivation. Cell Metabolism. 17 (3), 372-385 (2013).
- Fendt, S. M., et al. Reductive glutamine metabolism is a function of the alpha-ketoglutarate to citrate ratio in cells. Nature Communications. 4, 2236(2013).
- Lee, C. P. Biochemical studies of isolated mitochondria from normal and diseased tissues. Biochimica et Biophysica Acta. 1271 (1), 21-28 (1995).
Herprints en machtigingen
