Dit manuscript beschrijft een geoptimaliseerd inoculatieprotocol dat gebruik maakt van losse maïsbladomhulsels voor reproduceerbare cytologische, fysiologische en moleculaire studies van maïsinteracties met schimmelpathogenen van planten. De bladomhulsels vergemakkelijken real-time observatie van cellulaire interacties tussen de levende plant en de schimmel in niet-gefixeerde weefsels.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Losse maïsomhulsels voor levende beeldvorming van infectie door schimmelpathogenen van bladmaïs
In dit artikel
Samenvatting
Samenvatting
We hebben een protocol geoptimaliseerd om maïsbladscheden te inoculeren met hemibiotrofe en necrotrofe bladpathogene schimmels. De methode is aangepast ten opzichte van een methode die oorspronkelijk werd toegepast op rijstbladomhulsels en maakt directe microscopische observatie van schimmelgroei en -ontwikkeling in levende plantencellen mogelijk. Bladomhulsels die worden verzameld uit maïszaailingen met twee volledig uitgekomen bladkragen worden geënt met druppels van 20 μl van 5 x 10⁵ sporen/ml schimmelsporensuspensies en geïncubeerd in vochtigheidskamers bij 23 °C onder continu fluorescerend licht. Na 24-72 uur wordt overtollig weefsel verwijderd met een scheermesje om een enkele laag epidermale cellen achter te laten, een optisch helder monster dat direct kan worden afgebeeld zonder de noodzaak van chemische fixatie of opruiming. Planten- en schimmelcellen blijven in leven voor de duur van het experiment en interacties kunnen in realtime worden gevisualiseerd. Omhulsels kunnen worden gekleurd of onderworpen aan plasmolyse om de ontwikkelingscytologie en levensvatbaarheid van gastheer- en pathogene cellen tijdens infectie en kolonisatie te bestuderen. Schimmelstammen die zijn getransformeerd om fluorescerende eiwitten tot expressie te brengen, kunnen op de omhulsels worden geënt of gecoöculeerd voor een betere resolutie en om de evaluatie van competitieve of synergetische interacties te vergemakkelijken. Schimmelstammen die fluorescerende fusie-eiwitten tot expressie brengen, kunnen worden gebruikt om de productie en targeting van deze individuele eiwitten in planta te volgen en te kwantificeren. Geënte schedeweefsels kunnen worden geëxtraheerd om nucleïnezuren, eiwitten of metabolieten te karakteriseren. Het gebruik van deze schedetesten heeft de gedetailleerde studies van de mechanismen van schimmelpathogeniteit in maïs en ook van schimmeleiwiteffectoren en secundaire metabolieten die bijdragen aan pathogeniteit aanzienlijk verbeterd.
Inleiding
Ruimtelijke en temporele analyses op cellulair niveau zijn van cruciaal belang voor het begrijpen van de fysiologie en cytologie van schimmel-plantinteracties. Bladweefsels die chemisch zijn gefixeerd 1,2,3 of zijn opgeruimd en gekleurd4, evenals kunstmatige membranen 5, zijn in het verleden gebruikt om de cytologie van de ontwikkeling van bladpathogenen en plant-schimmelinteracties te onderzoeken. Onderzoek naar infectiegebeurtenissen in levende gastheerweefsels in real-time zonder fixatie of opruiming is echter een uitdaging vanwege technische problemen met betrekking tot de voorbereiding van optisch transparante monsters voor beeldvorming.
Aan het eind van de jaren 1940 werd een losstaand inoculatieprotocol voor bladschede ontwikkeld voor microscopisch onderzoek naar de resistentie van levende epidermale rijstcellen tegen de rijstblastschimmel Magnaporthe oryza6. Meer recentelijk zijn gedetailleerde moleculaire, fysiologische en cytologische waarnemingen van gastheerkolonisatie door Colletotrichum- en Magnaporte-soorten aanzienlijk vergemakkelijkt door gemodificeerde versies van deze bladschedemethode te combineren met schimmeltransformaties die fluorescerende eiwitten tot expressie brengen, en hoogwaardige beeldvormingsprotocollen voor levende cellen, waaronder epifluorescentie en confocale microscopie 7,8,9,10,11,12,13.
Dit artikel beschrijft een geoptimaliseerd inoculatieprotocol met behulp van losse maïsbladomhulsels voor observatie van infectieprocessen door hemibiotrofe en necrotrofe bladschimmelpathogenen. We hebben het specifiek gebruikt om Colletotrichum graminicola (C. graminicola) te bestuderen, de veroorzaker van anthracnose-bladziekte en stengelrot, en Stenocarpella maydis, die Diplodia-bladziekte en stengelrot veroorzaakt. De methode moet echter wel toepasbaar zijn op andere hemibiotrofe en necrotrofe bladschimmelpathogenen. Cytologische en fysiologische reacties tijdens infectie en kolonisatie in deze uitgesneden bladscheden zijn vergelijkbaar met die in hele bladbladen12,14,15. Bovendien is hemibiotrofe kolonisatie van schede-epidermale cellen door C. graminicola vergelijkbaar met kolonisatie van stengelmerg16,17. Losse omhulsels vertonen een grotere synchroniciteit en experimentele reproduceerbaarheid van schimmelpenetratie en kolonisatie dan bladbladen of stengelmerg weefsels14,16,17,18. De meeste maïsrassen kunnen voor dit protocol worden gebruikt. Inteelt of hybriden met overmatige paarse pigmenten in de omhulsels zijn echter minder geschikt omdat de pigmenten de beeldvorming verstoren. Golden Jubilee-suikermaïs is bijzonder nuttig geweest voor onze studies omdat onbehandelde zaden in de handel verkrijgbaar zijn, de planten zeer vatbaar zijn voor veel bladziekten en ze goed groeien in de kas. De eerste epidemieën van anthracnosestengelrot in de Verenigde Staten resulteerden in het totale verlies van suikermaïsoogsten in Indiana in de jaren1970 19,20. Deze inoculatiemethode voor bladschede kan worden toegepast om schimmelgroei en -ontwikkeling in levende versus lokaal gedode plantencellen direct te observeren en te kwantificeren, om resistentiereacties aan te tonen in compatibele/onverenigbare reacties op schimmelinfecties, en om interacties tussen schimmelstammen op dezelfde schede in realtime te testen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
OPMERKING: De workflow voor de methode wordt weergegeven in afbeelding 1.

Figuur 1: Stappen in het geoptimaliseerde inoculatieprotocol met behulp van losse maïsbladscheden. De voorbereiding van sporensuspensie, de inoculatie van de bladschede en de monstervoorbereiding voor levende celmicroscopie worden gemarkeerd in respectievelijk groene (A), paarse (B) en oranje (C) vakken. Gemaakt met BioRender.com. Klik hier om een grotere versie van deze figuur te bekijken.
1. Plantaardig en schimmelmateriaal
- Plantengroei
- Kweek maïszaailingen (zie Materiaaltabel) in de kas (14 uur licht/27 °C en 10 uur donker/22 °C) in SC10-containers (zie Materiaaltabel). Gebruik een groeimedium dat bestaat uit drie delen commerciële potgrond (zie Materiaaltabel) en twee delen met stoom gesteriliseerde bovengrond.
- Geef zaailingen eenmaal per dag, 's ochtends, 2 minuten water met een bovengronds irrigatiesysteem.
- Oogst zaailingen in het V2-stadium door ze op grondniveau af te snijden. De V2-groeifase wordt bereikt wanneer de zaailingen 5 tot 10 cm hoog zijn en twee zichtbare gekraagde bladeren hebben21.
- Wikkel de planten in een vochtige papieren handdoek en doe ze in een plastic zak voor transport naar het laboratorium voor verdere verwerking.
- Schimmel culturen
- Herstel opgeslagen schimmelsilica stockculturen onder aseptische omstandigheden22door ongeveer 50 korrels van het aangetaste silica op een geschikt agarmedium te strooien. Om morfologische veranderingen en verlies van pathogeniteit te voorkomen, verrekt de subcultuur niet meer dan 3x na reactivering. Aardappeldextrose-agar (PDA; zie Materiaaltabel) wordt routinematig gebruikt om C. graminicola te kweken, terwijl havermoutagar (OA; zie Materiaaltabel) wordt gebruikt voor S. maydis.
- Om PDA voor te bereiden voor het kweken van schimmelbestanden, suspendeert u 19,5 g commercieel bereide gedehydrateerde PDA in 500 ml gedeïoniseerd (DI) water. Om OA te maken, kook je 36 g commercieel bereide gedehydrateerde OA gedurende 15-30 minuten in DI-water, filtreer je door drie lagen kaasdoek en breng je het filtraat tot 500 ml met DI-water. Autoclaafmedia om te steriliseren.
- Vul de gesmolten, gekoelde media aan met een geschikt antibioticum (bijv. hygromycine B, geneticine) bij het werken met transformatieve stammen. De uiteindelijke concentraties van hygromycine of geneticine in 500 ml media zijn respectievelijk 250 μg/ml en 100 μg/ml.
- Incubeer culturen onder optimale omstandigheden totdat zich een sporulerend mycelium heeft ontwikkeld. Colletotrichum graminicola en S. maydis groeien goed bij 23 °C met continu fluorescerend licht en luchtvochtigheid. Sporulatie treedt op binnen 7 dagen na inoculatie (dai) voor S. maydis of 14 dai voor C. graminicola.
2. Inentingen op bladschede
- Glaswol filterunit assemblage
- Gebruik een stevige schaar of schaar om de dop en ongeveer 0,5 mm van de conische bodem van een microcentrifugebuis van 1,5 ml af te knippen (zie Materiaaltabel).
- Plaats een stuk glaswol (ongeveer 0,5 cm x 0,5 cm; zie Materiaaltabel) in de gesneden buis om het middelste gat te bedekken, zoals afgebeeld in afbeelding 2.
- Draag handschoenen tijdens het snijden van glaswol, omdat borosilicaatglas irritatie kan veroorzaken.
- Voorbereiding van bladschededragers
- Snijd een niet-gerokte PCR-plaat met 96 putjes (zie de materiaaltabel) in zes steunrekken met twee kolommen (8 x 2 putjes), zoals afgebeeld in figuur 3A.
- Draai de rekken met twee kolommen om zodat de conische bodems van de putten naar boven wijzen en de platte bovenkant naar beneden wijst (Figuur 3B).
- Plaats elke steun in een glazen petrischaal met bevochtigd filtreerpapier en dek deze af met het deksel (zie Materiaaltabel). Deze unit functioneert als een kleine vochtigheidskamer voor de omhulsels.
- Entmateriaal bereiding
- Plaats voor elke schimmelstam een geassembleerde glaswolfiltereenheid in een intacte steriele microcentrifugebuis van 1,5 ml, zoals afgebeeld in figuur 2. Deze laatste functioneert als opvangbuis.
- Label de buizen.
- Oogst conidia uit sporulerende culturen door eerst elke plaat te overspoelen met 3-4 ml steriel DI-water. In sommige gevallen kan meer water nodig zijn om een vloeistoflaag op het oppervlak van de kolonie te produceren. Bevochtigingsmiddelen zijn in dit systeem niet nodig.
- Maak de sporen los van de agar met behulp van een steriele stamper met conische punt (zie Materiaaltabel) om gelijkmatig over de hele plaat te schrapen.
- Breng 1 ml van de sporensuspensie aseptisch aan op een glaswolfiltereenheid en laat de sporen door de zwaartekracht in de verzamelbuis stromen.
- Centrifugeer de verzamelbuisjes met de gefilterde sporensuspensies bij 3.500 x g gedurende 5 minuten. De sporen moeten op de bodem van de microcentrifugebuis worden gepelleteerd.
OPMERKING: Het centrifugeren van C. graminicola-sporen met hogere snelheden dan hier wordt aanbevolen, resulteert in een aanzienlijk verlies aan levensvatbaarheid. - Giet de vloeistof in een autoclaveerbare container, voeg 1 ml steriel DI-water toe en schud voorzichtig om de gepelleteerde sporen te resuspenderen. Centrifugeer zoals beschreven in stap 2.3.6.
- Was de sporen 3x om de conidiale matrix te verwijderen die autoremmers kan bevatten die de kieming of penetratie kunnen verminderen.
- Voeg na de derde wasbeurt 300-500 μL steriel DI-water toe om de sporen te resuspenderen voor kwantificering.
- Gebruik een hemocytometer onder een samengestelde microscoop met een vergroting van 100x om de sporenconcentratie te bepalen. Sporenkleuring is niet nodig voor het tellen.
- Bereid een suspensie van 5 x 10⁵ sporen/ml met steriel DI-water.
OPMERKING: C. graminicola sporensuspensie kan niet langer dan 4 uur bij kamertemperatuur worden bewaard voordat de levensvatbaarheid snel verloren gaat. Het koelen van conidia verhoogt de levensvatbaarheid niet.
- Inentingen in de schede
- Controleer de relevante bioveiligheidspraktijken en -procedures voordat u planten inentt met schimmelstammen.
- Verwijder de schede van het eerste echte blad van V2-zaailingen door een duimnagel langs de overlappende rand van de schede te laten lopen en maak deze voorzichtig los van de scheut. Maak de schede aan beide zijden van de scheut los voordat u deze probeert te verwijderen.
- Snijd de teruggewonnen bladscheden in partjes van 3-5 cm. Het is niet nodig om de omhulsels vóór inoculatie aan het oppervlak te desinfecteren.
- Rol elk segment heel voorzichtig uit om de binnenste (adaxiale) epidermale laag bloot te leggen.
- Terwijl u de omhulsels voorbereidt op inoculatie, houdt u de resterende uitgesneden omhulsels omwikkeld met adamp keukenpapier om uitdroging te voorkomen.
- Plaats 20 μL van de schimmelsporensuspensie op het binnenoppervlak in het midden van het omhulselstuk, direct boven de hoofdnerf, zoals afgebeeld in figuur 4.
- Plaats de geënte bladscheden horizontaal, met de hoofdnerf aan de onderkant, in de steun in een glazen petriplaat met bevochtigd filtreerpapier, zoals afgebeeld in figuur 5.
- Elk rek biedt plaats aan maximaal zeven omhulsels. Inoculeer ten minste vijf omhulsels per stam om het verlies van replicaten te compenseren dat kan optreden tijdens de voorbereiding of incubatie van het monster.
- Plaats de kleine vochtigheidskamers in een doorzichtige opbergdoos bekleed met bevochtigd kiempapier (zie Materiaaltabel).
- Dek de doos af met het deksel. Incubeer de box bij 23 °C met continue verlichting gedurende het beoogde tijdsverloop, dat afhankelijk is van de schimmel en van de schimmelontwikkelingsstadia die in acht worden genomen. Tabel 1 geeft een overzicht van het tijdsverloop van met C. graminicola geïnoculeerde maïsscheden.
- Controleer elke dag op tekenen/symptomen van ziekte op de schedes en houd zowel kiem- als filtreerpapier vochtig. Bladscheden kunnen tot 6 dagen worden vastgehouden zonder duidelijke celdood of -afbraak van planten als er geen inoculatie is.
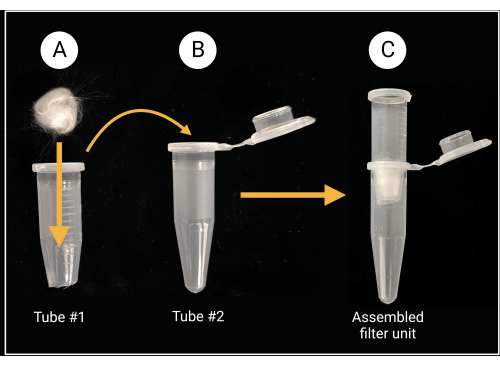
Figuur 2: Voorbereiding van de glaswolfiltereenheid. (A) Een bolletje van glaswol van 0,5 cm x 0,5 cm wordt in microcentrifugebuis 1 geplaatst waarvan de conische bodem is verwijderd. (B-C) De filterbuis wordt vervolgens in microcentrifugebuis 2 geplaatst om een geassembleerde filtereenheid te genereren voor de bereiding van sporensuspensie. Gemaakt met BioRender.com. Klik hier om een grotere versie van deze figuur te bekijken.
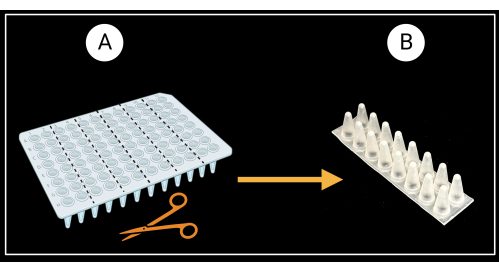
Figuur 3: Methode voor het snijden van een niet-gerokte PCR-plaat met 96 putjes. (A) PCR-plaat gesneden in zes steunrekken, 8 x 2 putjes. Een voorbeeld van een enkele schedesteun is afgebeeld in (B). Bladscheden worden horizontaal op de steun gelegd. Gemaakt met BioRender.com. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Methode voor het inoculeren van de schede. Enkele druppel inoculum rechtstreeks aangebracht op het adaxiale oppervlak van het omhulsel. Klik hier om een grotere versie van deze figuur te bekijken.
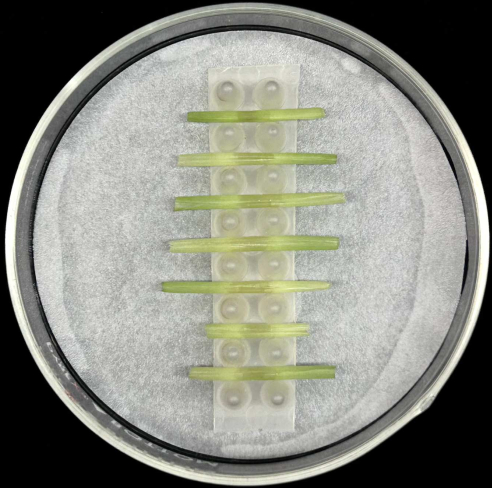
Figuur 5: Incubatiemethode van de schede. Geënte bladscheden die horizontaal in een steunrek in een glazen petriplaat met bevochtigd filtreerpapier zijn geplaatst. Klik hier om een grotere versie van deze figuur te bekijken.
3. Levende celmicroscopie
- Monstervoorbereiding voor microscopie
- Spoel de stukken omhulsel voorzichtig af met steriel DI-water om niet-aangehechte sporen of oppervlakkige schimmelgroei te verwijderen.
- Plaats het omhulsel op een schoon glazen microscoopglaasje (zie Materiaaltabel) met het adaxiale (binnenste) oppervlak van het omhulselstuk naar beneden gericht en het abaxiale (buitenste) oppervlak naar boven.
- Gebruik een nieuw enkelzijdig scheermesje (zie Materiaaltabel) om ongeveer 1 cm van de uiteinden van de schede af te snijden en verwijder het grootste deel van het laminaweefsel aan weerszijden van de hoofdnerf.
- Houd het scheermesje in een hoek van 90° ten opzichte van de schede om weefsel van de abaxiale hoofdnerf te scheren en de epidermale laag op het adaxiale oppervlak boven de geïnoculeerde plek bloot te leggen. Probeer een uniforme dikte aan te houden. Zodra de bladscheden zijn geschoren, wordt verder snoeien niet aanbevolen, omdat dit het monster kan beschadigen.
- Zorg ervoor dat de geschoren delen niet groter zijn dan 1 cm x 1 cm. Druk tijdens dit proces niet op het midden van de schede. Als je werkt met omhulsels die zijn geënt met verschillende sporensuspensies, desinfecteer dan handschoenen en verwissel het scheermesje tussen de monsters.
- Houd een schoon glazen microscoopglaasje bij de hand. Til het omhulselgedeelte van een rand op en breng het voorzichtig over op een nieuwe dia. Het geënte (adaxiale) oppervlak van de schede moet zich naar boven bevinden, het dichtst bij de objectieflens. Monteer secties voorzichtig om schade aan schimmelstructuren te voorkomen.
- Breng 60 μL steriel DI-water aan op de sectie en voeg een glazen dekglaasje van 24 mm x 60 mm toe (zie Materiaaltabel). Doe dit langzaam om luchtbellen te voorkomen.
- Als u klaar bent voor microscopie, sluit u het dekglaasje af met doorzichtige nagellak (zie Materiaaltabel) door een kleine druppel op elke rand te plaatsen en de druppels vervolgens met elkaar te verbinden met een nagellakborsteltje om een naadloze afdichting te maken.
OPMERKING: Dit omhulselprotocol kan worden gebruikt met cytologische kleuringen, bijv. 4′,6-diamidino-2-fenylindool (DAPI), neutraal rood of trypanblauw, of voor observatie van celplasmolyse om de levensvatbaarheid van plantencellen te evalueren. Voor schedekleuring of celplasmolyse-assays mag u het dekglaasje niet verzegelen. - Voeg voor plasmolysetests een hypertone oplossing (0,75 M sucrose of 1 M natriumchloride) toe aan de ene rand van het dekglaasje en gebruik een gevouwen pluisvrij tissuepapier om de oplossing over het monster naar de andere rand van het dekglaasje te trekken. Gebruik voor het kleuren een vergelijkbare methode om de vlekoplossing aan te brengen.
- Breedveldmicroscopie
- Zodra de bladomhulsels op microscoopglaasjes zijn gemonteerd, inspecteert u ze op schimmelkolonisatie met behulp van een breedveldlichtmicroscoop met een vergroting van 400x.
- Om schimmelstructuren in detail te observeren, gebruikt u een onderdompelingsobjectief in water in plaats van olie voor een betere beeldkwaliteit van de monsters. Sferische aberratie als gevolg van een mismatch van de brekingsindex kan beeldverslechtering veroorzaken. Waterobjectieven zijn beschikbaar voor zowel breedveldlichtmicroscopen als confocale microscopen.
- Om de relatieve hoeveelheid kolonisatie per omhulsel te bepalen, telt u het aantal maïscellen dat is binnengedrongen vanaf elke schimmelpenetratieplaats met behulp van een breedveldlichtmicroscoop met een vergroting van 100x. Deze kwantificering is een geschikte screeningsstap voorafgaand aan statistische analyses waarin stammen, behandelingen en/of ontwikkelingsstadia worden vergeleken.
- Confocale laserscanmicroscopie
- Om fluorescerende eiwitten in maïsweefsels te observeren tijdens de ontwikkeling van transgene schimmelstammen, past u de basisparameters voor beeldacquisitie aan. Identificeer de beste excitatie-/emissie-instellingen op basis van de geselecteerde fluorescerende marker.
OPMERKING: Een 60x waterobjectief heeft de voorkeur bij het analyseren van fluorescerende fusies die zijn opgebouwd uit uitgescheiden eiwitten. Moderne confocale microscopen hebben sterk gecorrigeerde onderdompelingsobjectieven in water om artefacten en vormafwijkingen te voorkomen. - Als het de bedoeling is om fluorescerende eiwitten in levende cellen af te beeldvormen, gebruik dan niet-getransformeerde schimmelstammen als controles voor autofluorescentie. Gebruik de volgende beeldacquisitieparameters om de dynamiek van schimmels en gastheren vast te leggen op een omgekeerde confocale microscoop en voor mCherry fluorescerend eiwit. Stel het laservermogen in tot 5%, 450-600 hoogspanning (HV) afhankelijk van het expressieniveau, 1,375 X versterking, 3% offset, een optische zoomfactor van 1 voor de analyse van maximaal vijf maïscellen per sectie en een optische zoomfactor van 2-5 voor individuele hyfen.
OPMERKING: Confocale beelden van de Z-stack met hoge resolutie bieden driedimensionale gegevens en een beter beeld van real-time interacties tussen de gastheer en de ziekteverwekker. - Voor het kwantificeren van fluorescentie-intensiteiten die overeenkomen met uitgescheiden fusie-eiwitten, gebruikt u beeldanalysesoftware van de confocale fabrikant of een beeldverwerkingsprogramma zoals ImageJ, dat gratis online kan worden gedownload. Raadpleeg een handleiding voor meer informatie over het kwantificeren van fluorescentiesignalen.
- Om fluorescerende eiwitten in maïsweefsels te observeren tijdens de ontwikkeling van transgene schimmelstammen, past u de basisparameters voor beeldacquisitie aan. Identificeer de beste excitatie-/emissie-instellingen op basis van de geselecteerde fluorescerende marker.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De onderstaande voorbeelden beschrijven representatieve resultaten na het gebruik van de inoculatiemethode met maïsbladschede. Deze voorbeelden demonstreren het gemak, de snelheid en de precisie waarmee observatie en vergelijking van interacties tussen maïs en schimmel in realtime kan worden bereikt met deze geoptimaliseerde test. Beeldvorming van levende cellen maakt ook de extractie van kwantitatieve informatie mogelijk, wat een nuttig hulpmiddel is voor vergelijkende moleculaire, cytologische en fysiologische studies....
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De geoptimaliseerde inoculatiemethode voor bladschede die hier wordt beschreven, is aangepast van een origineel protocol dat is ontwikkeld voor en is toegepast op rijstbladomhulsels 6,8,36. Het maakt directe, gedetailleerde observaties mogelijk van schimmelgroei en -ontwikkeling in levende plantencellen met breedveld- of confocale microscopie. Het protocol is geschikt voor karakterisering, vergelijking en kwantificering van een ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren dat ze geen concurrerende financiële belangen hebben en niets te onthullen hebben.
Dankbetuigingen
De auteurs bedanken USDA-NIFA voor hun financiële steun (subsidienummers 2018-67013-28489 en 2020-70410-32901). Alle meningen, bevindingen, conclusies of aanbevelingen in dit manuscript zijn uitsluitend die van de auteurs en weerspiegelen niet noodzakelijkerwijs de opvattingen van het Amerikaanse ministerie van landbouw. We danken Science Without Borders-gaststudent uit Brazilië, Mayara de Silva, voor de beelden die in figuur 6A en in figuur 7D te zien zijn. We erkennen ook de afdeling Plantenpathologie van de Universiteit van Kentucky voor het verlenen van toegang tot de confocale microscopen van Olympus.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Axiocam monochrome microscoopcamera | ZEISS | 426560-9010-000 | Compatibel met de Axioplan 2 microscoop; biedt lage read noise en hoge snelheid voor live cel beeldvorming |
| Axioplan 2 epifluorescentie microscoop | ZEISS | N/A | Maakt live bekijken en opnemen van afbeeldingen/video van biologische monsters mogelijk |
| Benchtop centrifuge 24 X 1.5/2 mL | Thermo Fisher Scientific | 75002431 | Sorvall Legend Micro 17; max snelheid: 13.300 rpm (17.000 x g) |
| Falcon bacteriologisch Petri-schaaltje met deksel | Fisher Scientific | 08-757-105 | Polystyreen materiaal; hydrofobe oppervlakte |
| Filterpapier | Fisher Scientific | 09-920-115 | Whatman graad 1 voor vochtige kamers van Petri-schalen |
| FV 3000 laser scanning confocale microscoop | Olympus | N/A | Voor visualisatie van schimmel transformanten |
| Kiempapier | Anchor Paper Co. | SD7615L | 76# zwaar voor vochtige kamers van plastic dozen |
| Glazen Petri-schaaltjes | VWR International | 75845-542 | Type 1 klasse A, 33 expansie borosilicaat glas; complete set (deksel + bodem), voor vochtige kamers van Petri-schalen |
| Glasmatschaarde | Ohio Valley Specialty Chemical | 3350 | Voor glaswol filter eenheden |
| Hemocytometer/Neubauer telkamer en dekglaasje | VWR International | 15170-172 | 0,1 mm kamerdiepte; wordt geleverd met twee 0,4 mm dekglaasjes |
| Microscoopglaasjes | Fisher Scientific | 12-553-457 | Borosilcaat glas; 100/Pk.; 22 mm lengte, 22 mm breedte |
| Maïscultivar Golden Jubilee zaden | West Coast Seeds Ltd., Delta, BC, Canada | CN361 | Volwassen in 95-105 dagen; zaadtype: F1 |
| Microcentrifugebuizen | USA Scientific | 1415-2500 | 1,5 mL capaciteit |
| Microscoopglaasjes | Fisher Scientific | 12-550-123 | Superfrost wit tab glaasje; 76 mm lengte, 25 mm breedte |
| Havertijde Agar (OA) | VWR International | 255210 | Difco Havertijde Agar, BD; 500 g |
| Nagelak | Revlon | 43671 | Doorzichtige nagellak voor het afdichten van microscoopglaasjes; kleur 771 Clear |
| 96-well PCR plaat zonder rand | USA Scientific | 1402-9500 | 100 uL plaatvolume |
| Kolf voor microcentrifugebuizen | USA Scientific | 1415-5390 | Conische punt; polypropyleen materiaal |
| PlanApo 60X/1,00 WLSM water objectief | Olympus | 1-UB933 | Compatibel met de Olympus FV 3000 confocale microscoop |
| Aardappel Dextrose Agar (PDA) | VWR International | 90000-758 | Difco Aardappel Dextrose Media, BD; 500 g |
| Pro-Mix BX | Premium Horticulture Supply Co. | N/A | Premium algemeen gebruiksgroeimedium geformuleerd om een balans van waterretentie en goede afwatering te bieden |
| SC10 kegel-containers | Greenhouse Megastore | CN-SS-SC-10B | 1,5 inch diameter, 8,25 inch diepte en een volume van 164 mL |
| SC10 kegel-containers lade | Greenhouse Megastore | CN-SS-SCTR98 | 24 inch lengte x 12 inch breedte x 6,75 inch hoogte; houdt tot 98 van SC10 kegel-containers |
| Eénzijdige scheermesjes | Thermo Fisher Scientific | 17-989-145 | AccuTec blad; stalen materiaal; 38 mm lengte blad |
| Opbergcontainers/dozen met sluiting | Target | 002-02-0405 | Duidelijke zicht opbergdozen voor vochtige kamer; buitenmaten: 23 5/8 inch x 16 3/8 inch x 6 1/2 inch; 32 qt. capaciteit |
Referenties
- Cheng, Y., Yao, J., Zhang, H., Huang, L., Kang, Z. Cytological and molecular analysis of nonhost resistance in rice to wheat powdery mildew and leaf rust pathogens. Protoplasma. 252 (4), 1167-1179 (2015).
- Hickey, E. L., Coffey, M. D. A fine-structural study of the pea downy mildew fungus Peronospora pisi in its host Pisum sativum. Canadian Journal of Botany. 55 (23), 2845-2858 (1977).
- Wharton, P. S., Julian, A. M., O'Connell, R. J. Ultrastructure of the infection of Sorghum bicolor by Colletotrichum sublineolum. Phytopathology. 91 (2), 149-158 (2001).
- Latunde-Dada, A. O., et al. Infection process and identity of the hemibiotrophic anthracnose fungus (Colletotrichum destructivum O'Gara) from cowpea (Vigna unguiculata (L) Walp.). Mycological Research. 100 (9), 1133-1141 (1996).
- Bourett, T. M., Howard, R. J. In vitro development of penetration structures in the rice blast fungus Magnaporthe grisea. Canadian Journal of Botany. 68 (2), 329-342 (1990).
- Sakamoto, M. On the new method of sheath inoculation of rice plants with blast fungus, Pyricularia oryzae Cav., for the studying of the disease-resistant nature of the plant. Bulletin of the Institute for Agricultural Research, Tōhoku University. 1 (3), 120-129 (1949).
- Buiate, E. A., et al. A comparative genomic analysis of putative pathogenicity genes in the host-specific sibling species Colletotrichum graminicola and Colletotrichum sublineola. BMC genomics. 18 (1), 1-24 (2017).
- Kankanala, P., Czymmek, K., Valent, B. Roles for rice membrane dynamics and plasmodesmata during biotrophic invasion by the blast fungus. The Plant Cell. 19 (2), 706-724 (2007).
- Khang, C. H., et al. Translocation of Magnaporthe oryzae effectors into rice cells and their subsequent cell-to-cell movement. The Plant Cell. 22 (4), 1388-1403 (2010).
- Mosquera, G., Giraldo, M. C., Khang, C. H., Coughlan, S., Valent, B. Interaction transcriptome analysis identifies Magnaporthe oryzae BAS1-4 as biotrophy-associated secreted proteins in rice blast disease. The Plant Cell. 21 (4), 1273-1290 (2009).
- Sakulkoo, W., et al. A single fungal MAP kinase controls plant cell-to-cell invasion by the rice blast fungus. Science. 359 (6382), 1399-1403 (2018).
- Torres, M. F., Cuadros, D. F., Vaillancourt, L. J. Evidence for a diffusible factor that induces susceptibility in the Colletotrichum-maize disease interaction. Molecular Plant Pathology. 15 (1), 80-93 (2014).
- Valent, B., Khang, C. H. Recent advances in rice blast effector research. Current Opinion in Plant Biology. 13 (4), 434-441 (2010).
- Mims, C. W., Vaillancourt, L. J. Ultrastructural characterization of infection and colonization of maize leaves by Colletotrichum graminicola, and by a C. graminicola pathogenicity mutant. Phytopathology. 92 (7), 803-812 (2002).
- Vargas, W. A., et al. Plant defense mechanisms are activated during biotrophic and necrotrophic development of Colletotricum graminicola in maize. Plant Physiology. 158 (3), 1342-1358 (2012).
- Venard, C., Vaillancourt, L. Colonization of fiber cells by Colletotrichum graminicola in wounded maize stalks. Phytopathology. 97 (4), 438-447 (2007).
- Venard, C., Vaillancourt, L. Penetration and colonization of unwounded maize tissues by the maize anthracnose pathogen Colletotrichum graminicola and the related nonpathogen C. sublineolum. Mycologia. 99 (3), 368-377 (2007).
- Berruyer, R., Poussier, S., Kankanala, P., Mosquera, G., Valent, B. Quantitative and qualitative influence of inoculation methods on in planta growth of rice blast fungus. Phytopathology. 96 (4), 346-355 (2006).
- Belisário, R., Robertson, A. E., Vaillancourt, L. J. Maize anthracnose stalk rot in the genomic era. Plant Disease. 106 (9), 2281-2298 (2022).
- Warren, H. L., Nicholson, R. L., Ullstrup, A. J., Sharvelle, E. G. Observations of Colletotrichum graminicola on sweet corn in Indiana. Plant Disease Reporter. 57, 143-144 (1973).
- Ritchie, S. W., Hanway, J. J., Benson, G. O. How a corn plant develops. Special Report, Iowa State University. 48, (1986).
- Tuite, J. Plant pathological methods: fungi and bacteria. , Burgess Publishing Co. (1969).
- Wicklow, D. T., Rogers, K. D., Dowd, P. F., Gloer, J. B. Bioactive metabolites from Stenocarpella maydis, a stalk and ear rot pathogen of maize. Fungal Biology. 115 (2), 133-142 (2011).
- Daudi, A., O'Brien, J. A. Detection of hydrogen peroxide by DAB staining in Arabidopsis leaves. Bio-protocol. 2 (18), e263-e263 (2012).
- Benhamou, R. I., Jaber, Q. Z., Herzog, I. M., Roichman, Y., Fridman, M. Fluorescent tracking of the endoplasmic reticulum in live pathogenic fungal cells. ACS Chemical Biology. 13 (12), 3325-3332 (2018).
- Lorang, J. M., et al. fluorescent protein is lighting up fungal biology. Applied and Environmental Microbiology. 67 (5), 1987-1994 (2001).
- Liu, C. Y., Zhu, J., Xie, Z. Visualizing yeast organelles with fluorescent protein markers. JoVE (Journal of Visualized Experiments). 182, e63846(2022).
- Westermann, B., Neupert, W. Mitochondria-targeted green fluorescent proteins: convenient tools for the study of organelle biogenesis in Saccharomyces cerevisiae. Yeast. 16 (15), 1421-1427 (2000).
- Lee, A. S. The ER chaperone and signaling regulator GRP78/BiP as a monitor of endoplasmic reticulum stress. Methods. 35 (4), 373-381 (2005).
- Krishnakumar, V., et al. A maize database resource that captures tissue-specific and subcellular-localized gene expression, via fluorescent tags and confocal imaging (Maize Cell Genomics Database). Plant and Cell Physiology. 56 (1), e12-e12 (2015).
- Wu, Q., Luo, A., Zadrozny, T., Sylvester, A., Jackson, D. Fluorescent protein marker lines in maize: generation and applications. International Journal of Developmental Biology. 57 (6-7-8), 535-543 (2013).
- O'Connell, R. J., et al. Lifestyle transitions in plant pathogenic Colletotrichum fungi deciphered by genome and transcriptome analyses. Nature Genetics. 44 (9), 1060-1065 (2012).
- Torres, M. F., et al. A Colletotrichum graminicola mutant deficient in the establishment of biotrophy reveals early transcriptional events in the maize anthracnose disease interaction. BMC Genomics. 17 (202), 1-24 (2016).
- Andrie, R. M., Martinez, J. P., Ciuffetti, L. M. Development of ToxA and ToxB promoter-driven fluorescent protein expression vectors for use in filamentous ascomycetes. Mycologia. 97 (5), 1152-1161 (2005).
- Gordon, C. L., et al. Glucoamylase:: green fluorescent protein fusions to monitor protein secretion in Aspergillus niger. Microbiology. 146 (2), 415-426 (2000).
- Koga, H., Dohi, K., Nakayachi, O., Mori, M. A novel inoculation method of Magnaporthe grisea for cytological observation of the infection process using intact leaf sheaths of rice plants. Physiological and Molecular Plant Pathology. 64 (2), 67-72 (2004).
- Xavier, K. V., Pfeiffer, T., Parreira, D. F., Chopra, S., Vaillancourt, L. Aggressiveness of Colletotrichum sublineola strains from Sorghum bicolor and S. halepense to sweet sorghum variety Sugar Drip, and their impact on yield. Plant Disease. 101 (9), 1578-1587 (2017).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
