Dit protocol beschrijft een aanpak voor het uitvoeren van calciumbeeldvorming in met virus geïnfecteerde menselijke darmorganoïden en biedt een benadering voor analyse.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Levende calciumbeeldvorming van met virus geïnfecteerde menselijke darmorganoïde monolagen met behulp van genetisch gecodeerde calciumindicatoren
In dit artikel
Samenvatting
Samenvatting
Calciumsignalering is een integrale regulator van bijna elk weefsel. Binnen het darmepitheel is calcium betrokken bij de regulatie van secretoire activiteit, actinedynamiek, ontstekingsreacties, stamcelproliferatie en vele andere niet-gekarakteriseerde cellulaire functies. Als zodanig kan het in kaart brengen van de dynamiek van calciumsignalering in het darmepitheel inzicht geven in homeostatische cellulaire processen en unieke reacties op verschillende stimuli onthullen. Menselijke darmorganoïden (HIO's) zijn een high-throughput, van mensen afgeleid model om het darmepitheel te bestuderen en vertegenwoordigen dus een nuttig systeem om de calciumdynamiek te onderzoeken. Dit artikel beschrijft een protocol om HIO's stabiel te transduceren met genetisch gecodeerde calciumindicatoren (GECI's), live fluorescentiemicroscopie uit te voeren en beeldvormingsgegevens te analyseren om calciumsignalen zinvol te karakteriseren. Als representatief voorbeeld werden 3-dimensionale HIO's getransduceerd met lentivirus om GCaMP6's stabiel tot expressie te brengen, een op groen fluorescerend eiwit gebaseerde cytosolische GECI. De gemanipuleerde HIO's werden vervolgens gedispergeerd in een eencellige suspensie en gezaaid als monolagen. Na differentiatie werden de HIO-monolagen geïnfecteerd met rotavirus en/of behandeld met geneesmiddelen waarvan bekend is dat ze een calciumrespons stimuleren. Een epifluorescentiemicroscoop uitgerust met een temperatuurgecontroleerde, bevochtigde live-beeldvormingskamer maakte het mogelijk om op lange termijn beeldvorming te maken van geïnfecteerde of met medicijnen behandelde monolagen. Na beeldvorming werden de verkregen beelden geanalyseerd met behulp van de vrij verkrijgbare analysesoftware ImageJ. Over het algemeen brengt dit werk een aanpasbare pijplijn tot stand voor het karakteriseren van cellulaire signalering in HIO's.
Inleiding
Calcium is een wijdverbreide tweede boodschapper die een cruciale rol speelt bij het reguleren van de cellulairefysiologie. Gezien zijn sterke lading, kleine formaat en hoge oplosbaarheid in fysiologische omstandigheden, is calcium een ideale manipulator van eiwitconformatie. Dit maakt calcium een krachtig middel om elektrochemische signalen om te zetten in enzymatische, transcriptionele of post-transcriptionele veranderingen. De strikte calciumconcentratiegradiënten over het endoplasmatisch reticulum (ER) en plasmamembranen creëren een hoge drijvende kracht die snelle veranderingen in de cytosolische calciumconcentratie mogelijk maakt. Meerdere mechanismen, waaronder zowel buffering als actief transport, houden deze gradiënt strak in stand. Hoewel dit onderhoud noodzakelijk is voor normale cellulaire functies, is het energetisch duur, waardoor het bijzonder vatbaar is in stresstoestanden.
Als zodanig is ontregeling van calcium in het cytosol een bijna universeel signaal van vele soorten cellulaire stress. Metabole stoornissen, toxines, ziekteverwekkers, mechanische schade en genetische verstoringen kunnen allemaal de calciumsignalering verstoren. Ongeacht de stimulus kan op het niveau van de hele cel aanhoudende, ongecontroleerde stijgingen van cytosolisch calcium apoptose en uiteindelijk necrose bevorderen 3,4. Veranderingen in cytosolische calciumspiegels met een lagere amplitude of een hogere frequentie hebben echter wisselendeeffecten2. Evenzo kunnen de uitkomsten van calciumfluctuaties verschillen op basis van het ruimtelijke microdomein waarin ze voorkomen5. Het monitoren van calciumspiegels kan dus inzicht bieden in dynamische signaleringsprocessen, maar dit vereist bemonstering met een relatief hoge temporele en ruimtelijke resolutie.
Genetisch gecodeerde calciumindicatoren (GECI's) zijn krachtige instrumenten voor continue bemonstering in levende celsystemen6. Enkele van de meest gebruikte GECI's zijn op GFP gebaseerde calciumresponsieve fluorescerende eiwitten die bekend staan als GCaMPs7. De canonieke GCaMP is een fusie van drie verschillende eiwitdomeinen: een circulair gepermuteerd GFP (cpGFP), calmoduline en M136. Het calmodulinedomein ondergaat een conformatieverandering bij het binden van calcium, waardoor de interactie met M13 mogelijk wordt. De interactie tussen calmoduline en M13 induceert een conformatieverandering in de cpGFP die de fluorescerende emissie bij excitatie verhoogt. Als zodanig correleert een toename van de calciumconcentratie met een toename van de GCaMP-fluorescentie-intensiteit. Deze sensoren kunnen cytosolisch zijn of gericht op specifieke organellen8.
Net als de meeste weefsels reguleert calcium een verscheidenheid aan functies in het gastro-intestinale epitheel. Het darmepitheel is een integraal onderdeel van de opname van voedingsstoffen en vocht, maar moet ook een strakke barrière en immuuninterface vormen om invasie van ziekteverwekkers of toxische beledigingen te voorkomen. Calciumafhankelijke routes beïnvloeden bijna al deze vitale functies 9,10,11. Calciumsignalering in het darmepitheel blijft echter een onderbelichte grens met veelbelovend potentieel als therapeutisch doelwit. Hoewel het monitoren van de calciumdynamiek in het darmepitheel in vivo uitdagingen blijft opleveren, bieden menselijke darmorganoïden (HIO's) een aanpasbaar ex vivo-systeem voor experimenten12. HIO's zijn 3-dimensionale (3D) sferoïden afgeleid van menselijke darmstamcellen en recapituleren bij differentiatie een groot deel van de cellulaire diversiteit van het oorspronkelijke darmepitheel12.
Dit protocol beschrijft uitgebreide methoden om HIO's te ontwikkelen die GECI's tot expressie brengen en vervolgens gemanipuleerde HIO's voor te bereiden als monolagen voor calciumbeeldvorming in levende cellen. Het biedt virale infectie als voorbeeld van een pathologische manipulatie die de calciumsignalering verstoort en biedt een analytische benadering om deze veranderingen te kwantificeren.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle menselijke darmorganoïden (HIO's) die in dit protocol en de representatieve experimenten worden gebruikt, zijn afgeleid van menselijk weefsel dat is verkregen en onderhouden door de Texas Medical Center Digestive Diseases Enteroid Core. Alle monsters werden verzameld in overeenstemming met een protocol dat is goedgekeurd door de Institutional Review Board van het Baylor College of Medicine.
1. Bereiding van materialen en reagentia
- Verzamel voor het onderhoud van organoïden met celkweek behandelde platen met 24 putjes, basaalmembraanmatrix (BMM), conische buisjes van 15 ml en conische buisjes van 1,5 ml.
- Om complete media zonder groeifactoren (CMGF-) te bereiden, voegt u aan 500 ml geavanceerde DMEM F12 5 ml 1M HEPES, 5 ml 100x antibioticum-antimycoticum, 5 ml 100x glutaminesupplement toe.
- Om Wnt-, R-spondin- en Noggin-bevattende (WRNE) media te bereiden, mengt u gelijke delen CMGF- en Wnt-geconditioneerde media, voegt u Noggin-geconditioneerd medium, 10% van het volume, R-spondine-geconditioneerd medium, 20% van het volume, 50 ng/ml menselijke epidermale groeifactor, 10 mM nicotinamide, 10 nM [Leu15]-Gastrin I, 500 nM A-83-01, 10 μM SB202190, 1x B27-supplement, 1x N2-supplement en 1 mM N-acetylcysteïne toe.
- Voor lentivirale transductie, bereid foetaal runderserum (FBS), 0,05% trypsine-EDTA in 1x fosfaatgebufferde zoutoplossing (PBS), CMGF- met 10% FBS, steriel 1x PBS, polybreen, 10 μM Y-27632, lentivirus, hoge Wnt WRNE + 10 μM Y-27632
- Voor het genereren van organoïde monolagen, bereidt u een celkweekglaasje met 10 putjes met glazen bodem, FBS, collageen IV (1 mg/ml in gedeïoniseerd (di)H2O), basaalmembraanmatrix, 0,5 mM EDTA in 1x PBS, 5 mM EDTA in 1x PBS, enzymatische dissociatiebuffer, CMGF- met 10% FBS, WRNE + 10 μM Y-27632.
- Voor virale infectie van organoïde monolagen, bereid trypsine, rotavirusvoorraad, CMGF-, 25G-naald, steriele 1x PBS en fenolroodvrije differentiatiemedia voor.
- Om fenolroodvrije differentiatiemedia te bereiden, neemt u 500 ml fenolroodvrije celkweekmedia, voegt u 5 ml 100x MEM niet-essentiële aminozuren, 5 ml 100x L-glutamine, 5 ml 100 nM natriumpyruvaat en 7,5 ml 1M HEPES toe.
- Voor immunofluorescentiekleuring van organoïden, bereid 4% formaldehyde (16% formaldehyde verdund in 1x PBS), Triton X-100 (0,1% Triton X-100 in 1x PBS), runderserumalbumine (3% runderserumalbumine in 1x PBS), NH4Cl-oplossing (50 mM), DAPI (1 μg/ml DAPI-oplossing in 1x PBS).
2. Organische oïden ontwikkelen om genetisch gecodeerde calciumsensoren tot expressie te brengen
OPMERKING: Dit protocol beschrijft de stappen voor het transduceren van een enkel putje met 3-dimensionale menselijke darmorganoïden geplateerd in 30 μL Basement Membrane Matrix (BMM) op een plaat met 24 putjes13. De meeste lijnen bevatten ongeveer 400.000 cellen per putje. Een tweede, niet-getransduceerde put moet als controle worden opgenomen. Bewaar alle reagentia en celsuspensies op ijs.
- Verwijder na 2-5 dagen na de laatste passage het onderhouds-WRNE-medium uit twee putten met HIO's. Vervang door 300 μL 0,05% trypsine-EDTA per putje en pipetteer voorzichtig 5x op en neer om de BMM van de plaat los te maken. Plaats gedurende 4 minuten in een incubator van 37 °C.
- Voeg 500 μL CMGF- + 10% FBS per putje toe. Smeer een pipetpunt met een lage binding van 1 ml voor met FBS door 1 ml FBS 2x op en neer te pipetteren. FBS kan op meerdere tips worden hergebruikt. Met de voorgecoate punt pipet u de HIO's 10x op en neer.
- Breng de inhoud van elk putje over in zijn eigen voorgecoate microcentrifugebuis van 1,5 ml. Spoel elk putje af met een extra 500 μL CMGF- en voeg het wasgoed toe aan de betreffende buis.
- Centrifugeer de buisjes bij 100 x g in een zwenkbare emmer gedurende 5 minuten bij 4 °C. Verwijder supernatans en eventuele resterende BMM.
- Resuspenderen in 1 ml 1x PBS. Verdeel elk buisje in twee microcentrifugebuisjes voor in totaal 4 buisjes. Centrifugeer de buisjes bij 100 x g gedurende 5 minuten bij 4 °C. Verwijder supernatant.
- Resuspendeer elke buis nog een keer in 1x PBS en centrifugeer gedurende 5 minuten bij 4 °C bij 100 x g .
- Bereid 400 μL transductiemedium en controlemedium (tabel 1). Resuspendeer 2 buisjes in 200 μl van het controlemedium en 2 buisjes in 200 μl van het transductiemedium.
- Incubeer gedurende 24 uur in een celkweekincubator van 37 °C. Resuspendeer door regelmatig op en neer te pipetteren met een gecoate punt (bijv. 2 uur na transductie (hpt), 12 hpt, 18 hpt) om een uniforme transductie te bevorderen.
- Na 24 uur centrifugebuisjes op 100 x g gedurende 5 minuten bij 4 °C. Verwijder supernatant.
- Resuspendeer de pellet in 500 μL of 1x PBS om te wassen. Centrifugeer op 100 x g gedurende 5 minuten bij 4 °C. Verwijder supernatant.
- Gebruik een ijskoude pipetpunt van 200 μl om elk van de 4 pellets te resuspenderen in 30 μL BMM. Pipetteer voorzichtig op en neer om gelijkmatig te verdelen.
- Plaat de inhoud van elke buis in een eigen kuiltje op een plaat met 24 putjes. Incubeer gedurende 10 minuten bij 37 °C om BMM te laten stollen voordat u 500 μL HighWnt WRNE + 10 μM Y-27632 toevoegt.
- Laat de getransduceerde HIO's gedurende 1 week groeien en ververs de media (HighWnt WRNE + 10 μM Y-27632) om de dag. Controleer na 1 week de expressie van de fluorescerende indicator door middel van microscopie. Als het signaal sterk is, begin dan met het selecteren van medicijnen. Als het signaal zwak is, herhaal dan de transductie zoals hierboven beschreven.
- Zodra de lijn tot stand is gebracht, controleert u de functie van de fluorescentie-indicator via een agonistbehandeling. 100nM ADP is een betrouwbare agonist voor GCaMP-validatie. Test 3D-organoïden voor de eerste validatie zoals hieronder beschreven.
- Na een passage leg je een putje (of meerdere) organoïden in BMM op een aparte beeldvormende bodemplaat. Plaats de organoïden op ongeveer 1/3 van de normale dichtheid om overmatige overlapping bij beeldvorming te voorkomen. Ga niet door met het doorgeven van deze HIO's na een behandeling met agonisten, omdat het moeilijk is om steriliteit te garanderen.
- Geef de HIO's 2-3 dagen de tijd om te herstellen na de passage. Schakel voor de beeldvorming de media over op fenolroodvrije differentiatiemedia.
- Gebruik een fluorescentiemicroscoop om de 3 minuten te rennen met beelden die elke 5 s worden verkregen met behulp van 488 nm excitatie en een FITC/GFP-filterset. Voeg na 30 seconden beeldvorming 100 nM ADP of voertuigbesturing toe. Ga door met beeldvorming totdat het signaal terugkeert naar de buurt van de basislijn, ~2 min. Een voorbijgaande, ~2-voudige toename van GCaMP-fluorescentie met ADP-behandeling duidt op succesvolle transductie en biosensorfunctie. Voor een nauwkeurigere schatting van de transductie-efficiëntie, herhaal de agonisttest met beeldvorming met behulp van monolagen die zijn gegenereerd via het proces beschreven in deel 3.
3. Voorbereiding van HIO-monolagen voor live fluorescentiebeeldvorming
- Smeer alle putjes van een 10-well imaging bottom chamber glaasje in met Collagen IV. Meng hiervoor 34 μL 1 mg/ml Collageen IV met 960 μL steriel gedeïoniseerd water. Voeg 95 μL verdunde collageen IV-oplossing toe aan elk putje en incubeer bij 37 °C gedurende 0,5-2 uur.
- Verwijder het WRNE-onderhoudsmedium uit 4 putjes met 3D HIO's. HIO's moeten 5-7 dagen na hun laatste passage zijn.
OPMERKING: 1 plaat met 10 putjes vereist doorgaans ~ 1.25 x 10⁶ cellen. Dit vereist doorgaans 2-4 putjes 3D HIO's die elk in 30 μL BMM zijn geplateerd, maar dit varieert op basis van de dichtheid. - Voeg 500 μL 1x PBS + 0,5 mM EDTA per putje toe. Met een vooraf gecoate tip van 1 ml pipetteer je voorzichtig op en neer om de BMM van de plaat los te maken. Breng de suspensie over naar een voorgecoate conische buis van 15 ml en combineer als putjes in dezelfde buis.
- Spoel elk putje met een extra 500 μL PBS + 0,5 mM EDTA. Centrifugeer op 300 x g gedurende 5 minuten bij 4 °C. Verwijder het supernatans en de resterende BMM.
- Gebruik een voorgecoate punt om de resterende pellet opnieuw te suspenderen in 3 ml PBS + 5 mM EDTA (merk op dat dit 10x meer EDTA is dan de eerste wasbeurt).
- Centrifugeer op 300 x g gedurende 5 minuten bij 4 °C. Verwijder het supernatans en de resterende BMM. Resuspendeer de pellet in 2 ml enzymatische dissociatiebuffer.
- Incubeer in een kraal/waterbad van 37 °C gedurende 5 min. Voeg 3 ml CMGF- + 10% FBS toe en pipetteer voorzichtig om te mengen.
- Centrifugeer op 300 x g gedurende 5 minuten bij 4 °C. Verwijder het supernatant. Voeg 1 ml CMGF-.
- Krachtig op en neer pipetten met een voorgecoate punt 80x-100x om HIO's mechanisch in afzonderlijke cellen te breken. Centrifugeer op 300 x g gedurende 5 minuten bij 4 °C. Verwijder supernatant.
- Resuspenderen in 1 ml WRNE + 10 μM Y-27632. Verkrijg een celgetal voor de suspensie van 1 ml.
- Verdun de celsuspensie met WRNE + 10 μM Y-27632 tot een concentratie van 1,25 x 10⁵ cellen/100 μl (1,25 x 10⁶ cellen/ml).
- Verwijder met een pipet van 200 μl de collageenoplossing van de plaat die in stap 1 is voorbereid, aangezien het collageen nu op de bodem van het putje is neergedaald. Raak de bodem van het putje niet aan met de pipetpunt.
- Voeg met behulp van een vooraf gecoate pipetpunt van 200 μl 100 μl van de celoplossing uit stap 3.11 (1,25 x 10⁵ cellen) per putje toe.
- Incubeer gedurende 24 uur in een celkweekincubator van 37 °C. Verwijder na 24 uur het kweekmedium uit alle putjes en vervang het door 100 μL differentiatiemedium per putje.
NOTITIE: Op dit punt zouden de cellen aan de plaat moeten hechten. Merk op dat de monolaag waarschijnlijk niet confluent of volledig vlak zal zijn. - Plaats het glaasje terug in de celkweekincubator van 37 °C. Ververs het differentiatiemedium elke 24 uur totdat de monolaag samenvloeit. Dit duurt meestal 3-5 dagen vanaf het plateren. Na dit punt zijn de monolagen klaar voor downstream-toepassingen.
4. Virale infectie van HIO-monolagen
- Bereid het virusinoculum voor. Indien nodig activeert trypsine de virusvoorraad. Voeg voor rotavirus 10 μg/ml Worthington's Trypsine toe aan de virusvoorraden en incubeer gedurende 1 uur bij 37 °C.
- Verdun de geactiveerde virusvoorraad met behulp van een van de twee volgende methoden.
- Als u streeft naar het maximale aantal geïnfecteerde cellen met slechts één virusstam, meng dan 50 μL van de geactiveerde virale voorraad met 50 μL CMGF-.
- Als u meerdere stammen vergelijkt, bereid de inocula dan voor om equivalente multipliciteiten van infectie (MOI's) te bereiken. Gebruik de volgende formule om het volume virusvoorraad per putje te bepalen dat nodig is voor het gewenste MOI. Voeg CMGF- toe aan het volume van de virusvoorraad dat is berekend om een eindvolume van 100 μL per putje te bereiken.
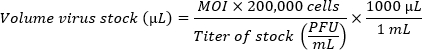
OPMERKING: Een enkele HIO-monolaag geplateerd in een put met een diameter van 5.46 mm (plaat met 96 putjes) bevat ongeveer 200.000 cellen. Vanwege de slechte efficiëntie van infectie in monolagen, heeft een hoge MOI (100-1 miljoen virale deeltjes per cel) de voorkeur. Het optimale MOI moet empirisch worden bepaald.
- Infecteer de monolagen door de media voorzichtig uit de HIO-monolaag te verwijderen met behulp van een pipet van 200 ml. Vervang door 100 ml virusinoculum of nep-inoculum.
- Aangezien de meeste rotavirusvoorraden worden vermeerderd in MA104-cellen, moet u een niet-geïnfecteerd MA104-cellysaat gebruiken voor het nep-inoculum. Gebruik een volume dat gelijk is aan het volume virusvoorraad dat wordt gebruikt voor de geïnfecteerde putjes en voeg CMGF- toe voor een eindvolume van 100 ml per putje.
- Voor virussen die cellen basolateraal infecteren, zoals rotavirus14, gebruikt u een naald van 25G om de monolaag te scoren. Het is het gemakkelijkst om een enkele inkerf te maken over de lengte van de monolaag, van de onderkant naar de bovenkant van de put. Druk de naald voorzichtig schuin in de monolaag met de schuine kant naar boven, tegengesteld aan de bewegingsrichting, en sleep deze over de lengte van de monolaag om een litteken te creëren (Figuur 2A).
- Incubeer gedurende 2 uur in een incubator van 37 °C. Verwijder het virus en maak het inoculum na. Was monolagen één keer met 1x PBS.
- Voeg 100 μL fenolroodvrije differentiatiemedia toe. Plaats het glaasje in een incubator van 37 °C totdat het klaar is om te fotograferen. Het optimale beeldvormingsvenster zal variëren op basis van de kinetiek van de virale infectie. Voor rotavirus, begin met beeldvorming 6-8 uur na infectie.
- Verdun de geactiveerde virusvoorraad met behulp van een van de twee volgende methoden.
5. Ca2+ Beeldvorming van geïnfecteerde monolagen
- Verwarm de stage-top incubator voor op 37 °C. Laat bevochtigde CO2 draaien met 0,02 l/min. Plaats de schuif met de geïnfecteerde monolagen in de couveusekamer en sluit het deksel.
- Selecteer met behulp van helderveldverlichting (BF) en een 20x-objectief de X- en Y-coördinaten van de gezichtsvelden binnen de monolaag die wordt afgebeeld. Het is het beste om punten te selecteren met het gescoorde gebied in beeld, aangezien de meeste geïnfecteerde cellen zich in de buurt van de kras zullen bevinden.
- Optimaliseer beeldvormingsparameters en verkrijg een beeld met behulp van 488 nm excitatie. Om fototoxiciteit te minimaliseren, stelt u de lichtbron in op 50% vermogen met een belichtingstijd van 50 ms. De juiste acquisitieparameters kunnen variëren en moeten worden geoptimaliseerd door meerdere acquisities te verwerven. Zorg ervoor dat er geen pixels verzadigd zijn. Pas de belichtingstijd en het lichtvermogen naar behoefte aan om ervoor te zorgen dat het volledige dynamische bereik van de fluorescerende calciumsensor kan worden gedetecteerd.
- Als u andere fluoroforen gebruikt (bijv. fluorescerend gelabelde virussen), herhaal dan de optimalisatie op deze kanalen. Stel de beeldvormingslus in en verkrijg een beeld van 488 nm bij elke geselecteerde X-, Y-coördinaat in een lus van 1 minuut. Stel je deze lus continu voor. Als u een fluorescerend gelabeld virus gebruikt, verwerf dan elke 10elus een afbeelding op het juiste kanaal (d.w.z. 1 afbeelding/10 min).
- Verzamel afbeeldingen voor ~18 uur. Als u virussen zonder fluorescerende tags gebruikt, fixeer dan monolagen en voer immunofluorescentiekleuring uit om geïnfecteerde cellen te identificeren. Voer dit uit na het voltooien van de beeldvormingsrun zoals hieronder beschreven.
- Verwijder beeldvormingsmedia en vervang door 100 μL 4% formaldehyde in 1x PBS. Incubeer 30 minuten bij kamertemperatuur.
- Verwijder het fixeermiddel en blus af met 100 μL 50mM NH4Cl gedurende 10 min. Verwijder NH4Cl. Permeabiliseer de monolagen met 100 μL 0,1% Triton X-100 in 1x PBS gedurende 1 uur bij kamertemperatuur of 's nachts bij 4 °C.
- Verwijder de permeabilisatiebuffer. Blok met 100 μL 3% runderserumalbumine in 1x PBS gedurende 1 uur.
- Verwijder de blokkerende oplossing. Voeg primaire antilichamen verdund toe tot de aanbevolen/geoptimaliseerde concentratie in 1x PBS. Voeg 100 μL antilichaamoplossing per putje toe.
- Incubeer een nacht bij 4 °C met zacht schommelen. Verwijder primaire antilichamen. 3x wassen met 1x PBS.
- Voeg fluorescerend geconjugeerde secundaire antilichamen verdund toe tot de aanbevolen/geoptimaliseerde concentratie in 1x PBS. Voeg 100 μL per putje toe. Incubeer gedurende 2 uur bij kamertemperatuur.
OPMERKING: FPBase15 is een geweldige bron om te helpen bij het selecteren van secondaries die doorbloeding bij multiplexing voorkomen. De meeste secondaries zijn effectief bij een verdunning van 1:1000 in 1x PBS. - Verwijder secundaire antilichamen. Maak een DAPI-oplossing van 1 μg/ml in 1x PBS en voeg 100 μl per putje toe. Incubeer gedurende 20 min. Verwijder DAPI. 3x wassen met 1x PBS.
- Bewaar vaste monolagen in 100 μL 1x PBS voor beeldvorming. Plaats het objectglaasje terug op de microscooptafel, herlaad de X- en Y-coördinaten van de live beeldvormingsrun en maak een beeld van elk multipunt op het kanaal dat overeenkomt met het secundaire antilichaam dat werd gebruikt voor de kleuring. Verwijs naar de beelden van de live beeldvormingsrun om ervoor te zorgen dat dezelfde punten worden vastgelegd.
6. Kwantificering van intercellulaire calciumgolven
- Zorg ervoor dat Fiji Just ImageJ (FIJI) is geïnstalleerd met de volgende plug-ins: Bio-Formats (moet vooraf zijn geïnstalleerd in FIJI, maar zal niet in ImageJ zijn); Kookboek: Om te installeren, gaat u vanuit het FIJI-menu naar Help > Updates > Updatesites beheren. Bekijk het kookboek. Start FIJI opnieuw.
- Splits het gegevensbestand van de live imaging run in meerdere bestanden, waarbij elke X-, Y-coördinaat wordt gescheiden. Selecteer in Nikon NES Elements de optie Bestand > Importeren/Exporteren > Multipoints splitsen. Selecteer een map om te exporteren en een geschikt voorvoegsel.
- FIJI openen. Laad een enkel bestand vanuit de gesplitste multipunten. Als u een afbeelding met meerdere kanalen gebruikt, splitst u de kanalen. Selecteer het venster met de beelden van het 488 nm-kanaal (GCaMP).
- Voer de functie DeltaF Up uit om de verandering in elke pixelwaarde van het ene tijdstip naar het andere te bepalen. Selecteer hiervoor Kookboek > T-functies > Delta F Up.
- Blader door de stapel totdat een afbeelding met een calciumgolf is gevonden. Met de calciumgolf in beeld, stelt u een drempelwaarde in door te klikken op Afbeelding > > drempel aanpassen. Pas de ondergrens aan om de hoeveelheid signaal te minimaliseren die geen deel uitmaakt van de golf die de drempel overschrijdt. Voor 16-bits afbeeldingen die zijn verkregen met behulp van de hierboven beschreven parameters, begint u met een lagere drempel van 600 en past u deze indien nodig aan.
- Voer de deeltjesanalysator uit om golven te segmenteren door te klikken op Analyseren > Deeltjes analyseren. Stel de minimale golfgrootte in μm2 in door het bereik aan te passen. Het is ingesteld op 0-oneindig bij baseline. Voor beelden van MA104-cellen die zijn verkregen met een 20x-objectief, begint u met het verhogen van de ondergrens tot 10.000μm2 en past u deze zo nodig aan.
- Vink de vakjes aan voor Resultaten weergeven en Resultaten wissen. Selecteer in het vervolgkeuzemenu 'Weergeven' de optie Contouren en klik vervolgens op OK. Dit zou moeten resulteren in 2 uitgangen: Eén venster, Resultaten, geeft een overzicht van elke gedetecteerde golf, het gebied van de golf en de gemiddelde, minimale en maximale intensiteitswaarden (gebaseerd op delta F). Het andere venster, getiteld Tekening van [bestandsnaam], bevat een nieuwe stapel met de contouren van gesegmenteerde golven. Gebruik dit om de golfdetectie te verifiëren. Pas indien nodig de drempelwaarden en het groottebereik aan en controleer de wave-oproepen opnieuw.
- Gebruik voor batchverwerking het meegeleverde macroscript (Supplementary Coding File 1). Volg de onderstaande stappen om hiervan gebruik te maken.
- Splits multi-points op in enkele bestanden zoals beschreven in stap 6.2. FIJI openen. Selecteer Verwerken > Batch > macro. Geef in het vak "invoer" de kaart op aan de map met de gesplitste multipoint-bestanden. Laat het vak "uitvoer" leeg.
- Plak het script van aanvullend coderingsbestand 1 in het vak. Pas de intensiteitsdrempel en groottedrempel in het script aan om de geoptimaliseerde parameters uit stap 6.5 en 6.6 weer te geven.
- Klik op Verwerken. Afhankelijk van het aantal multipoints en de verwerkingssnelheid van de computer kan het 30 minuten of langer duren om alle beelden te verwerken. Eenmaal voltooid, worden de gegevens geschreven in een nieuw spreadsheetbestand met de naam "Hernoem mij na schrijven" op het bureaublad. Het uitvoerbestand moet voor elk multipoint een aantal golven en golfstatistieken bevatten (oppervlakte, gemiddelde intensiteit, minimale en maximale intensiteit en intensiteitsdichtheid).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Figuur 1A toont een BMM-koepel met daarin 3-dimensionale menselijke darmorganoïden die zijn getransduceerd om GCaMP6's stabiel tot expressie te brengen. Figuur 1B toont dezelfde lijn organoïde die 24, 48 en 72 uur na het zaaien opnieuw is geplateerd als een monolaag. Om de functie van GCaMP6's te valideren, werd de monolaag gedurende 4 minuten om de 2 seconden afgebeeld met fluorescentiemicroscopie, en na ~20 s werd 100 nM ADP aan de media toegevoegd. ADP lokt c...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Veranderingen in cytosolischeCa 2+-spiegels kunnen zowel een oorzaak als een gevolg zijn van pathologieën in het epitheel 10,16,17. Verhogingen van cytosolisch calcium kunnen de secretie rechtstreeks stimuleren via activering van het calciumafhankelijke chloridekanaal TMEM16A18,19. Activering van TMEM16A als reactie op Ca2+ zorgt voor de apicale uit...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen tegenstrijdige financiële belangen om bekend te maken.
Dankbetuigingen
Dit werk werd ondersteund door subsidies R01DK115507 en R01AI158683 (PI: J. M. Hyser) van de National Institutes of Health (NIH). Ondersteuning voor stagiairs werd geboden door NIH-beurzen F30DK131828 (PI: J.T. Gebert), F31DK132942 (PI: F.J. Scribano) en F32DK130288 (PI: K.A. Engevik). We willen het Texas Medical Center Digestive Diseases Enteroid Core bedanken voor het leveren van de organoïde onderhoudsmedia.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Advanced DMEM F12 | Gibco | 12634028 | |
| [Leu15]-Gastrin I | Sigma-Aldrich | G9145 | |
| 0.05% Trypsin EDTA | Gibco | 25300054 | |
| 0.05% Trypsin EDTA | Gibco | 25300054 | |
| 1.5mL microcentrifuge tubes | Fisherbrand | 5408137 | |
| 15mL conical tubes | Thermofisher Scientific | 0553859A | |
| 16% formaldehyde | Thermofisher Scientific | 28906 | |
| 1M HEPES | Gibco | 15630080 | |
| 1M HEPES | Gibco | 15630080 | |
| 1X PBS | Corning | 21-040-CV | |
| 25 gauge needle | Thermofisher Scientific | 1482113D | |
| A-83-01 | Tocris | 2939 | |
| ADP | Sigma-Aldrich | A2754 | |
| Advanced DMEM F12 | Gibco | 12634028 | |
| Antibiotic-antimycocytic | Gibco | 15240062 | |
| Antibiotic-antimycotic | Gibco | 15240062 | |
| B27 Supplement | Gibco | 17504-044 | |
| Bovine serum albumin | FisherScientific | BP1600100 | |
| CellView Cell Culture Slide, PS, 75/25 MM, Glass Bottom, 10 compartments | Greiner | 543979 | |
| Collagen IV | Sigma Aldrich | C5533 | |
| DAPI | Thermofisher Scientific | D1306 | |
| EDTA | Corning | 46-034-CI | |
| Fetal bovine serum | Corning | 35010CV | |
| Fetal bovine serum | Corning | 35010CV | |
| Fluorobrite | Gibco | A1896701 | |
| GlutaMAX | Gibco | 35050079 | |
| GlutaMAX | Gibco | 35050079 | |
| Human epidermal growth factor | ProteinTech | HZ-1326 | |
| Lentivirus | VectorBuilder | (variabel) | |
| Matrigel | BD Biosceicen | 356231/CB40230C | |
| N2 Supplement | Gibco | 17502-048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165-5G | |
| NH4Cl | Sigma-Aldrich | A9434 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| Nunc Cell Culture Treated 24-well Plates | Thermofisher Scientific | 142475 | |
| Polybrene | MilliporeSigma | TR1003G | |
| SB202190 | Sigma-Aldrich | S70767 | |
| Triton X-100 | Fisher BioReagents | BP151100 | |
| TrypLE Express Enzyme, no phenol red | Thermofisher Scientific | 12604013 | |
| Trypsin | Worthington Biochemical | NC9811754 | |
| Y-27632 | Tocris | 1254 |
Referenties
- Bootman, M. D., Bultynck, G. Fundamentals of cellular calcium signaling: A primer. Cold Spring Harb Perspect Biol. 12 (1), a038802(2020).
- Clapham, D. E. Calcium signaling. Cell. 131 (6), 1047-1058 (2007).
- Danese, A., et al. Cell death as a result of calcium signaling modulation: A cancer-centric prospective. Biochim Biophys Acta Mol Cell Res. 1868 (8), 119061(2021).
- Harr, M. W., Distelhorst, C. W. Apoptosis and autophagy: Decoding calcium signals that mediate life or death. Cold Spring Harb Perspect Biol. 2 (10), a005579(2010).
- Barak, P., Parekh, A. B. Signaling through Ca2+ microdomains from store-operated CRAC channels. Cold Spring Harb Perspect Biol. 12 (7), a035097(2020).
- Nakai, J., Ohkura, M., Imoto, K. A high signal-to-noise Ca(2+) probe composed of a single green fluorescent protein. Nat Biotechnol. 19 (2), 137-141 (2001).
- Erofeev, A. I., Vinokurov, E. K., Vlasova, O. L., Bezprozvanny, I. B. GCaMP, a family of single-fluorophore genetically encoded calcium indicators. J Evol Biochem Phys. 59 (4), 1195-1214 (2023).
- Suzuki, J., Kanemaru, K., Iino, M. Genetically encoded fluorescent indicators for organellar calcium imaging. Biophys J. 111 (6), 1119-1131 (2016).
- Nászai, M., Cordero, J. B. Intestinal stem cells: Got calcium. Curr Biol. 26 (3), R117-R119 (2016).
- Barrett, K. E. Calcium-mediated chloride secretion in the intestinal epithelium: Significance and regulation. Curr Top Membr. 53, 257-282 (2002).
- Xu, J., et al. Calcium-sensing receptor regulates intestinal dipeptide absorption via Ca2+ signaling and IKCa activation. Physiol Rep. 8 (1), e14337(2020).
- Clevers, H. Modeling development and disease with organoids. Cell. 165 (7), 1586-1597 (2016).
- Lin, S. C., Haga, K., Zeng, X. L., Estes, M. K. Generation of CRISPR–Cas9-mediated genetic knockout human intestinal tissue–derived enteroid lines by lentivirus transduction and single-cell cloning. Nat Protoc. 17 (4), 1004-127 (2022).
- Crawford, S. E., Ramani, S., Blutt, S. E., Estes, M. K. Organoids to dissect gastrointestinal virus-host interactions: What have we learned. Viruses. 13 (6), 999(2021).
- Lambert, T. J. FPbase: a community-editable fluorescent protein database. Nat Methods. 16 (4), 277-278 (2019).
- Lai, Y., et al. Inhibition of calcium-triggered secretion by hydrocarbon-stapled peptides. Nature. 603 (7903), 949-956 (2022).
- Chang-Graham, A. L., et al. Rotavirus induces intercellular calcium waves through ADP signaling. Science. 370 (6519), eabc3621(2020).
- Lee, B., et al. Anoctamin 1/TMEM16A controls intestinal Cl− secretion induced by carbachol and cholera toxin. Exp Mol Med. 51 (8), 1-14 (2019).
- Saha, T., et al. Intestinal TMEM16A control luminal chloride secretion in a NHERF1 dependent manner. Biochem Biophys Rep. 25, 100912(2021).
- Mroz, M. S., Keely, S. J. Epidermal growth factor chronically upregulates Ca2+-dependent Cl− conductance and TMEM16A expression in intestinal epithelial cells. J Physiol. 590 (8), 1907-1920 (2012).
- Sui, J., et al. Dual role of Ca2+-activated Cl− channel transmembrane member 16A in lipopolysaccharide-induced intestinal epithelial barrier dysfunction in vitro. Cell Death Dis. 11 (5), 404(2020).
- Bellono, N. W., et al. Enterochromaffin cells are gut chemosensors that couple to sensory neural pathways. Cell. 170 (1), 185-198.e16 (2017).
- Paradis, T., Bègue, H., Basmaciyan, L., Dalle, F., Bon, F. Tight junctions as a key for pathogens invasion in intestinal epithelial cells. Int J Mol Sci. 22 (5), 2506(2021).
- Samak, G., et al. Calcium/Ask1/MKK7/JNK2/c-Src signalling cascade mediates disruption of intestinal epithelial tight junctions by dextran sulfate sodium. Biochem J. 465 (3), 503-515 (2015).
- Deng, H., Gerencser, A. A., Jasper, H. Signal integration by Ca2+ regulates intestinal stem cell activity. Nature. 528 (7581), 212-217 (2015).
- Saurav, S., Tanwar, J., Ahuja, K., Motiani, R. K. Dysregulation of host cell calcium signaling during viral infections: Emerging paradigm with high clinical relevance. Mol Aspects Med. 81, 101004(2021).
- Chang-Graham, A. L., et al. Rotavirus calcium dysregulation manifests as dynamic calcium signaling in the cytoplasm and endoplasmic reticulum. Sci Rep. 9 (1), 10822(2019).
- Hyser, J. M., Collinson-Pautz, M. R., Utama, B., Estes, M. K. Rotavirus disrupts calcium homeostasis by NSP4 viroporin activity. mBio. 1 (5), e00265-e00310 (2010).
- Pham, T., Perry, J. L., Dosey, T. L., Delcour, A. H., Hyser, J. M. The Rotavirus NSP4 viroporin domain is a calcium-conducting ion channel. Sci Rep. 7, 43487(2017).
- Crawford, S. E., Hyser, J. M., Utama, B., Estes, M. K. Autophagy hijacked through viroporin-activated calcium/calmodulin-dependent kinase kinase-β signaling is required for rotavirus replication. Proc Natl Acad Sci U S A. 109 (50), E3405-E3413 (2012).
- Crawford, S. E., Criglar, J. M., Liu, Z., Broughman, J. R., Estes, M. K. COPII vesicle transport is required for Rotavirus NSP4 interaction with the autophagy protein LC3 II and trafficking to viroplasms. J Virol. 94 (1), e01341(2019).
- Pando, V., Iša, P., Arias, C. F., Ló Pez, S. Influence of calcium on the early steps of Rotavirus infection. Virology. 295 (1), 190-200 (2002).
- Hyser, J. M., Estes, M. K. Pathophysiological consequences of calcium-conducting viroporins. Annu Rev Virol. 2 (1), 473-496 (2015).
- Strtak, A. C., et al. Recovirus NS1-2 has viroporin activity that induces aberrant cellular calcium signaling to facilitate virus replication. mSphere. 4 (5), e00506-e00519 (2019).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), 59357(2019).
- Hirota, A., AlMusawi, S., Nateri, A. S., Ordóñez-Morán, P., Imajo, M. Biomaterials for intestinal organoid technology and personalized disease modeling. Acta Biomater. 132, 272-287 (2021).
- Cevallos Porta, D., López, S., Arias, C. F., Isa, P. Polarized rotavirus entry and release from differentiated small intestinal cells. Virology. 499, 65-71 (2016).
- Mirabelli, C., et al. Human Norovirus efficiently replicates in differentiated 3D-human intestinal enteroids. J Virol. 96 (22), e0085522(2022).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 28749075(2017).
- Li, J., et al. Engineering of NEMO as calcium indicators with large dynamics and high sensitivity. Nat Methods. 20 (6), 918-924 (2023).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
