In dit protocol beschrijven we een methode voor gelijktijdige verzameling van foetaal hersenweefsel en hoogwaardig, niet-gehemolyseerd serum uit hetzelfde muizenembryo. We hebben deze techniek gebruikt om te onderzoeken hoe maternale blootstelling aan voeding de macronutriëntenprofielen en de foetale neurologische ontwikkeling beïnvloedt bij muizen die heterozygoot zijn voor Nf1 (neurofibromatose type 1).
Methodenartikel
Gelijktijdige verzameling van hersenen en serum van foetale muizen om de effecten van maternale voeding op voeding en neurologische ontwikkeling bij neurofibromatose type 1 te beoordelen
In dit artikel
Samenvatting
Samenvatting
Het is aangetoond dat door maternale voeding geïnduceerde obesitas de neurologische ontwikkeling bij nakomelingen verandert, wat kan leiden tot verminderde cognitieve capaciteit, hyperactiviteit en stoornissen in sociaal gedrag. Patiënten met de klinisch heterogene genetische aandoening Neurofibromatose Type 1 (NF1) kunnen vergelijkbare tekorten vertonen, maar het is momenteel onduidelijk of omgevingsfactoren zoals het dieet van de moeder de ontwikkeling van deze fenotypes beïnvloeden, en zo ja, het mechanisme waardoor een dergelijk effect zou optreden. Om evaluatie mogelijk te maken van hoe blootstelling aan maternale obesogene voeding systemische factoren beïnvloedt die relevant zijn voor neurologische ontwikkeling bij NF1, hebben we een methode ontwikkeld om tegelijkertijd niet-gehemolyseerd serum en hele of regionaal micro-ontlede hersenen te verzamelen van foetale nakomelingen van muizenmoeders die een controledieet kregen versus een vetrijk, sucroserijk dieet. Hersenen werden verwerkt voor cryosectie of snel ingevroren om te gebruiken voor daaropvolgende RNA- of eiwitisolatie; De kwaliteit van het verzamelde weefsel werd geverifieerd door immunokleuring. De kwaliteit van het serum werd geverifieerd door macronutriëntenprofielen te analyseren. Met behulp van deze techniek hebben we vastgesteld dat maternale obesogene voeding het foetale serumcholesterol op dezelfde manier verhoogt tussen WT en Nf1-heterozygote pups.
Inleiding
Neurofibromatose type 1 (NF1) wordt beschouwd als een RASopathie, een groep aandoeningen die wordt gekenmerkt door genetische mutaties in de kiembaan die resulteren in activering van de RAS/MAPK-signaleringsroute (RAt Sarcoomvirus/Mitogeen-geactiveerd proteïnekinase). Patiënten met de NF1 RASopathie lopen risico op het ontwikkelen van veel verschillende manifestaties, waaronder zowel goedaardige als kwaadaardige tumoren van het centrale (optische route glioom 1,2, hooggradig glioom 3,4) en perifeer (plexiform neurofibroom 5,6, kwaadaardige perifere zenuwschedetumor 7,8) zenuwstelsel, evenals benige dysplasieën9 en huidpigmentafwijkingen10 (okselsproeten, café-au-lait macules). Het effect van deze aandoening op cognitie en neurologische ontwikkeling wordt steeds meer erkend, waarbij NF1-patiënten een verhoogde incidentie van leerstoornissen, hyperactiviteit en autismespectrumstoornis vertonen 11,12,13. Er is echter een aanzienlijke heterogeniteit in de ontwikkeling van deze fenotypes tussen patiënten 13,14,15,16,17, en het is onduidelijk waarom sommige patiënten significante cognitieve stoornissen vertonen, terwijl anderen niet worden beïnvloed. Het is aangetoond dat door maternale voeding geïnduceerde obesitas op dezelfde manier het leren en gedrag in de algemene bevolking beïnvloedt 18,19,20,21,22,23,24,25,26,27,28, wat suggereert dat differentiële maternale blootstelling via de voeding in NF1 een bron van deze klinische heterogeniteit zou kunnen zijn. In het bijzonder vertonen kinderen van zwaarlijvige moeders een verhoogd risico op het ontwikkelen van hyperactiviteit 18,19,20,23,25,26, autisme 19,24,27, tekorten aan executieve functies 21,23 en hebben lagere IQ-scores op volledige schaal22,28. Patiënten met NF1 hebben echter veranderde metabole fenotypes in vergelijking met de algemene bevolking, waaronder een verminderde incidentie van obesitas en diabetes 29,30,31, waardoor het onduidelijk is of ze op dezelfde manier zouden reageren op voedingsstimuli.
Om deze vragen te beantwoorden, wilden we bepalen of door obesogene voeding geïnduceerde veranderingen in het macronutriëntenprofiel bij foetale nakomelingen met Nf1 bijdroegen aan neurologische ontwikkelingsveranderingen. We hebben eerder hoogwaardig, volledig en regionaal micro-ontleed weefsel verzameld dat geschikt is voor neurologische ontwikkelingstoepassingen uit de foetale hersenen32. Foetale bloedafname is echter een uitdaging vanwege de kleine lichaamsgrootte en het lage bloedvolume33. De afname van bloed via door de zwaartekracht ondersteunde drainage na onthoofding leidde tot lage verzamelvolumes en significante hemolyse in onze monsters, wat van invloed kan zijn op de interpretatie van de stroomafwaartse toepassing. Verzameling via aspiratie van het foetale hart of de thoracale vaten, zoals eerder is gemeld33, was technisch uitdagend en resulteerde ook in frequente hemolyse. Daarom hebben we een methode ontwikkeld voor het verzamelen van foetale serums, waarbij gebruik wordt gemaakt van gespecialiseerde capillaire buisjes om een grotere volumeverzameling mogelijk te maken zonder significante schuifspanning.
Hier presenteren we deze methode om tegelijkertijd embryonale hersenen en foetaal serum te verzamelen van Nf1-heterozygote pups die zijn blootgesteld aan een vetrijk, suikerrijk dieet versus een controledieet in utero (Figuur 1 en aanvullende tabel S1). Hersenen werden cryo-ingebed voor latere analyse door immunofluorescentie of regionaal micro-ontleed en snel ingevroren voor later gebruik in moleculair-biologische toepassingen. Er werd serum van hoge kwaliteit verkregen, geschikt voor stroomafwaartse toepassingen zoals het profileren van macronutriënten. Met behulp van deze methode hebben we vastgesteld dat maternale blootstelling aan veel vet en veel sucrose via de voeding leidt tot een verhoging van het serumcholesterolgehalte bij zowel WT- als Nf1-heterozygote pups.
Protocol
Alle dierprocedures in deze studie volgden de NIH-richtlijnen en werden goedgekeurd door de Institutional Animal Care and Use Committee van de Washington University in St. Louis. Dieren werden gehuisvest met standaard 12 uur licht:donker fietsen en gratis toegang tot voedsel en water.
1. Dieet van de moeder
- Plaats vrouwelijke muizen op een controlevoer (CD) of obesogeneen dieet (Ob) op de leeftijd van 4 weken.
- Zet op de leeftijd van 8-12 weken een getimede paring op door de slijmprop van de moeder in de vroege ochtend te controleren om de juiste verzamelleeftijd te bepalen. Om door voeding veroorzaakte obesitas te verifiëren, weegt u vrouwtjes bij het paren.
OPMERKING: Een bereik van 8-12 weken werd gebruikt voor de eerste paringsopstelling om ervoor te zorgen dat de obesogene dieetgevoede vrouwtjes overgewicht hadden in vergelijking met hun tegenhangers, wat niet altijd gebeurde op de leeftijd van 8 weken. De dag van de plug wordt beschouwd als embryonale dag 1 (E1) en alle dieren die in dit onderzoek zijn gebruikt, werden verzameld op E19. Het late foetale tijdstip werd gekozen vanwege neurologische ontwikkelingsveranderingen die eerder op dit moment waren waargenomen bij obesogene dieren die aan voedsel waren blootgesteld (gegevens niet getoond).
2. Verwijdering van de foetus van de moeder
- Zorg er eerst voor dat de moeder er zwanger uitziet (buikvorm en volheid, abdominale palpatie of foetale beweging). Weeg bij twijfel het vrouwtje opnieuw om de gewichtstoename te meten.
OPMERKING: Langdurig zwangere muizen moeten ten minste 3-4 g gewichtstoename vertonen. Om de kans op conceptie in het gewenste tijdsbestek te vergroten, kan vuil (urine- en feromoonbevattend) zaagsel uit de kooi van een mannetje dagelijks gedurende 3 dagen voorafgaand aan de paring aan de kooi van het vrouwtje worden toegevoegd om oestrus op te wekken34. - Euthanaseer de dam door deze in een kamer te plaatsen met een papieren handdoek die 3 ml isofluraan bevat, en zorg ervoor dat u direct contact tussen de dam en de met verdoving doordrenkte papieren handdoek vermijdt. Nadat het dier is verdoofd, legt u het op een papieren handdoek, houdt u het bij de staart vast, plaatst u een dissectieschaar in de nek en dwingt u de schaar vervolgens omhoog naar het hoofd om cervicale dislocatie uit te voeren. U kunt ook onthoofding uitvoeren na isofluraansedatie.
OPMERKING: Serum kan in deze stap uit het moederdier worden verzameld met behulp van een vergelijkbare methode als hieronder beschreven, maar met grotere capillaire buisjes. Als dit gewenst is, moet onthoofding worden uitgevoerd in plaats van cervicale dislocatie. Er moet voor worden gezorgd dat het fenotype van interesse niet wordt veranderd door de toediening van isofluraan onmiddellijk vóór euthanasie. - Leg de dam met de buikzijde naar boven in een schaal van 100 mm. Knijp in de huid die de buik bedekt en maak een incisie in de middellijn met een dissectieschaar. Maak extra incisies loodrecht op de incisie in de middellijn om huidflappen te maken om de baarmoeder met de embryo's bloot te leggen.
- Trek de baarmoeder uit de buikholte. Koppel met een schaar de baarmoeder los van de dam. Plaats de intacte embryonale zak ("parels aan een touwtje") met de embryo's in een schaaltje met koude, steriele, 1x fosfaatgebufferde zoutoplossing (PBS). Zet de schaal met foetussen op ijs.
OPMERKING: Aangezien elk nest doorgaans 6-10 pups bevat die worden geoogst voor zowel de hersenen als het serum, worden foetussen op ijs bewaard om weefselafbraak te voorkomen. Het plaatsen van pups op ijs zorgt bovendien voor een adequate euthanasie van pups, aangezien maternale euthanasie alleen niet altijd voldoende is. Als alleen serumafname gewenst is, kan afname op kamertemperatuur de voorkeur hebben.
3. Foetale serumcollectie
- Verwijder de foetus uit de embryonale zak door voorzichtig te ontleden met # 5 pincet. Breng het embryo over naar een schaal met behulp van een gebogen pincet met verse, koude, steriele 1x PBS.
- Dep het dier voorzichtig op een papieren handdoek om achtergebleven vruchtwater en PBS van het monster te verwijderen.
- Houd het dier bij de buik vast. Onthoofd het dier gedeeltelijk met een microschaar door een incisie te maken in de buikhals. Zorg ervoor dat de bloedvaten zijn doorgesneden, maar dat de huid die het hoofd vasthoudt nog steeds vastzit.
OPMERKING: Het hoofd moet bevestigd blijven zodat er tegelijkertijd bloed van het lichaam en het hoofd kan worden verzameld. - Houd het lichaam in een hoek van 45° met de incisie naar beneden gericht. Houd de minivette van 50 μl (capillaire buis) evenwijdig aan de incisieplaats van het moedertje waar het bloed een druppel vormt. Laat het capillaire buisje van 50 μl zich voorzichtig vullen met bloed.
OPMERKING: Capillaire buis x2 of 100 μL capillaire buis kan worden gebruikt om tot ~75 μL bloed op te nemen. - Plaats de kop in een verse schaal van 60 mm met koude, steriele 1x PBS voor verdere weefselafname (sectie 4).
- Nadat het bloed in de capillaire buis zit, drukt u de zuiger snel in een buisje van 1.5 ml. Draai aan de buis of draai hem snel rond om er zeker van te zijn dat het bloed op de bodem van de buis zit.
- Herhaal dit voor de rest van het strooisel.
OPMERKING: Het is essentieel om de pups op het ijs te houden en snel tussen de pups te bewegen om het risico op postmortale stolling te verminderen, waardoor het verzamelvolume wordt beperkt. - Coaguleer het bloed bij kamertemperatuur gedurende 30 minuten.
- Centrifugeer de bloedmonsters bij 4 °C, 16.000 × g gedurende 20 minuten.
- Breng het serum over in verse buisjes van 500 μl met een pipet van 200 μl, zonder de bloedcelkorrel op de bodem van het buisje te verstoren.
OPMERKING: Het serum moet strokleurig zijn en mag geen rood vuil bevatten. Elke foetus moet 15-30 μL serum opleveren. - Bewaar het verzamelde serum bij -80 °C.
4. Foetale hersenverzameling
- Kijk door de ontleedmicroscoop, houd de snuit vast met een gebogen tang en gebruik # 5 pincet om de huid voorzichtig van de schedelkap af te pellen en deze aan de snuit vast te houden om hem gemakkelijk vast te houden. Hoek #5 pincet tot 45° ten opzichte van de schedel, prik voorzichtig door het doorzichtige membraan dat de zich ontwikkelende schedel is, verschuif de pincet evenwijdig aan de schedel, steek deze onder de schedelkap en knijp en pel dan naar één kant. Nadat de ene kant is verwijderd, pak je de resterende kant vast met #5 pincet en pel je naar de andere kant.
- Schep de hersenen voorzichtig uit de schedel met behulp van een microlepel en leg de hersenen op een vers schaaltje van 60 mm met daarin koud 1x PBS.
OPMERKING: Op dit punt kunnen hele hersenen worden gefixeerd en ingebed voor immunokleuring. Zie eerder gepubliceerde methodologie32. - Als weefsel moet worden ingevroren voor andere moleculaire toepassingen, ontleed dan het interessegebied. Isolatie van het periventriculaire weefsel rond de laterale, derde en vierde ventrikels wordt hieronder beschreven.
- Gebruik de gebogen pincet om de hersenen op de kruising van de achterhersenen en de voorhersenen vast te houden met de niet-dominante hand. Houd met de dominante hand de scalpel vast met het mesje evenwijdig aan het oppervlak van de hersenen. Druk stevig naar beneden in het midden van de corticale regio (Figuur 1).
- Terwijl u de achterhersenen nog steeds vasthoudt, maakt u een tweede incisie voor de achterhersenen om deze van de voorhersenen te scheiden (Figuur 1). Zoek in het voorste gedeelte naar twee kleine halfronde ruimtes in het horizontale vlak, namelijk de laterale ventrikels. Gebruik de gebogen pincet die in het midden van elke ventrikel is geplaatst om de hersenen op hun plaats te houden, ontleed de bekleding voorzichtig met een # 5 pincet en verwijder deze in een frisse, schone microcentrifugebuis van 1.5 ml.
- Zoek in het middelste gedeelte naar een kleine lineaire ruimte op het ventrale oppervlak, dat is het derde ventrikel. Knijp met een #5-tang voorzichtig de voering aan weerszijden van het ventrikeloppervlak af en verwijder deze vervolgens in een frisse, schone microcentrifugebuis van 1.5 ml.
- Zoek in het achterste gedeelte naar een kleine lineaire ruimte centraal in de achterhersenen, het vierde ventrikel. Ontleed de voering aan beide kanten met een #5 pincet en verwijder deze vervolgens in een frisse, schone microcentrifugebuis van 1.5 ml.
OPMERKING: Als het snijden in de achterhersenen geen schone snede is, kan het weefsel van het vierde ventrikel worden verduisterd en/of vernietigd. - Voor de stappen 4.3.2-4.3.4 geldt dat onmiddellijk nadat het weefsel in de microcentrifugebuisjes is geplaatst, de buisjes snel in een cryoveilige recipiënt met vloeibare stikstof wordt geplaatst.
OPMERKING: Buisjes kunnen in vloeibare stikstof worden bewaard totdat de resterende monsters zijn ontleed. LET OP: Vloeibare stikstof kan ernstige bevriezing veroorzaken. Steek de handen niet direct in vloeibare stikstof en vermijd spatten. - Leg de bevroren tube(s) op droogijs en breng de bevroren tissue over in een vriezer van -80 °C tot gebruik.
Resultaten
Om de kwaliteit van het via deze techniek verkregen hersenweefsel te illustreren, tonen we voorbeeldhersenen van foetale hersenen van Nestin-CFPnuc muizen35, immunogekleurd voor GFAP volgens een eerder gerapporteerde techniek32. Nestin+-cellen worden gezien langs het laterale ventrikel (Figuur 2A), met GFAP+-filamenten die zich vanaf het oppervlak uitstrekken. We hebben geen verschillen waargenomen tussen Nestin- of GFAP-expressie in het laterale ventrikel van aan CD versus Ob blootgestelde muizen in WT- of Nf1-heterozygote stammen (Figuur 2A,B). Vervolgens beoordeelden we de kwaliteit van microontleed weefsel. We voerden eerst western blotting36 uit voor het huishoudeiwit β-actine op het microontlede weefsel geïsoleerd uit de laterale ventrikels van CD versus aan Ob blootgestelde muizen. Alle monsters vertoonden een sterke expressie van β-actine (figuur 2C), zoals verwacht. Vervolgens isoleerden we RNA uit het microontleede weefsel volgens de eerder gerapporteerde methodologie32. Geïsoleerd RNA vertoonde zowel een hoge zuiverheid (260/280 ≥ 2) als integriteit (RIN-waarden ≥ 9), wat wijst op niet-gedegradeerd RNA met een hoge zuiverheid (figuur 2D).
Vervolgens hebben we de verschillende methoden van serumisolatie met elkaar vergeleken. Met behulp van onze minivette-methode verzamelden we routinematig grotere hoeveelheden niet-gehemolyseerd serum, terwijl zwaartekrachtdrainage en thoracale punctie resulteerden in zeer variabele volumeverzameling en hemolyse in veel monsters (Figuur 3A,B). Om de kwaliteit van het via deze techniek verkregen serum te illustreren, hebben we het totale serumcholesterolgehalte gemeten met behulp van het totale cholesterolreagens volgens de instructies van de fabrikant. Het foetale cholesterolgehalte lag binnen het verwachte bereik voor pups in de late dracht op basis van eerdere onderzoeken bij menselijke foetussen37. De niveaus waren verhoogd bij aan OB blootgestelde muizen in vergelijking met aan CD blootgestelde muizen voor zowel wildtype (Figuur 3C, links) als Nf1-heterozygote pups (Figuur 3C, rechts). Merk op dat het rechterpaneel gecombineerde gegevens weergeeft van twee verschillende Nf1-heterozygote stammen met door de patiënt geïdentificeerde kiembaanmutaties (R681X, C383X)32,38,39 aangezien vergelijkbare profielen werden gezien in beide stammen.
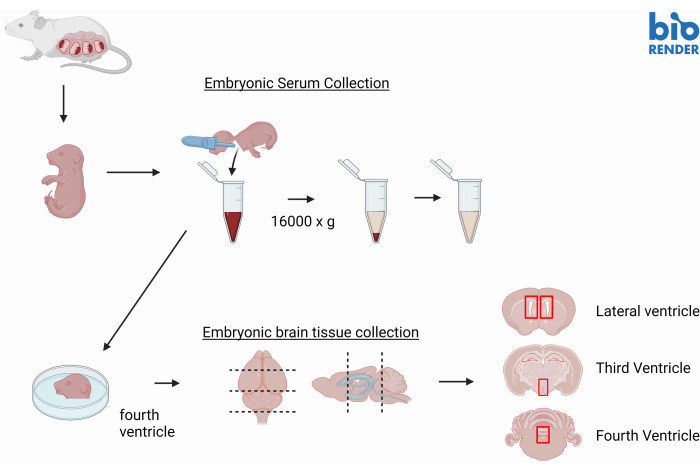
Figuur 1: Grafische samenvatting van de workflow. Pups worden eerst geïsoleerd uit drachtige moederdieren. Serum wordt vervolgens geoogst van de pups. Ten slotte worden hele hersenen geïsoleerd van pups en, indien gewenst, gemicrodisseceerd voor interessegebieden. Afbeelding gemaakt met BioRender.com. Klik hier om een grotere versie van deze figuur te bekijken.
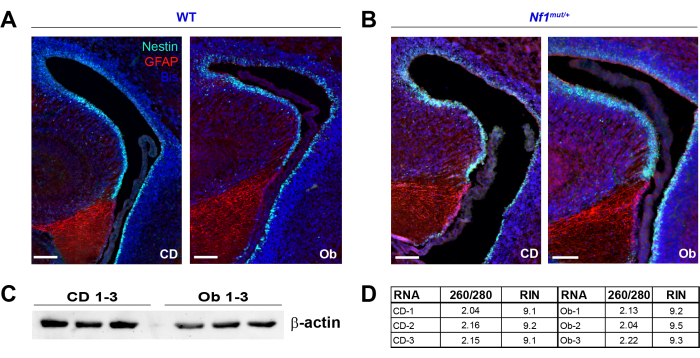
Figuur 2: Illustratieve resultaten, hersenweefsel. (A) Hersenen met cryosectie van Nestin-CFPnuc muizen, die een nucleair gelokaliseerd cyaan fluorescerend eiwit tot expressie brengen onder controle van de Nestin-promotor, werden met deze methode geoogst en immunogekleurd voor GFAP (rood) volgens eerder gerapporteerde methodologie32. Nestine-positieve cellen worden gevisualiseerd via endogene Nestin-CFPnuc expressie (groen). Kernen werden tegengekleurd met bis-benzimide (blauw). Er waren geen significante verschillen tussen aan CD en Ob blootgestelde WT-hersenen. Schaalbalk = 100 μm. (B) Nestin-CFPnuc; Nf1mut/+ pups werden op dezelfde manier beoordeeld. De GFAP- en Nestin-CFP-distributie leken vergelijkbaar met WT en varieerden niet met voedingsomstandigheden. Schaalbalk = 100 μm. (C) Eiwit werd geïsoleerd uit microontleed weefsel van de LV. Western blotting werd uitgevoerd volgens eerder gerapporteerde methodologie36 met 20 μg eiwit geladen per baan. In alle monsters was een sterke expressie van β-actine detecteerbaar. (D) RNA werd geïsoleerd uit microontleed weefsel volgens eerder gerapporteerde methodologie32. De RNA-kwaliteit werd beoordeeld aan de hand van 260/280-verhoudingen en RIN-waarden. Alle monsters vertoonden uitstekende 260/280-verhoudingen (≥2) en RIN-waarden (≥9), wat wijst op een goede isolatie van niet-gedegradeerd RNA. Afkortingen: CFP = cyaan fluorescerend eiwit; GFAP = gliaal fibrillair zuur eiwit; WT = wild-type; LV = laterale ventrikel; RIN = RNA-integriteitsgetal. Klik hier om een grotere versie van deze figuur te bekijken.
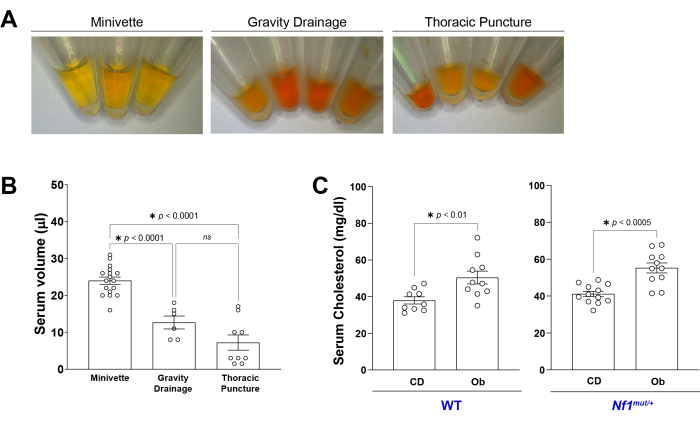
Figuur 3: Illustratieve resultaten en serum. (A) Serum werd verzameld met behulp van elk van de beschreven methoden. Verzameling met de minivette maakte routinematige verzameling van niet-hemolyseerd serum mogelijk in vergelijking met door zwaartekracht ondersteunde drainage en thoracale punctie. (B) Typische verzamelvolumes van serum worden getoond. De Minivette-collectie zorgde voor een meer reproduceerbare verzameling van grotere hoeveelheden serum. Statistische significantie bepaald door eenrichtings-ANOVA met meerdere vergelijkingen. Foutbalken: SEM. (C) Totaal serumcholesterol werd gemeten op basis van CD versus Ob-blootgesteld WT (links) en Nf1-heterozygoot (rechts) gepoold foetaal serum; Aan ob blootgestelde dieren vertoonden een hoger serumcholesterol in beide genotypen. Statistische significantie bepaald door t-toets. Foutbalken: SEM. Afkortingen: WT = wild type; CD = controledieet; Ob = obesogene voeding. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende tabel S1: Samenstelling van de voeding. De samenstelling van de controle- en obesogene diëten die in dit manuscript zijn gebruikt, wordt getoond. OPMERKING: Voor een vetarm, no-sucrose dieet dat beter controleert voor de afzonderlijke voedingscomponenten in D12331, kan het D12328 dieet (researchdiets.com) de voorkeur hebben. Klik hier om dit bestand te downloaden.
Discussie
Traditionele methoden voor het verzamelen van bloed van muizen zijn onder meer retrobulbaire, staartader, vena saphena, gezichtsader en halsaderbloeding 40,41,42. Helaas zijn deze methoden niet ideaal voor embryonale bloedafname vanwege de grootte van het dier en het kleine, delicate vaatstelsel. Verzameling van bloed via door de zwaartekracht ondersteunde drainage na onthoofding leidde tot zowel lage verzamelvolumes als significante hemolyse in onze monsters. Eerdere protocollen rapporteerden verbeterde volumes door een gemodificeerde naald van 20 G te gebruiken om bloed uit de thoracale bloedvaten af te tappen33; We vonden deze techniek echter technisch uitdagend en zagen hoge hemolysesnelheden, waardoor het ongeschikt is voor veel stroomafwaartse toepassingen. Onze methode heeft het voordeel dat het bloed wordt verzameld via passieve bloedstroom, waardoor het risico op hemolyse door aspiratie geïnduceerde pure stress wordt verminderd. De zuiger op de capillaire buis biedt ook een snelle en efficiënte manier om bloed in de verzamelbuis af te leveren, waardoor blootstelling aan lucht wordt geminimaliseerd en fragmentatie van bloedstolsels wordt beperkt. Belangrijk is dat volledig of regionaal gemicrodisseceerd hersenweefsel vervolgens van hetzelfde dier kan worden verzameld, waardoor de totale behoefte aan proefdieren wordt verminderd.
Dit protocol is niet zonder aanpassingen om de kwaliteit en efficiëntie van de inzameling te optimaliseren. Voor serumafname is het van cruciaal belang om embryonale vloeistof en extra PBS voorzichtig uit het dier te verwijderen voordat het bloed wordt afgenomen, omdat overtollig vocht het dier glad kan maken en de kans op een slechte of onstabiele positionering kan vergroten, wat een negatieve invloed heeft op de kwaliteit van de bloedafname. Bovendien is de positionering van de vingers tijdens het vasthouden van het embryo van cruciaal belang, omdat het bloed tijdens het verzamelen aan een gehandschoende vinger blijft plakken als de vinger zich naast de capillaire buis bevindt. Het is ook belangrijk om de opening van de capillaire buis naast het stromende bloed te houden, in plaats van erin ondergedompeld te zijn; De capillaire verzameling wordt verstoord als de buis wordt ondergedompeld. Ten slotte moet men de stroomafwaartse toepassing zorgvuldig overwegen om de serumverzameling te optimaliseren. Glucose wordt bijvoorbeeld na verloop van tijd afgebroken in onbehandelde buisjes bij kamertemperatuur, dus verzameling in natriumfluoride- of EDTA-bevattende buisjes kan nodig zijn om de glucosespiegels nauwkeurig te kwantificeren43,44.
Voor het verzamelen van hersenweefsel is de zorgvuldige verwijdering van de huid en de transparante schedel aan beide zijden van het hoofd van cruciaal belang voor een schone extractie. Als slechts één kant wordt weggesneden, kunnen de hersenen aan de schedel blijven plakken met een poging tot verwijdering, wat resulteert in scheuren en vervorming van het weefsel. Voor het doorsnijden van de hersenen is het belangrijk om enkele, schone plakjes te maken om de voorste van de middencortex en de middencortex van de achterhersenen te scheiden. Het hebben van meerdere snijwonden kan de structurele integriteit van het weefsel verstoren of uw referentiepunt voor daaropvolgende microdissectie verdoezelen. Ten slotte is het van cruciaal belang om monsters op ijs te bewaren tot ze gefixeerd zijn of snel in te vriezen om degradatie van het monster te voorkomen.
Hoewel we de voorkeur geven aan deze methode vanwege de routinematige verzameling van niet-gehemolyseerd serum met een hoger volume, is het niet zonder nadelen. Hoewel hemolyse verminderd is in vergelijking met andere technieken, neemt deze methode het risico niet weg. De capillaire buis kan ook verstopt raken met een bloedstolsel zodra het bloed stopt met stromen, dus het is belangrijk om snel na de onthoofding te werken om het risico op mislukte verzameling als gevolg van stolling te verkleinen. Het bewaren van monsters op ijs, wat wordt gedaan om de integriteit van het monster in dit protocol te behouden, kan ook een nadelige invloed hebben op sommige fenotypes en is mogelijk niet geschikt voor alle toepassingen.
Concluderend kan deze methodologie worden gebruikt om tegelijkertijd serum en hele of regionaal gemicrodisculeerde hersenen van dezelfde foetus te isoleren. Deze techniek kan worden gebruikt om aan te pakken hoe systemische factoren, zoals een door het dieet van de moeder veroorzaakte verandering in het macronutriëntenprofiel, de neurologische ontwikkeling bij NF1 of andere aandoeningen kunnen beïnvloeden.
Openbaarmakingen
De auteurs hebben geen belangenconflicten.
Dankbetuigingen
N Brossier wordt ondersteund door het Francis S. Collins Scholars Program in Neurofibromatose Clinical and Translational Research, gefinancierd door het Neurofibromatose Therapeutic Acceleration Program (NTAP, Grant # 210112). Deze publicatie werd mede mogelijk gemaakt door financiering van de NTAP van de Johns Hopkins University School of Medicine. De inhoud ervan valt uitsluitend onder de verantwoordelijkheid van de auteurs en vertegenwoordigt niet noodzakelijkerwijs de officiële standpunten van de Johns Hopkins University School of Medicine. Aanvullende steun van het St. Louis Children's Hospital (FDN-2022-1082 aan NMB) en de Washington University in St. Louis Diabetes Research Core (NIH P30 DK020579). Microscopie werd uitgevoerd met behulp van het Washington University Center for Cellular Imaging (WUCCI), ondersteund door de Washington University School of Medicine, The Children's Discovery Institute of Washington University en St. Louis Children's Hospital (CDI-CORE-2015-505 en CDI-CORE-2019-813) en de Foundation for Barnes-Jewish Hospital (3770 en 4642). Nestin-CFPnuc35 muizen werden genereus verstrekt door Grigori Enikolopov (Renaissance School of Medicine, Stony Brook University, NY), en Nf1-muizen heterozygoot voor een R681X of C383X kiembaanmutatie 32,38,39 werden genereus verstrekt door David Gutmann (Washington University School of Medicine, St. Louis, MO). Figuur 1 is gemaakt met BioRender.com.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| #5/45 Forceps | Dumont | 11251-35 | tip shape: angled 45° |
| 4200 Tapestation | Agilent | G2991BA | Verify RNA integrity and quality, measurement of RIN values |
| Benchtop Liquid Nitrogen Container | Thermo Fisher | 2122 | Of andere cryo-veilige container |
| Control Chow | PicoLab | 5053 | Onderzoek diëten D12328 (laag vet, laag suiker) mogen ook worden gebruikt. |
| Curved Forceps | Cole Parmer | UX-10818-25 | Tip shape: curved 90° |
| Dissecting blade handle | Cole-Parmer Essentials | 10822-20 | SS Siegel-Type, #10 tot #15 blades |
| EMS SuperCut Dissection Scissors | Electron microscope sciences | 72996-01 | 5½" (139.7 mm), Straight |
| GFAP Antibody | Abcam | ab7260 | Verdun 1:350. Blok met 10% serum bevattend 0.3 M Glycine. |
| Glassvan Carbon Steel Surgical Blades, Size 11 | MYCO medical | 2001T-11 | #11 blades staan rechte, platte sneden toe |
| Micro lab spoon | Az Scilab | A2Z-VL001 | roestvrij staal, autoklaafbaar |
| Micro scissors | Rubis | 78180-1C3 | model 1C300 |
| Minivette POCT neutral | Sarstedt | 17.2111.050 | nomineel volume: 50 µL, zonder voorbereiding |
| Nanorop | Thermo Fisher | 13-400-519 | Meet RNA concentratie, 260/280 verhoudingen |
| Obesogenic diet | Researchdiets.com | D12331 | Hoog vet, hoog sucrose |
| Total Cholesterol Reagent | Thermo Fisher | TR13421 | Colorimetrische detectie |
| β-actin antibody | Cell Signaling | 8457 | Verdun 1:1,000. |
Referenties
- Listernick, R., Darling, C., Greenwald, M., Strauss, L., Charrow, J. Optic pathway tumors in children: the effect of neurofibromatosis type 1 on clinical manifestations and natural history. J Pediatr. 127 (5), 718-722 (1995).
- Fisher, M. J., et al. Integrated molecular and clinical analysis of low-grade gliomas in children with neurofibromatosis type 1 (NF1). Acta Neuropathol. 141 (4), 605-617 (2021).
- Cimino, P. J., et al. Expanded analysis of high-grade astrocytoma with piloid features identifies an epigenetically and clinically distinct subtype associated with neurofibromatosis type 1. Acta Neuropathol. 145 (1), 71-82 (2023).
- Lucas, C. -H. G., et al. Multiplatform molecular analyses refine classification of gliomas arising in patients with neurofibromatosis type 1. Acta Neuropathol. 144 (4), 747-765 (2022).
- Fisher, M. J., et al. Management of neurofibromatosis type 1-associated plexiform neurofibromas. Neuro-Oncol. 24 (11), 1827-1844 (2022).
- Packer, R. J., et al. Plexiform neurofibromas in NF1. Neurology. 58 (10), 1461-1470 (2002).
- Evans, D. G. R., et al. Malignant peripheral nerve sheath tumours in neurofibromatosis 1. J Med Genet. 39 (5), 311(2002).
- Prudner, B. C., Ball, T., Rathore, R., Hirbe, A. C. Diagnosis and management of malignant peripheral nerve sheath tumors: Current practice and future perspectives. Neurooncol Adv. 2, Suppl 1 i40-i49 (2020).
- Ma, Y., et al. A molecular basis for neurofibroma-associated skeletal manifestations in NF1. Genet Med. 22 (11), 1786-1793 (2020).
- Ozarslan, B., Russo, T., Argenziano, G., Santoro, C., Piccolo, V. Cutaneous findings in neurofibromatosis Type 1. Cancers. 13 (3), 463(2021).
- Hyman, S. L., Shores, A., North, K. N. The nature and frequency of cognitive deficits in children with neurofibromatosis type 1. Neurology. 65 (7), 1037-1044 (2005).
- Morris, S. M., et al. Disease burden and symptom structure of autism in neurofibromatosis type 1: a study of the International NF1-ASD Consortium Team (INFACT). JAMA Psychiatry. 73 (12), 1276-1284 (2016).
- Geoffray, M. -M., et al. Predictors of cognitive, behavioural and academic difficulties in NF1. J Psychiatr Res. 140, 545-550 (2021).
- Monroe, C. L., Dahiya, S., Gutmann, D. H. Dissecting clinical heterogeneity in neurofibromatosis type 1. Ann Rev Pathol. 12 (1), 53-74 (2017).
- Kehrer-Sawatzki, H., Mautner, V. -F., Cooper, D. N. Emerging genotype-phenotype relationships in patients with large NF1 deletions. Hum Genet. 136 (4), 349-376 (2017).
- Hou, Y., et al. Predictors of cognitive development in children with neurofibromatosis type 1 and plexiform neurofibromas. Dev Med Child Neurol. 62 (8), 977-984 (2020).
- Biotteau, M., et al. Sporadic and familial variants in NF1: an explanation of the wide variability in neurocognitive phenotype. Front Neurol. 11, 368(2020).
- Rodriguez, A., et al. Maternal adiposity prior to pregnancy is associated with ADHD symptoms in offspring: evidence from three prospective pregnancy cohorts. Int J Obes (Lond). 32 (3), 550-557 (2008).
- Andersen, C. H., Thomsen, P. H., Nohr, E. A., Lemcke, S. Maternal body mass index before pregnancy as a risk factor for ADHD and autism in children). Eur Child Adolesc Psychiatry. 27 (2), 139-148 (2018).
- Pugh, S. J., et al. Gestational weight gain, prepregnancy body mass index and offspring attention-deficit hyperactivity disorder symptoms and behaviour at age 10. Bjog. 123 (13), 2094-2103 (2016).
- Mina, T. H., et al. Prenatal exposure to maternal very severe obesity is associated with impaired neurodevelopment and executive functioning in children. Pediatr Res. 82 (1), 47-54 (2017).
- Oken, E., et al. Analysis of maternal prenatal weight and offspring cognition and behavior: Results from the Promotion of Breastfeeding Intervention Trial (PROBIT) Cohort. JAMA Netw Open. 4 (8), e2121429-e2121429 (2021).
- Buss, C., et al. Impaired executive function mediates the association between maternal pre-pregnancy body mass index and child ADHD symptoms. PLOS ONE. 7 (6), e37758(2012).
- Li, Y. -M., et al. Association between maternal obesity and autism spectrum disorder in offspring: a meta-analysis. J Autism Dev Disord. 46 (1), 95-102 (2016).
- Dow, C., Galera, C., Charles, M. -A., Heude, B. Maternal pre-pregnancy BMI and offspring hyperactivity-inattention trajectories from 3 to 8 years in the EDEN birth cohort study. Eur Child Adolesc Psychiatry. 32 (10), 2057-2065 (2023).
- Fast, K., et al. Prevalence of attention-deficit/hyperactivity disorder and autism in 12-year-old children: A population-based cohort. Devl Med Child Neurol. 66 (4), 493-500 (2023).
- Carter, S. A., et al. Maternal obesity and diabetes during pregnancy and early autism screening score at well-child visits in standard clinical practice. Autism. 28 (4), 975-984 (2023).
- West, Z., et al. Relationships between maternal body mass index and child cognitive outcomes at 3 years of age are buffered by specific early environments in a prospective Canadian birth cohort. J Dev Orig Health Dis. 14 (1), 42-52 (2023).
- Gutmann, D. H., et al. Neurofibromatosis type 1. Nat Rev Dis Primers. 3, 17004(2017).
- Martins, A. S., et al. Lower fasting blood glucose in neurofibromatosis type 1. Endocr Connect. 5 (1), 28-33 (2016).
- Martins, A. S., et al. Increased insulin sensitivity in individuals with neurofibromatosis type 1. Arch Endocrinol Metab. 62 (1), 41-46 (2018).
- Brossier, N. M., Thondapu, S., Cobb, O. M., Dahiya, S., Gutmann, D. H. Temporal, spatial, and genetic constraints contribute to the patterning and penetrance of murine Neurofibromatosis-1 optic glioma. Neuro Oncol. 23 (4), 625-637 (2020).
- de Lurdes Pinto, M., et al. Technical Report: Mouse fetal blood collection taking the best out of the old needle-syringe method. Scandinavian Journal of Laboratory Animal Science. 35 (1), 5(2008).
- Musillo, C., et al. Bdnf-Nrf-2 crosstalk and emotional behavior are disrupted in a sex-dependent fashion in adolescent mice exposed to maternal stress or maternal obesity. Transl Psychiatry. 13 (1), 399(2023).
- Encinas, J. M., Vaahtokari, A., Enikolopov, G. Fluoxetine targets early progenitor cells in the adult brain. Proc Natl Acad Sci U S A. 103 (21), 8233-8238 (2006).
- Anastasaki, C., et al. Human induced pluripotent stem cell engineering establishes a humanized mouse platform for pediatric low-grade glioma modeling. Acta Neuropathol Commun. 10 (1), 120(2022).
- Cai, H. -J., Xie, C. -L., Chen, Q., Chen, X. -Y., Chen, Y. -H. The relationship between hepatic low-density lipoprotein receptor activity and serum cholesterol level in the human fetus. Hepatology. 13 (5), 852-857 (1991).
- Toonen, J. A., et al. NF1 germline mutation differentially dictates optic glioma formation and growth in neurofibromatosis-1. Hum Mol Genet. 25 (9), 1703-1713 (2016).
- Guo, X., Pan, Y., Gutmann, D. H. Genetic and genomic alterations differentially dictate low-grade glioma growth through cancer stem cell-specific chemokine recruitment of T cells and microglia. Neuro Oncol. 21 (10), 1250-1262 (2019).
- Parasuraman, S., Raveendran, R., Kesavan, R. Blood sample collection in small laboratory animals. J Pharmacol Pharmacother. 1 (2), 87-93 (2010).
- Meyer, N., et al. Impact of three commonly used blood sampling techniques on the welfare of laboratory mice: Taking the animal's perspective. PLOS ONE. 15 (9), e0238895(2020).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. J Appl Toxicol. 21 (1), 15-23 (2001).
- Jung, J., Garnett, E., Rector, K., Jariwala, P., Devaraj, S. Effect of collection tube type on glucose stability in whole blood. Ann Clin Lab Sci. 50 (4), 557-559 (2020).
- Bonetti, G., et al. Which sample tube should be used for routine glucose determination. Prim Care Diabetes. 10 (3), 227-232 (2016).
Herprints en machtigingen
